我们描述了一种实验方案 体内 通过电穿孔标记嗅觉感觉神经元,随后进行共聚焦激光扫描显微镜或双光子显微镜观察,以可视化神经元形态及其随时间的发育过程。
本文内容
摘要
摘要
嗅觉系统具有一种特殊能力,即在生物体整个生命周期中持续产生新的神经元。位于嗅上皮基底层的嗅觉干细胞不断产生新的感觉神经元,这些神经元将其轴突延伸至嗅球,并面临整合入现有神经环路的挑战。由于这一独特特性,嗅觉系统为研究轴突连接与导向以及突触形成提供了独一无二的机会。本文描述了一种实验方法 体内 标记感觉神经元及随后对两栖动物幼虫嗅觉系统中轴突的可视化 非洲爪蟾为了标记嗅觉器官中的感觉神经元,我们采用电穿孔技术。 在体 电穿孔是一种将荧光素偶联的葡聚糖或其他大分子递送至活细胞的成熟技术。随后可在活体动物中利用共聚焦激光扫描显微镜或多光子显微镜,对染色的感觉神经元及其轴突过程进行监测。通过将每只动物中标记的细胞数量减少至少数几个或单个细胞,可对单根轴突追踪至嗅球,并通过一系列连续成像,在数周时间内监测其形态学变化 体内 延时成像实验。尽管本方案以嗅觉感觉神经元的标记与监测为例进行说明,但也可适用于嗅觉系统及其他系统中的其他细胞类型。
引言
感觉神经元的终身更替使嗅觉系统区别于许多其他感觉和神经系统1,2。新的感觉神经元在嗅上皮基部持续生成3,并将其轴突延伸至嗅球——嗅觉系统的第一级中继站4。然而,调控嗅觉图谱形成与维持的细胞和分子机制仍远未被完全阐明4,5。
本文描述了一种对幼虫嗅觉器官感觉神经元进行标记的实验方案 X. laevis 由 体内 荧光标记葡聚糖的电穿孔。本方案可实现轴突形态与连接性的可视化,追踪轴突随时间的发育过程,并研究调控轴突连接与导向的机制。
电穿孔是一种将带电大分子(如葡聚糖偶联染料和DNA)导入细胞的成熟方法6,7。通过施加短时电压脉冲使细胞膜通透化,并通过电泳将分子递送至细胞质8。利用微电极进行空间限制性电穿孔可实现包括神经元在内的特定细胞标记,已在多种神经系统中应用,包括非洲爪蟾(X. laevis)的视觉系统9,10。
我们展示了如何利用电穿孔处理的动物,通过共聚焦激光扫描显微镜或双光子显微镜在活体动物中研究轴突生长模式和形态。所述方法可用于鉴定主嗅觉系统和副嗅觉系统感觉神经元轴突投射的粗略拓扑结构11,12使用 体内 延时成像不仅适用于监督单个成熟感觉神经元的肾小球连接,还可用于监测未成熟感觉神经元轴突投射模式的演变过程12所述方案可用于研究完整动物中嗅觉环路的结构及其形成过程,并可适用于嗅觉系统及其他神经元系统中的其他细胞类型。
方案
注意:动物操作和实验均经哥廷根大学动物实验伦理委员会批准。
1. 仪器准备与移液管制作
- 确保电穿孔装置包含一个具有较大工作距离的体视显微镜,并配备用于所用染料的荧光照明系统及相应的滤光片组。
- 电穿孔可使用专用的单细胞电穿孔仪,或连接示波器的通用方波脉冲发生器。将电穿孔仪的输出端连接至移液管持夹和浴槽电极。将脉冲发生器的正极端连接至微移液管持夹,负极端连接至浴槽电极。确保移液管持夹和浴槽电极均含有涂覆薄层氯化银的银丝。
- 将移液管持夹安装在显微操作器上,以实现精确定位。
- 使用带内丝的硼硅酸盐玻璃毛细管拉制电穿孔用微移液管。
- 采用水平微移液管拉制仪,并参照 Bestman et al.13 所述用于膜片钳实验的移液管制备方案进行改良后的方法。
- 调整参数以获得更长的管柄和更小的尖端开口,使单细胞电穿孔用移液管的电阻约为 15–20 MΩ。对于细胞群体标记,移液管电阻应较低,e.g.,3–4 MΩ。
- 可通过专用单细胞电穿孔仪直接测量移液管电阻,或在施加已知电压脉冲后,利用示波器测量电流,再根据欧姆定律计算电阻值。
2. 电穿孔溶液的制备
- 将荧光染料偶联的葡聚糖溶解于林格氏液(98 mM NaCl,2 mM KCl,1 mM CaCl2,2 mM MgCl2,5 mM 葡萄糖,5 mM Na-丙酮酸盐,10 mM HEPES,调节pH至7.8,渗透压为230 mOsmol/L)中,终浓度为3 mM。若使用较低染料浓度,细胞标记亮度可能不足。建议配制大量储备液,并分装成小份,冷冻保存(可稳定数月)。
注意:葡聚糖有多种分子量及不同的激发/发射光谱可供选择(例如,Alexa 488-葡聚糖 10kD,Alexa 546-葡聚糖 10kD,Alexa 568-葡聚糖 10kD,Alexa 594-葡聚糖 10kD,TMR-葡聚糖 3kD)。 - 用拉长的移液尖端吸取少量葡聚糖溶液(1–5 µL)反向填充至微电极中。轻轻弹击微电极,以去除尖端残留的气泡。
- 将微电极安装至电极夹持器中,并确保电极内部的银丝与染料溶液接触良好。
3. 蝌蚪期 X. laevis 的选择
- 实验中使用白化型X. laevis幼体。野生型动物含有色素颗粒的黑色素细胞,在共聚焦/多光子成像过程中会产生自发荧光信号,因此不适合用于本实验。
- 根据Nieuwkoop和Faber14分期法对变态前蝌蚪进行分期。选择45–53期的蝌蚪用于实验。
4. 荧光标记葡聚糖的电穿孔
- 取一小块组织放入培养皿中,并用含有0.02%三卡因(Ethyl 3-aminobenzoate methanesulfonate,pH调至7)的少量水覆盖。
- 将蝌蚪置于含有0.02%三卡因的水中进行麻醉。数分钟后,动物停止活动。通过轻触蝌蚪确认麻醉效果,应无反应。
- 小心地将蝌蚪从麻醉液转移至铺有湿润组织的培养皿中。
- 确保浴电极闭合电穿孔电路。电极需与湿润的组织接触,但无需直接接触蝌蚪。
- 使用显微操作器将微电极尖端准确定位于嗅觉器官附近。
- 用微电极尖端刺穿覆盖嗅觉器官的皮肤,并谨慎推进至主嗅上皮或副嗅上皮中央的感觉神经元层。
- 施加正向方波电压脉冲,将染料导入感觉神经元。可使用单个电压脉冲(例如,25 V,脉冲时长25 msec),或多个脉冲序列(例如,50 V,脉冲时长300 µsec,200 Hz频率下持续400 msec的脉冲串)。
注意:根据所需标记范围确定最佳电压脉冲参数。降低电压脉冲幅度、持续时间及重复次数可减少被标记细胞数量;提高电压脉冲幅度、持续时间及脉冲次数可实现更广泛的标记。 - 通过体视显微镜的荧光照明观察由触发脉冲引起的染料释放和电穿孔效果 。成功电穿孔后,染料迅速扩散至细胞体和树突。
- 对蝌蚪的第二个嗅觉器官重复步骤4.5–4.9。
- 将蝌蚪转移至盛有新鲜水的烧杯中恢复。约5分钟后,蝌蚪从麻醉中苏醒并开始正常游动。
- 24小时后,电穿孔导入的染料在感觉神经元中扩散,并最终通过轴突运输到达嗅球。
5. 动物样本的封片 体内 细胞与轴突过程的可视化
- 将蝌蚪置于含有0.02%三卡因的水中进行麻醉。
- 小心地将蝌蚪转移至成像室中, 例如一个带有蝌蚪大小凹槽的小型硅橡胶覆盖的培养皿。
- 将Parafilm切成小矩形,形成一条带状。用Parafilm覆盖蝌蚪,通过切出的窗口暴露前脑端脑区域。用针将Parafilm固定在培养皿上,注意不要损伤蝌蚪。
- 确保蝌蚪完全浸没在含有0.02%三卡因的足够水中。
- 将成像腔室安装在直立式多光子显微镜或共聚焦显微镜的载物台上。
- 获取嗅球的三维图像序列。确保成像过程尽可能短暂,且不超过10-15分钟。
- 将蝌蚪转移至另一水箱中的正常水中,并避免光照。5分钟后,蝌蚪从麻醉状态苏醒。
- 在指定的时间间隔后重复步骤 5.1–5.7, 例如,每天。
6. 固定动物用于 离体 细胞与轴突过程的可视化
- 作为方案第5节的替代方法,使用离体脑组织来观察标记的感觉神经元。
- 通过在脑与脊髓交界处横切脑组织,麻醉并处死蝌蚪。切除包含嗅觉器官、嗅神经及前脑端脑的组织块。
- 将组织块转移至蛙林格液中,用精细剪刀去除结缔组织,暴露脑的腹侧面。
- 将组织块转移至成像腔室,并用尼龙丝线固定的铂金框架将其固定。
- 将成像腔室安装在共聚焦/多光子显微镜的载物台上。
- 采集嗅球的三维图像序列。
7. 图像处理与数据分析
- 采用并优化非局部均值滤波方法,以提高神经元结构的图像质量和可视化效果,具体方法如 Coupé, P. et al. 15 所述。
注意:活体样本深层组织成像实验的数据通常存在较多噪声。 - 对图像序列生成最大强度投影,以获得整体视图。
- 对于延时成像实验,筛选数据集,找出可明确识别的单个感觉神经元轴突。
- 通过软件辅助追踪神经元突起,重建细胞形态,方法如 Peng et al.16 所述。
结果
本方案可成功用于麻醉状态下非洲爪蟾(X. laevis)嗅觉系统感觉神经元轴突过程的电穿孔及活体成像,结合共聚焦激光扫描显微镜或双光子显微镜进行观察(图1)。
电穿孔可使荧光素偶联的葡聚糖进入嗅觉器官的细胞并迅速扩散。在施加电压脉冲后,应用荧光照明有助于验证标记是否成功。根据电穿孔参数的不同, 例如,移液管电阻,细胞群(图2A、B)或单个细胞(图2C嗅觉器官的相应区域被标记。可在嗅神经中观察到标记的感觉神经元的轴突。图2D) 轴突样突起也可在嗅球中观察到,通常在成功电穿孔后约24小时图3). 对感觉神经元群体进行电穿孔,可实现对嗅球中粗略连接模式的可视化图3A)。单细胞电穿孔可用于研究单个轴突投射模式、轴突分支以及与嗅球中肾小球结构的连接性。图3C-E).
透明白化蝌蚪 X. laevis 允许 体内 对麻醉蝌蚪完整脑内标记的感觉神经元进行共聚焦或双光子成像。通过多次重复成像,可在数天至数周内追踪轴突生长模式的发育过程。 体内 同一标记感觉神经元的可视化(图4)。根据电穿孔时感觉神经元的成熟程度,其在嗅球中的轴突形态可能表现出显著差异。成熟的神经元已经具有复杂的轴突分支,这些分支形成与小球结构相连的簇状区域。成熟神经元的轴突生长模式相对稳定,但仍然可以观察到轴突分支的延伸以及小球簇状结构的精细调整(图 4A-E)。可观察到感觉神经元 体内 长时间 例如,超过三周图4F-I)。另一方面,未成熟神经元的轴突仍处于初始生长阶段,尚未形成簇状分支,也未与最终的肾小球靶区建立连接。该实验方案可用于追踪这些神经元在成熟过程中的发育情况, 例如轴突延伸、分支以及簇状分支结构的建立(图4J-L)。更多示例请参见 Hassenklöver 和 Manzini12.
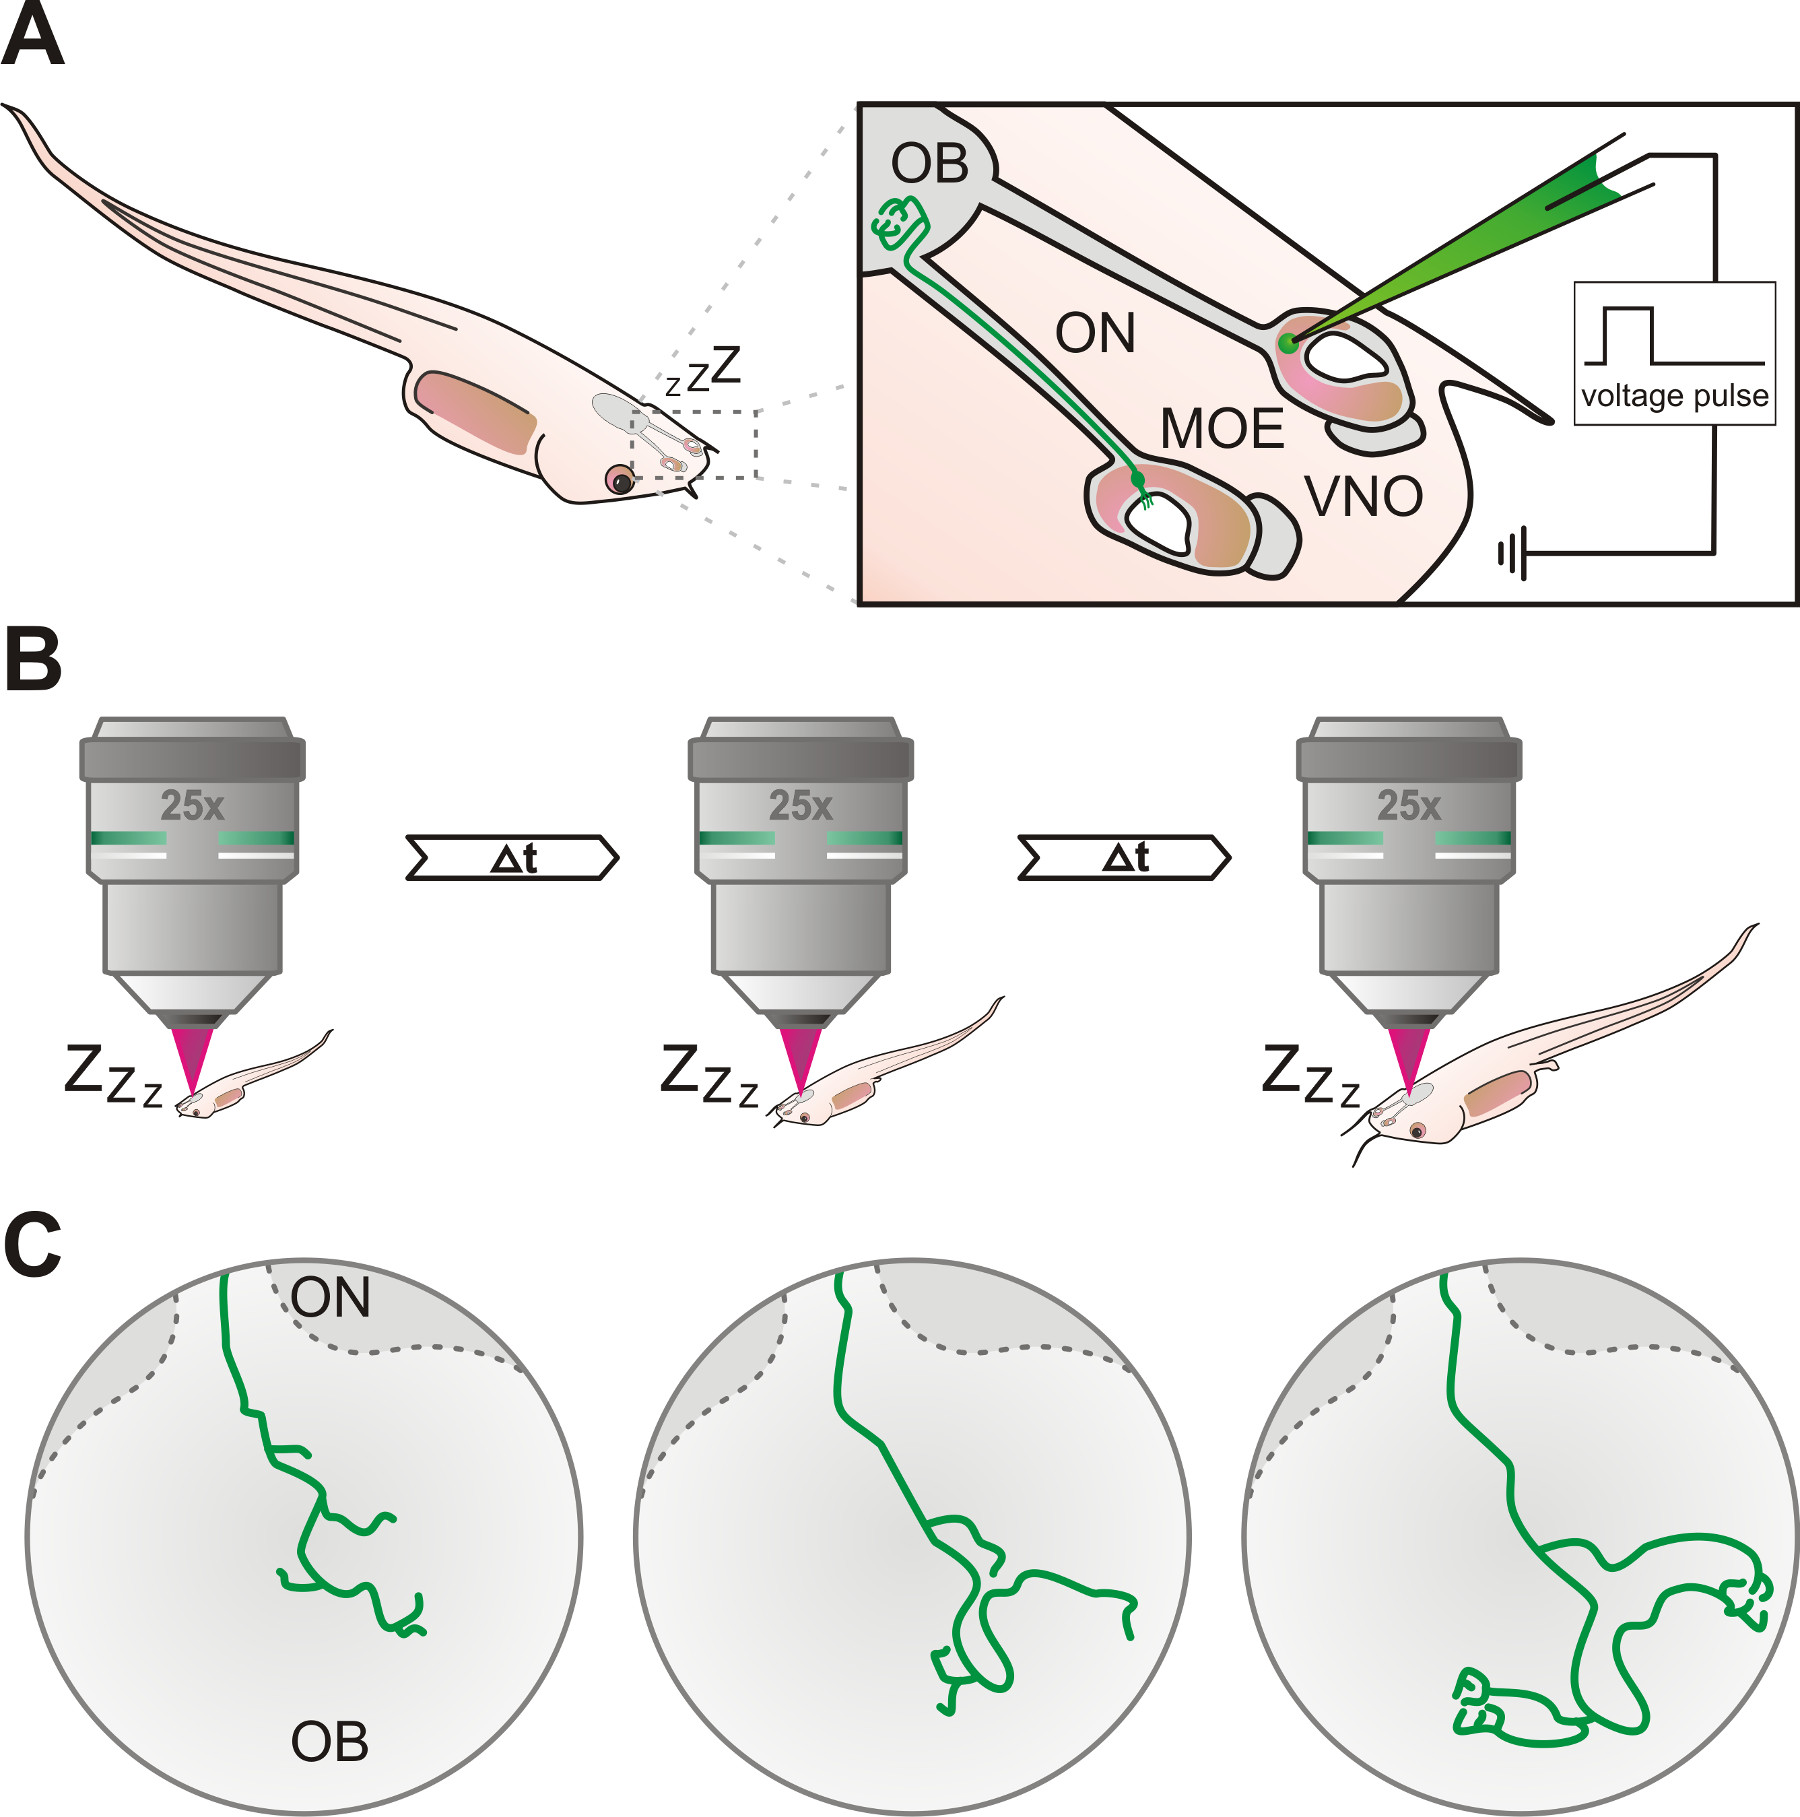
图 1. 实验方案的示意图概览。 (A) 通过电穿孔法,使用充满荧光葡聚糖溶液的玻璃移液管,对麻醉状态下 X. laevis 幼体嗅觉器官中的主嗅上皮(MOE)或副嗅球器(VNO)内的感觉神经元进行标记。标记神经元的轴突可通过嗅神经(ON)追踪,并最终到达嗅球(OB)。 (B) 将蝌蚪麻醉后,使用共聚焦或双光子显微镜,在特定时间间隔内对已标记的神经元进行重复观察。 (C) 可在数天至数周的时间范围内,持续追踪标记细胞轴突生长模式的逐步发育过程。

图2. 嗅觉器官中感觉神经元的电穿孔标记。 (A) 使用低电阻移液管进行电穿孔可导致嗅觉器官内多个细胞被标记。在此代表性示例中,多个嗅觉受体神经元(ORNs,实心箭头)和两个柱状的支持细胞(SCs,星号)被染色。虚线标示出嗅觉上皮(OE)的边界。 (B) 优化电穿孔参数,例如提高移液管电阻,可限制被标记细胞的数量。在此示例中,电穿孔后仅有一个感觉神经元(实心箭头)和一个相邻的支持细胞(星号)被染色。注意有一根轴突从嗅觉上皮发出(空心箭头)。 (C) 成功的单细胞电穿孔可实现嗅觉上皮中单个感觉神经元(实心箭头)及其相连轴突(空心箭头)的特异性标记。 (D) 单根被标记的轴突(空心箭头)可沿嗅神经(ON)追踪至嗅球。
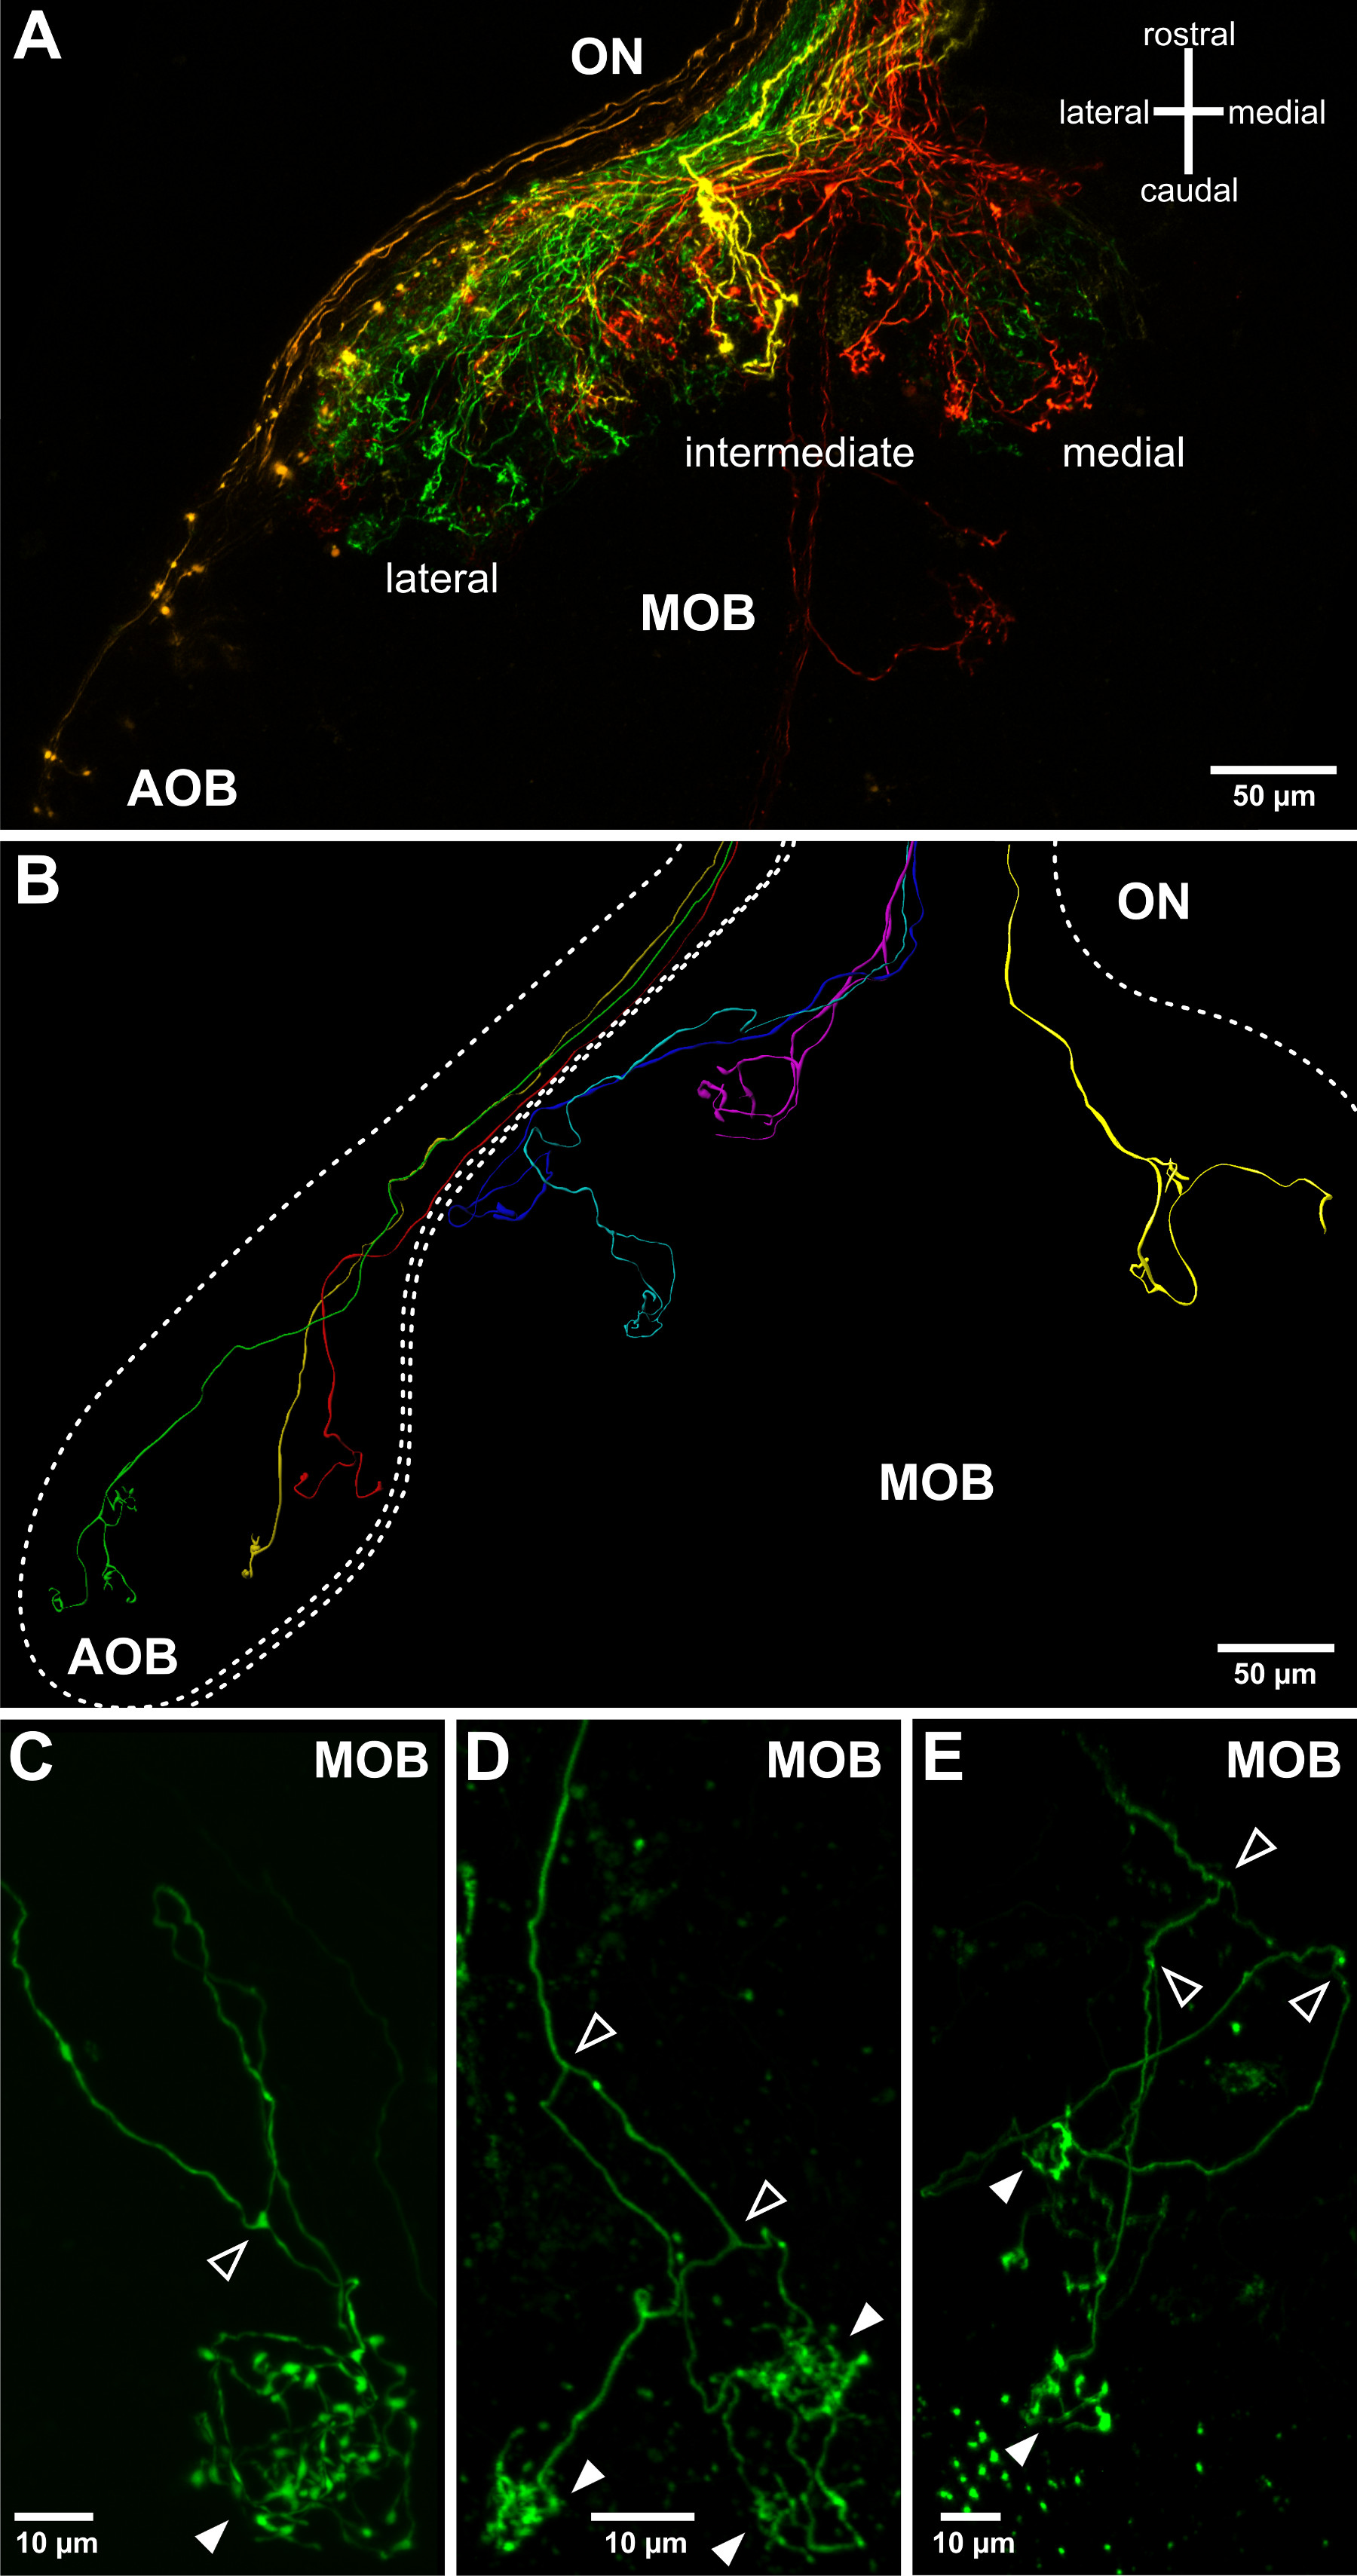
图3. 在离体嗅球中可视化嗅觉轴突投射。 (A) 使用电阻较低的电穿孔移液管,可观察到嗅觉感觉神经元在嗅球中的轴突投射的大致拓扑结构。图中显示了一个嗅球半球及其相关的嗅神经(ON)。在嗅觉器官的四个不同位置通过电穿孔导入了四种与不同荧光染料偶联的葡聚糖:外侧(绿色)、中间区(黄色)、内侧主嗅上皮MOE(红色)和犁鼻器VNO(橙色)。该方法可同时显示副嗅球(AOB)以及主嗅球(MOB)的三个主要投射区域。(B) 多个单个嗅觉感觉神经元的轴突生长模式叠加于嗅球结构上的结果。图中所示为来自不同幼体样本的多个单细胞染色所获得的三维重建图像的整合结果。(C-E) 单根嗅觉轴突投射进入嗅球,并在球形小球(glomeruli)内形成簇状分支/突触的实例(实心箭头)。请注意,在X. laevis中,嗅觉轴突通常会在连接一个、两个或多个小球之前规律性地分叉(空心箭头,另见Hassenklöver和Manzini12)。
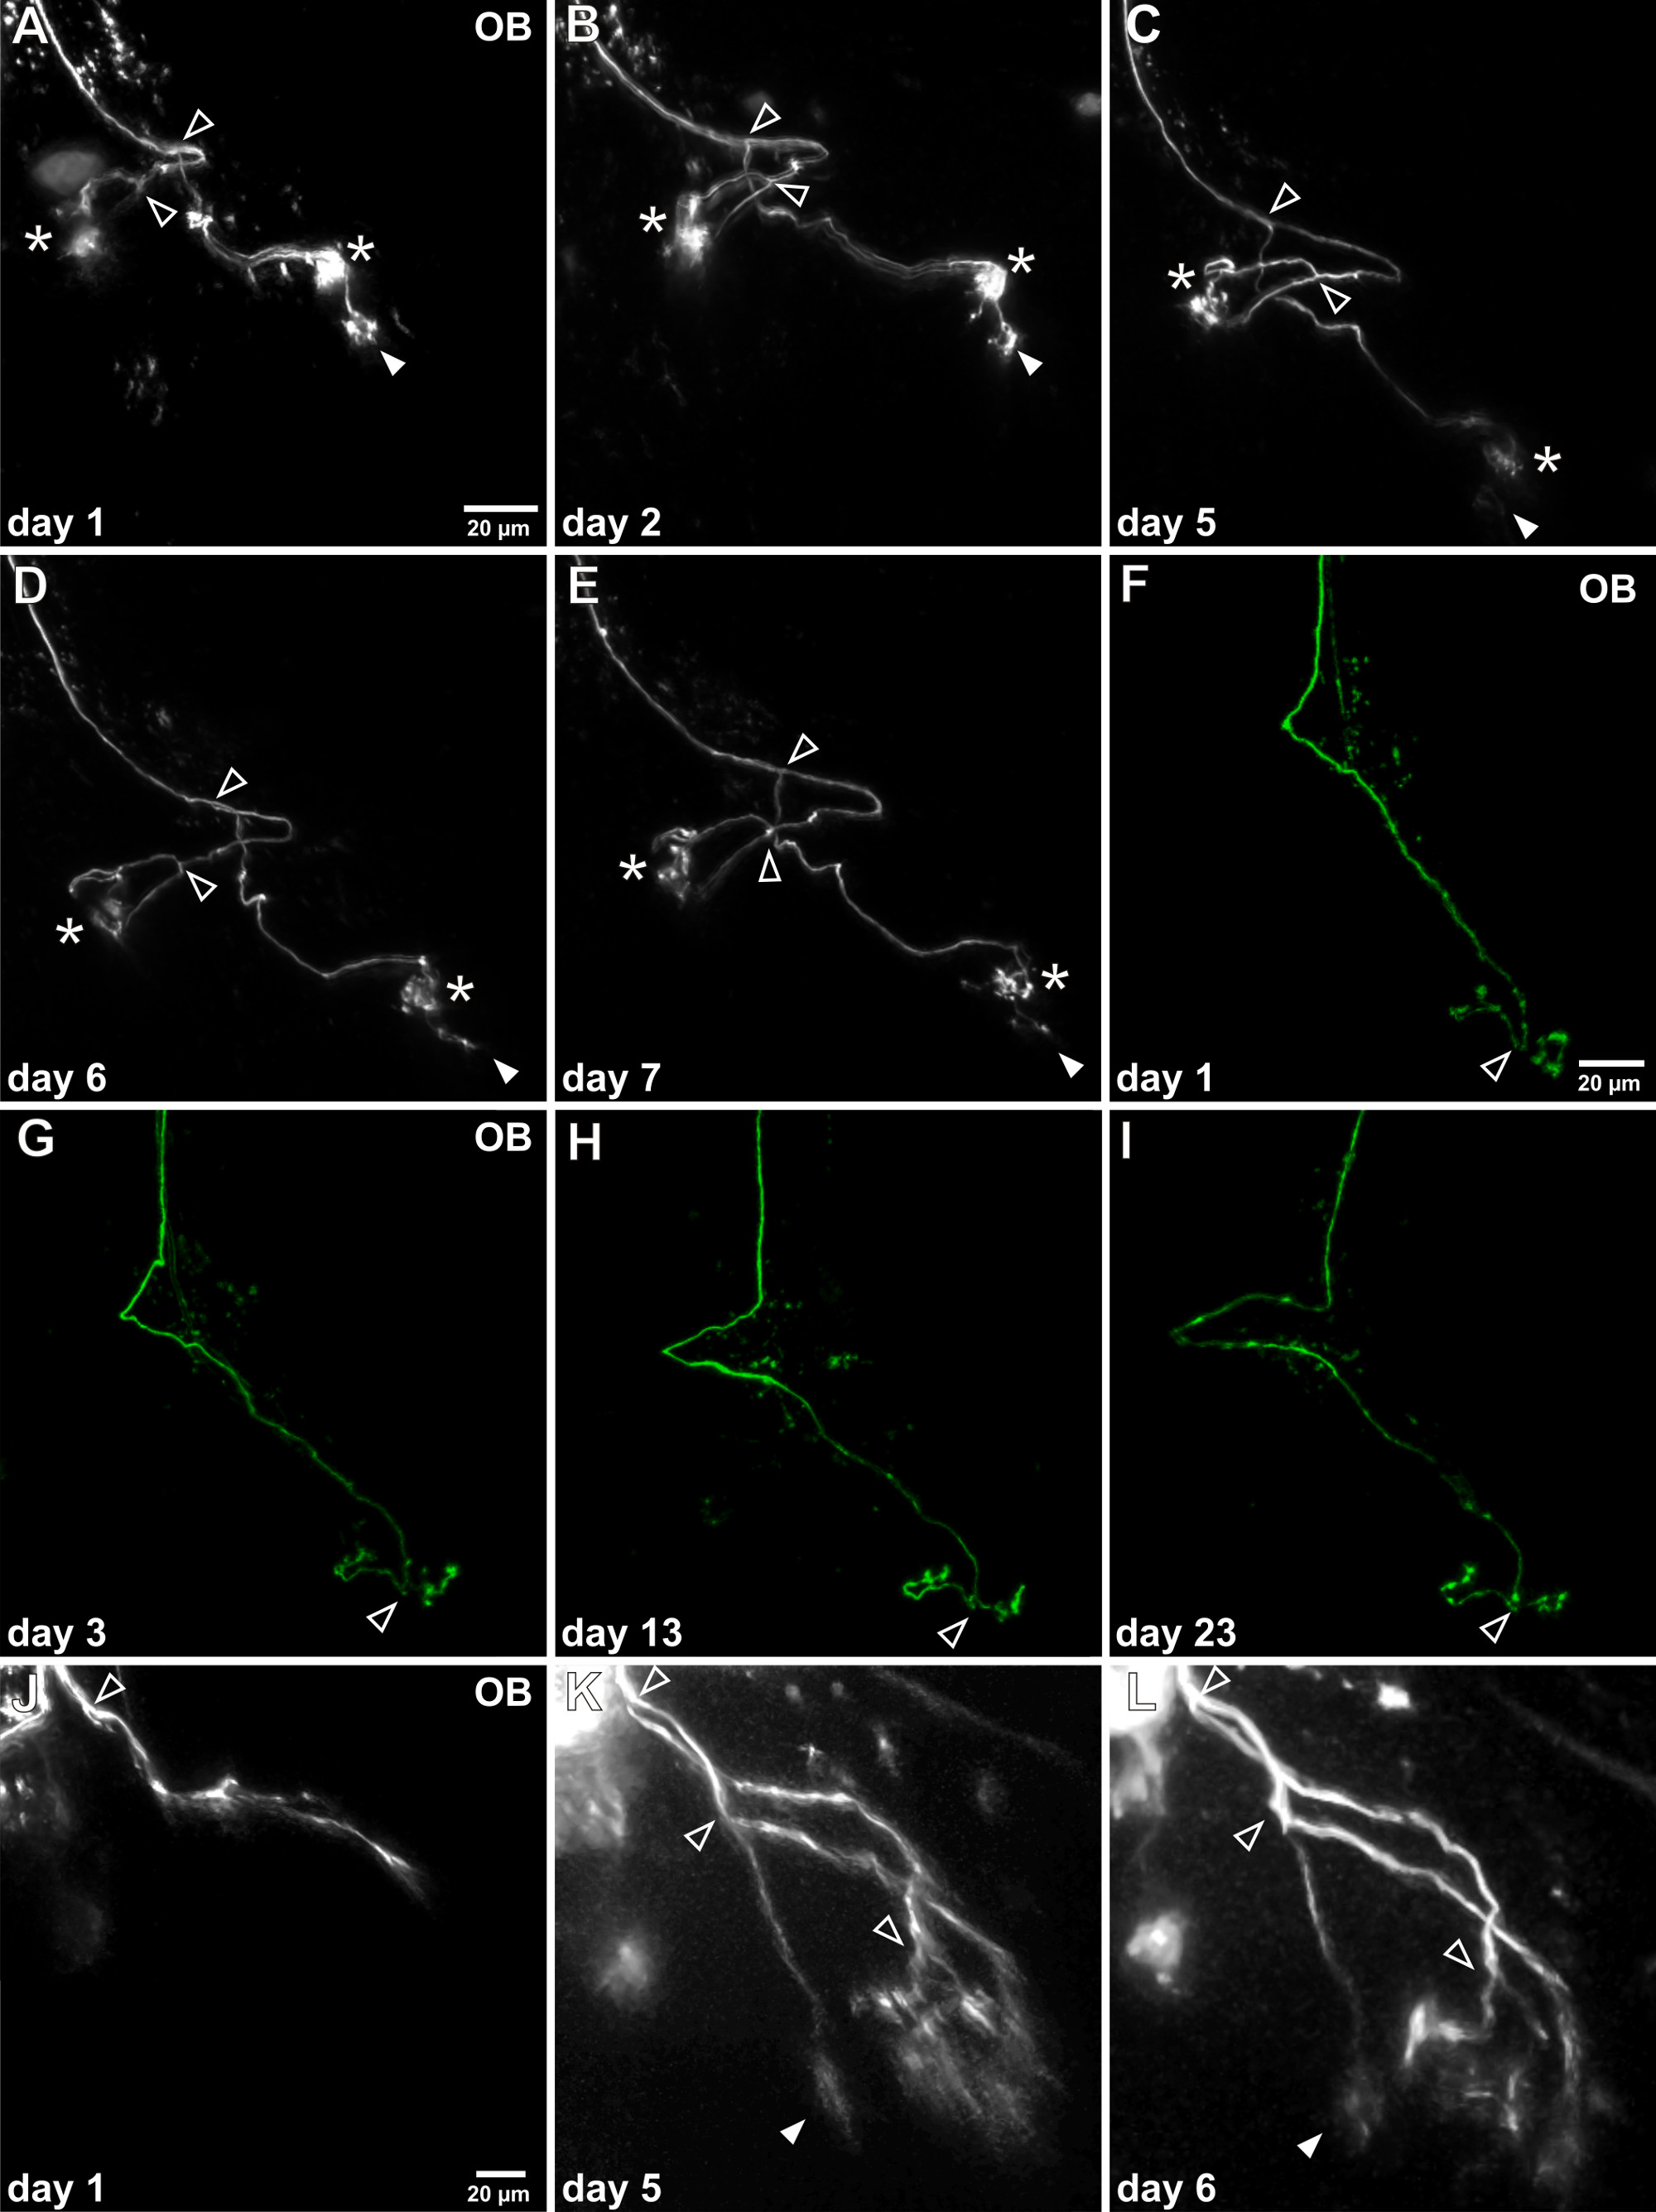
图4. 在体 单个嗅觉神经元轴突的延时成像 (A-E) 单细胞电穿孔成功后,可在嗅球(OB)中反复观察标记的轴突。本示例展示了一根持续观察一周的单个轴突。其整体形态未发生显著改变,可识别出两个主要分支点(空心箭头)。需要注意的是,在观察期间,其中一个肾小球簇持续减少(实心箭头),而另外两个肾小球簇保持稳定(星号)。 (F-I) 此代表性示例表明,对特定轴突持续观察超过三周仍具有可行性。其生长模式未见明显改变。 (J-L) 图示为正在生长过程中的未成熟感觉轴突。该轴突尚未与小球层建立连接,特征性的小球簇结构缺失。5天后,轴突分支延长,轴突经历多次分支,精细的分支结构已形成。
讨论
此处描述的实验方案可用于标记幼虫嗅觉器官中的感觉神经元 X. laevis 通过荧光团偶联葡聚糖的电穿孔导入,并在活体动物中对感觉轴突生长进行后续可视化观察。通过改变电穿孔参数 体内 通过电穿孔,可以控制被标记的感觉神经元数量,从而能够标记感觉上皮中大量神经元、极少数神经元,甚至单个细胞。
为确保获得理想的神经元标记范围,需特别注意微电极的特性和电穿孔脉冲参数。较高的微电极电阻,以及降低电压脉冲的幅度、持续时间和重复次数,可减少被标记细胞的数量;而降低微电极电阻,以及增加电压脉冲的幅度、持续时间和脉冲次数,则可能导致更广泛的标记。使用荧光葡聚糖进行电穿孔时,可立即获得视觉反馈,以判断所用参数是否合适。需注意,若使用的脉冲幅度、持续时间和次数超过本方案中提供的数值,可能会导致细胞损伤甚至细胞死亡17。微电极尖端堵塞或破损也会影响电穿孔的成功。
体内电穿孔技术应用于X. laevis的嗅觉器官时,仅限于幼体阶段,因为变态后成蛙的皮肤较坚韧,难以用微移液管轻易穿透。神经元过程的体内可视化可能受到深层脑区激发光/发射光散射或血管干扰的影响。这一问题在较晚期的幼体阶段尤为明显,由于脑体积增大,可能导致信号噪声增加,从而更难清晰识别细微的轴突结构。
本方案可在不进行动物解剖、避免标记过程中损伤细胞、无需制备组织切片或固定组织的情况下,实现对完整嗅觉系统中感觉神经元的可视化观察,而这些步骤是其他方法(如全细胞膜片钳实验中的标记)所必需的18将少数或单个感觉神经元的标记相结合时 体内 延时成像技术使得在长时间间隔内观察单个成熟感觉神经元的肾小球连接成为可能。同时,该技术也可用于监测未成熟感觉神经元轴突投射模式在数周内的发育过程。后一种应用尤其具有重要意义,因为它能够在活体动物中实时观察单根轴突的生长模式,从而为研究调控轴突导向与路径寻找的细胞和分子机制提供了可能。已有研究表明,多种因素可调控感觉神经元的靶向定位,包括气味受体的表达、多种轴突导向分子以及感觉神经元的气味诱导性或自发性活动。 轴突4,5.
该方案的应用不仅限于嗅觉感觉神经元,还可用于研究其他细胞类型,例如,发育中脑的神经发生区的干细胞/前体细胞或嗅球中的僧帽细胞。此外,本研究所展示的技术还可与钙离子敏感性葡聚糖或可渗透细胞膜的钙离子染料注射相结合,以获取标记神经元和/或其连接环路的功能信息7,19。多种与葡聚糖偶联的荧光染料可供选择,可实现对多个单个细胞或细胞群体进行不同颜色的标记。此外,质粒DNA溶液(例如编码荧光蛋白的质粒)也适用于电穿孔,可进一步提高该技术的灵活性和实用性6。该方案还可进一步优化,以实现葡聚糖与DNA或带电荷的吗啉代寡核苷酸(morpholinos)的联合电穿孔,从而调控基因表达13,17。
所述方法无疑为研究脊椎动物嗅觉系统中轴突导向的复杂过程(这些过程至今尚未被完全阐明)提供了一种新工具。
披露
作者无任何利益冲突需要披露。
致谢
本工作由德国研究基金会重点计划1392(项目MA 4113/2-2)、卓越集群及德国研究基金会神经元纳米显微成像与分子生理学研究中心(项目B1-9)以及德国联邦教育与研究部(BMBF;项目1364480)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| SZX16 | Olympus | 带荧光照明的体视显微镜 | |
| Axon Axoporator 800A | Molecular Devices | 单细胞电穿孔仪 | |
| ELP-01D | npi electronic | 电穿孔仪 | |
| MMJ | Märzhäuser Wetzlar | 手动显微操作器 | |
| P-1000 | Sutter | 水平微电极拉制仪 | |
| G150F-4 | Warner Instruments | 用于电穿孔电极制备的玻璃毛细管;内置纤维便于反向填充 | |
| Alexa 488-葡聚糖 10 kD | Life Technologies | D22910 | |
| Alexa 546-葡聚糖 10 kD | Life Technologies | D22911 | |
| Alexa 568-葡聚糖 10 kD | Life Technologies | D22912 | |
| Alexa 594-葡聚糖 10 kD | Life Technologies | D22913 | |
| TMR-葡聚糖 3 kD(micro-Ruby) | Life Technologies | D7162 | |
| Microloader 微量移液器吸头 | Eppendorf | 930001007 | |
| 三卡因(氨基苯甲酸乙酯甲磺酸盐,Tricaine) | Sigma-Aldrich | E10521 | 麻醉剂;使用时需佩戴手套 |
| A1-MP | Nikon | 多光子显微镜 | |
| LSM 780 | Zeiss | 共聚焦显微镜 | |
| Imaris | Bitplane | 神经元示踪的替代软件 |
参考文献
- Huard, J. M., Youngentob, S. L., Goldstein, B. J., Luskin, M. B., Schwob, J. E. Adult olfactory epithelium contains multipotent progenitors that give rise to neurons and non-neural cells. J. Comp. Neurol. 400 (4), 486-4810 (1998).
- Schwob, J. E. Neural regeneration and the peripheral olfactory system. Anat. Rec. 269 (1), 33-49 (2002).
- Leung, C. T., Coulombe, P. A., Reed, R. R. Contribution of olfactory neural stem cells to tissue maintenance and regeneration. Nat. Neurosci. 10 (6), 72-726 (2007).
- Lodovichi, C., Belluscio, L. Odorant receptors in the formation of the olfactory bulb circuitry. Physiology (Bethesda. 27 (4), 212-2110 (2012).
- Mori, K., Sakano, H. How is the olfactory map formed and interpreted in the mammalian brain). Annu. Rev. Neurosci. 34, 467-499 (2011).
- De Vry, J., et al. In vivo electroporation of the central nervous system: a non-viral approach for targeted gene delivery. Prog. Neurobiol. 92 (3), 227-244 (2010).
- Hovis, K. R., Padmanabhan, K., Urban, N. N. A simple method of in vitro electroporation allows visualization, recording, and calcium imaging of local neuronal circuits. J. Neurosci. Methods. 191 (1), 1-10 (2010).
- Chen, C., Smye, S. W., Robinson, M. P., Evans, J. A. Membrane electroporation theories: a review. Med. Biol. Eng. Comput. 44 (1-2), 5-14 (2006).
- Haas, K., Jensen, K., Sin, W. C., Foa, L., Cline, H. T. Targeted electroporation in Xenopus tadpoles in vivo--from single cells to the entire brain. Differentiation. 70 (4-5), 148-154 (2002).
- Hewapathirane, D. S., Haas, K. Single cell electroporation in vivo within the intact developing brain. J. Vis. Exp. (17), (2008).
- Gliem, S., et al. Bimodal processing of olfactory information in an amphibian nose: odor responses segregate into a medial and a lateral stream. Cell. Mol. Life Sci. 70 (11), 1965-1984 (2013).
- Hassenklöver, T., Manzini, I. Olfactory wiring logic in amphibians challenges the basic assumptions of the unbranched axon concept. J. Neurosci. 33 (44), 17252-1710 (2013).
- Bestman, J. E., Ewald, R. C., Chiu, S. -L., Cline, H. T. In vivo single-cell electroporation for transfer of DNA and macromolecules. Nat. Protoc. 1 (3), 1272-1210 (2006).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis. Nieuwkoop, P. D., Faber, J. , Garland Publishing, Inc. New York and London. (1994).
- Coupé, P., Munz, M., Manjón, J. V., Ruthazer, E. S., Collins, D. L. A CANDLE for a deeper in vivo insight. Med. Image Anal. 16 (4), 849-864 (2012).
- Peng, H., Ruan, Z., Long, F., Simpson, J. H., Myers, E. W. V3D enables real-time 3D visualization and quantitative analysis of large-scale biological image data sets. Nat. Biotechnol. 28 (4), 348-353 (2010).
- Falk, J., et al. Electroporation of cDNA/Morpholinos to targeted areas of embryonic CNS in Xenopus. BMC Dev. Biol. 7 (107), (2007).
- Nezlin, L. P., Schild, D. Individual olfactory sensory neurons project into more than one glomerulus in Xenopus laevis tadpole olfactory bulb. J. Comp. Neurol. 481 (3), 233-239 (2005).
- Nagayama, S., et al. In vivo simultaneous tracing and Ca2+ imaging of local neuronal circuits. Neuron. 53 (6), 789-803 (2007).
重印与许可
