在此,我们介绍一种利用亚麻进行转化的实验方案 农杆菌介导的花浸法植物转化。该方案操作简便且成本低廉,但转化效率高于目前可用的亚麻转化方法。
本文内容
摘要
摘要
通过花浸法(floral-dip)介导的Agrobacterium植物转化是一种在植物转化领域广泛应用的技术,已有报道称该方法在多种植物物种中成功实现转化。然而,亚麻(Linum usitatissimum)的花浸法转化尚未见报道。本实验方案的目标是证实Agrobacterium及花浸法可用于产生转基因亚麻。我们证明该技术简单、成本低、高效,更重要的是,其转化率高于目前可用的其他亚麻转化方法。
综上所述,将亚麻的花序浸入含有携带双元载体质粒(T-DNA片段及亚麻插入序列LIS-1)的农杆菌(Agrobacterium)溶液中1至2分钟。处理后将植株侧放平置24小时,随后在正常生长条件下培养,直至下一次处理。该浸蘸过程重复2至3次,每次间隔约10至14天。收集T1代种子并播种于土壤中。约两周后,采用直接PCR方法对处理后的后代进行检测,每株取2至3片叶片,并使用相应的T-DNA引物。筛选出阳性转化植株并继续培养至成熟。转化率出乎意料地高,处理植株所结种子中阳性转化体比例达到50%至60%。该转化率高于利用花序浸蘸法转化拟南芥(Arabidopsis thaliana)及其他植物物种所报道的转化率,也是迄今为止亚麻转化研究中采用其他转化方法所报道的最高转化率。
引言
亚麻(Linum usitatissimum)是一种重要的经济作物,广泛种植以获取其纤维和油脂。通过诸如创伤处理、农杆菌(Agrobacterium)感染、组织培养中共培养、基因枪轰击或超声波处理后再进行植株再生等技术,可实现对亚麻基因组的转化。然而,这些技术存在诸多缺点,包括容易引发大量突变事件,获得转基因品系所需时间较长。其中一些方法成本较高,且需要对仪器进行熟练而高效的操控,导致再生幼苗的成活率较低。最重要的是,这些技术通常转化效率低下2,6。
通过花浸法(floral-dip)利用农杆菌(Agrobacterium)介导的植物转化是一种简便且高效的转基因植株构建方法。该方法已常规且成功地应用于多种植物物种,如拟南芥(Arabidopsis thaliana1,4)、截形苜蓿(Medicago truncatula11)、番茄12、小麦13和玉米10。然而,由于亚麻开花数量较少、每朵花所结种子数量有限、种子体积较大以及种皮较厚等因素,花浸法一直未被视为适用于亚麻转化的可行技术,这些因素可能对遗传转化过程造成困难。此外,花浸法的筛选环节要求将转化后的种子在含有抗生素的植物培养基上萌发,通过观察其能否萌发并保持绿色来区分转化后代,而非转化后代则表现为不萌发,或虽能萌发但迅速白化并死亡。现有文献指出,野生型亚麻在高浓度抗生素筛选条件下容易逃逸,产生假阳性结果,从而增加了基于抗生素抗性筛选T1代后代的难度6,14。此外,当在筛选培养基中添加高浓度抗生素时,观察到的转化率显著下降9。
在本实验方案中,我们利用农杆菌(Agrobacterium)及花序浸染法(floral-dip method)对一种纤维亚麻品系 Stormont cirrus(具有响应性与可塑性)进行遗传转化,该品系已被证明可通过基因组改变响应环境胁迫3,5。为克服抗生素逃逸问题,我们选择直接对T1代植株叶片提取的DNA进行PCR检测,而非通过在植物培养基中添加抗生素进行筛选。我们利用亚麻简单的花部结构,在处理时对特定花朵进行标记追踪。该追踪系统使我们能够选择来自特定花朵的种子,并直接在土壤中萌发,无需添加抗生素。阳性转化植株通过从叶片提取DNA并采用快速高效的直接PCR方法进行检测而被简便鉴定。实验结果表明,花序浸染法在该亚麻品系中效果极佳,且出人意料地获得了极高的转化率(50–60%),远高于此前报道的拟南芥(Arabidopsis thaliana)转化率(0.1–1%)1,也高于其他植物物种的转化率10,12。我们还测试了另一种亚麻品种——亚麻籽(油用亚麻)Bethune(稳定且无响应性),初步实验数据显示花序浸染法在该亚麻品种中同样有效。
本实验方案的目的是证明农杆菌(Agrobacterium)介导的花序浸渍法(floral-dip)可用于创制转基因亚麻。我们表明,该技术操作简便、成本低廉,且比其他亚麻转化方法更为快速。更重要的是,其转化效率显著高于其他亚麻转化方法2,6。拟南芥(Arabidopsis thaliana)具有大量分枝和花朵,导致同一植株上难以区分经浸渍处理与未处理的花朵,因此需要筛选大量种子(每株约20,000粒)以鉴定阳性转化子8。相比之下,亚麻分枝较少(仅一条主茎和少量侧枝),花朵数量也较少,每株产生约100粒种子,这使得可以追踪单个花朵,并在筛选过程中选择特定种子。
我们提出,花序浸渍法(floral-dip)是一种适用于亚麻属(约200个物种)中任何相关物种的转化方法。该方法的转化效率远高于其他亚麻转化方法。我们还提出,对T1代叶片DNA进行直接PCR筛选是克服抗生素抗性逃逸问题的有效策略,该问题常导致大量假阳性结果。直接PCR筛选可应用于其他任何植物物种,并不仅限于亚麻。本实验方案中采用的简单种子追踪技术也可应用于具有类似亚麻分枝结构的其他任何植物物种。
方案
1. 植物培养
- 在浸蘸处理前6周,用土壤填满5英寸的花盆,并将亚麻种子播种于土下¼英寸深处(每盆4粒种子)。播种后务必压实种子上方的土壤。定期浇水,并将植株置于长日照条件下培养(14小时光照,10小时黑暗)。
- 定期检查植株的初生花序(花器官的簇状结构)。当花序中刚刚形成可见的花蕾时,植株即达到转化适宜期(图1和图2)。若需观察花蕾,可剪除周围的叶片以便查看。
注意:选用最适宜的花期阶段至关重要,详见讨论部分。- 实验处理应使用植株的主枝,因其产生的花多于侧枝。侧枝可用作对照(不进行浸蘸处理)或用于其他实验处理。
- 也可将同一植株的主枝和侧枝均用于实验处理,另选一株植株作为对照或其他实验处理。使用标签标记各个枝条及单朵花,并注明处理日期和处理类型。
2. 在大肠杆菌(Escherichia coli,E. coli)细胞中进行克隆与转化
- 将目标片段/基因克隆至含有T-DNA的植物双元载体的多克隆位点中。
- 采用一步法或两步法进行克隆。
- 在本实验方案中,直接将较小的插入片段(约500 bp)克隆至植物双元载体中。本方案使用植物双元载体PRI909;也可根据类似策略使用其他植物双元载体。
- 对于较大的插入片段(≥6.5 kb),可采用两步法克隆:首先使用通用的商业化克隆试剂盒(非植物特异性)进行克隆,再亚克隆至植物双元载体中。
- 采用一步法或两步法进行克隆。
- 设置PCR反应以扩增目标基因。设计引物时,在其5’端添加限制性酶切位点(根据所用植物双元载体的多克隆位点选择)。
- 以亚麻基因组DNA为模板进行标准PCR扩增,反应循环条件如下:初始保持24 °C,随后94 °C变性2 min,接着进行30个循环(98 °C变性5 sec,60 °C退火15 sec,72 °C延伸2 min),最后在72 °C延伸5 min,然后在4 °C长期保持。
- 将PCR产物在1% Tris/Borate/EDTA(TBE)琼脂糖凝胶上电泳分离,100 V电压下运行1小时。从凝胶中纯化目标条带,并通过Nanodrop定量。
- 配制连接反应体系,将PCR产物连接至商业化克隆载体中。具体操作请遵循试剂盒说明书。
- 将连接产物转化至化学感受态E. coli细胞,操作步骤如下。
- 取2 µl连接产物加入一管化学感受态E. coli细胞中,冰上孵育30 min。
- 42 °C热激30 sec(热激时间和温度取决于所用细胞类型)。
- 再次冰上孵育,加入250 µl室温的含分解代谢抑制的超级优化肉汤(S.O.C)培养基。
- 盖紧管盖,在37 °C、200 rpm条件下于摇床中孵育1小时。
- 取每种转化产物10–50 µl涂布于预热的LB平板(37 °C预热)+ 合适的选择性抗生素(根据所用商业化克隆载体类型确定抗生素种类),37 °C过夜培养。
- 挑选约10个单菌落进行质粒小量提取(mini prep)纯化,使用商业化试剂盒完成。质粒小量提取的一般操作流程如下。
注意:缓冲液名称依据所用商业化试剂盒而定,但其基本功能相似。- 将单菌落接种至含适当选择性抗生素(根据所用商业化载体类型确定)的2–5 ml LB培养基中。
- 在37 °C、剧烈振荡(约300 rpm)条件下孵育约8小时。
- 通过离心(6,000 x g,10 min)收集菌体。
- 用250 μl重悬缓冲液重悬菌体沉淀,充分混匀并涡旋振荡,确保沉淀完全分散。
- 加入250 µl裂解缓冲液裂解细菌细胞,通过上下颠倒离心管4–6次彻底混匀。
- 加入中和缓冲液进行中和,再次上下颠倒4–6次混匀。在台式微量离心机中以约17,900 x g离心10 min。
- 将上清液转移至离心柱中,再次以约17,900 x g离心30–60 sec。
- 加入0.75 ml洗涤缓冲液洗涤离心柱,离心30–60 sec,弃去流出液。
- 额外离心1 min以去除残留洗涤液。将离心柱转移至新的1.5 ml微量离心管中。为洗脱DNA,向每根柱子中心加入50 μl水,静置1 min后,离心1 min。
3. 分析纯化质粒中是否存在插入片段
- 限制性酶切
- 设置限制性酶切反应,通过使用克隆插入片段时所用的限制性内切酶消化质粒,以确定插入片段的存在。典型的双酶切反应如下:1 µ纯化质粒的克隆,1 µ每种限制性内切酶 l,2 µl 10x 限制性内切酶缓冲液 + 2 µl BSA(如适用),X µl 水(加至总体积 20) µl)
- 轻柔混匀,并在推荐温度下孵育(不同酶的推荐温度有所不同)。
- 在1% TBE琼脂糖凝胶上分析限制性酶切反应,100 V电压下电泳1小时,观察是否出现相应大小的条带缺失。
- PCR分析:
- 使用纯化的质粒进行PCR,选择商业载体区域的引物以扩增插入片段内部或载体与插入片段之间的连接区域。常用的引物包括M13正向和反向引物以及T3/T7引物。
- 在本实验方案中,使用以下PCR扩增条件:初始孵育为24 °C,然后在 94 ℃ 下持续 2 分钟 °C,随后进行18个循环的98 °C,5 秒,60 °C,15 秒,72 °C 下持续 2 分钟。在 72℃ 进行最终延伸步骤 °4℃下无限期保存,此前在5分钟内降至4℃ °C.
- 将PCR产物上样至1% TBE琼脂糖凝胶,以100 - 120 V电压电泳运行1小时。
- 测序:
- 将纯化的质粒送至商业测序机构,以分析并确认插入片段的存在。
- 获得正确构建体后,将其用于克隆的第二步(插入植物双元载体中)。
注意: 步骤 2.3 - 3.3 如果克隆在一步内完成,则可以省略。
4. 克隆至植物双元载体(PRI909)及 E. coli 转化
- 设置双酶切反应,以线性化植物双元载体,并利用与引物中添加的相同的限制性酶切位点(步骤 2.2)分离先前克隆的插入片段。
- 通过琼脂糖凝胶电泳分析酶切产物,在 100 V 条件下电泳 1 - 2 小时。从凝胶中切下插入片段和线性化的植物双元载体。
- 使用商业化试剂盒纯化凝胶回收产物。请参考试剂盒说明书。
- 设置连接反应,将插入片段连接至植物双元载体中。插入片段与载体的比例取决于插入片段和植物双元载体的大小。在本实验方案中,LIS1 插入片段为 6.5 kb,植物双元载体为 9 kb,因此采用 1:2 的插入片段与载体比例。
- 重复进行步骤 2.4 - 3,完成细菌转化、质粒提取及分析。一旦获得正确的构建体(插入片段 + 植物双元载体),则进入步骤 5的电转化操作。
5. 将电感受态细胞电穿孔转入根癌农杆菌(Agrobacterium tumefaciens)
- 解冻一管 Agrobacterium tumefaciens 冰上的电转感受态细胞
- 加入1 ng二元载体质粒DNA至20 µ将感受态细胞置于冰上,轻轻混匀。
- 将0.1 cm电穿孔比色皿置于冰上冷却。
- 将感受态细胞/DNA 混合物转移至电穿孔比色皿中,轻弹管壁使混合液沉至管底。将比色皿放入电穿孔仪中,进行电击(电压和时间参数取决于比色皿规格和所用电穿孔仪的型号)。
- 加入1 ml SOC培养基,将细胞转移至15 ml离心管中。
- 在 28 - 30 ℃ 下孵育 1 小时 °C,以100 rpm振荡。接种50–100 μ在含有适当选择性抗生素的LB琼脂平板上培养细胞(抗生素的选择取决于植物双元质粒和菌株) 农杆菌 使用。在此方案中,使用 50 μg/ml 卡那霉素和 100 μg/ml 链霉素
- 将平板在28 - 30℃下孵育最多48小时 °C.
- 重复 步骤 2.5 用于菌落筛选和质粒纯化。
- 重复 步骤 3 分析质粒,检测插入片段和T-DNA的完整性,然后再用于花序浸润实验。重复 步骤 3.2,使用跨越整个插入区域及T-DNA区域的多个PCR引物进行测序,方法同上 步骤 3.3.
注意:本实验方案中,在T-DNA区域设计了4种不同的引物,在插入片段区域设计了10种引物。 - 一旦确认所选植物质粒中存在双元载体 农杆菌 菌落确认后,将细胞置于50%甘油中,并于-80℃保存 °C. 将剩余的菌落置于平板上,4℃保存 °C,如果它们将在一周内使用7.
6. 花浸法
注意:在花序浸润前 2 天:
- 培养 农杆菌 细胞进入稳定期(OD600 在LB液体培养基中加入适当的抗生素,OD值在0.5–1之间为可接受范围。
注意:这些抗生素与之前使用的相同 步骤 5.6,基于植物双元载体及其类型 农杆菌 所用菌株。 - 从饱和(5 ml)过夜培养物按1:100稀释开始培养,在28–30℃条件下培养24–48小时 °C,同时以150 rpm振荡培养。此时培养物应已进入对数中期,更可能接近或已达到稳定期。1OD 约为 0.8(同样,OD 在 0.5 至 1 之间均可接受)8以5,000 × g在室温下离心收集细胞。
- 将细胞重悬于浸润培养基中(5.0% 蔗糖 + 0.05 - 0.003% Silwet L-77)。第一轮浸润使用 0.05% Silwet-77;第二轮和第三轮浸润时,将其浓度降低至 0.03%(详见于 讨论).
- 进行花序浸染步骤。将植株侧放,仅将可见的花蕾浸入浸润培养基中1-2分钟。保持植株侧放状态,并用塑料膜覆盖,以维持培养罩内高湿度环境(图3).
- 第二天,将植物置于直立位置,并进行常规养护。
- 当芽体长大(通常约10至14天后),重复 步骤 6.1 - 6.4将浸渍时间缩短至30–60秒,Silwet-77浓度降低至0.003%。
- 正常培养植株,直至种子成熟并可采集(图4).
7. 通过直接PCR筛选阳性转化子
- 按照步骤 1.1将T1种子播种于土壤中。
- 或者,通过在500 ml水中加入2.2 g MS基础盐培养基(Murashige和Skoog培养基)和4 g琼脂制备MS培养基。经高压灭菌后倒入小型植物培养盆中,4 °C保存备用。
- 将种子播于凝固的MS培养基表面,置于长日照条件下培养(14小时光照,10小时黑暗)。种子约在4–6天内萌发(图5)。
- 以每朵花的一粒种子作为起始材料。若未获得阳性转化植株,可从同一朵花中另选一粒种子重复此步骤。
注意:应测试同一朵花的不同种子,因为在某些情况下,并非该花的所有种子均能成功转化。有时需从实验花朵中选择额外的种子进行检测。
- 定期观察幼苗。萌发后约10–14天,当真叶开始发育时,采用直接PCR方法对植株进行检测。
- 从每株幼苗上剪取2–3片叶(重量5–10 mg),放入微量离心管中,制备叶片DNA提取液。
- 向每管中加入180 µl 50 mM NaOH,95 °C孵育10分钟。
- 加入20 µl 1 M Tris-HCl(pH 8.0)以中和提取液。
- 取1 µl提取液用于直接PCR反应,使用跨越T-DNA或插入片段的引物进行扩增(图7),以筛选阳性转化植株。
- 本实验方案中,直接PCR程序设置如下:初始保持24 °C,随后98 °C 2分钟,接着进行40个循环(98 °C变性10秒,退火15秒,68 °C延伸);最后在68 °C延伸5分钟,然后在4 °C无限保持。(引物信息、退火温度及各循环延伸时间详见表1)。
- 鉴定阳性转化植株并使其生长至成熟。若种子是在MS培养基上萌发的,应将其移栽至较大花盆的土壤中(图5)。
结果
图1至图4展示了本实验方案中的部分步骤。图1和图2显示了剪除花序芽周围的叶片以使其暴露于农杆菌(Agrobacterium)细胞的过程,以及用于建立该实验方案的不同花芽发育阶段。图3展示了亚麻花浸法(floral-dip)的操作过程。图4示例如何对主枝和侧枝进行标记,并如何追踪和识别单个花朵。图5展示了T1代植株如何在MS植物培养基上萌发,随后移栽至土壤中使其成熟。图6说明了野生型亚麻可在高浓度卡那霉素中存活,验证了文献中先前的研究结果6,9,14。
图7展示了从阳性T1转化子直接进行PCR扩增的示例。T1花朵取自单株T0植株的主茎和侧枝。根据直接PCR结果可见,在检测的12株T1植株中,有8株PCR呈阳性,并扩增出T-DNA上的不同区域。我们还设计了位于LIS-1插入片段与多克隆位点之间的引物(图7B和C)。本实验还使用了植物双元载体上的其他引物,以扩增T-DNA的不同片段,例如左边界和NOS终止子(数据未显示),或右边界与多克隆位点(图7D)。本方案中也使用了针对LIS-1插入片段的特异性引物(数据未显示)。引物列表见表1。然而,这些引物的序列取决于用于花浸法的T-DNA植物双元载体及插入片段的序列。我们还注意到,从主茎和侧枝采集的花朵在转化率方面无显著差异。
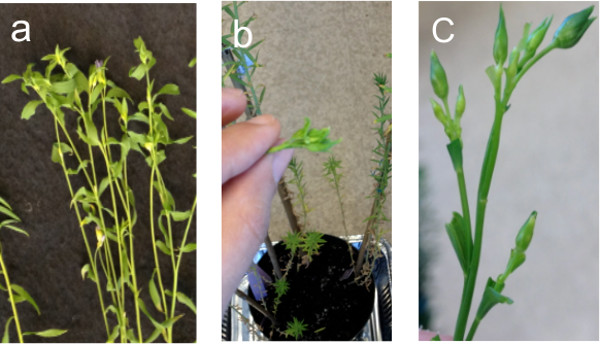
图 1. 剪除主花序花芽周围的叶片以暴露花芽,便于与 Agrobacterium 菌细胞接触。(A) 花芽被叶片覆盖。(B) 已剪除花芽周围的叶片以暴露花芽。(C) 对 (A) 中植株剪叶后暴露花芽的放大图像。请点击此处查看该图的高清版本。
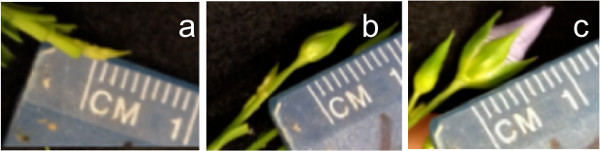
图 2. 本实验方案中用于确定花浸法最佳使用时期的各个花蕾发育阶段。 (A) 早期花蕾约 2 mm。 (B) 中期花蕾约 5 mm。 (C) 晚期花蕾约 1 cm。 请点击此处查看此图的放大版本。
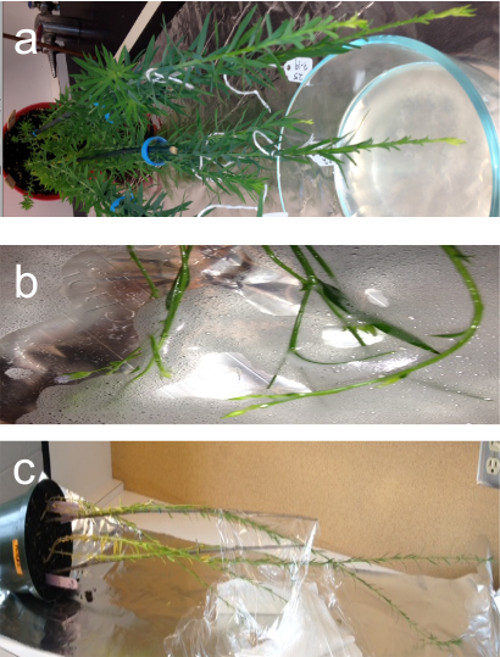
图3. 亚麻花浸法操作流程。(A) 将主花序浸入含有农杆菌(Agrobacterium)细胞的侵染液中。(B) 对(A)的放大图。(C) 浸泡处理后的植株平放至次日,浸过的枝条用塑料膜覆盖以保持高湿度。请点击此处查看该图的高清版本。

图4. 来自T0处理植株的花朵追踪与种子采集过程。 (A) 整株植物示例,显示主枝(中央最高的枝条)和侧枝。 (B - D) 来自不同枝条的花朵示例。 (E) 从主枝上单个花朵(标记为 a - k)采集的种子示例。 请点击此处查看该图的高清版本。
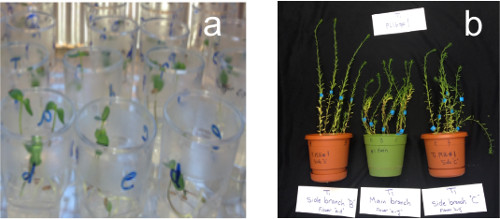
图 5. T1 代幼苗在无抗生素筛选条件下培养。 (A) T1 种子在 MS 植物培养基上萌发。(B) 通过直接 PCR 确定的阳性转化植株被移栽至土壤中并生长至成熟。 请点击此处查看该图的放大版本。
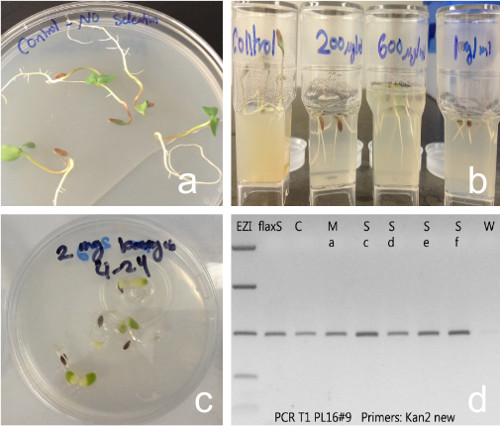
图6. 抗生素逃逸——T1代筛选中的一个问题——可通过直接PCR筛选得以解决。 (A) 野生型亚麻种子在不含抗生素的MS植物培养基上萌发。(B) 野生型亚麻种子在含卡那霉素浓度递增(200 µg/ml、600 µg/ml、1 mg/ml)的MS植物培养基上萌发。(C) 野生型亚麻种子在含2 mg/ml卡那霉素的MS植物培养基上萌发。(D) 使用卡那霉素引物对野生型亚麻和T1代幼苗进行PCR扩增,均扩增出卡那霉素抗性基因(图例:EZ1:DNA marker,FlaxS:野生型亚麻S,C:未浸染对照枝条,Ma:主枝上花朵“a”所结T1代后代,Sc、Sd、Se、Sf:侧枝上不同花朵“c、d、e、f”所结T1代后代,W:无DNA模板对照)。请点击此处查看该图的放大版本。
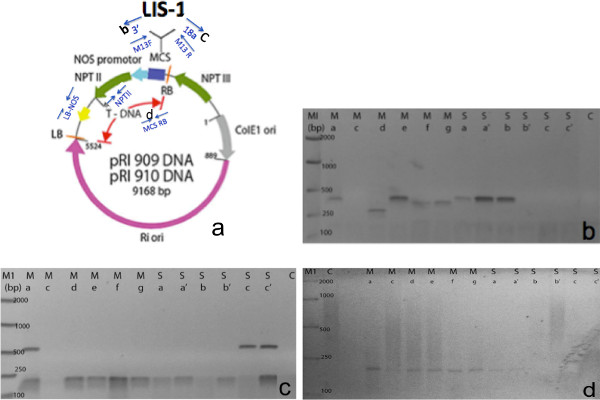
图7. 使用直接PCR方法对T1后代进行成功PCR扩增的示例。 (A) 植物双元载体+克隆的LIS-1插入片段示意图。蓝色箭头表示直接PCR筛选中所用PCR引物的位置(修改自Takara)。 (B) 使用引物M13F+3’进行的PCR (C) 使用引物M13R+18a进行的PCR (D) 使用右边界(RB)和多克隆位点(MCS)引物进行的PCR **每条泳道代表来自不同花朵的T1植株:C:对照枝条(未浸染),M:主枝花朵a-g,S:侧枝花朵b-c’。 请点击此处查看该图的放大版本。
| 正向引物序列来源 | 序列 5'-3' | 反向引物序列来源 | 序列 5'-3' | 退火温度 (°C) | 延伸时间 (秒) | 预期大小 (bp) |
| M13F (T-DNA) | CTGCAAGGCG ATTAAGTTGG | 3' (LIS-1 插入片段) | GAGGATGGAA GATGAAGAAGG | 57 | 40 | 450 |
| 18a (LIS-1 插入片段) | TATTTTAACCC TATCTCCCAACAC | M13R (T-DNA) | ATTAGGCACC CCAGGCTTTA | 57 | 40 | 520 |
| MCS (T-DNA) | TGGTCATAGC TGTTTCCTGTG | RB (T-DNA) | TTTAAACTGA AGGCGGGAAA | 60 | 20 | 200 |
| LB (T-DNA) | TTTGATGGTG GTTCCGAAAT | NOS (T-DNA) | GAATCCTGTT GCCGGTCTT | 60 | 30 | 380 |
| NPTII (T-DNA) | GCGATACCGT AAAGCACGAG | NTPII (T-DNA) | GCTCGACGTT GTCACTGAAG | 65 | 45 | 502 |
表1. 用于直接PCR检测的部分引物。
讨论
在某些植物物种中,例如亚麻(Linum usitatissimum),成功的植物转化一直受到限制。以往的亚麻转化方法需要通过创伤和共培养进行农杆菌(Agrobacterium)侵染,或应用基因枪法颗粒轰击,或采用超声波处理,随后进行植株再生;这一过程耗时较长,且容易伴随大量突变事件。此外,这些技术的筛选过程需要使用抗生素筛选标记,例如卡那霉素。然而,文献中已有报道指出,这种筛选方法会产生大量假阳性结果,因为亚麻容易在高浓度抗生素条件下逃逸6,9,14。此前亚麻转化技术的另一缺点是转化效率较低2,6。
在本方案中所述的方法中, 农杆菌通过花浸法介导的植物转化在亚麻中实现了较高的转化率(50–60%)。从主枝和侧枝上浸蘸并采集的花朵中均获得了转化植株。阳性转化植株的筛选过程简便,仅需将T1代植株种植于土壤中,在其叶片萌发后立即进行检测,从而避免了以往在其他植物花浸法中普遍使用的抗生素筛选步骤。通过直接对叶片进行PCR检测,并使用相应的T-DNA引物,可快速鉴定阳性转化植株。该技术操作简单、成本低廉且易于实施,但其转化率显著高于此前报道的其他方法 拟南芥 以及其他植物物种使用此方法1,10,12这也是亚麻中报道的最高转化率。
然而,该实验流程中存在一些关键步骤,包括选择最适宜的花期阶段和最佳的表面活性剂浓度,以确保农杆菌(Agrobacterium)能够穿透植物细胞,同时不损伤花器官。若在花蕾早期阶段(图2A)使用高于0.05%的Silwet-77浓度,花朵将无法正常发育,也不能结籽。若在花蕾晚期阶段(图2C)进行操作,尽管转化仍可能发生,但效率会显著降低。类似的结果也在拟南芥(Arabidopsis)花序浸染转化实验中被观察到1,4。在本实验方案中,我们测试了不同花期阶段与不同Silwet-77浓度的组合,最终确定最佳方案为:第一次浸染在花蕾中期阶段(图2B)使用0.05%的Silwet-77,随后在花蕾晚期阶段(图2C)进行第二次浸染,Silwet-77浓度略微降低至0.03%。此外,采用花蕾早期阶段(图2A)以0.003%的低浓度Silwet-77进行第一次浸染,随后在花蕾中期阶段(图2B)以0.05%的较高浓度Silwet-77进行第二次浸染,也能获得良好的转化效果。
在本实验方案中,曾尝试优化转化率的其他一些参数,但发现这些因素对最终结果并无影响。例如,将浸染后植株侧放并覆盖塑料膜的时间从一天延长至两天;使用OD值超过1的农杆菌(Agrobacterium)菌液,而非0.5–1;将浸染时间从1–2分钟延长至5–15分钟。然而,采用这些策略并未观察到对转化率有任何改善。但最有效的因素是使用处于合适花期的健康植株,以及使用最佳浓度的Silwet-77。我们注意到,进行两次浸染的效果略优于单次浸染,尽管单次浸染也有效。
可通过在第二次或第三次浸蘸时将Silwet-77的浓度降低至低至0.003%来对本方案进行修改。由于Silwet-77具有毒性,过高的浓度会导致花发育不良,从而无法产生种子。如果植株长势不健康且花蕾发育不良,可将浸蘸次数减少为一次,省略第二次或第三次处理。
该技术的一个主要局限是亚麻产生的花朵数量较少,每朵花获得的种子数量有限,以及亚麻较长的生命周期。从播种到主芽准备好进行第一次浸蘸需要6至8周时间,浸蘸后还需额外8至10周才能获得T1代植株。总体而言,获得T1代植株需要约5至6个月。与其他可全年开花的植物物种不同,某些亚麻品种在一年中的特定时期开花更佳。因此,对该技术进行周密的规划至关重要。
综上所述,我们利用两种不同亚麻品种进行花序浸染实验的结果表明:纤维亚麻品种 Stormont Cirrus(具有响应性且可塑)和油用亚麻品种 Bethune(稳定且无响应性)。通过花序浸染法介导的农杆菌(Agrobacterium)植物转化是一种适用于亚麻转化的可行且高效的方法,可用于替代先前使用的亚麻转化技术。本实验方案中对花序浸染法所做的改进同样适用于其他植物物种,而不仅限于亚麻。
披露
作者无任何利益冲突需要披露。
致谢
本工作由 Ogelbay 基金资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 原始 Stormont Cirrus 品种的亚麻籽 (PL) | |||
| 5" 花盆 | |||
| 盆栽土 | |||
| 具备适当光照条件的温室 | |||
| PCR 仪 | |||
| 琼脂糖凝胶电泳设备 | |||
| 数字成像系统 | |||
| Silwet-77 | LEHLE SEEDS | VIS-01 | 有毒,需戴手套 |
| GoTaq Green Master Mix | Promega | Part# 9PIM712 | |
| Terra PCR Direct Polymerase Mix | Clontech | 639270 | |
| 双元载体 PRI 909 | Takara | 3260 | |
| 根癌农杆菌 LBA4404 E | Takara | 9115 | |
| TOPO TA 克隆试剂盒 | Invitrogen | K4595-01 | |
| 蔗糖 | Fisher Scientific | ||
| 电穿孔仪及比色杯 | Bio-Rad | 165-2092 | |
| 摇床 | |||
| 旋转器 | |||
| 塑料膜和铝箔 | |||
| speedSTAR DNA 聚合酶 | Takara | RR070A/B | |
| QlAquick 凝胶回收试剂盒 | Qiagen | 28704 | |
| QIAGEN 质粒小提试剂盒 | Qiagen | 12123 | |
| SalI-HF 酶 | NEB | R3138S | |
| SacI-HF 酶 | NEB | R3156S | |
| T4 DNA 连接试剂盒 | NEB | M0202 | |
| MS 培养基(Murashige 和 Skoog) | Sigma | M5524 | |
| 琼脂 | Fisher Scientific | A360-500 |
参考文献
- Bent, A. Arabidopsis thaliana floral dip transformation method. Methods Mol Biol. 343, 87-103 (2006).
- Beranova, M., Rakousky, S., Vavrova, Z., Skalicky, T. Sonication assisted Agrobacterium-mediated transformation enhances the transformation efficiency in flax (Linum usitatissimum L.). Plant Cell Tiss Organ Cult. 94, 253-259 (2008).
- Chen, Y., Schneeberger, R. G., Cullis, C. A. A site-specific insertion sequence in flax genotrophs induced by environment. New Phytol. 167, 171-180 (2005).
- Clough, S. J., Bent, A. F. Floral dip: a simplified method for Agrobacterium-mediated transformation of Arabidopsis thaliana. Plant J. 16 (6), 735-743 (1998).
- Cullis, C. A. Mechanisms and Control of Rapid Genomic Changes in Flax. Ann Bot. 95, 201-206 (2005).
- Dong, J. Z., McHughen, A. An improved procedure for production of transgenic flax plants using Agrobacterium tumefaciens. Plant Sci. 88, 61-71 (1993).
- Logemann, E., Birkenbihl, R. P., Ulker, B., Somssich, I. S. An improved method for preparing Agrobacterium cells that simplifies the Arabidopsis transformation protocol. Plant Methods. 2 (16), (2006).
- Mara, C., Grigorova, B., Liu, Z. Floral-dip transformation of Arabidopsis thaliana to examine pTSO2::β-glucuronidase reporter gene expression. J Vis Exp. (40), (2010).
- Mlynarova, L., Bauer, M., Nap, J. -P., Pretova, A. High efficiency Agrobacterium-mediated gene transfer to flax. Plant Cell Rep. 13, 282-285 (1994).
- Mu, G., et al. Genetic transformation of maize female inflorescence following floral dip method mediated by agrobacterium. Biotechnology. 11 (3), 178-183 (2012).
- Trieu, A. T., et al. Transformation of Medicago truncatula via infiltration of seedlings or flowering plants with Agrobacterium. Plant J. 22 (6), 531-541 (2000).
- Yasmeen, A., et al. In Planta transformation of tomato. Plant Mol Biol Rep. 27, 20-28 (2009).
- Zale, J. M., Agarwal, S., Loar, S., Steber, C. M. Evidence for stable transformation of wheat by floral dip in Agrobacterium tumefaciens. Plant Cell Rep. 28, 903-913 (2009).
- Zhan, X. C., Jones, D. A., Kerr, A. Regeneration of flax plants transformed by Agrobacterium rhizogenes. Plant Mol Biol. 11, 551-559 (1988).
重印与许可
