本文所述实验方案的目的是在大鼠中诱导出类似强迫的行为,以用于研究强迫症(OCD)。该行为是通过减弱表明压杆反应能够有效获得食物的信号而诱发的。
本文内容
摘要
摘要
在强迫症(OCD)的信号衰减大鼠模型中,大鼠按压杠杆以获取食物后,会呈现一个复合刺激作为反馈提示。随后,通过反复单独呈现该刺激而不给予食物(且大鼠未执行按压杠杆反应),使该反馈逐渐减弱。在下一阶段,在消退条件下评估大鼠的按压杠杆行为(即不再给予食物)。在此阶段,大鼠表现出两种类型的按压行为:一种是按压后试图获取奖赏的行为,另一种则无此尝试。后者是该模型中类强迫行为的测量指标。一种对照程序中,大鼠不经历反馈提示的衰减过程,可用于区分信号衰减效应与消退效应。信号衰减模型是一种经过高度验证的强迫症模型,能够区分类强迫行为与虽重复但非强迫性的行为。此外,该程序中采集的指标可排除被测试组间差异的其他解释,且具有定量性、无偏倚性,并不受实验者间变异的影响。该模型的主要缺点包括设备成本较高、需要一定的技术经验,以及相较于其他强迫症模型更为耗时(共11天)。该模型可用于检测药物或非药物干预对强迫行为的抑制或促进作用,并可用于研究强迫行为的神经基础。
引言
强迫症(OCD)是一种主要的精神疾病,在普通人群中的发病率为1%至3%1,2。患有强迫症的个体常出现反复、侵入性且不受意愿控制的思维(强迫观念)和/或重复的仪式性行为(强迫行为)3。目前,强迫症具体的神经病理机制尚未完全阐明。然而,已有研究证实,5-羟色胺能4-7、多巴胺能8,9以及谷氨酸能10系统在该疾病中发挥作用。此外,眶额皮层、扣带皮层、基底神经节以及顶叶内的某些脑区也被认为参与了强迫症的病理生理过程7,11-13。最后,有报道指出,与卵巢激素水平波动相关的生活事件(例如,分娩、排卵)可诱发或加重女性患者的强迫症症状14-16,提示卵巢激素在强迫症中具有调节作用17。
由于目前对强迫症(OCD)潜在机制的理解仍不充分,因此使用能够准确模拟其行为和神经表现的合适动物模型,对于推进我们对其生物学基础的认识至关重要。此外,这类模型有助于开发新的治疗手段。这一点在强迫症的研究中尤为重要,因为许多患者对治疗无反应,或仅表现出症状的部分缓解18,19。事实上,近年来针对强迫症的遗传学、药理学和行为学动物模型(详见文献20-28综述)已不断扩展并深化了我们对该疾病的认识。
强迫症(OCD)最广泛使用的动物行为模型之一是信号衰减大鼠模型(综述见29)。该模型的理论假设是,目标导向行为成功执行后所伴随的反馈功能缺陷,会导致强迫性反应30-37。该模型由Joel及其同事开发28,基于大鼠的操作性行为。在初始训练阶段,大鼠按压杠杆后会获得食物颗粒作为奖励。一次成功的按压杠杆动作,除了给予食物奖励外,还会同时触发食盒灯亮起和声音提示,从而为大鼠提供反馈,表明按压杠杆的行为已成功获得食物。接下来,通过反复呈现该刺激但不给予奖励的方式,有意削弱刺激对奖励传递的信号作用(重要的是,此阶段箱体内无杠杆)。类强迫行为在训练的最后阶段出现。在测试阶段(在消退条件下进行),按压杠杆后仅呈现刺激,但不给予食物奖励。所谓“强迫性”行为表现为多次按压杠杆后,大鼠并不尝试获取奖励。抗强迫/促强迫效应则表现为“强迫性”按压杠杆次数的减少/增加。由于信号衰减涉及消退过程,因此有必要区分信号衰减效应与单纯的消退效应(per se)。因此,在对照组(常规消退组)中,复合刺激在测试阶段前未经历衰减处理。具有抗强迫/促强迫作用的干预措施不应改变该组中“强迫性”按压杠杆的次数。(更多细节参见29)。
“强迫性”压杆行为模仿了强迫症(OCD)患者所表现出的过度且无必要的行为特征。因此,信号衰减模型具有良好的表面效度。此外,基于该模型开展的研究表明,其同时具有良好的预测效度和结构效度(详见文献20,21)。该模型的预测效度源于多项研究结果,这些研究显示,已知可改善强迫症症状的药物能够减轻模型中的强迫性压杆行为38,39,而对丘脑下核进行高频刺激同样具有抑制作用40,这种刺激方式在人类强迫症患者中已被证实具有抗强迫作用41,42。此外,一些在强迫症治疗中无效的药物,在该模型中也未表现出抗强迫效应38,39。该模型还具备良好的结构效度,因为研究表明,强迫症的临床症状与通过信号衰减在大鼠中诱导出的类强迫行为涉及相似的神经机制。因此,在强迫性压杆行为中,已证实5-羟色胺能系统43–46、多巴胺能系统39,46和谷氨酸能系统47的参与,以及与强迫症相关的脑区的作用40,44,48–50。此外,研究发现卵巢激素可调节雌性个体中的强迫性压杆行为51。因此,信号衰减模型是探索强迫症神经机制以及筛选新型抗强迫疗法的有力工具。有关信号衰减模型的临床相关性及其在强迫症研究中的应用价值的全面讨论,参见文献20–22,29。
方案
注:所有实验方案均遵循以色列特拉维夫大学机构动物护理与使用委员会以及美国国立卫生研究院(NIH)的指导原则。所有努力均旨在尽量减少使用动物的数量及其痛苦。
1. 动物准备
- 将大鼠饲养在具有12小时光照/12小时黑暗循环的房间中。
- 在实验过程中,使大鼠维持在22小时的食物限制方案下,自由饮水。
- 每周称重两次,确保大鼠体重不低于自由进食大鼠体重的90%,依据生长曲线(例如,Harlan,http://www.harlan.com/models/spraguedawley.asp)。若大鼠体重下降,则将其剔除实验。
2. 实验设置
- 使用两个相邻的房间。一个作为“等候室”,用于在行为测试前安置大鼠;另一个用于进行实验操作,该房间将放置操作箱。
注意:确保等候室中的大鼠不会暴露于操作箱产生的声音信号中。 - 使用配备网格地板和食丸仓的操作箱,食丸仓可通过一个铰链式亚克力面板获取,每次递送一粒45 mg的食丸。
注意:铰链的开启会触发一个微动开关;配备一个3 W的灯光用于照亮食丸仓;两个可伸缩杠杆(宽4 cm,距离侧壁2.8 cm,位于食丸仓两侧各7.5 cm处,离地5 cm);一个位于箱顶的室内灯用于照亮操作箱内部;一个音频信号装置,可产生80 dB、2.8 kHz的纯音。 - 将操作箱置于带隔音功能的箱体中,每个箱体侧面安装有通风风扇。
- 在实验开始前,使用专用软件预先编程所有训练阶段,并设定每个阶段精确的实验参数。该软件可由计算机控制并激活操作箱,同时自动记录实验运行过程中产生的所有相关数据。
注意:各训练阶段(食丸仓训练、压杆训练、信号消退、测试)的具体参数详见下文。参数的具体编程方式取决于所使用的软件和硬件系统。
3. 动物处理与食物限制
- 在实验程序开始前5天,每天抓取大鼠进行约2分钟的处理。
- 从处理的第一天开始实施为期22小时的食物限制计划。在每次处理或行为训练结束后至少半小时,允许大鼠在其饲养笼中自由进食2小时。
注意:确保大鼠有水 随意 当它们处于笼舍中,尤其是在2小时的进食期间,必须提供饮水,否则它们将无法正常进食。 - 在抓取训练的最后3天,将20至30粒食物颗粒放在一个小托盘中,并将托盘放入大鼠的饲养笼内。只有在观察到每只大鼠至少摄取了两粒颗粒后,方可从笼中移除托盘。
注意:之后可将沉淀物用于操作性训练的强化。
4. 训练程序
- 为使大鼠适应测试环境,应在行为测试前至少15分钟将其连同饲养笼一起转运至等候室。
- 杂志训练(第1 - 3天)。
- 在杂志训练的第一天,将足量的食物颗粒放入食盒中,使其对大鼠可见。
注意:一种方法是将沉淀物放置好,使其导致铰接的有机玻璃面板保持略微打开的状态。 - 计算并设置奖赏训练程序,使每次试验开始时自动打开房间灯,并在5秒的可变延迟后,伴随由奖赏槽灯和声音组成的复合刺激的呈现,同时向奖赏槽内投放一颗食物奖赏颗粒。
- 计算复合刺激和屋内灯光在大鼠头部进入食盒(已收集试验)或15秒后(未收集试验)关闭,以先发生者为准。定义每次试验后跟随30秒的试验间间隔。
- 将大鼠放入操作箱内,5分钟后手动确认所有大鼠是否已取食颗粒。若已取食,则启动训练程序;若未完成取食,再额外给予5分钟。
- 将杂志训练会话程序设置为在大鼠完成30次有效收集试验或总共达到40次试验后停止运行。
- 在杂志训练的第3天,确保大鼠在总共32次试验中完成最多30次有效试验。对于未达到此标准的大鼠,在当天训练结束时将其重新送回操作箱中进行另一次完整的训练 session。
注意:在杠杆按压训练第一天早晨的 magazine 训练最后一天额外增加一次训练 session 后,仍未达到该标准的大鼠需进行排除。
- 在杂志训练的第一天,将足量的食物颗粒放入食盒中,使其对大鼠可见。
- 杠杆按压训练 - 预训练阶段(第4天):自由操作时间表下的杠杆按压。
- 在将大鼠放入操作箱之前启动训练程序。设置程序,使强化杠杆在训练期间始终出现在箱内,同时箱内照明灯保持开启,而非强化杠杆始终保持缩回状态。
注意:在大鼠之间平衡杠杆的一侧(左/右),并在整个实验过程中对每只大鼠保持恒定。 - 将一些食丸放在杠杆上,然后将一只大鼠放入实验箱中。
- 让大鼠在杠杆区域自由探索,直至其在收集食丸时偶然按压杠杆,从而触发单个食丸的递送以及复合刺激的呈现。
- 计算程序,使得复合刺激在大鼠头部进入食盒(完成试验)或15秒后(未完成试验)立即关闭,以先发生者为准。
- 将程序设置为当大鼠完成30次试验后停止运行。
- 如果大鼠在30分钟内未达到此标准,则在杠杆上放置3至4粒食丸,并等待另外20分钟。如果大鼠未能完成30次试验,则在训练日结束时将其送回操作箱进行额外训练。
注意:在杠杆按压训练第一天早晨,对额外预训练后仍未达到该标准的大鼠重新进行测试。未能达到标准的大鼠应予以剔除。通常情况下,几乎所有大鼠在经过3次预训练后均可学会杠杆按压(多数在第一次训练中即学会)。然而,若动物在习得杠杆按压行为方面存在较大困难,可采用逐步逼近法(shaping)。 - 在塑形过程中,保持隔音箱的门打开,并观察操作箱中的大鼠。当大鼠接近杠杆时,使用软件启动食丸递送和复合刺激的呈现。重复此操作。
- 最初,当大鼠处于杠杆附近时即给予强化,随后逐渐改为仅在大鼠与杠杆发生实际身体接触时才给予强化,最后仅在大鼠尝试按压杠杆时才进行强化。
注意:塑形可能需要一段时间。请尽量保持安静。
- 在将大鼠放入操作箱之前启动训练程序。设置程序,使强化杠杆在训练期间始终出现在箱内,同时箱内照明灯保持开启,而非强化杠杆始终保持缩回状态。
- 杠杆按压训练(第5 - 7天):采用离散试验程序进行杠杆按压。
- 运行程序,使每次试验的开始由屋内灯亮起作为信号,5秒后,两个杠杆同时伸入箱内。
- 确保非强化杠杆(NRL)上的反应不产生任何程序设定的后果,而强化杠杆上的按压会触发食丸分配器递送一粒食物颗粒至食丸槽,同时呈现复合刺激。
- 当大鼠头部进入食盒或15秒 elapsed 后,杠杆被收回,复合刺激和室内灯关闭。
- 将每次试验定义为之后跟随30秒的试次间间隔。在压杆训练的第一天(第5天),将复合刺激定义为持续15秒后关闭,以促进压杆反应的习得。在随后的两天(第6–7天),将复合刺激定义为仅持续10秒,以确保食丸仓进入行为紧随压杆反应之后发生。
- 将大鼠放入操作箱内,然后启动训练程序。
- 将杠杆按压训练会话程序设定为:当大鼠按压被强化的杠杆(RL)并获取食物颗粒(完成一次试验)达到40次,或总试验次数达到60次时,训练会话自动停止。
- 在杠杆按压训练的最后一天,确保大鼠在总共42次试验中完成最多40次。如果某只大鼠未达到此标准,则在当天结束时将其送回操作箱进行一次额外的训练。
注意:在杠杆按压训练最后一天增加一次训练 session 后仍未能达到此标准的大鼠应予以剔除。 - 在杠杆按压训练的最后一天,记录每次试验中未获得奖励的杠杆按压次数, 即, 首次在RL(额外的杠杆按压次数)上反应后的按压次数。
- 将大鼠随机分配至实验组。
- 在测试阶段进行实验操作时(例如, 在测试药物急性效应的研究中),采用包含操纵因素(有操纵/无操纵)和程序因素(训练后信号减弱,PTSA/常规消退,RE,参见 第4.5节用于分析在信号衰减阶段开始前,杠杆按压训练最后一天中,伴随颗粒物获取的过度杠杆按压次数(称为完成的过度杠杆按压,ELP-C)以及未按压杠杆的试验次数。
- 确保各组在此项指标上无统计学显著差异。
注意:通常只有少数大鼠表现出较高次数的额外压杆行为,因此应排除这些大鼠后进行组间比较。此外,确保经过额外训练的大鼠在各组间的分布尽可能均衡。
- 信号衰减/正常消退(第8 - 10天)
- 以与第1至3天的杂志训练完全相同的方式进行该操作,但有两点例外:
- 清空颗粒分配器,以确保在复合刺激开始后,食物储藏室不会接收到食物颗粒。
- 将相关阶段设置为在10秒后关闭复合刺激,而不是15秒后。
- 确保在训练期间RL和NRL均保持回缩状态。
- 确保每次信号衰减训练包含30次试验。在训练的最后一天,确保大鼠尝试获取食物颗粒(即, 在复合刺激出现后,将其头部插入食盒的次数不超过14次。
- 将未达到该标准的大鼠在当天结束时送回操作箱,进行额外的一次训练。
注意:此阶段不要排除未达到标准的大鼠。 - 将接受常规消退训练的大鼠带至“等候区”,并将其留在各自的饲养笼中,停留时间相当于信号衰减阶段的平均持续时间。
- 采用混合设计方差分析(ANOVA),以操纵条件(有操纵/无操纵)和程序类型(PTSA/RE)作为组间主效应因素,以实验阶段(第1至第3次会话)作为组内重复测量因素,对信号衰减阶段三次会话中完成的试验次数进行分析。
- 确保测试阶段的性能差异并非由先前的差异所导致。
- 以与第1至3天的杂志训练完全相同的方式进行该操作,但有两点例外:
- 检测(第11天): 以与压杆训练相同的方式进行操作,但在消除条件下进行。 即, 按压RL会导致复合刺激呈现,但由于食丸分配器为空,食物盒中不会递送食物。
- 计算测试阶段包含50次试验用于雄性,60次试验用于雌性,因为雌性通常在50次试验后仍有反应。然而,若同一研究中同时使用两种性别的受试者(推荐做法),则应为所有受试者提供60次试验。
- 记录过度按压杠杆的次数 不 随后进入食丸仓(称为过度压杆未完成,ELP-U);随后进入食丸仓的过度压杆次数(即, ELP-C);NRL上的杠杆按压次数;以及鼻触次数(即, 大鼠将头部伸入食盒的次数
- 使用方差分析(ANOVA)对测试阶段大鼠的表现进行分析,主因素包括操作类型(有操作/无操作)和实验程序(PTSA/RE),分析指标包括ELP-C和ELP-U的数量、已完成、未完成及未按压的试验次数,以及在非强化杠杆上的鼻触次数和按压次数。
- 对各操作步骤内处理组与未处理/对照组进行事后分析,以检验显著性交互作用。
注意:当操作的精确参数未知时(例如, 相关药物剂量、电刺激参数),并为了减少实验动物使用数量,仅在PTSA实验流程中测试不同参数下操作的效果例如, 使用多种药物剂量)。 - 找到最佳参数,即对 ELP-U 数量产生最大影响但又不消除行为反应的参数,然后运行完整的实验设计(PTSA 和 RE)。
结果
以下结果基于 Brimberg et al., 200752。所有图示均已获爱思唯尔(Elsevier)许可重新印刷。
在本研究中,我们检测了Sprague Dawley(SD)雄性大鼠在信号衰减模型中的行为表现。首先,在实验1中,我们测试了选择性5-羟色胺再摄取抑制剂(SSRI)帕罗西汀在PTSA实验中的三个剂量效应(每组n = 10)。在测试阶段,帕罗西汀呈剂量依赖性地减少了ELP-C的数量(图1A;方差分析显示剂量主效应显著,F(3,22) = 5.15,p < 0.01)和ELP-U的数量(图1B;方差分析显示剂量主效应显著,F(3,22) = 7.99,p < 0.001)。
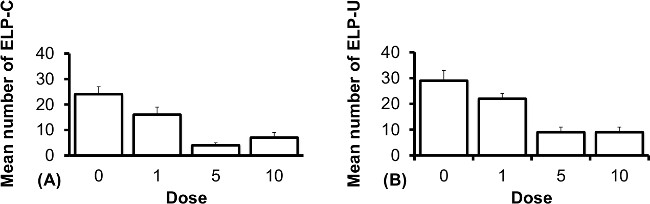
图 1. 该图展示了一项典型的剂量-反应实验,比较选择性5-羟色胺再摄取抑制剂帕罗西汀在不同剂量下对雄性大鼠信号衰减后ELP-C与ELP-U的影响。 显示在PTSA实验程序测试日接受溶剂或1、5或10 mg/kg帕罗西汀处理的大鼠,其额外压杆行为的平均值与标准误:(A) 随后伴随食盒进入的额外压杆次数(完成试验中的额外压杆,ELP-C);(B) 未伴随食盒进入的额外压杆次数(未完成试验中的额外压杆,ELP-U)。经52许可重印。
在实验2中,我们测试了在实验1中最有效的药物剂量(5 mg/kg),并在PTSA和RE两种程序中进行了验证(每组n = 10)。在测试阶段,帕罗西汀在PTSA和RE两种程序中均减少了ELP-C的数量图2A;双因素方差分析,操作的主效应,F(1,32) = 6.50,p < 0.05;药物主效应,F(1,32) = 8.69,p < 0.01;程序 X 药物相互作用,F(1,32) = 0.43,p = 0.52),此外还表现出抗强迫效应, 即, 减少了PTSA中的ELP-U数量,但在RE手术中未见减少(图2B;操作的主效应,F(1,32) = 9.60,p < 0.01 < 0.005;药物的主效应,F(1,32) = 5.75,p < 0.05;药物相互作用的程序 X,F(1,32) = 4.83,p < 0.05 < 0.05).
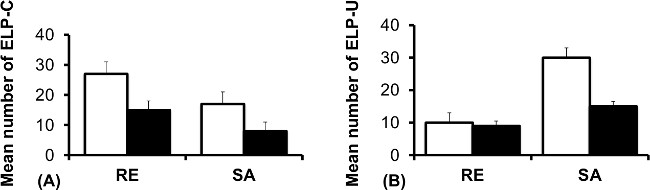
图2. 本图展示了一项代表性实验,比较信号衰减(SA)与常规消退(RE)对经生理盐水和帕罗西汀处理的雄性大鼠ELP-C与ELP-U的影响。 在PTSA和RE实验测试日,接受溶剂或5 mg/kg帕罗西汀处理的大鼠的(A) ELP-C和(B) ELP-U数量的平均值及标准误。经52许可重印。
讨论
强迫症的信号衰减大鼠模型是一种研究强迫样行为的强有力的行为学模型。该模型具有较高的表面效度、预测效度和构念效度20,21,已被广泛用于研究该行为的神经基础39,43-45,48、对药物干预的反应38,39,43,47,53,54、对深部脑刺激的反应40,46,50,以及卵巢激素对该行为的调节作用51。因此,该模型是研究强迫症的一种有价值的动物模型。
在信号衰减模型中,强迫性压杆行为相较于其他实验诱导的重复性行为(如消退爆发和持续性行为)具有多项优势。首先,强迫性压杆行为与人类强迫行为之间的相关性已得到充分证实,而其他重复性行为(常被称为类强迫行为)的有效性较低,或从未经过验证20-22。值得注意的是,行为重复/持续现象广泛存在于多种精神疾病中55-62,因此,准确验证目标行为是否具有类强迫特征至关重要。此外,在PTSA实验过程中收集的多种行为指标(即大鼠在测试阶段对无强化作用的压杆的按压次数,或总的鼻触次数)有助于排除各实验组之间在强迫性压杆行为上差异的其他解释。例如,过度压杆可能反映的是整体运动活动的增加,在这种情况下,通常会伴随无强化压杆按压次数的增加(因此,该指标也可避免额外进行如旷场实验等其他行为测试)。另一方面,若某些干预措施导致大鼠总体鼻触次数普遍增加,则可能间接导致强迫性压杆行为减少,即使这些干预本身并不具备真正的抗强迫效应。在测试阶段之前收集的其他指标(如压杆训练阶段的过度压杆次数、信号衰减阶段完成的试验次数)可帮助实验者排除测试阶段组间差异源于前期学习能力差异的可能性。值得注意的是,实验各阶段收集的所有行为指标均为定量数据,因而具有客观性,不受主观解释影响,且不受实验者间差异的干扰。
信号衰减模型的一个缺点是需要特殊设备(由计算机操作的条件反射箱、用于操作这些箱子的相应软件), 等等。这使得该实验既昂贵又具有一定复杂性,需要操作人员具备专业技能,能够熟练进行临时故障排除以及日常设备维护。此外,由于该模型基于习得性而非自发性行为,且包含多个阶段,因此与其他一些强迫症动物模型相比,耗时相对较长(11天)。然而,根据我们的经验,经过适当培训后,掌握该实验所需的专业技能相对容易。同时,由于所有设备均由计算机控制且几乎完全自动化,可高效地同时运行大量大鼠,从而降低了时间成本。此外,实验结果易于计算,无需手动编码或特殊处理。最后,操作箱具有高度多功能性,一旦配备,除信号衰减实验外,还可用于多种行为学实验,因此具有极高的成本效益。
另一个在使用该模型时应予考虑的因素是,由于其过程耗时且包含多个阶段,可能并不适用于慢性治疗或发育研究。为了不影响大鼠在行为实验初始阶段的学习能力,若需实施慢性治疗,则必须中断实验流程,这将进一步增加实验的时间成本。此外,该中断不能发生在测试阶段之前,因此接受慢性治疗的大鼠将在治疗影响下经历信号衰减阶段,这可能在测试阶段开始前就改变其行为,从而使结果的解释变得困难。关于发育研究,同样由于该模型耗时较长,无法用于极年幼的大鼠例如, 小于46日龄的大鼠不可用于测试)。此外,大鼠无法进行重复测试,因此在每个研究年龄阶段都必须训练新的大鼠,从而排除了使用纵向设计的可能性。
上文提到的信号衰减模型的一个重要方面是,大鼠动情周期中卵巢激素水平的波动会调节强迫性压杆行为51。这一方面对于研究女性性腺激素如何影响强迫行为机制的研究人员尤为重要。尽管尚未检测雄性性腺激素对强迫性压杆行为的影响,但这些或其他因素可能会影响该模型中雄性大鼠的表现,因为在该模型中,雄性和雌性大鼠在各项反应指标上的变异性相似51。因此,对于不旨在研究性腺激素作用的研究人员,可同时使用雄性和雌性大鼠,而无需测定这些激素的水平。
总之,尽管强迫症信号衰减大鼠模型存在一些不足之处,例如实验周期较长,且需要特殊设备和一定的技术知识,但它为评估大鼠的强迫行为提供了一种敏感且可靠的方法。此外,该模型能够区分真正的强迫行为与其他非真正强迫性的重复性/持续性行为。因此,该模型非常适合用于评估潜在的抗强迫治疗手段,采用该模型的研究有助于拓展我们对强迫症神经基础的认识,而目前这些神经机制仍尚未被充分阐明。
披露
作者无任何利益冲突需要披露。
致谢
本研究由以色列科学基金会(资助编号 592/12)资助给 DJ
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 大鼠用模块化测试箱 | Campden Instruments Ltd. | Model 80003M | |
| 模块化测试箱用食丸槽 | Campden Instruments Ltd. | Model 80210M-R | 带头部进入口和门 |
| 低剖面可伸缩反应杠杆 | Campden Instruments Ltd. | Model CI4460-M | 每箱配备2个杠杆 |
| 刺激灯 | Campden Instruments Ltd. | Model 80221 | |
| 食丸分配器 | Campden Instruments Ltd. | Model 80209-45 | 配备45 mg可更换食丸尺寸转轮 |
| 小鼠鼻触装置 | Campden Instruments Ltd. | Model 80116S | 带刺激灯 |
| Sonalert 声音刺激系统 | Campden Instruments Ltd. | Model SC628 | |
| ABET II 完整起始套装 | Campden Instruments Ltd. | Model 88501*C | 配备220 VAC/50 Hz电源 |
| 隔音测试箱 | Campden Instruments Ltd. | Model 80600A-SAC | 配备观察孔和28 VDC通风风扇面板 |
| 动物行为环境测试系统(ABET)II | Lafayette Instrument Neuroscience, Indiana, USA | Model 89501 | |
| 个人计算机 | 最低配置1.8 GHz处理器,运行Microsoft Windows XP(SP3)或Win7操作系统 | ||
| 45 mg无尘精密食丸 | PMI Nutrition International, Indiana, USA | Formula. P/AlN-76A | 容器须严密封闭,以防受潮 |
参考文献
- Ruscio, A. M., Stein, D. J., Chiu, W. T., Kessler, R. C. The epidemiology of obsessive-compulsive disorder in the National Comorbidity Survey Replication. Mol Psychiatry. 15 (1), 53-63 (2010).
- Sasson, Y., et al. Epidemiology of obsessive-compulsive disorder: a world view. The Journal of clinical psychiatry. 58, Suppl 12. 7-10 (1997).
- Association, A. P. Diagnostic and statistical manual of mental disorders: DSM-IV. , Washington, DC. (1994).
- Murphy, D. L., et al. Genetic perspectives on the serotonin transporter. Brain Research Bulletin. 56, 487-494 (2001).
- Ozaki, N., et al. Serotonin transporter missense mutation associated with a complex neuropsychiatric phenotype. Mol Psychiatry. 8 (11), 933-936 (2003).
- Sasson, Y., Zohar, J. New developments in obsessive-compulsive disorder research: implications for clinical management. International clinical psychopharmacology. 11, Suppl 5. 3-12 (1996).
- Stein, D. J. Neurobiology of the obsessive–compulsive spectrum disorders. Biological. 47, 296-304 (2000).
- McDougle, C. J., et al. Haloperidol addition in fluvoxamine-refractory obsessive-compulsive disorder: A double-blind, placebo-controlled study in patients with and without tics. Archives of General Psychiatry. 51 (4), 302-308 (1994).
- McDougle, C. J., et al. Neuroleptic addition in fluvoxamine-refractory obsessive-compulsive disorder. The American Journal of Psychiatry. 147 (5), 652-654 (1990).
- Pittenger, C., Krystal, J. H., Coric, V. Glutamate-modulating drugs as novel pharmacotherapeutic agents in the treatment of obsessive-compulsive disorder. NeuroRx. 3 (1), 69-81 (2006).
- Menzies, L., et al. Integrating evidence from neuroimaging and neuropsychological studies of obsessive-compulsive disorder: The orbitofronto-striatal model revisited. Neuroscience & Biobehavioral Reviews. 32 (3), 525-549 (2008).
- Rotge, J. -Y., et al. Matter Alterations in Obsessive-Compulsive Disorder: An Anatomic Likelihood Estimation Meta-Analysis. Neuropsychopharmacology. 35 (3), 686-691 (2009).
- Saxena, S., Brody, A. L., Schwartz, J. M., Baxter, L. R. Neuroimaging and frontal-subcortical circuitry in obsessive-compulsive disorder. The British Journal of Psychiatry. 173 (Suppl. 35, 26-37 (1998).
- Abramowitz, J. S., Schwartz, S. A., Moore, K. M., Luenzmann, K. R. Obsessive-compulsive symptoms in pregnancy and the puerperium:: A review of the literature. Journal of Anxiety Disorders. 17, 461-478 (2003).
- Labad, J., et al. Female reproductive cycle and obsessive-compulsive disorder. The Journal of clinical psychiatry. 66 (4), 428-435 (2005).
- Maina, G., Albert, U., Bogetto, F., Vaschetto, P., Ravizza, L. Recent life events and obsessive–compulsive disorder (OCD): the role of pregnancy/delivery. Psychiatry Research. 89, 49-58 (1999).
- Uguz, F., et al. Course of obsessive-compulsive disorder during early postpartum period: a prospective analysis of 16 cases. Comprehensive Psychiatry. 48 (6), 558-561 (1016).
- Greenberg, B. D., et al. Deep brain stimulation of the ventral internal capsule/ventral striatum for obsessive-compulsive disorder: worldwide experience. Mol Psychiatry. 15 (1), 64-79 (2010).
- Eddy, K. T., Dutra, L., Bradley, R., Westen, D. A multidimensional meta-analysis of psychotherapy and pharmacotherapy for obsessive-compulsive disorder. Clinical Psychology Review. 24 (8), 1011-1030 (2004).
- Albelda, N., Joel, D. Current animal models of obsessive compulsive disorder: an update. Neuroscience. 211 (0), 83-106 (2012).
- Albelda, N., Joel, D. Animal models of obsessive-compulsive disorder: Exploring pharmacology and neural substrates. Neuroscience & Biobehavioral Reviews. 36 (1), 47-63 (2012).
- Joel, D. Current animal models of obsessive compulsive disorder: A critical review. Progress in Neuro-Psychopharmacology and Biological Psychiatry. 30 (3), 374-388 (2006).
- Fineberg, N. A., et al. Probing Compulsive and Impulsive Behaviors, from Animal Models to Endophenotypes: A Narrative Review. Neuropsychopharmacology. 35 (3), 591-604 Forthcoming.
- Eilam, D., Zor, R., Fineberg, N., Hermesh, H. Animal behavior as a conceptual framework for the study of obsessive–compulsive disorder(OCD). Behavioural Brain Research. 231 (2), 289-296 (2012).
- Ting, J. T., Feng, G. Neurobiology of obsessive–compulsive disorder: insights into neural circuitry dysfunction through mouse genetics. Current Opinion in Neurobiology. 21 (6), 842-848 (2011).
- Boulougouris, V., Chamberlain, S. R., Robbins, T. W. Cross-species models of OCD spectrum disorders. Psychiatry Research. 170 (1), 15-21 (2009).
- Korff, S., Harvey, B. H. Animal models of obsessive-compulsive disorder: rationale to understanding psychobiology and pharmacology. Psychiatric Clinics of North America. 29 (2), 371-390 (2006).
- Camilla d'Angelo, L. -S., et al. Animal models of obsessive-compulsive spectrum disorders. CNS Spectrums. 19 (01), 28-49 (2014).
- Joel, D. The signal attenuation rat model of obsessive–compulsive disorder: a review. Psychopharmacology. 186 (4), 487-503 (2006).
- Baxter, L. R. Functional imaging of brain systems mediating obsessive-compulsive disorder. Neurobiology of Mental Illness. Charney, D. S., Nestler, E. J., Bunney, B. S. , University Press. Oxford. 534-547 (1999).
- Gray, J. A., McNaughton, N. The neuropsychology of anxiety: An enquiry into the function of the septo-hippocampal system. , Oxford University Press. (1982).
- Malloy, P. The frontal lobes revisited. Perecman, E. , IRBN Press. (1987).
- Pitman, R. K. The psychobiology of obsessive-compulsive disorder. Zohar, J., Insel, T. R. , Springer Publishing Company. (1991).
- Pitman, R. K. A cybernetic model of obsessive-compulsive psychopathology. Comprehensive Psychiatry. 28, 334-343 (1987).
- Reed, G. F. Obsessional personality disorder and remembering. The British Journal of Psychiatry. 130 (2), 177-183 (1977).
- Szechtman, H., Woody, E. Obsessive-Compulsive Disorder as a Disturbance of Security Motivation. Psychological Review. 111 (1), 111-127 (2004).
- Otto, M. W. Normal and abnormal information processing: A neuropsychological perspective on obsessive compulsive disorder. Psychiatric Clinics of North America. 15 (4), 825-848 (1992).
- Joel, D., Ben-Amir, E., Doljansky, J., Flaisher, S. 'Compulsive' lever-pressing in rats is attenuated by the serotonin re-uptake inhibitors paroxetine and fluvoxamine but not by the tricyclic antidepressant desipramine or the anxiolytic diazepam. Behavioural Pharmacology. 15 (3), 241-252 (2004).
- Joel, D., Doljansky, J. Selective alleviation of compulsive lever-pressing in rats by D1, but not D2, blockade: possible implications for the involvement of D1 receptors in obsessive-compulsive disorder. Neuropsychopharmacology : official publication of the American College of Neuropsychopharmacology. 28 (1), 77-85 (2003).
- Klavir, O., Flash, S., Winter, C., Joel, D. High frequency stimulation and pharmacological inactivation of the subthalamic nucleus reduces ‘compulsive’ lever-pressing in rats. Experimental Neurology. 215 (1), 101-109 (2009).
- Fontaine, D., et al. Effect of subthalamic nucleus stimulation on obsessive—compulsive disorder in a patient with Parkinson disease. Journal of Neurosurgery. 100 (6), 1084-1086 (2004).
- Mallet, L., et al. Compulsions, Parkinson's disease, and stimulation. The Lancet. 360 (9342), 1302-1304 (2002).
- Flaisher-Grinberg, S., Klavir, O., Joel, D. The role of 5-HT2A and 5-HT2C receptors in the signal attenuation rat model of obsessive–compulsive disorder. The International Journal of Neuropsychopharmacology. 11 (06), 811-825 (2008).
- Joel, D., Doljansky, J., Roz, N., Rehavi, M. Role of the orbital cortex and of the serotonergic system in a rat model of obsessive compulsive disorder. Neuroscience. 130 (1), 25-36 (2005).
- Schilman, E. A., Klavir, O., Winter, C., Sohr, R., Joel, D. The role of the striatum in compulsive behavior in intact and orbitofrontal-cortex-lesioned rats: possible involvement of the serotonergic system. Neuropsychopharmacology. 35 (4), 1026-1039 (2010).
- Winter, C., et al. The role of the subthalamic nucleus in ‘compulsive’ behavior in rats. European Journal of Neuroscience. 27 (8), 1902-1911 (2008).
- Albelda, N., Bar-On, N., Joel, D. The role of NMDA receptors in the signal attenuation rat model of obsessive–compulsive disorder. Psychopharmacology. 210 (1), 13-24 (2010).
- Joel, D., Doljansky, J., Schiller, D. 'Compulsive' lever pressing in rats is enhanced following lesions to the orbital cortex, but not to the basolateral nucleus of the amygdala or to the dorsal medial prefrontal cortex. European Journal of Neuroscience. 21 (8), 2252-2262 (2005).
- Joel, D., Klavir, O. The effects of temporary inactivation of the orbital cortex in the signal attenuation rat model of obsessive compulsive disorder. Behavioral Neuroscience. 120 (4), 976-983 (2006).
- Klavir, O., Winter, C., Joel, D. High but not low frequency stimulation of both the globus pallidus and the entopeduncular nucleus reduces ‘compulsive’ lever-pressing in rats. Behavioural Brain Research. 216 (1), 84-93 (2011).
- Flaisher-Grinberg, S., et al. Ovarian hormones modulate ‘compulsive’ lever-pressing in female rats. Hormones and Behavior. 55 (2), 356-365 (2009).
- Brimberg, L., Flaisher-Grinberg, S., Schilman, E. A., Joel, D. Strain differences in ‘compulsive’ lever-pressing. Behavioural Brain Research. 179 (1), 141-151 (2007).
- Joel, D., Avisar, A., Doljansky, J. Enhancement of excessive lever-pressing after post-training signal attenuation in rats by repeated administration of the D1 antagonist SCH 23390 or the D2 agonist quinpirole, but not the D1 agonist SKF 38393 or the D2 antagonist haloperidol. Behavioral Neuroscience. 115 (6), 1291-1300 (2001).
- Yankelevitch-Yahav, R., Joel, D. The role of the cholinergic system in the signal attenuation rat model of obsessive-compulsive disorder. Psychopharmacology. 230 (1), 37-48 (2013).
- Clark, L., et al. Association between response inhibition and working memory in adult ADHD: A link to right frontal cortex pathology. Biological Psychiatry. 61 (12), 1395-1401 (2007).
- Cools, R., Altamirano, L., D’Esposito, M. Reversal learning in Parkinson's disease depends on medication status and outcome valence. Neuropsychologia. 44 (10), 1663-1673 (1016).
- Gauggel, S., Rieger, M., Feghoff, T. -A. Inhibition of ongoing responses in patients with Parkinson’s disease. Journal of Neurology, Neurosurgery & Psychiatry. 75 (4), 539-544 (2004).
- Hozumi, A., Hirata, K., Tanaka, H., Yamazaki, K. Perseveration for novel stimuli in Parkinson's disease: An evaluation based on event-related potentials topography. Movement Disorders. 15, 835-842 (2000).
- Huddy, V. C., et al. Impaired conscious and preserved unconscious inhibitory processing in recent onset schizophrenia. Psychological Medicine. 39 (06), 907-916 (2009).
- Itami, S., Uno, H. Orbitofrontal cortex dysfunction in attention-deficit hyperactivity disorder revealed by reversal and extinction tasks. NeuroReport. 13 (18), 2453-2457 (2002).
- Waford, R. N., Lewine, R. Is perseveration uniquely characteristic of schizophrenia. Schizophrenia Research. 118 (13), 128-133 (2010).
- Waltz, J. A., Gold, J. M. Probabilistic reversal learning impairments in schizophrenia: Further evidence of orbitofrontal dysfunction. Schizophrenia Research. 93 (13), 296-303 (1016).
重印与许可
