此处,我们介绍一种进行荧光DNA的简单方法 原位 杂交(DNA ISH)以可视化载片上染色体的重复异染色质序列。该方法所需试剂极少,且具有高度通用性,适用于长短不同的探针、多种组织类型,以及荧光或非荧光信号检测。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
DNA 原位 杂交(DNA ISH)是一种常用于将序列定位到特定染色体区域的方法。该方法在将高度重复序列定位至异染色质区域方面尤为有效,而计算方法在这些区域往往面临难以克服的挑战。本文介绍了一种简化的DNA ISH实验流程,避免了其他DNA ISH方案中标准步骤所必需的甲酰胺洗涤过程。本方案优化了带有荧光染料的短单链DNA探针的杂交条件,可有效标记多种不同昆虫组织类型中异染色质染色体区域内的重复DNA序列。然而,该方法也可扩展应用于较大探针以及单拷贝(非重复)DNA序列的可视化。我们通过将几种不同的重复序列定位至黑腹果蝇(Drosophila melanogaster)神经细胞和华金氏拟寄生蜂(Nasonia vitripennis)精母细胞的压片染色体上,展示了该方法的应用。我们展示了小片段商业化合成探针以及一个较大探针的杂交模式,以供比较。该实验流程仅需常规实验室耗材和试剂,非常适合缺乏DNA ISH操作经验的研究人员使用。
引言
DNA 原位 杂交(DNA ISH)是一种常用于将序列定位到特定染色体区域的方法。可通过多种方法生成针对常染色质内单拷贝区域的探针,包括通过缺口平移法或末端标记长片段DNA产物1,2,以及掺入地高辛(DIG)标记的核苷酸并通过多种偶联抗体进行识别1-3。要对拷贝数较少或单拷贝的常染色质序列进行可视化,需使用具有高特异性活性的单一大型探针,或使用多种较小探针的混合物,以 collectively 增强信号。
相比之下,异染色质中发现的高度重复序列(如卫星DNA)是DNA荧光原位杂交(DNA ISH)更容易检测的目标,因为它们通常以数十至数千个重复单位的形式聚集在染色体的特定区域,称为区段(blocks)。转座元件也可在特定的染色体位点上以高拷贝数存在2。在这些情况下,即使单个探针的特异性活性较低,也能因其在多个位点发生杂交而有效标记异染色质序列。针对重复序列的探针可由商业公司合成为短寡核苷酸(30–50 bp),并化学偶联多种不同的荧光基团。由于在高度重复的卫星序列区段内构建测序支架存在技术困难,利用基因组测序技术对异染色质内的重复序列进行定位较为困难4-6,7。目前,ISH仍是实现这些序列在染色体亚水平定位的最有效方法。该策略对于定位当前正在进行的基因组和转录组测序研究中不断发现的大量重复序列具有重要意义。
通过简化DNA原位杂交(ISH)的实验流程,可显著提高在载玻片上固定染色体中重复序列定位的效率与便捷性。例如,现有的DNA ISH实验流程通常需要使用甲酰胺溶液对杂交后的组织进行多次洗涤2,8,这不仅显著延长了序列定位所需的时间,还因该昂贵试剂的大量使用而产生大量化学废液。本文介绍一种改进的DNA ISH方法,无需甲酰胺洗涤步骤,并仅需使用常规的实验室设备与试剂。该方法最初旨在利用商业合成的荧光标记寡核苷酸探针,快速定位果蝇(Drosophila)幼虫神经母细胞异染色质区域中的高度重复DNA序列。然而,该方法同样适用于利用其他方式制备的较大探针9,10,在多种不同组织类型和染色体类型中进行重复序列的定位。此外,通过使用较长的探针或针对目标常染色质区域设计的多个短探针,该方法也可用于常染色质序列的定位。
访问受限。请登录或开始试用以查看此内容。
方案
1. 组织解剖与固定(60 分钟)
- 对于果蝇大脑,放置3rd 在1x PBS(磷酸盐缓冲盐水)液滴中选择大型3龄幼虫rd 从不拥挤的小瓶或瓶子中活跃爬行的龄期幼虫。
- 使用一对超细镊子夹住口钩,另一对镊子夹住身体长度约三分之二处图1A、B)。轻轻拉动口钩以暴露脑、腹神经节、唾液腺及部分幼虫消化道。用镊子分离脑和腹神经节(图 1A、B) 从其他组织中分离出来,置于塑料培养皿中的一滴 1× PBT(含 Tween 的磷酸盐缓冲液)内。
- 对于 纳蜂 睾丸解剖,选择3日龄雄性蛹(体呈黄色,眼为红色)。雄性 纳索尼亚 蛹期时,相对于雌性,其翅芽长度较小(图1C).
- 用一对镊子夹住蛹腹部顶端靠近胸部的区域,另一对镊子夹住腹部最远端的尖端,轻轻拉出泪滴状的睾丸(周围附有脂肪体,可轻轻抖落)。 图1D)。去除附着在睾丸上的任何外部组织,以免影响压片效果,并将睾丸置于塑料培养皿中的一滴1x PBT溶液里。
- 每个载玻片上,解剖总共四到五个组织样本(即., 果蝇 幼虫大脑或 Nasonia 睾丸
注意:超过五个样本会导致细胞核和染色体过于密集。 - 可选地,为实现有丝分裂染色体常染色质区域姐妹染色单体的部分分离,可用低渗溶液处理组织:将脑组织从1x PBT转移至一滴0.5%柠檬酸钠溶液中,孵育5-10分钟(不得超过10分钟)。
注:秋水仙素(一种有丝分裂抑制剂)有助于增加处于中期的有丝分裂相数目11然而,如果使用非常大的健康幼虫,则无需此步骤,甚至不推荐使用,因为它可能对染色体的分辨率、铺展和形态产生负面影响。 - 放置一滴液体(约20 µl将固定液(含2.5%多聚甲醛的45%乙酸溶液)滴加到经Sigmacote处理的洁净盖玻片表面。
注意:固定液需每日新鲜配制。用于FISH时,含1.8–3.7%多聚甲醛的45%乙酸固定液效果最佳。若使用脑或睾丸以外的组织,或将本方案用于免疫FISH,可能需要尝试不同的固定液(不同固定液列表见12). - 使用超细镊子将每个组织样本从解离缓冲液(1× PBT)中小心转移至固定剂液滴中,尽量减少解离缓冲液带入固定液。将组织样本在固定剂液滴中均匀分散,彼此保持适当间距。室温下在固定剂中孵育 4 min。
- 将多聚赖氨酸包被的载玻片轻轻倒扣在组织和盖玻片上,此时不要按压,仅使两者轻柔接触,使盖玻片粘附于载玻片的底面。随后将载玻片翻转,使盖玻片朝上。
- 将载玻片/组织/盖玻片夹在折叠的滤纸中间。在稳定的表面上,用拇指垂直向下用力按压盖玻片正上方的位置。注意避免盖玻片发生侧向滑动(否则会导致组织涂抹)。
- 将载玻片/组织/盖玻片浸入液氮中(参见装置示意图) 图1E、F),静置至氮气停止沸腾(时间稍长亦可)。取出载玻片,立即用新的剃刀刀片轻弹盖玻片一角,向上快速掰断盖玻片(避免刀片刮伤固定后的组织)。
- 在将载玻片/组织/盖玻片浸入液氮前,先将其有盖玻片的一面朝上放置于干冰块上预冷1-2分钟,有助于防止载玻片破裂。
- 将载有组织的玻片立即放入盛有室温100%乙醇的考普林瓶中,静置至少5分钟(如需要,时间可更长)。
注意:也可使用冰冷的100%乙醇。 - 取出载玻片并移除组织,用无尘纸吸去多余的乙醇(避免触碰固定后的组织),然后将载玻片置于空气中干燥1小时。
- 直接进入步骤2,或在低湿度空气中或将载玻片置于干燥器中保存数周至数月后再进行杂交。
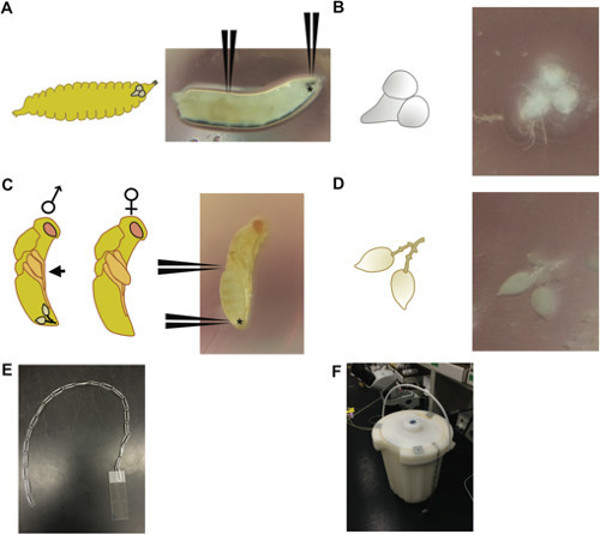
图1:(A) A 3rd 龄期 果蝇 幼虫(右),标示出抓取口钩的位置(以*表示)以及解剖脑组织时在幼虫体长三分之二处的位置;(左)同发育阶段幼虫的示意图,显示脑在幼虫头部内的相对位置。 (B) 从一只3龄幼虫中解剖出的大脑与腹神经节rd 龄期 果蝇 幼虫(右)及该组织的示意图(左)。 (C) 3天大的 Nasonia 黄体红眼期的蛹 (D) 一对从3日龄个体解剖获得的睾丸 Nasonia 雄性蛹(右侧),图中星号(*)标示了在腹部后端抓取蛹的位置,以及身体中段的位置;(左侧)雄性和雌性小蜂蛹的示意图;雄性蛹可通过其翅膀不超出矢状轮廓(黑箭头)加以区分,而雌性蛹的翅膀则超出该轮廓;图中还显示了雄性蛹体内成对睾丸的相对位置。 (E) 装置——一串回形针——以及 (F) 将载玻片浸入液氮容器中的方法。可使用多个回形针串以同时浸入多张载玻片。
2. 原位 杂交(第1天30分钟;第2天长探针1小时—2.5小时)
- 将每种探针各 1 µl(100 ng)加入 20 µl 的 1.1x 杂交缓冲液中。用移液器将探针/杂交缓冲液滴加至固定组织表面(避免接触组织)。
- 小心地将盖玻片直接放置在探针/杂交缓冲液上,确保盖玻片居中覆盖在组织上方。缓冲液应迁移至盖玻片外缘,不留气泡。
注意:不接触组织的小气泡不会对实验造成影响。若存在大气泡,可小心抬起盖玻片一角,再轻轻放下以去除气泡。 - 将载玻片/组织/盖玻片置于预热至 95 °C 的金属块表面(盖玻片朝上)。用大片铝箔覆盖以避免光照。使载玻片在 95 °C 下孵育 5 分钟。
注意:可将常见的带孔试管加热块翻转使用,以提供一个平整的放置表面。 - 取下载玻片,稍冷却至触感温热。小心地用拉伸过的 Parafilm 封膜包裹盖玻片边缘,以密封其下方液体。
- 将密封好的载玻片放入湿盒中,并将湿盒置于预热至 30 °C 的培养箱内。在 30 °C 下孵育 4 小时至过夜。
- 可用空的枪头盒或带盖的塑料储存盒作为湿盒,在底部放置湿润的 Kimwipe 或纸巾以维持湿度。
注意:单链 DNA 寡核苷酸探针设计长度为 28–33 个碱基,理论熔解温度(Tm)为 45–47 °C。该长度与 Tm 范围反映了我们研究的许多重复序列富含 AT,因此 GC 含量极低。较长的探针可能具有更高的 Tm 值,这可能导致在标准杂交温度 30 °C 下背景杂交信号升高。因此,可能需要对杂交温度进行优化以获得最佳结果。为确定最佳杂交温度,可每次递增或递减 5 °C 进行尝试。
- 可用空的枪头盒或带盖的塑料储存盒作为湿盒,在底部放置湿润的 Kimwipe 或纸巾以维持湿度。
- 小心移除 Parafilm,然后缓慢抬起盖玻片一角,小心取下盖玻片。将载玻片在 0.1x SSC 缓冲液中洗涤三次,每次 15 分钟。洗涤过程中用铝箔覆盖染色缸以减少光照。
- 若未使用长链生物素化探针,则直接进入步骤 2.8。
- 若使用长链生物素化探针,用 Kimwipe 擦干组织周围区域,注意不要触碰组织本身。在组织上滴加 100 µl 封闭液,并轻轻覆盖盖玻片,注意避免产生气泡。用 Parafilm 封边后置于 37 °C 孵育 30 分钟。
- 小心取下盖玻片,并用 Kimwipe 吸干组织周围液体。在组织上滴加 100 µl 以 1:1,000 比例稀释于 SBT 中的罗丹明-亲和素(rhodamine-avidin),轻轻覆盖盖玻片,避免产生气泡。用 Parafilm 封边后置于 37 °C 孵育 30 分钟。
- 小心取下盖玻片,将载玻片在 4x SSCT 中洗涤三次,每次 5 分钟;随后在 0.1x SSC 中洗涤三次,每次 5 分钟。
注意:可适当延长洗涤时间。
- 取下载玻片,用干燥的 Kimwipe 吸干组织周围多余缓冲液(避免接触组织)。将载玻片组织面向上置于避光处 10–15 分钟,或直至水分完全蒸发。
- 在组织上滴加 11 µl Vectashield 封片剂(含 4’,6-二脒基-2-苯基吲哚—DAPI)。小心地将洁净的盖玻片(未经 Sigmacote 处理)直接覆盖在封片剂和组织中心上方。封片剂应缓慢向外扩散至盖玻片边缘。
注意:若封片剂未能完全覆盖盖玻片所有边缘,可在边缘一处补充 1–2 µl 封片剂以填补空隙。此时,务必在封固前擦去载玻片表面多余的封片剂。 - 用指甲油密封盖玻片边缘。避免将指甲油涂在组织样本上。
- 将载玻片竖直放置于避光处,待指甲油完全干燥变硬(通常需 30 分钟以上)。此时可进行成像,或于 -20 °C 保存最多一周以备后续成像。
缓冲液/溶液配制方法
10倍浓度 PBS
- 80 g NaCl
- 2.0 g KCl
- 14.4 g Na2HPO4
- 2.4 g KH2PO4
- 用 H2O 定容至 1 L,调 pH 至 7.4
1× PBT
- 5 ml 10x PBS
- 45 ml H2O
- 0.1% Tween 20
20x SSC
- 175.3 g NaCl
- 88.2 g 柠檬酸钠
- 溶于 800 ml H2O
- 调 pH 至 7,加 H2O 定容至 1 L
4x SSCT
- 200 ml 20x SSC
- 799 ml H2O
- 0.1% Tween 20
0.1x SSC
- 5 ml 20x SSC
- 995 ml H2O
杂交混合液(20 µl;改良自11)
- 10 µl 甲酰胺
- 4 µl 50% 硫酸葡聚糖
- 2 µl 20x SSC
- 4 µl H2O
SBT8(10 ml)
- 2 ml 20x SSC
- 0.01 g 牛血清白蛋白(BSA)
- 10 µl Tween 20
- 7.9 ml H2O
封闭液8(10 ml)
- 0.3 g BSA
- 10 µl Tween 20
- 2 ml 20x SSC
- 8 ml H2O
含多聚甲醛的固定液(1 ml)
- 393.75 µl H2O(先加水)
- 450 µl 冰醋酸
- 156.25 µl 16% 多聚甲醛
访问受限。请登录或开始试用以查看此内容。
结果
为展示该方法,我们将一组 commercially 合成的小型寡核苷酸(经化学修饰带有荧光偶联物;图2)以及一条较长的生物素标记探针(通过PCR产物的切口平移法制备;图2B),与来自多种不同组织类型的染色体进行杂交(见表1)。靶序列包括位于有丝分裂染色体着丝粒周围(异染色质)区域的卫星重复序列,这些染色体来自D. melanogaster幼虫神经母细胞(图2A-C),以及来自蛹期N. vitripennis睾丸的减数分裂染色体(图2D)。在上述每种情况下,杂交结果均显示出染色体亚区段清晰的条带模式。值得指出的是,针对D. melanogaster 359 bp卫星重复序列的探针可同时识别X染色体上一个大型的多兆碱基对区段,以及3号染色体上一个更小的区域(图2A)。另一条针对Responder卫星序列的较长探针也能检测到重复拷贝数相对较低(约700拷贝)的重复区段(<...
访问受限。请登录或开始试用以查看此内容。
讨论
DNA原位杂交(DNA ISH)常用于将特定序列定位到染色体上。我们描述了一种针对高拷贝数、异染色质序列优化的简便DNA ISH方法。该方法无需使用甲酰胺溶液进行洗涤(这是其他现有DNA ISH方案的必需步骤),而是将载有组织的玻片直接置于预热的金属块上以实现DNA变性。此方法避免了大量使用甲酰胺。获得清晰杂交信号的关键步骤之一是使用 freshly 制备的固定液;若未做到这一点(或使用已开封超过一个月的多聚甲醛重新配制溶液),可能会降低信号分辨率。该方法的一个局限性在于,与其他DNA ISH方案类似,杂交温度可能需要优化,以消除与非靶序列的非特异性杂交。
该方案具有高灵敏度——每个分子偶联单个荧光团的短单链DNA探针即可检测到重复拷贝数相对较低的重复序列片段(例如, ~700 Rsp 重复; 图2C)。使用高灵敏度数码相机时,可通过短链单链DNA探针检测到重复次数较少的卫星区段信号。尽管此处未展示,该方法同样适用于常染色质中非重复序列的定位。10使用长链生物素标记的探针可更灵活地检测低拷贝...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性财务利益或其他利益冲突。
致谢
我们感谢W. M. Keck科学系的Zhaohua Irene Tang提供落射荧光显微镜的使用,以及Werren实验室为解剖实验捐赠了Nasonia。本工作部分由美国国立卫生研究院(NIH)博士后研究基金(5F32GM105317-02)资助,授予AML。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 多聚-L-赖氨酸包被载玻片(普通载玻片也可使用) | Sigma Aldrich | ||
| 超细镊子(5号) | Dumont | ||
| 22 × 22 mm 盖玻片 | Fisher | 用Sigmacote浸渍处理15秒,吸干后彻底擦拭去除所有Sigmacote残留,确保盖玻片透明无痕 | |
| Sigmacote | Sigma | ||
| 滤纸 | 75 – 150 mm | ||
| 石蜡防粘纸 | |||
| 带温度计的加热块 | |||
| 干燥培养箱 | |||
| 剃须刀片 | |||
| 湿室 | 空的移液器吸头盒或密封盒,内衬湿润的纸巾或Kimwipes | ||
| 柯林瓶(Coplin jars) | 带载玻片凹槽 | ||
| 铝箔 | |||
| 巴斯德吸管 | |||
| 1.5 ml 微量离心管 | |||
| 指甲油 | 透明或彩色 | ||
| P20 微量移液器及塑料吸头 | |||
| 回形针 | 20 – 25 枚标准金属回形针连接成链状 | ||
| 试剂 | |||
| 16% 电镜级甲醛 | Electron Microscopy Reagents | ||
| 乙酸 | Sigma | ||
| 液氮 | |||
| 100% 乙醇,化学纯 | |||
| 商业合成的荧光标记寡核苷酸 | |||
| 长链生物素化探针 | Invitrogen;可选步骤 2.7.1–2.7.3 | 例如,使用Invitrogen的BioNick进行缺口平移并生物素化标记 | |
| 罗丹明-亲和素(Rhodamine-Avidin) | Roche;可选步骤 2.7.1–2.7.3 | 用于检测长链生物素化探针 | |
| 杂交缓冲液 | 见上述配方 | ||
| 4x SSCT | 见上述配方 | 氯化钠-柠檬酸钠缓冲液 + Tween | |
| 0.1x SSC | 见上述配方 | 氯化钠-柠檬酸钠缓冲液 | |
| 封闭液 | 见上述配方 | ||
| SBT | 见上述配方 | SSC、牛血清白蛋白、Tween | |
| 1x PBT | 见上述配方 | 磷酸盐缓冲液 + Tween | |
| 1x PBS | 磷酸盐缓冲液 | ||
| 低渗溶液 | H2O中含0.5% 柠檬酸钠 | ||
| 甲酰胺 | Sigma Aldrich | ||
| 含DAPI的Vectashield封片剂 | Vector laboratories |
参考文献
- Blattes, R., Kas, E. Fluorescent in situ hybridization (FISH) on diploid nuclei and mitotic chromosomes from Drosophila melanogaster larval tissues. Cold Spring Harbor Protocols. 2009 (9), (2009).
- Dimitri, P. Fluorescent in situ hybridization with transposable element probes to mitotic chromosomal heterochromatin of Drosophila. Methods in Molecular Biology. 260, 29-39 (2004).
- Pardue, M. L. In situ hybridization to polytene chromosomes in Drosophila using digoxigenin-labeled probes. Cold Spring Harbor Protocols. 2011 (8), 1003-1006 (2011).
- Hoskins, R. A., et al. Heterochromatic sequences in a Drosophila whole-genome shotgun assembly. Genome Biology. 3 (12), (2002).
- Hoskins, R. A., et al. Sequence finishing and mapping of Drosophila melanogaster heterochromatin. Science. 316 (58331), 1625-1628 (2007).
- Treangen, T. J., Salzberg, S. L. Repetitive DNA and next-generation sequencing: computational challenges and solutions. Nature Reviews Genetics. 13 (1), 36-46 (2012).
- He, B., et al. Mapping the pericentric heterochromatin by comparative genomic hybridization analysis and chromosome deletions in Drosophila melanogaster. Genome Research. 22 (12), 2507-2519 (2012).
- Pimpinelli, S., Bonaccorsi, S., Fanti, L., Gatti, M. Fluorescent in situ hybridization (FISH) of mitotic chromosomes from Drosophila larval brain. Cold Spring Harbor Protocols. 2010 (3), (2010).
- Larracuente, A. M., Noor, M. A., Clark, A. G. Translocation of Y-linked genes to the dot chromosome in Drosophila pseudoobscura. Molecular Biology and Evolution. 27 (7), 1612-1620 (2010).
- Ferree, P. M., Barbash, D. A. Species-specific heterochromatin prevents mitotic chromosome segregation to cause hybrid lethality in Drosophila. PLoS Biology. 7 (10), e1000234(2009).
- Williams, B. C., Karr, T. L., Montgomery, J. M., Goldberg, M. L. The Drosophila l(1)zw10 gene product, required for accurate mitotic chromosome segregation, is redistributed at anaphase onset. The Journal of Cell Biology. 118 (4), 759-773 (1992).
- Gatti, M., Bonaccorsi, S., Pimpinelli, S. Looking at Drosophila Mitotic Chromosomes. Methods in Cell Biology. 44, 371-391 (1994).
- Werren, J. H., Stouthamer, R. PSR (paternal sex ratio) chromosomes: the ultimate selfish genetic elements. Genetica. 117 (1), 85-101 (2003).
访问受限。请登录或开始试用以查看此内容。
重印与许可
