采用基于PCR的方案,从野外捕获的单只蝇类体表及消化道中检测阪崎肠杆菌(Cronobacter spp.)、肠炎沙门氏菌(Salmonella enterica)和单核细胞增生李斯特菌(Listeria monocytogenes)。本方案的目的是在食源性疾病暴发调查期间,作为环境采样工作的一部分,从采集的单个昆虫个体中检测并分离出细菌性病原体。
本文内容
摘要
摘要
人们普遍认为昆虫是食源性病原体的重要传播媒介。然而,将昆虫作为特定食源性疾病暴发事件中病原体的传播载体进行关联一直存在挑战。这主要是因为在食源性疾病暴发调查期间,昆虫并未作为环境采样计划的一部分以无菌方式采集,且目前尚无标准化方法可用于从单个昆虫中检测食源性细菌。为推进解决这一问题,我们改进了一种 commercially available 基于 PCR 的检测系统方案,该系统原本用于从食品和环境样本中检测食源性病原体,现被调整用于从单只蝇类中检测食源性病原体。利用这一标准化方案,我们对100只野外捕获的蝇类进行了检测,以筛查是否存在 Cronobacter spp.、Salmonella enterica 和 Listeria monocytogenes,并证明了可以从单只蝇的体表及消化道中检测并进一步分离这些病原体。在采集的野生蝇类中,22% 的消化道样本和 8% 的体表样本至少对这三种食源性病原体中的一种呈阳性。蝇类任一身体部位上 Cronobacter spp. 的检出率(19%)在统计学上显著高于 S. enterica(7%)和 L. monocytogenes(4%)。在使用该基于 PCR 的系统检测 S. enterica 和 L. monocytogenes 时未观察到假阳性结果,因为所有 PCR 阳性样本均成功获得了纯细菌培养物。然而,大约 50% 的 PCR 阳性样本未能获得纯的 Cronobacter 菌落,提示该病原体的基于 PCR 的检测系统可能与野生蝇类所携带的高度复杂微生物群中的其他肠杆菌科(Enterobacteriaceae)发生交叉反应。本文所提出的标准化方案将使实验室能够对以无菌方式采集的昆虫进行食源性致病菌的检测,从而为公共卫生官员在开展食源性疾病暴发调查时查明食品污染途径提供另一条证据线索。
引言
昆虫在食源性疾病的传播中起着重要作用,因为它们可将病原体传播至食物、食品接触表面及器具1在昆虫中,蝇类、蟑螂和蚂蚁表现出有利于食源性病原体传播的行为,这些行为包括与腐烂物质、垃圾和粪便接触,内栖性(进入建筑物)以及伴人共栖性(与人类共同栖息)。2食源性病原体,例如 沙门氏菌 sp.(复数:spp.) 单核细胞增生李斯特菌, 弯曲杆菌 sp. 大肠杆菌 O157:H7,以及志贺氏菌属的成员 阪崎肠杆菌 ( formerly 阪崎肠杆菌已报道可通过昆虫传播3-5. 与人类共栖的污物蝇类可通过其受污染的体表机械性传播食源性细菌。然而,蝇类消化道内食源性病原体的数量可高达其体表(身体、头部、足部和翅膀)所携带数量的三倍5食源性病原体在蝇类消化道内存留的时间可比其在体表更长6,7 在某些情况下,它们能够增殖并定植于果蝇的消化道中4,8,9这会增加果蝇的传播潜力,因为它们可以通过排泄和反流进一步扩散食源性病原体。10,11.
如今,已有改进的监测系统能够更快速地检测食源性疾病暴发。在开展食源性疾病暴发调查时,公共卫生官员会寻找可能作为感染来源或传播载体的食品。调查人员还可能对涉事场所(或多个场所)进行环境评估,以查明食品污染途径,并在调查过程中采集样本12。尽管已有大量科学文献报道昆虫可携带食源性病原体,但将昆虫明确关联为特定食源性疾病暴发中病原体的传播媒介仍具挑战性。这主要是因为在食源性疾病暴发调查期间的环境采样程序中,昆虫并未以无菌方式采集。为了将昆虫——特别是那些行为特征有利于食源性病原体传播的昆虫——纳入环境采样流程,有必要建立一种标准化、快速、灵敏且可靠的检测方法,用于从单只昆虫中检出食源性病原体。
传统的平板培养技术用于检测昆虫中的食源性病原体时费时费力,且依赖于目标细菌在不同培养基中的竞争性生长,以克服昆虫固有共生微生物群的快速增殖。大多数将昆虫与细菌性病原体相关联的研究通过合并多个昆虫样本以提高检测方法的灵敏度,而非基于单个昆虫个体来鉴定病原体的存在。因此,这些研究未能区分病原体在昆虫体内的具体分布部位13-18。明确食源性病原体是存在于昆虫体表还是消化道内具有重要意义,因为这可能带来不同的流行病学影响,并导致相应的防控策略差异。作为机械传播媒介,仅短暂停留在食物上的蝇类可能仅通过其体表转移少量细菌;而那些在食物上反刍和排泄的蝇类则更有可能以较高水平传播病原体,增加感染风险。因此,评估单个昆虫个体中食源性病原体的携带情况,并区分病原体在其身体部位的具体分布,显得尤为重要。
尽管越来越多地采用不依赖培养的方法来检测食源性病原体,但目前尚未有商业化方法可用于从单只昆虫中检测食源性病原体。目前已有经过验证的分子检测方案,可对食品中的食源性病原体进行快速检测,并已被工业界和监管机构所采用。这些方法包括基于DNA的技术,用于在多种食品样本中检测病原体。虽然分子检测方法比传统的平板培养法更快,但仍需对样本进行增菌培养,以达到聚合酶链式反应(PCR)方法所需的102菌落形成单位(CFU)的检测灵敏度19。此外,还需从PCR阳性样本中分离出纯的细菌菌落,以便通过适当的方法确认病原体的存在。
本实验方案旨在标准化一种 commercially available 基于 PCR 的检测系统,用于从单只蝇类的体表及消化道中检测食源性细菌病原体,并进一步从样本中分离这些病原体。本方案的灵敏度首先通过实验室饲养的家蝇(Musca domestica)成虫进行校准,这些家蝇被人工喂食不同梯度稀释的各细菌病原体。随后,该标准化方案被用于调查100只野外捕获的蝇类,检测其体表和/或消化道中是否存在食源性病原体。该标准化方案将有助于公共卫生实验室识别昆虫所携带的健康威胁,并可在开展食源性疾病暴发调查时,将其纳入环境采样计划,作为样本采集的一部分。
方案
1. 果蝇的收集
- 使用无菌昆虫扫网采集单只果蝇。将扫网放入冷藏箱中,并转移至实验室。
2. 果蝇解剖
- 将无菌采集的果蝇置于 -20 °C 环境中 5 - 7 分钟,以实现无菌固定。
- 使用无菌镊子将一只果蝇放入含有 1 ml 预热(37 °C)缓冲蛋白胨水(BPW)的无菌 2 ml 管中。轻轻翻转混匀 2 分钟,确保果蝇整个身体与培养基充分接触,从而使存在于果蝇体表(S)的微生物群转移至 BPW 中(BPW-S)。用编号和果蝇部位标记试管(即 1S)。
注意:有关本方案中提及的材料与试剂的详细说明,请参见试剂/设备明细表。 - 使用无菌镊子将果蝇从 BPW-S 培养基中取出,并转移至一个洁净的空 2 ml 管中,用于表面消毒。在进行消毒与解剖操作期间,将含有 BPW-S 培养基的管子置于 37 °C 培养箱中孵育。
- 将果蝇浸入 1 ml 70% 乙醇中 1 分钟进行表面消毒,随后用无菌蒸馏水冲洗,再将其浸入 1 ml 新鲜配制的 0.05%(v/v)次氯酸钠溶液中。用无菌蒸馏水冲洗 3 次。将最后一次冲洗液转移至一个灭菌的 2 ml 管中。
注意:每次弃液时使用 1,000 µl 微量移液器或翻转试管完成,确保果蝇始终保留在管内。在表面消毒的每一步中均需轻轻翻转混匀。 - 为评估消毒效果,取最后一次冲洗液 100 µl 接种至胰蛋白胨大豆琼脂(TSA)平板,使用无菌 L 形一次性涂布器均匀涂布。于 37 °C 培养 24 小时后,观察是否有细菌菌落生长。
注意:若 TSA 平板上出现细菌菌落,表明表面消毒不彻底。此时仅可报告果蝇体表存在食源性病原体,因为无法排除体表与消化道之间的交叉污染。
- 将果蝇浸入 1 ml 70% 乙醇中 1 分钟进行表面消毒,随后用无菌蒸馏水冲洗,再将其浸入 1 ml 新鲜配制的 0.05%(v/v)次氯酸钠溶液中。用无菌蒸馏水冲洗 3 次。将最后一次冲洗液转移至一个灭菌的 2 ml 管中。
- 完成果蝇表面消毒后,将其转移至一片灭菌的纸巾上以去除多余水分,随后转移至一个无菌的 60 mm 一次性培养皿中。
- 将培养皿置于解剖显微镜下,利用双歧检索表鉴定果蝇至物种水平20,21。
- 使用灭菌的精细尖头镊子轻轻拉出果蝇的肛门及整个消化道(A),并以无菌操作方式转移至另一含有 1 ml 预热(37 °C)BPW 与 0.5 mm 氧化锆/二氧化硅珠的无菌 2 ml 管中(BPW-A)。用与该果蝇相同的编号及部位标记试管(即 1A)。
- 使用细胞破碎仪对含有 BPW-A 的管子充分震荡 5 - 10 分钟。在继续后续操作期间,将管子置于 36 ± 1 °C 条件下孵育。
- 如需保存标本作为凭证或长期储存,将果蝇剩余部分放入洁净的 2 ml 管中,并加入 1 - 2 ml 95% 乙醇。
3. 初次和二次富集
- 根据样品编号和果蝇的身体部位,标记所有含有培养基的初级和次级增菌管。
- 在无菌操作台内,将300 µl BPW-S(表面)转移至含有以下培养基的无菌2 ml离心管中:
- 针对 Salmonella,加入1 ml预热(42 °C)的BPW。在42.5 °C的循环水浴中孵育22–24小时。进行次级增菌时,取100 µl增菌后的BPW转移至已预先装入无菌簇状管中的400 µl预热(37 °C)脑心浸出液(BHI)肉汤中。在37 °C孵育3小时。
- 针对 Cronobacter,加入1 ml预热(37 °C)并含新生霉素(10 mg/L;Wallace, M.,个人交流)的BPW。或者,使用1 ml R & F Enterobacter sakazakii 增菌肉汤(含万古霉素和头孢磺啶补充剂)作为初级增菌。在37 °C孵育22–26小时。进行次级增菌时,取100 µl含新生霉素的增菌BPW转移至已预先装入无菌簇状管中的400 µl预热(37 °C)BHI肉汤中。在37 °C孵育3小时。
- 针对 L. monocytogenes,加入1 ml新配制的RT 24 Listeria 选择性增菌肉汤(24 LEB)并添加选择性补充剂。在37 °C孵育44 ± 5小时。L. monocytogenes 的检测无需次级增菌。
- 使用标记为BPW-A的试管,重复上述步骤3.2.1–3.2.3。
4. 基于PCR的靶向食源性病原体扩增与检测系统的制备
步骤 4-8 使用商用 PCR 扩增仪/检测系统、计算机工作站以及即用型试剂盒,对 Salmonella(Salmonella 2 标准检测试剂盒)、Cronobacter 属(E. sakazakii 标准检测试剂盒)和 Listeria monocytogenes(L. monocytogenes 24E 检测试剂盒)进行筛查。标准检测采用 PCR 终点检测法。每种试剂盒均包含含有嵌入式染料的 PCR 预混片剂,该染料在结合双链 DNA 时会发出荧光信号。该信号在 PCR 系统程序的检测阶段被捕获,生成熔解曲线,软件据此判断结果为阳性或阴性。
- 根据每种目标食源性病原体的制造商方案准备试剂和设备。
注意:Salmonella 和 Cronobacter 的检测方案需要一步裂解程序,而 L. monocytogenes 的检测方案则需要两步裂解程序(分别见第5和第6节)。 - 开启自动加热模块,并选择针对目标病原体的特定程序。或者,若使用手动加热模块,则将温度设定为37 °C(用于 Salmonella、Cronobacter spp. 和 L. monocytogenes)或55 ± 2 °C(用于 L. monocytogenes 裂解的第二部分——见步骤6.2)以及95 ± 3 °C。
- 确保冷却模块已提前在冰箱中过夜冷藏(O/N);否则,需在2 - 8 °C条件下预冷至少2小时。
- 根据制造商说明,使用基于PCR的检测系统配套的计算机软件创建样品架文件。
- 按照样品架文件,在样品架中对含有裂解试剂的簇管进行标记并排列。
- 启动基于PCR的检测系统仪器。
5. 进行裂解以检测沙门氏菌(Salmonella)和克罗诺杆菌(Cronobacter)
- 向一瓶12 ml的裂解缓冲液中加入150 µl蛋白酶,配制裂解试剂。
- 将200 µl裂解试剂转移至先前已标记的各簇管中。
注意:含有裂解试剂的簇管可在2 - 8 °C下保存最多2周。 - 使用长吸头,将20 µl二次富集样品(见步骤3.2.1和3.2.2)转移至含有200 µl裂解试剂的相应簇管中。每个样品需使用新的吸头。
注意:将一次和二次富集的管子置于冰箱中(Salmonella)或室温下(Cronobacter),用于后续对PCR阳性/阴性样品的确认分析。 - 通过向含有200 µl裂解试剂的簇管中加入20 µl无菌BHI培养基,制备阴性对照。
- 通过向含有200 µl裂解试剂的簇管中加入20 µl已知的Salmonella或Cronobacter菌株的过夜细菌培养物(在BHI中培养),制备阳性对照。
- 盖上簇管盖,并使用封盖工具紧密封口。
- 选择针对目标病原体的特定程序后,将簇管架放入自动加热模块中。或者,将簇管在37 ± 2 °C孵育20分钟,随后在95 ± 3 °C孵育10分钟。最后,将簇管转移至冷却模块(2 - 8 °C)中冷却5分钟。
注意:含有裂解液的簇管可在-20 °C下保存最多2周。
6. 进行裂解以检测单核细胞增生李斯特菌(L. monocytogenes)
- 进行裂解的第一部分,步骤如下:
- 向完全解冻的裂解剂1瓶中加入1.8 ml无菌去离子水。
注意:裂解剂1在使用前应储存于2 - 8 °C。开启并稀释后,可在室温(20 - 30 °C)下保存最多6个月。 - 按4:1的比例混合裂解剂1和裂解剂2(每个样本使用40 µl稀释后的裂解剂1和10 µl裂解剂2)。将50 µl混合裂解剂转移至簇管中。混合液需在4小时内使用。
- 向含有50 µl混合裂解剂的簇管中加入500 µl初级增菌样本(见步骤3.2.3)。
- 通过向50 µl混合裂解剂中加入500 µl无菌24 LEB制备阴性对照。
- 通过向50 µl混合裂解剂中加入500 µl在24 LEB中过夜培养的 L. monocytogenes菌液制备阳性对照。
- 盖紧簇管,轻轻混匀,并置于37 ± 1 °C的加热块中孵育30分钟。
注意:将初级增菌后的管子保存在冰箱中,用于后续对PCR阳性/阴性样本的确认分析。
- 向完全解冻的裂解剂1瓶中加入1.8 ml无菌去离子水。
- 进行裂解的第二部分,步骤如下:
- 按照步骤5.1和5.2的说明配制裂解试剂。
- 使用长吸头将第一部分裂解液20 µl转移至含有200 µl裂解试剂的簇管中。每个样本均需使用新的吸头。
- 盖紧簇管,并使用封盖工具牢固密封。
- 将簇管放入自动加热块中,选择针对L. monocytogenes的特定程序。或者,先在55 ± 2 °C孵育30分钟,随后在95 ± 3 °C孵育10分钟。最后,将簇管转移至冷却块(2 - 8 °C)中冷却5分钟。
注意:含有裂解液的簇管可在-20 °C下保存最多2周。
7. 水化 PCR-Ready 试剂片
- 选择一个预冷(4 °C)的 PCR 冷却块,并将 PCR 管架放置在插入孔上。
- 根据管架文件,在支架中放置含有目标食源性致病菌 PCR 准备就绪型试剂片(每个试剂盒中均包含)的相应 PCR 管。
- 使用去盖工具,小心地从 PCR 管上移除管盖。丢弃管盖,并确认每根 PCR 管内均含有一个试剂片。
- 向特定的 PCR 管中加入 50 µl(针对 Salmonella 和 Cronobacter)或 30 µl(针对 L. monocytogenes)裂解液。使用新的光学管盖,并用封盖工具将管盖牢固地盖紧在 PCR 管上。
注意:在将裂解液加入 PCR 准备就绪型试剂片后,样品必须在 2 - 8 °C 条件下保持冷藏,直至加载至基于 PCR 的检测系统中。可将 PCR 管在 2,500 × g 条件下离心数秒,以确保全部液体位于管底。 - 打开仪器抽屉,将 PCR 管装入 PCR 扩增仪/检测系统仪器中。
- 将装有 PCR 管的管架放入抽屉的孔位中,并检查确认各管已正确就位。
- 关闭抽屉,并按照制造商的操作说明启动程序。
注意:基于 PCR 的仪器已预设了每种食源性致病菌的扩增循环参数。 - 确认 PCR 扩增状态条显示蓝色条带,表明程序的扩增部分正在运行。
注意:对于标准 PCR 检测,整个程序(扩增和检测)的处理时间大约需要 3 - 3.5 小时完成。
8. 审查结果
- 处理完成后,根据基于 PCR 系统仪器的屏幕提示,取出样本并查看结果。
- 如果样本(无论是蝇体表面还是消化道)中存在目标食源性病原体,则反应孔呈红色并显示“加号”(阳性);如果病原体不存在,则反应孔呈绿色并显示“减号”(阴性)。
- 如果反应孔呈黄色且中央有一条红色横条,则表示信号错误。
9. 从PCR阳性结果中分离细菌病原体
- 选择经PCR检测呈阳性的样品的初级增菌液(用于L. monocytogenes)或次级增菌液(用于Salmonella和Cronobacter)。同时,随机选取3 - 5% PCR检测呈阴性的样品,并按以下步骤操作:
- 对于Salmonella:
- 取100 µl次级增菌液,分别加入10 ml Rappaport-Vassiliadis(RV)培养基和1 ml四硫磺酸盐(TT)肉汤中。将试管置于42.5 °C循环水浴中培养22 - 24小时。
- 培养后,用3 mm接种环(约10 µl)分别取RV和TT培养基中的菌液,在亚硫酸铋琼脂(BS琼脂)、木糖赖氨酸脱氧胆酸盐琼脂(XLD琼脂)和赫克托恩肠道琼脂(HE琼脂)平板上划线接种。将平板在35 ± 1 °C培养22 - 24小时。
- 培养后,观察各培养基上是否存在典型的Salmonella菌落。若经过多次转接培养仍无法获得单个分离菌落,则视为样品阴性,并报告为基于PCR检测系统的假阳性结果。
注:有关特定培养基上典型Salmonella菌落的特征,请参见文献22。选取5个疑似典型的Salmonella菌落,在BS、XLD或HE琼脂上进行转接培养,直至获得纯培养的分离/单个菌落。 - 挑取一个纯菌落,使用商业化的生化鉴定试剂(如VITEK 2鉴定卡或API生化鉴定系统),按照制造商说明书进行操作,对疑似Salmonella进行鉴定。
- 对于Cronobacter:
- 用3 mm接种环(约10 µl)取次级增菌液,在两个显色培养基平板上划线接种,例如R&F Enterobacter sakazakii(Cronobacter)显色平板培养基和/或ChromID Sakazakii琼脂。将平板在35 °C培养22 - 24小时。
- 培养后,观察平板上是否存在典型的Cronobacter菌落(蓝黑色至蓝灰色)。选取5个疑似Cronobacter菌落,在R&F Enterobacter sakazakii(Cronobacter)显色平板培养基、ChromID Sakazakii琼脂或TSA上进行转接培养,直至获得纯培养的分离/单个菌落。
注:若经过多次转接培养仍无法获得单个分离菌落,则视为样品阴性,并报告为基于PCR检测系统的假阳性结果。 - 挑取一个纯菌落,使用商业化的生化鉴定试剂(如VITEK 2鉴定卡或API 20E生化鉴定系统),按照制造商说明书进行操作,对疑似Cronobacter进行鉴定。
- 对于L. monocytogenes:
- 用3 mm接种环(约10 µl)取初级增菌液,在两个Brilliance Listeria琼脂(BLA)平板上划线接种。将平板在36 ± 1 °C培养22 - 26小时。
- 培养后,观察平板上是否存在疑似L. monocytogenes(蓝绿色)菌落。选取5个疑似L. monocytogenes菌落,在BLA平板上进行转接培养,直至获得纯培养的分离/单个菌落。对阴性平板在36 ± 1 °C重新培养额外22 - 26小时。
- 挑取一个纯菌落,使用商业化的生化鉴定试剂(如VITEK 2鉴定卡或API Listeria生化鉴定系统),按照制造商说明书进行操作,对疑似L. monocytogenes进行鉴定。
- 从昆虫中分离出的疑似食源性致病菌,应送至参考实验室进一步确认并进行血清分型。
结果
该实验方案最初在一组实验室饲养的家蝇上进行校准,这些家蝇被人工喂食含有连续稀释浓度(102 – 108 CFU/ml)的 C. sakazakii、S. enterica、L. monocytogenes 或 C. jejuni 的液体蝇食(2% 脱脂奶粉)24 小时(每种食源性病原菌 n = 21)。针对每种食源性病原菌,调整了增菌培养基以及培养时间和温度,直至基于 PCR 的检测系统能够从单只喂食实验蝇的体表和消化道中检测到最低浓度的细菌(102 CFU/ml)。根据本方案部分所述的增菌培养基和培养条件,基于 PCR 的系统从所有喂食细菌接种量 >103 CFU/ml 的蝇体表中均检测到了 C. sakazakii、S. enterica 和 L. monocytogenes,检出率为 100%(图 1A)。当喂食浓度为 102 CFU/ml 时,从蝇体表检测到 C. sakazakii、S. enterica 和 L. monocytogenes 的比例分别为 100%、66% 和 33%(图 1A)。基于 PCR 的系统还从所有喂食各浓度细菌的蝇消化道中检测到这三种食源性病原菌,检出率均 ≥33%(图 1B)。然而,仅当实验室饲养的家蝇被喂食含有最高细菌接种量(108 CFU/ml)的液体食物时,才能检测到 C. jejuni。因此,C. jejuni 未被纳入可使用该基于 PCR 的检测系统从单个共栖性污蝇个体中检测的食源性病原菌范围。
通过该标准化方案,我们能够确定从华盛顿特区都市圈十家城市餐馆垃圾箱区域单独无菌捕捉的100只野生蝇类体表和/或消化道中,Cronobacter spp.、S. enterica 和 L. monocytogenes 的检出率5。采集的污蝇代表了至少六个物种,包括 M. domestica(47%)、Lucilia cuprina(33%)、L. sericata(14%)、Cochliomyia macellaria(2%)、Sarcophaga haemorrhoidalis(2%)和 Ophyra leucostoma(1%)。另有一只蝇仅鉴定至科级水平(Anthomyiidae;1%)。表面消毒方案有效避免了蝇体各部位间的交叉污染,因为每只蝇最后一次消毒冲洗用水的TSA平板上均未观察到细菌生长。因此,可明确区分存在于每只蝇体各部位的食源性细菌。
使用该商业化的基于PCR的系统检测单个果蝇体表和消化道样本中的肠炎沙门氏菌(S. enterica)和单核细胞增生性李斯特菌(L. monocytogenes)时,未检出假阳性结果,且在琼脂平板上确认的活病原体结果与PCR阳性结果一致。然而,并非所有PCR阳性样本均能分离到纯培养的克罗诺杆菌属(Cronobacter spp.)菌株。因此,该基于PCR的系统在检测克罗诺杆菌属(Cronobacter spp.)时,在野外捕获的单只果蝇体表(50%;9/18)和消化道(48%;16/33)出现了假阳性结果。将随机选取的PCR阴性样本接种于特异性培养基后,证实其中不存在食源性病原体。因此,使用该商业化的基于PCR的系统检测克罗诺杆菌属(Cronobacter spp.)、肠炎沙门氏菌(S. enterica)或单核细胞增生性李斯特菌(L. monocytogenes)时,所有样本中均未检出假阴性结果。
仅将那些经PCR检测为阳性且病原体被成功分离并确认的样本视为阳性,并纳入统计分析。野生捕获的污蝇消化道中食源性病原体的总体检出率显著高于体表(χ2 = 6.8772,df = 1,p = 0.0087)。采集的野生蝇类中有22%的消化道和8%的体表至少检出三种食源性病原体中的一种(图2)。总体而言,采集蝇类体表或消化道中克罗诺杆菌属(Cronobacter spp.)的检出率(19%)显著高于肠炎沙门氏菌(S. enterica,7%)和单核细胞增生李斯特菌(L.monocytogenes,4%)(Fisher精确检验 p = 0.0165)。然而,在对每种细菌病原体在蝇体不同部位之间的两两比较中,未观察到统计学差异(图3;Fisher精确检验 p = 0.1464、p = 0.1184 和 p = 0.6212,分别对应 Cronobacter spp.、S. enterica 和 L.monocytogenes)。所有蝇类均未同时检出三种被评估的病原体。然而,有三只蝇(两只L. cuprina和一只L. sericata)在其体表或消化道中同时携带沙门氏菌属(Salmonella spp.)和单核细胞增生李斯特菌(L. monocytogenes)。
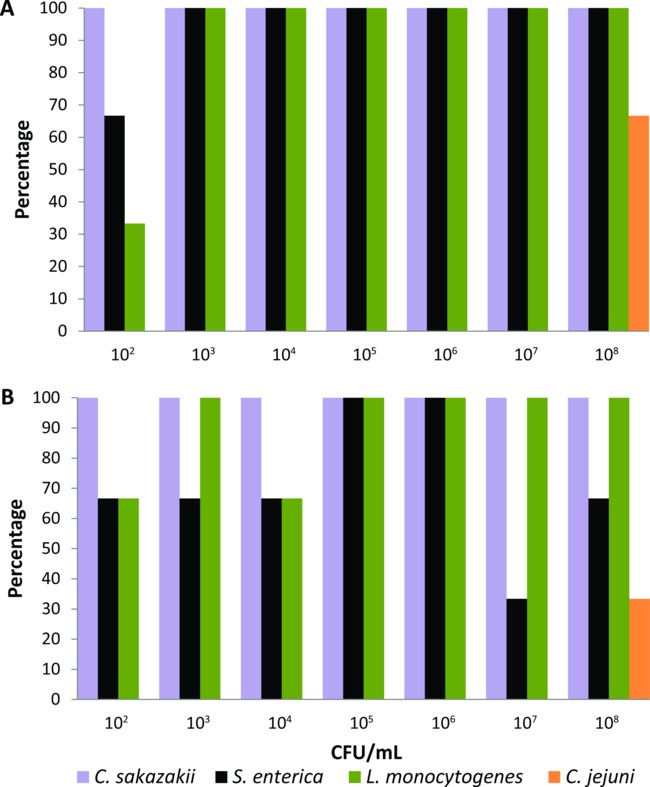
图1. 检测水平 阪崎肠杆菌, 鼠伤寒沙门氏菌,单核细胞增生李斯特菌 和 空肠弯曲菌 来自(A) 体表和 (B实验室饲养的个体家蝇在摄入含有不同细菌接种物的液态食物后,其消化道样本(每种细菌病原体 n = 21,每种细菌浓度 n = 3)。 请点击此处查看此图的放大版本。
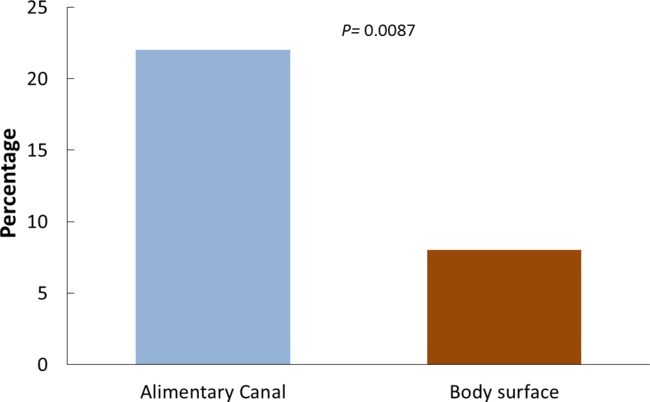
图2. 在单只果蝇的体表和消化道中检测到任一目标食源性病原体的阳性比例。
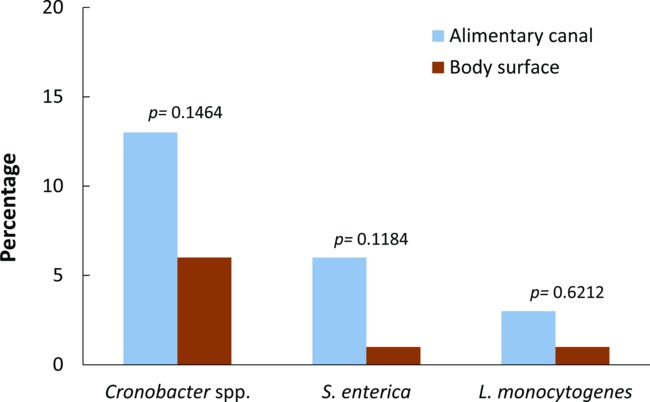
图3. 从共栖性野外捕获蝇类的体表和消化道中分离出的Cronobacter spp.、Salmonella enterica和Listeria monocytogenes的检出率。报告的p值来自每种细菌病原体在体表与消化道之间的成对比较(Fisher精确检验,p值<0.05表示具有统计学显著性)。版权所有 © 美国微生物学会,《应用与环境微生物学杂志》78(22):7891-902, 2012。doi: 10.1128/AEM.02195-12。
讨论
以往研究在检测野生昆虫中的食源性致病菌时采用了多种不同的实验方案,这些方案可能未包含充分的信息,因而难以准确评估单只蝇类出现在食品或食品相关环境中所带来的食源性风险13,15,23,24。本研究证明,采用该标准化方案,可从野外捕获的单只蝇体表及其消化道中检测并分离出克罗诺杆菌属(Cronobacter spp.)、肠沙门氏菌(S. enterica)和单核细胞增生李斯特菌(L. monocytogenes)。由于昆虫可能仅携带少量目标食源性致病菌,同时含有大量其他内源性微生物群落25,26,本方案需对样本进行初步(有时还需二次)增菌培养,使用特定培养基以提高目标食源性致病菌的检出灵敏度。基于PCR的检测系统在样本初始处理后约30小时(用于检测Cronobacter spp. 和 S. enterica)和48小时(用于检测L. monocytogenes)即可获得结果。因此,该方案可靠、快速且具有足够的灵敏度,适用于对单只蝇类进行食源性致病菌的筛查。
确认 PCR 阳性结果并分离出可存活的细菌是许多实验室的标准操作程序的一部分。此外,出于流行病学目的,需要从 PCR 阳性样本中获得纯细菌培养物,以通过生物化学、免疫学或遗传学方法进一步确认食源性病原体并进行血清分型。尽管在检测单只野外捕获的蝇类身体部位中的 S. enterica 和 L. monocytogenes 时未观察到假阳性结果,但使用本方案时,我们发现 Cronobacter spp. 的假阳性率高达 50%。这表明针对 Cronobacter 属的基于 PCR 的检测系统可能与蝇类携带的高度复杂微生物群落中存在的其他 Enterobacteriaceae 发生交叉反应。因此,从 PCR 阳性样本中分离和纯化 Cronobacter 属的纯菌落需要比其他被评估病原体更具选择性的平板培养条件。
本方案主要经过标准化,用于检测单只野外捕获的果蝇中是否存在 阪崎肠杆菌 sp., S. enterica 和 单核细胞增生李斯特菌 使用商业化的基于PCR的检测系统。然而,该方案也可轻松调整,用于检测单只果蝇不同身体部位是否存在其他食源性病原体,例如肠出血性大肠杆菌 E. coli O157:H7(使用任一 E. coli O157:H7 MP 标准检测试剂盒或 E. coli O157:H7 实时检测试剂盒)和志贺毒素产生型 E. coli (STEC)组(使用实时 STEC 套件),获得的灵敏度 >80%(未发表数据)。此外,本方案有望经调整后用于检测其他已知疾病传播媒介昆虫(如蟑螂和蚂蚁)中的食源性病原体,但该领域尚需更多研究。
食源性疾病暴发调查具有高度动态性,包含多个步骤,具体流程可能因所调查的具体情况和当地环境而异12,27。这些调查至关重要,因为它们能够通过预防后续病例为公众健康提供即时保护。此外,此类调查还可揭示食源性微生物传播的新机制,并提出重要问题,从而推动新的研究方向28。为了从单个昆虫中检测食源性病原体,必须采用标准化、快速且灵敏的检测技术和方法。本标准化方案为无菌采集可作为食源性细菌性病原体传播媒介的昆虫(例如蝇类)提供了可能,可将其纳入环境采样计划中。由此获得的流行病学信息将有助于准确描绘昆虫传播食源性病原体的机制(例如,暴露时间长短:仅是蝇类着陆,还是蝇类着陆后排泄和反流)。
最后,尽管此处描述的商用基于PCR的检测系统在使用上具有实用性,且可简化属水平扩增子的PCR扩增与可视化,但它绝不是唯一合适的系统。富集样品所得的裂解液也可用于通过公开可用的种特异性引物对来筛查食源性病原体。然而,在使用这些引物对之前,应先验证其检测灵敏度。
披露
使用特定仪器并不表示获得美国食品药品监督管理局的批准。作者声明,就本文所讨论的内容而言,与任何金融机构均不存在利益冲突。
致谢
感谢美国食品药品监督管理局(FDA)食品安全与应用营养中心(CFSAN)的 Ben D. Tall、Yi Chen 和 Thomas Hammak 对稿件进行的审阅。作者还感谢马里兰大学联合食品安全与应用营养研究所(JIFSAN)研究实习项目成员 Hannah Lee 提供的实验协助,以及 FDA CFSAN 的 David Weingaertner 为视频中所示示意图概览所作的制图工作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 硫化铋琼脂(BS琼脂) | Fisher Scientific | R452402 | *多个供应商。 |
| 脑心浸液肉汤(BHI肉汤) | Becton, Dickson and Company | 299070 | *预热至37°C。多个供应商。 |
| 显色李斯特菌琼脂(BLA) | Fisher Scientific | CM1080B | *多个供应商。 |
| 缓冲蛋白胨水(BPW) | Becton, Dickson and Company | 212367 | *根据需要预热至37°C或42°C。多个供应商。 |
| 显色克罗诺杆菌琼脂(Druggan-Forsythe-Iversen配方/DFI) | Fisher Scientific | CM1055B | *多个供应商。 |
| chromID阪崎克罗诺杆菌琼脂 | bioMérieux | 43741 | *电话咨询:800.682.2666 |
| R & F 阪崎肠杆菌(克罗诺杆菌)显色平板培养基 | R & F Laboratories | Various | *电话咨询:+1.630.969.530 |
| R & F 阪崎肠杆菌增菌肉汤及补充剂 | R & F Laboratories | Various | *电话咨询:+1.630.969.530 |
| 赫克托恩肠道琼脂(HE琼脂) | Fisher Scientific | OXCM0419B | *多个供应商。 |
| 24小时李斯特菌增菌肉汤(24LEB) | Oxoid | CM1107 | *室温新鲜配制。多个供应商。 |
| 李斯特菌选择性增菌补充剂 | Oxoid | SR0243 | *多个供应商。 |
| 新生霉素 | Fisher Scientific | OXSR0181E | *多个供应商。储存于2-8 °C |
| 盐酸万古霉素水合物 | Sigma Aldrich | 861987 | 储存于2-8 °C |
| 头孢磺啶钠盐水合物 | Sigma Aldrich | C8145 | 储存于2-8 °C |
| Rappaport-Vassiliadis(RV)培养基 | Fisher Scientific | CM0669B | *多个供应商。 |
| 四硫磺酸盐(TT)肉汤 | Becton, Dickson and Company | 249120 | *多个供应商。 |
| 胰蛋白胨大豆琼脂(TSA) | Becton, Dickson and Company | 236930 | *多个供应商。 |
| 木糖赖氨酸脱氧胆酸盐(XLD)琼脂 | Becton, Dickson and Company | 221284 | *多个供应商。 |
| API生化鉴定系统 | bioMérieux | Various | *电话咨询:+1.800.682.2666 |
| VITEK 2:产品安全 | bioMérieux | Various | *电话咨询:+1.800.682.2667 |
| BAX System Q7 | DuPont | ||
| BAX E. sakazakii 标准检测试剂盒 | DuPont | D11801836 | |
| BAX L. monocytogenes 24E 检测试剂盒 | DuPont | D13608125 | |
| BAX 沙门氏菌2标准检测试剂盒 | DuPont | D14368501 | |
| 封盖工具 | DuPont | D11677028 | |
| 开盖工具 | DuPont | D11134095 | |
| PCR管架/管座 | DuPont | D12701663 | |
| 轻质宽头镊子 | BioQuip | 4750 | 使用前灭菌。多个供应商。 |
| 细尖直头镊子 | BioQuip | 4731 | 使用前灭菌。多个供应商。 |
| 氧化锆/二氧化硅珠,0.5 mm | Bio Spec Products, Inc. | 11079105z | 多个供应商。 |
| 培养皿 - 60×15 mm | Fisher Scientific | 08-772B | 多个供应商。 |
| 一次性接种环,10µL | Fisher Scientific | 22-363-606 | 多个供应商。 |
| L型细胞涂布棒 | Fisher Scientific | 14-665-230 | 多个供应商。 |
| 微量离心管,2 ml | Fisher Scientific | Various | 必要时使用前灭菌。建议使用密封盖。多个供应商。 |
| 簇状管 | Fisher Scientific | 05-500-13 | |
| 簇状管盖 | Fisher Scientific | 05-500-23 | |
| 次氯酸钠(液体氯漂白剂) | *用水稀释至0.05%。多个供应商。 | ||
| 无菌去离子水 | 多个供应商。 | ||
| 无菌蒸馏水 | 多个供应商。 | ||
| 190 proof乙醇 | *必要时用水稀释至70%。多个供应商。 | ||
| Genie细胞破碎仪,120V - 适用于1.5 ml和2.0 ml微量管 | Scientific Industries, Inc. | SI-D238 | 多个供应商。 |
| 加热块 | 多个供应商。 | ||
| 冷却块 | 多个供应商。 | ||
| 循环水浴 | 多个供应商。 | ||
| 体视显微镜 | 多个供应商。 | ||
| 离心机 | 多个供应商。 | ||
| 培养箱 | 多个供应商。 |
参考文献
- Voeller, J. G. Wiley Handbook of Science and Technology for Homeland Security. , Wiley Inc. 1-16 (2008).
- Olsen, A. R., Gecan, J. S., Ziobro, G. C., Bryce, J. R. Regulatory action criteria for filth and other extraneous materials V. Strategy for evaluating hazardous and nonhazardous filth. Regulatory Toxicology and Pharmacology. 33 (3), 363-392 (2001).
- Hald, B., Skovgård, H., Pedersen, K., Bunkenborg, H. Influxed insects as vectors for Campylobacter jejuni and Campylobacter coli in Danish broiler houses. Poultry Science. 87 (7), 1428-1434 (2008).
- Kobayashi, M., et al. Houseflies: Not simple mechanical vectors of enterohemorrhagic Escherichia coli O157:H7. American Journal of Tropical Medicine and Hygiene. 61 (4), 625-629 (1999).
- Pava-Ripoll, M., Pearson, R. E. G., Miller, A. K., Ziobro, G. C. Prevalence and relative risk of Cronobacter spp., Salmonella spp., and Listeria monocytogenes associated with the body surfaces and guts of individual filth flies. Applied and Environmental Microbiology. 78 (22), 7891-7902 (2012).
- Hewitt, C. G. Houseflies and how they spread disease. , Cambridge University Press. (1912).
- Rochon, K., Lysyk, T. J., Selinger, L. B. Retention of Escherichia coli by house fly and stable fly (Diptera:Muscidae) during pupal metamorphosis and eclosion. Journal of Medical Entomology. 42 (3), 397-403 (2005).
- Greenberg, B., Kowalski, J. A., Klowden, M. J. Factors affecting the transmission of Salmonella by flies: natural resistance to colonization and bacterial interference. Infection and Immunity. 2 (6), 800-809 (1970).
- Mramba, F., Broce, A. B., Zurek, L. Vector competence of stable flies, Stomoxys calcitrans L. (Diptera:Muscidae), for Enterobacter sakazakii. Journal of Vector Ecology. 32 (1), 134-139 (2007).
- Ekdahl, K., Normann, B., Andersson, Y. Could flies explain the elusive epidemiology of campylobacteriosis. Bmc Infectious Diseases. 5 (11), 11(2005).
- Nayduch, D., Noblet, G. P., Stutzenberger, F. J. Vector potential of houseflies for the bacterium Aeromonas caviae. Medical and Veterinary Entomology. 16 (2), 193-198 (2002).
- Multistate and Nationwide Foodborne Outbreak Investigations: A Step-by-Step Guide. , CDC. Atlanta, GA. Available from: http://www.cdc.gov/foodsafety/outbreaks/investigating-outbreaks/investigations/index.html (2013).
- Sievert, K., Messler, S., Klimpel, S., Feffer, K. Comprehensive study on the occurrence and distribution of pathogenic microorganisms carried by synanthropic flies caught at different rural locations in Germany. Journal of Medical Entomology. 46 (5), 1164-1166 (2009).
- Hernández-Escareño, J. J., et al. Presence of Enterobacteriaceae, Listeria spp., Vibrio spp. and Staphylococcus spp. in house fly (Musca domestica L.), collected and macerated from different sites in contact with a few animals species. Revista Cientifica-Facultad De Ciencias Veterinarias. 22 (2), 128-134 (2012).
- Mian, L. S., Maag, H., Tacal, J. V. Isolation of Salmonella from muscoid flies at commercial animal establishments in San Bernardino county, California. Journal of Vector Ecology. 27 (1), 82-85 (2002).
- Olsen, A. R., Hammack, T. S. Isolation of Salmonella spp. from the housefly, Musca domestica L., and the dump fly, Hydrotaea aenescens (Wiedemann) (Diptera:Muscidae), at caged-layer houses. Journal of Food Protection. 63 (7), 958-960 (2000).
- Holt, P. S., Geden, C. J., Moore, R. W., Gast, R. K. Isolation of Salmonella enterica serovar Enteritidis from houseflies (Musca domestica) found in rooms containing Salmonella serovar Enteritidis-challenged hens. Applied and Environmental Microbiology. 73 (19), 6030-6035 (2007).
- Mramba, F., Broce, A., Zurek, L. Isolation of Enterobacter sakazakii from stable flies, Stomoxys calcitrans L. (Diptera:Muscidae). Journal of Food Protection. 69 (3), 671-673 (2006).
- Koyuncu, S., Andersson, M. G., Haggblom, P. Accuracy and Sensitivity of Commercial PCR-Based Methods for Detection of Salmonella enterica in Feed. Applied and Environmental Microbiology. 76 (9), 2815-2822 (2010).
- Gagné, R. Insect and mite pests in food, an illustrated. 1, U.S. Department of Agriculture and U.S. Department of Health and Human Service. 269-296 (1991).
- Greenberg, B. Flies and disease, Vol I. Ecology, classification and biotic associations. , Princeton University Press. (1971).
- Wallace, H. A., Jacobson, A., Hammack, T. S. Chapter 5 Salmonella. Bacteriological Analytical Manual. , Available from: http://www.fda.gov/downloads/Food/FoodScienceResearch/UCM244774.pdf (2007).
- Barro, N., Aly, S., Tidiane, O. C. A., Sababenedjo, T. A. Carriage of bacteria by proboscises, legs, and feces of two species of flies in street food vending sites in Ouagadougou, Burkina Faso. Journal of Food Protection. 69 (8), 2007-2010 (2006).
- Ugbogu, O. C., Nwachukwu, N. C., Ogbuagu, U. N. Isolation of Salmonella and Shigella species from house flies (Musca domestica L.) in Uturu, Nigeria. African Journal of Biotechnology. 5 (11), 1090-1091 (2006).
- Brownlie, J. C., Johnson, K. N. Symbiont-mediated protection in insect hosts. Trends in Microbiology. 17 (8), 348-354 (2009).
- Feldhaar, H. Bacterial symbionts as mediators of ecologically important traits of insect hosts. Ecological Entomology. 36 (5), 533-543 (2011).
- Foodborne disease outbreaks: Guidelines for investigation and control. , World Health Organization. Available from: http://www.who.int/foodsafety/publications/foodborne_disease/outbreak_guidelines.pdf (2008).
- Wright, A. P., Gould, L. H., Mahon, B., Sotir, M. J., Tauxe, R. V. Overview of the Impact of Epidemic-Assistance Investigations of Foodborne and Other Enteric Disease Outbreaks, 1946-2005. American Journal of Epidemiology. 174, S23-S35 (2011).
重印与许可
