Coxiella burnetii 是一种专性胞内寄生的革兰氏阴性细菌,可引起人畜共患的Q热疾病。本文描述了构建Coxiella荧光转座子突变株的方法,以及对所获得的内化、复制和细胞毒性表型进行自动化鉴定与分析的技术流程。
本文内容
摘要
摘要
细菌病原体对宿主细胞的侵袭与定植依赖于大量被称为毒力因子的原核蛋白,这些蛋白能够破坏并操控宿主的关键功能。因此,研究宿主与病原体之间的相互作用对于理解细菌感染机制以及开发应对传染病的替代策略极为重要。然而,这一研究方向需要建立新的高通量检测方法,以实现对细菌毒力决定因子进行无偏倚、自动化的鉴定与表征。本文中,我们描述了一种通过转座子诱变构建GFP标记突变体文库的方法,并建立了高内涵筛选技术,用于同时鉴定多个与转座子相关的表型。我们的研究模型是胞内细菌病原体Coxiella burnetii,该病原体是人畜共患病Q热的致病因子,常与严重疫情暴发相关,带来显著的公共卫生和经济负担。由于该病原体严格胞内寄生的特性,直到最近,仍严重阻碍了参与宿主-病原体相互作用的细菌因子的鉴定,这也使得Coxiella成为实施高通量/高内涵研究策略的理想模型。
引言
新出现并呈地方性流行的细菌Coxiella burnetii是Q热大规模暴发的致病原因,Q热是一种致人衰弱的流感样人畜共患病,对健康和经济造成严重危害1。Coxiella的主要储存宿主是家畜和农场动物,据估计美国超过90%的奶牛携带C. burnetii2。人类为偶然宿主,通过吸入受污染的气溶胶而感染。人类Q热表现为急性或慢性疾病,可能引发致命并发症,死亡率高达65%1,3。由于其感染剂量仅为1至10个微生物体,Coxiella是目前已知传染性最强的病原体,并曾被研究作为潜在的生物武器4。近期荷兰(2007–2010年)Q热的暴发性流行,病例数从每年182例激增至2,000多例,充分体现了该病原体的高度致病性5。
极高的效率 Coxiella 感染可能与其对环境胁迫的抗性以及对宿主细胞的独特适应性有关。事实上, Coxiella 以代谢非活性的小细胞变体(SCV)形式存在于环境中,对多种恶劣条件(干燥、温度)具有显著抗性 等等。). SCVs 通过 α 被吞噬细胞摄取Vβ3 整合素6 而非吞噬细胞的侵袭则由 Coxiella 黏附/侵袭 OmpA7 以及一个尚未明确的受体。摄取后 Coxiella 位于与早期内体标志物Rab5和EEA1共定位的紧密包裹的液泡中8细菌通过转化为代谢活跃的大细胞变体(LCVs)并激活Dot/Icm IV型分泌系统(T4SS)来响应内体的酸化9,与之高度同源 嗜肺军团菌10Dot/Icm效应因子的分泌使得 Coxiella 形成一个较大的、LAMP1阳性酸性区室,其中含有活性的溶酶体酶,可支持细菌增殖并有效保护感染细胞免于凋亡11因此,细胞内周期的 Coxiella 由 Dot/Icm 介导的细菌效应蛋白的转位所调控12然而,参与宿主细胞侵袭、细菌复制及感染扩散的微生物因子在很大程度上仍不清楚。
结合转座子突变和基于荧光的检测方法,我们正在开发一种无偏倚的方法,用于同时鉴定参与Coxiella感染主要步骤的细菌因子:1)在宿主细胞内的内化,2)胞内复制,3)细胞间传播,以及4)持续存在。迄今为止,我们已筛选了500个Coxiella编码序列中的1000多个突变,这些结果为我们深入理解调控Coxiella致病性的宿主-病原体相互作用提供了前所未有的见解7。值得注意的是,该方法也可应用于其他在细胞生物学特性上与Coxiella相似的胞内病原体的研究。
方案
1. 产生带有GFP标签的Coxiella转座子突变体文库
在符合当地规定的生物安全二级(BSL-2)条件下,于微生物安全柜(MSC)中操作 Coxiella burnetii RSA439 NMII。若所用细菌模型允许,可重复步骤 1.4.1 至 1.4.4,以提高获得克隆突变株的概率。典型的突变体文库所包含的突变体数量(至少)应等于该生物基因组中注释的编码序列数目的三倍。
- 电转感受态 Coxiella RSA439 NMII 的制备:
- 配制 1x ACCM-213:13.4 mM 柠檬酸、16.1 mM 柠檬酸钠、3.67 mM 磷酸钾、1 mM 氯化镁、0.02 mM 氯化钙、0.01 mM 硫酸亚铁、125.4 mM 氯化钠、1.5 mM L-半胱氨酸、0.1 g/L Bacto Neopeptone、2.5 g/L 酪蛋白氨基酸、1 g/L 甲基-β-环糊精、125 ml/L RPMI。调节 pH 至 4.75,并过滤除菌(切勿高压灭菌)。注意:液体 ACCM-2 在 4 °C 下可稳定保存约 1 个月。
- 从 -80 °C 保存的菌种中取已按步骤 1.5 前期制备并定量的 Coxiella RSA439 NMII 菌液(2 × 10⁶ 基因组当量 (GE)/ml),接种至 100 ml ACCM-2 培养基中,并将菌悬液分装至带透气盖的 75 cm2 细胞培养瓶中(每瓶 10–15 ml)。在 37 °C、5% CO2 和 2.5% O2 的湿润环境中培养 7 天。
- 将培养后的菌悬液收集至 50 ml 离心管中,在 4 °C 下以 3,900 × g 离心 1 小时。
- 弃去上清液,将沉淀重悬于 30 ml 10% 甘油中,在 4 °C 下以 3,900 × g 再次离心 1 小时。
- 将沉淀重悬于适量体积的 10% 甘油中(通常为 2 ml),分装为每管 50 µl 至 500 µl 离心管中。整个操作过程中保持菌体悬液置于冰上。注意:此时细菌已具备电转能力,每份分装物可用于一次电穿孔实验。菌悬液可在 -80 °C 保存 6 个月,或直接用于质粒 DNA 的电穿孔转化。
- 将转座子及转座酶编码质粒电转化至感受态 Coxiella 中:
注意:本实验方案中,转座元件和转座酶分别由两个不同的质粒编码(pITR-CAT-GFP 和 pUC19-Himar1C9)7。这两个质粒均缺乏 Coxiella 特异性的复制起点,因此在电转化进入 Coxiella 后为自杀型质粒,从而确保转座子插入的稳定性。转座元件包含一个由 Coxiella 启动子 p1169 调控的氯霉素抗性表达盒,用于筛选;以及一个由 Coxiella 启动子 p311 调控的 gfp 基因,用于以 GFP 标记所获得的突变株。- 将 0.1 cm 电穿孔杯预先在冰上冷却 10 分钟。将 50 µl 电转感受态 Coxiella 与 10 µg 转座子质粒和 10 µg 转座酶质粒7 混合。确保质粒浓度高于 500 µg/ml,以尽量减少甘油的稀释。
- 采用以下参数进行电穿孔:18 kV、500 Ω、25 µF。确保所得时间常数介于 9 至 13 毫秒之间。
- 立即加入 950 µl RPMI,重悬电穿孔后的细菌,转移至螺旋盖离心管中,并在室温下保存。
- 取 200 µl 电穿孔后的菌液加入含 1% 热灭活胎牛血清 (FBS) 的 3 ml ACCM-2 培养基中,接种于 6 孔板中。向剩余菌液中加入 88 µl DMSO(使终浓度为 10%),并于 -80 °C 保存。
- 转座子突变株的筛选:
- 将上述步骤(1.2.4)接种的 6 孔板置于 37 °C、5% CO2 和 2.5% O2 的湿润环境中过夜培养。加入适当的抗生素(375 µg/ml 卡那霉素或 3 µg/ml 氯霉素),并在上述条件下继续培养细菌 3 天。
- 单个突变株的分离:
- Coxiella 转座子突变株的固体 ACCM-2 平板制备与涂布
注意:以下说明适用于单个培养皿;需测试多个细菌培养物稀释度,以确定用于克隆分离的最佳接种体积。- 在微波炉中加热 10.5 ml 0.5% 琼脂糖,随后置于 55 °C 水浴中冷却。将 11.25 ml 2x ACCM-2(pH 4.75)在 37 °C 预热。
- 制备底层琼脂糖:
- 将 10 ml 熔化的 0.5% 琼脂糖与 10 ml 2x ACCM-2 混合,并加入适当的抗生素(375 µg/ml 卡那霉素或 3 µg/ml 氯霉素)。
- 立即倒入培养皿中。打开皿盖,让培养基冷却 30 分钟,并在空气中干燥 20 分钟。
- 制备顶层琼脂糖:
- 在 5 ml 聚苯乙烯管中,将 1.25 ml 2x ACCM-2 与 0.75 ml 水混合,加入适当的抗生素(375 µg/ml 卡那霉素或 3 µg/ml 氯霉素),并在 37 °C 孵育。
- 加入细菌培养物(通常为 1 至 100 µl),涡旋 5 秒。
- 加入 0.5 ml 熔化的琼脂糖,混匀后立即铺于底层琼脂糖上。
- 冷却 20 分钟,盖上皿盖,并在 4 °C 孵育 20 分钟以促进琼脂糖凝固。
- 在生物安全柜中打开皿盖,空气中干燥 20 分钟。将平板置于 37 °C、5% CO2 和 2.5% O2 的湿润环境中培养 6 至 7 天。
- 向剩余的细菌培养物中加入 DMSO,使终浓度达到 10%,并在 -80 °C 保存。
- 按如下方式确定最佳稀释度:确保菌落直径为 0.5 至 1 mm,且彼此分离良好,以避免交叉污染。解冻步骤 1.4.2 中保存的剩余菌液,并按照 1.4.1.2 和 1.4.1.3 所述方法,在 ACCM-2 琼脂平板上以适当稀释度涂布。按照 1.4.1.3.5 所述条件培养 6 至 7 天。
- 待菌落可见后,用剪去尖端的 1 ml 吸头挑取含有单菌落的琼脂块,将菌落转移至含适当抗生素(375 µg/ml 卡那霉素或 3 µg/ml 氯霉素)的 1.5 ml ACCM-2 培养基中,使用 24 孔板进行重悬。在 1.3.1 所述条件下扩增单个菌落 6 天。在培养第 3 天,通过吹打使各培养物中的细菌团块分散。
- 将每个突变株悬液分装至 2D 条形码螺旋盖管中,置于 96 孔板内,加入 10% DMSO 后于 -80 °C 保存。
- Coxiella 转座子突变株的固体 ACCM-2 平板制备与涂布
- 细菌浓度评估:
注意:以下方案可用于获得在无细胞培养基中生长的细菌突变株的生长曲线(见 1.4.4)。- 标准曲线制备:
- 用 1x Tris-EDTA (TE) 缓冲液配制 2 µg/ml 的双链 DNA(通常为已知大小和浓度的随机质粒)储备液。 将储备液进行 10 倍系列稀释,获得浓度范围为 2 µg/ml 至 2 ng/ml 的标准品。将每种浓度的样品各 50 µl 加入黑色壁底 96 孔微孔板的单个孔中(参见 材料表)。
- 将双链 DNA 定量试剂用 1x TE 缓冲液按 1:200 稀释,向 96 孔板中每个样品加入 55 µl 稀释后的试剂。使用板式振荡器充分混匀,并在室温避光条件下孵育 2 至 5 分钟。
- 使用荧光酶标仪,配合标准荧光素滤光片(激发波长约 480 nm,发射波长约 520 nm)测定各样品的荧光强度。
- 以质粒浓度范围为横坐标,荧光强度读数为纵坐标绘制标准曲线。
- 细菌悬液定量:
- 在黑色壁底 96 孔微孔板(参见 材料表)的每个孔中加入 5 µl 10% Triton X-100。向每孔加入 50 µl 细菌悬液,在板式振荡器上室温孵育 10 分钟。
- 将双链 DNA 定量试剂用 1x TE 缓冲液按 1:200 稀释,向 96 孔板中每个样品加入 55 µl 稀释后的试剂。使用板式振荡器充分混匀,并在室温避光条件下孵育 2 至 5 分钟。
- 使用荧光酶标仪,配合标准荧光素滤光片(激发波长约 480 nm,发射波长约 520 nm)测定各样品的荧光强度。
- 将样品的荧光读数代入步骤 1.5.1.4 所得图表中,计算细菌 DNA 浓度。将 DNA 浓度除以 Coxiella 基因组质量(2.2 fg),得到细菌浓度。结果以基因组当量/ml 表示。
- 剔除在 ACCM-2 培养基中表现出显著生长缺陷的突变株。
- 标准曲线制备:
2. 单引物菌落PCR、测序与注释
注意:以下方案适用于96个样品的DNA扩增,建议在后续步骤中使用多通道移液器。使用磁珠进行PCR产物的柱纯化以及利用转座子特异性引物(2.3)进行DNA测序,已外包给外部公司完成。
- 设计扩增引物,使其在反向串联重复序列(ITR)上游100至200个碱基对之间发生杂交,以获得覆盖Coxiella基因组中转座子插入位点的PCR产物。准备3 ml PCR反应混合液(1×高保真缓冲液,200 µM dNTPs,1 µM扩增引物,20 U/ml高保真DNA聚合酶),并将29 µl分装至置于冰上的96孔PCR板的每个孔中。取1 µl处于稳定期的ACCM-2培养物中的各突变株,转移至PCR混合液中。
- 进行PCR扩增,程序如下:初始变性(98 °C,1 min);20个高严谨性循环(98 °C,10 sec;50 °C,30 sec;72 °C,90 sec);30个低严谨性循环(98 °C,10 sec;30 °C,30 sec;72 °C,90 sec);再进行30个高严谨性循环(98 °C,10 sec;50 °C,30 sec;72 °C,90 sec);最后在72 °C延伸7 min。
- 使用磁珠纯化PCR产物,并用转座子特异性引物进行DNA测序。设计转座子特异性引物时,其预测熔解温度应在50°C至75°C之间,GC含量在40%至60%之间,长度为18至25个核苷酸,退火位点应位于扩增引物杂交位点的下游,且距离转座子ITR的第一个碱基对至少上游100个碱基对。
- 使用序列分析软件加载Coxiella burnetii 493 NMI的完整注释基因组。利用“比对至参考序列”功能加载并比对(blastn)测序结果,确定转座位点。剔除测序结果不匹配和/或出现双重读段的突变株。为监测突变文库的饱和度,记录相同位点发生多个转座子插入的情况。
3. 使用Coxiella突变株感染真核细胞及胞内生长的监测
注意:建议使用多通道移液器进行以下步骤。感染实验在无菌的96孔黑色壁透明平底微孔板中以三个复孔进行。表达GFP的野生型Coxiella burnetii14由Robert Heinzen博士提供。
- 在不含酚红并添加10%胎牛血清(FBS)且不含抗生素的RPMI培养基(完全RPMI培养基)中培养Vero细胞。
- 感染前一天,用10 ml PBS洗涤来自融合或亚融合状态细胞培养瓶的Vero细胞。
- 向细胞培养瓶中加入1 ml胰蛋白酶EDTA溶液,于37 °C、5% CO2的湿化环境中孵育3至5分钟,使Vero细胞脱落。
- 将细胞重悬于10 ml完全RPMI培养基中,计数细胞并制备浓度为每毫升105个细胞的细胞悬液。
- 向每孔加入100 µl细胞悬液至平底透明的黑色96孔板中。
- 在室温下以400 × g离心5分钟,以促进细胞贴附于孔底,随后在37 °C、5% CO2的湿化环境中过夜孵育。
- 在室温下解冻含有Coxiella突变株的96孔板,并将150 µl细菌悬液加入深孔96孔板中的300 µl不含酚红和FBS的RPMI培养基中进行稀释。
- 移除含有Vero细胞的微孔板中的培养基,每孔加入100 µl稀释后的Coxiella突变株(感染复数MOI为100)。以A1孔作为阴性对照(未感染细胞),A2和A3孔作为阳性对照(分别以MOI为100和200感染表达GFP14的野生型Coxiella的细胞)。
- 使用防气溶胶的离心板架,在室温下以400 × g离心10分钟。
- 在37 °C、5% CO2的湿化环境中孵育2小时,然后将含细菌的培养基更换为每孔100 µl新鲜的完全RPMI培养基。
- 使用荧光酶标仪及标准荧光素滤光片(激发波长约480 nm,发射波长约520 nm)每天检测一次GFP荧光强度,持续7天。为避免培养基中冷凝和信号散射造成的干扰,应采用酶标仪的底部激发和底部检测模式进行读数。
4. 自动化图像采集样品的制备
注意:本方案适用于一个96孔板,若需扩大实验规模,请相应调整试剂体积。步骤4.2可使用洗板机进行操作。
- 第7天th 感染后第几天,从孔板中移除培养基,每孔加入50 µl含适当稀释度(通常为1:1,000,需根据所用细胞系优化)的细胞通透性荧光染料的新鲜完全培养基。将细胞在37 °C、5% CO₂的湿润环境中孵育30–60分钟2.
- 加入 50 µl/孔含 4% 多聚甲醛(PFA)的 PBS 溶液,室温孵育 30 分钟,随后吸除含 PFA 的溶液,用 PBS 洗涤 3 次。
- 移除 PBS,每孔加入 50 µl 封闭液(0.5% 牛血清白蛋白,50 mM NH4含0.05%皂苷的PBS(pH 7.4)中孵育,室温孵育30分钟。
- 用含有皂苷(同上)并按1:500稀释比例加入抗LAMP1抗体的新鲜封闭液替换原有封闭液,每孔加入40 µl。室温孵育30分钟。
- 移除封闭液,用 100 µl/孔的 PBS 洗涤 96 孔板 5 次。
- 每孔加入40 µl封闭液,其中添加皂苷(同上)、适宜的荧光标记二抗(1:1,000稀释)以显色第4.4步中使用的抗LAMP1抗体,以及5 µg/ml的Hoechst 33258。室温孵育30分钟。
- 移除封闭液,用 PBS 每孔 100 µl 洗涤 96 孔板 5 次。最后一次洗涤后,将 PBS 保留在 96 孔板中,避免固定后的细胞干燥。
- 立即成像,或在4 °C避光保存以供后续分析。
5. 图像采集
- 使用配备20倍物镜的落射荧光自动显微镜,在GFP(488 nm,细菌)、Hoechst 33258(350 nm,宿主细胞核)、红色(~555 nm,细胞膜标记物)和远红(~615 nm,LAMP1)通道中采集图像。每孔采集21个独立视野,以确保每个样本至少成像5,000个细胞。以宿主细胞核通道作为参考进行自动对焦。当研究感染宿主细胞比例较低的细菌病原体时,用户可调整每孔成像的独立视野数量,以获得至少500个可供分析的感染细胞。
6. 图像处理
注意:以下步骤专用于图像分析软件 CellProfiler。在所有情况下,必须通过实验确定最佳的分割算法,并应使用适当的功能剔除接触图像边界的对象。
- 在CellProfiler中加载所有图像。
- 使用“ImageMath”模块从Hoechst通道中减去GFP通道,以避免检测到 Coxiella 菌落(亦通过Hoechst标记)作为后续步骤中的宿主细胞核。
- 使用“IdentifyPrimaryObjects”模块对步骤6.2所得图像中的宿主细胞核进行分割。将分割得到的对象命名为“Nuclei”。
- 使用“IdentifySecondaryObjects”模块,以6.3步骤中检测到的细胞核作为种子,从555 nm图像中分割出宿主细胞。将分割得到的对象命名为“Cells”。
- (可选)使用“IdentifyTertiaryObjects”模块,将步骤6.3中识别的细胞核从步骤6.4中识别的细胞中扣除,将分割出的结构命名为“Cytoplasm”。
- 在615 nm图像上使用“EnhanceOrSuppressFeatures”模块去除背景,以利于后续对LAMP1阳性区室的识别。
- 使用“IdentifyPrimaryObjects”模块处理步骤6.6中获得的图像,以识别LAMP1阳性区室。将分割出的物体命名为“Lysosomes”。
- 使用“IdentifyPrimaryObjects”模块对488 nm图像进行初级对象识别 Coxiella 菌落。将分割后的对象命名为“菌落”。
- 使用“IdentifySecondaryObjects”模块对615 nm图像进行分析,以第6.8步检测到的Coxiella菌落作为种子,识别含Coxiella的空泡。将分割得到的物体命名为“CCVs”。
- 使用“MaskObjects”模块选择在细胞上检测到的CCVs(由于与图像边界接触的细胞已被剔除,部分CCVs可能被检测为位于细胞“外部”)。将生成的对象命名为“Filtered CCVs”。
- 使用“MaskObjects”模块选择在细胞上检测到的菌落(由于与图像边界接触的细胞已被剔除,部分菌落可能被检测为位于细胞“外部”)。将生成的对象命名为“Filtered Colonies”。
- 使用“MaskObjects”模块将溶酶体与细胞关联。将生成的对象命名为“Filtered Lysosomes”。
- 使用“MaskObjects”模块选择包含细胞的区域 Coxiella 菌落。将所得对象命名为“Infected Cells”。
- 使用“关联对象”模块将“过滤后的CCVs”对象设置为“细胞”对象的子对象。这将允许统计每个细胞中的CCVs数量。
- 使用“关联对象”模块将“过滤后的菌落”对象设置为“细胞”对象的子对象。这将实现每个细胞的菌落数量统计。
- 使用“关联对象”模块将“过滤后的溶酶体”对象设置为“细胞”对象的子对象。这将实现对每个细胞中溶酶体数量的统计。
- 使用“MeasureObjectSizeShape”模块对细胞核、细胞、过滤后的CCVs、过滤后的菌落以及过滤后的溶酶体进行形态学分析
- 使用“MeasureObjectIntensity”模块来量化与过滤后的CCVs相关的GFP荧光,并评估其效率 Coxiella 在CCVs内的复制。
- 使用“OverlayOutlines”和“SaveImages”模块将分割结果与原始图像叠加,以进行质量控制。
- 使用“ExportToSpreadsheet”模块导出全部或部分图像分析结果。
- (可选)使用“ExportToDatabase”模块,通过CellProfiler Analyst软件分析结果。
7. 数据分析
- 针对获得的每个参数,识别并剔除异常值(由图像分割错误导致),然后计算每个突变体的平均值。
- 使用Z分数识别显著性表型。将Z分数 > -2 的表型视为无显著性,Z分数介于-2与-4之间的表型视为轻度,Z分数 ≤ -4 的表型视为强表型。
- 根据实验需求绘制参数组合图。
结果
在获得转座子突变株后,单引物菌落PCR是一种可靠且高通量的方法,可用于鉴定每个突变株中转座子插入位点。该方法源于典型的巢式PCR流程,但在此方法中,单个引物根据退火温度的严格程度,特异性或非特异性地与模板DNA结合(图1A)。典型的PCR产物包含多个DNA片段,其中大多数为特异性扩增产物(图1B)。在测序步骤中,使用一种不同的测序引物,该引物结合于转座子ITR的上游区域,且位于扩增引物识别序列的下游,从而确保测序的特异性(图1C)。通过自动化软件将获得的序列与Coxiella基因组进行比对,可确定转座子插入的精确位置(图1C)。随后,所有转座子插入位点均可在Coxiella基因组上进行注释(图1D)。
每个 Coxiella 突变株在储存或筛选前,均在 ACCM-2 培养基中进行无菌分离和扩增。图2 展示了在 16 个 dot/icm Coxiella 基因中产生的 38 个转座子突变株的示例(图2A)。为评估 Coxiella 突变株的活力,通过在接种后连续 7 天取样细菌培养物,并应用 1.5 节所述的细菌浓度测定方法,获得无菌生长曲线(图2B)。扩增后的突变株随后在 96 孔板中以三复孔形式与上皮细胞共孵育 7 天。由于所构建的所有 Coxiella 突变株均带有 GFP 标签,因此通过每 24 小时测量每个孔的 GFP 荧光强度,并将测得的数值对时间作图,从而获得细胞内生长曲线(图2C)。
细胞内生长曲线可对Coxiella基因组中每个转座子插入相关的表型进行定量分析。为了补充这些转座子突变体的定性信息,我们采用了自动化的图像采集与分析方法。感染后第7天,将培养板固定,并按照步骤4所述进行免疫荧光处理,随后按照步骤5所述使用自动化落射荧光显微镜进行分析。CellProfiler(Broad研究所,www.cellprofiler.com)等自动化图像分析软件可独立处理所获取的各荧光通道图像,并对识别出的对象进行分割,以用于比较分析(图3)。该方法可识别并进行宿主细胞核、细胞轮廓、溶酶体以及Coxiella菌落的形态学表征(图3 上排图示)。通过将Coxiella菌落与细胞及溶酶体进行共定位分析,可识别并特异性分析含Coxiella的液泡(即LAMP1阳性液泡,图3 左下图示)。将Coxiella菌落与宿主细胞轮廓进行共定位分析,则可识别并特异性分析被感染的细胞(图3 中下图示)。最后,将4个荧光通道图像合并,用于结果展示与质量控制(图3 右下图示)。
从自动图像分析获得的数据可相互对照绘制成“多表型散点图”。例如,在 图4A 平均面积(以 μm2的 Coxiella 菌落数量相对于每个细胞的菌落数作图(图 4A),以鉴定影响贝氏柯克斯体在细胞内复制(复制表型)和/或细菌侵入宿主细胞能力(内化表型)的突变。采用统计学分析方法,定义所得散点图中对应于轻度(-4 < Z值≤-2)和重度(Z值≤-4)表型。突变体分布在3个主要簇中:导致立克次体科克斯体细胞内生长缺陷的突变被归于图中最左侧区域(图 4A,粉红色和红色圆点);影响 Coxiella 细胞内的内化部分位于图的下部(图4A,浅蓝色和深蓝色圆点);最后,图中最右侧区域的绿色圆点对应导致非显著表型的突变(Z分数 > -2)。重要的是,那些无法复制但仍能侵入宿主细胞的突变株,在感染7天后可被检测到,表现为单个细菌或靠近宿主细胞核的小菌落。图4C,第二块板)。因此,尺寸的 Coxiella “菌落”将受到显著影响,但与野生型相比,感染细胞的数量不会发生变化 Coxiella-感染的细胞。相反,影响其能力的突变 Coxiella 侵入宿主细胞会导致每个细胞的菌落数量减少。当该数值显著低于1时,表明平均而言,感染细胞的总数在减少。或者,可测量平均面积(单位: μm2) 的 Coxiella 菌落数可相对于存活的宿主细胞数量进行绘制(图4B),以鉴定赋予细胞毒性的突变 Coxiella (细胞毒性表型)。同上,采用统计学分析方法定义散点图中对应的轻度(-4 < Z评分≤-2)和重度(Z评分≤-4)表型。大多数筛选出的突变无论对细菌在宿主细胞内的复制与否,均未显著影响细胞存活率图3B 绿色点)。37个突变对宿主细胞存活率产生轻微影响(图3B,浅红色圆点),且有7个突变对宿主细胞存活具有显著负面影响(图3B,深红色圆点)。请注意,根据实验需求,可利用自动图像分析程序获得的其他参数生成不同的图表。

图1:Coxiella 转座子突变体的测序与注释。(A)使用单一引物菌落PCR扩增包含转座子插入位点的DNA片段。扩增引物(Amp)根据退火温度的严格性,既可作为特异性引物,也可作为非特异性引物。(B)单一引物菌落PCR的典型结果。每个反应产生多个不同大小的片段,其中一些包含转座子插入位点;另一些则因低严格性PCR循环而作为副产物被随机扩增。(C)使用与转座子序列杂交的测序引物(Seq),可对目标片段进行测序。(D)序列分析软件可实现对细菌基因组上转座子插入位点的自动注释。请点击此处查看该图的放大版本。
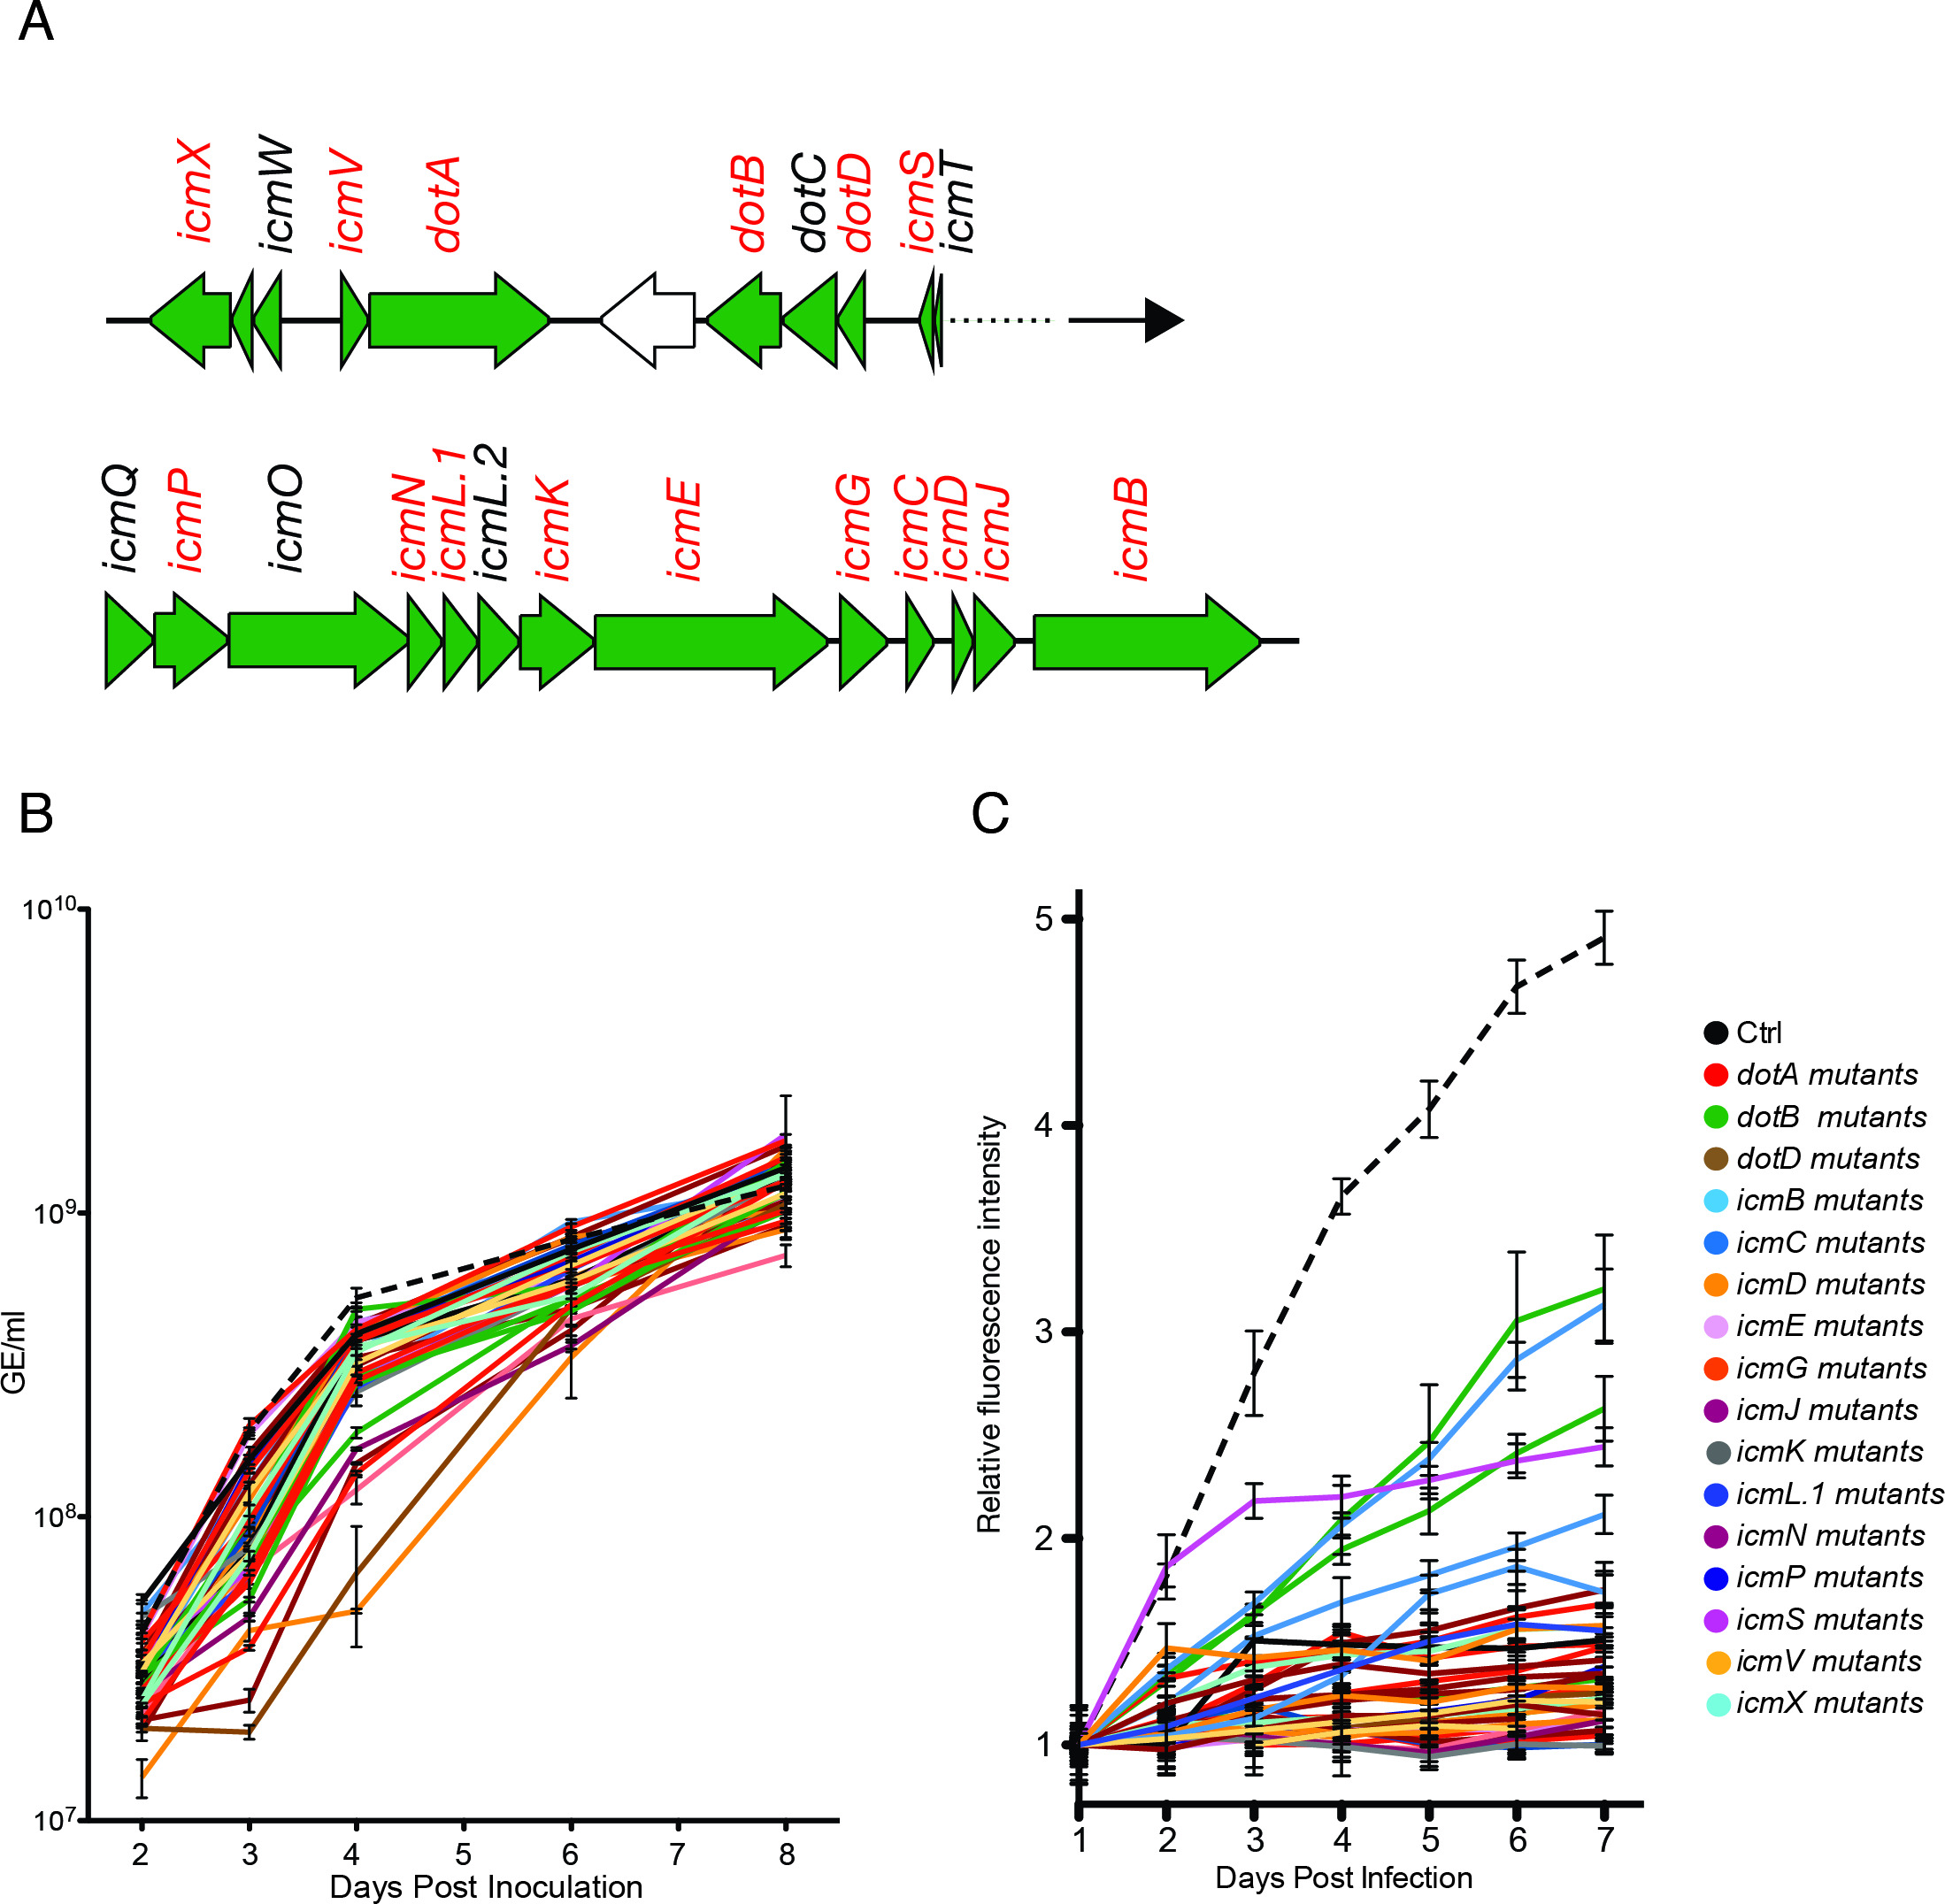
图 2:Coxiella 转座子突变体的无菌培养及胞内生长。 (A)在初步筛选中,我们分离、测序并筛选了 Coxiella dot/icm 分泌系统16个核心基因中的38个转座子突变体(以红色标示)。 (B)为评估每个转座子突变体的存活能力,使用荧光标记的DNA嵌入试剂,在无菌培养基中监测各菌株连续8天的生长情况。 (C)随后利用每个突变体感染上皮细胞。由于转座子含有GFP表达盒,可通过微孔板读数仪检测GFP荧光强度的变化,从而在感染后7天内监测 Coxiella 复制相关的胞内细菌生长情况。 请点击此处查看该图的放大版本。
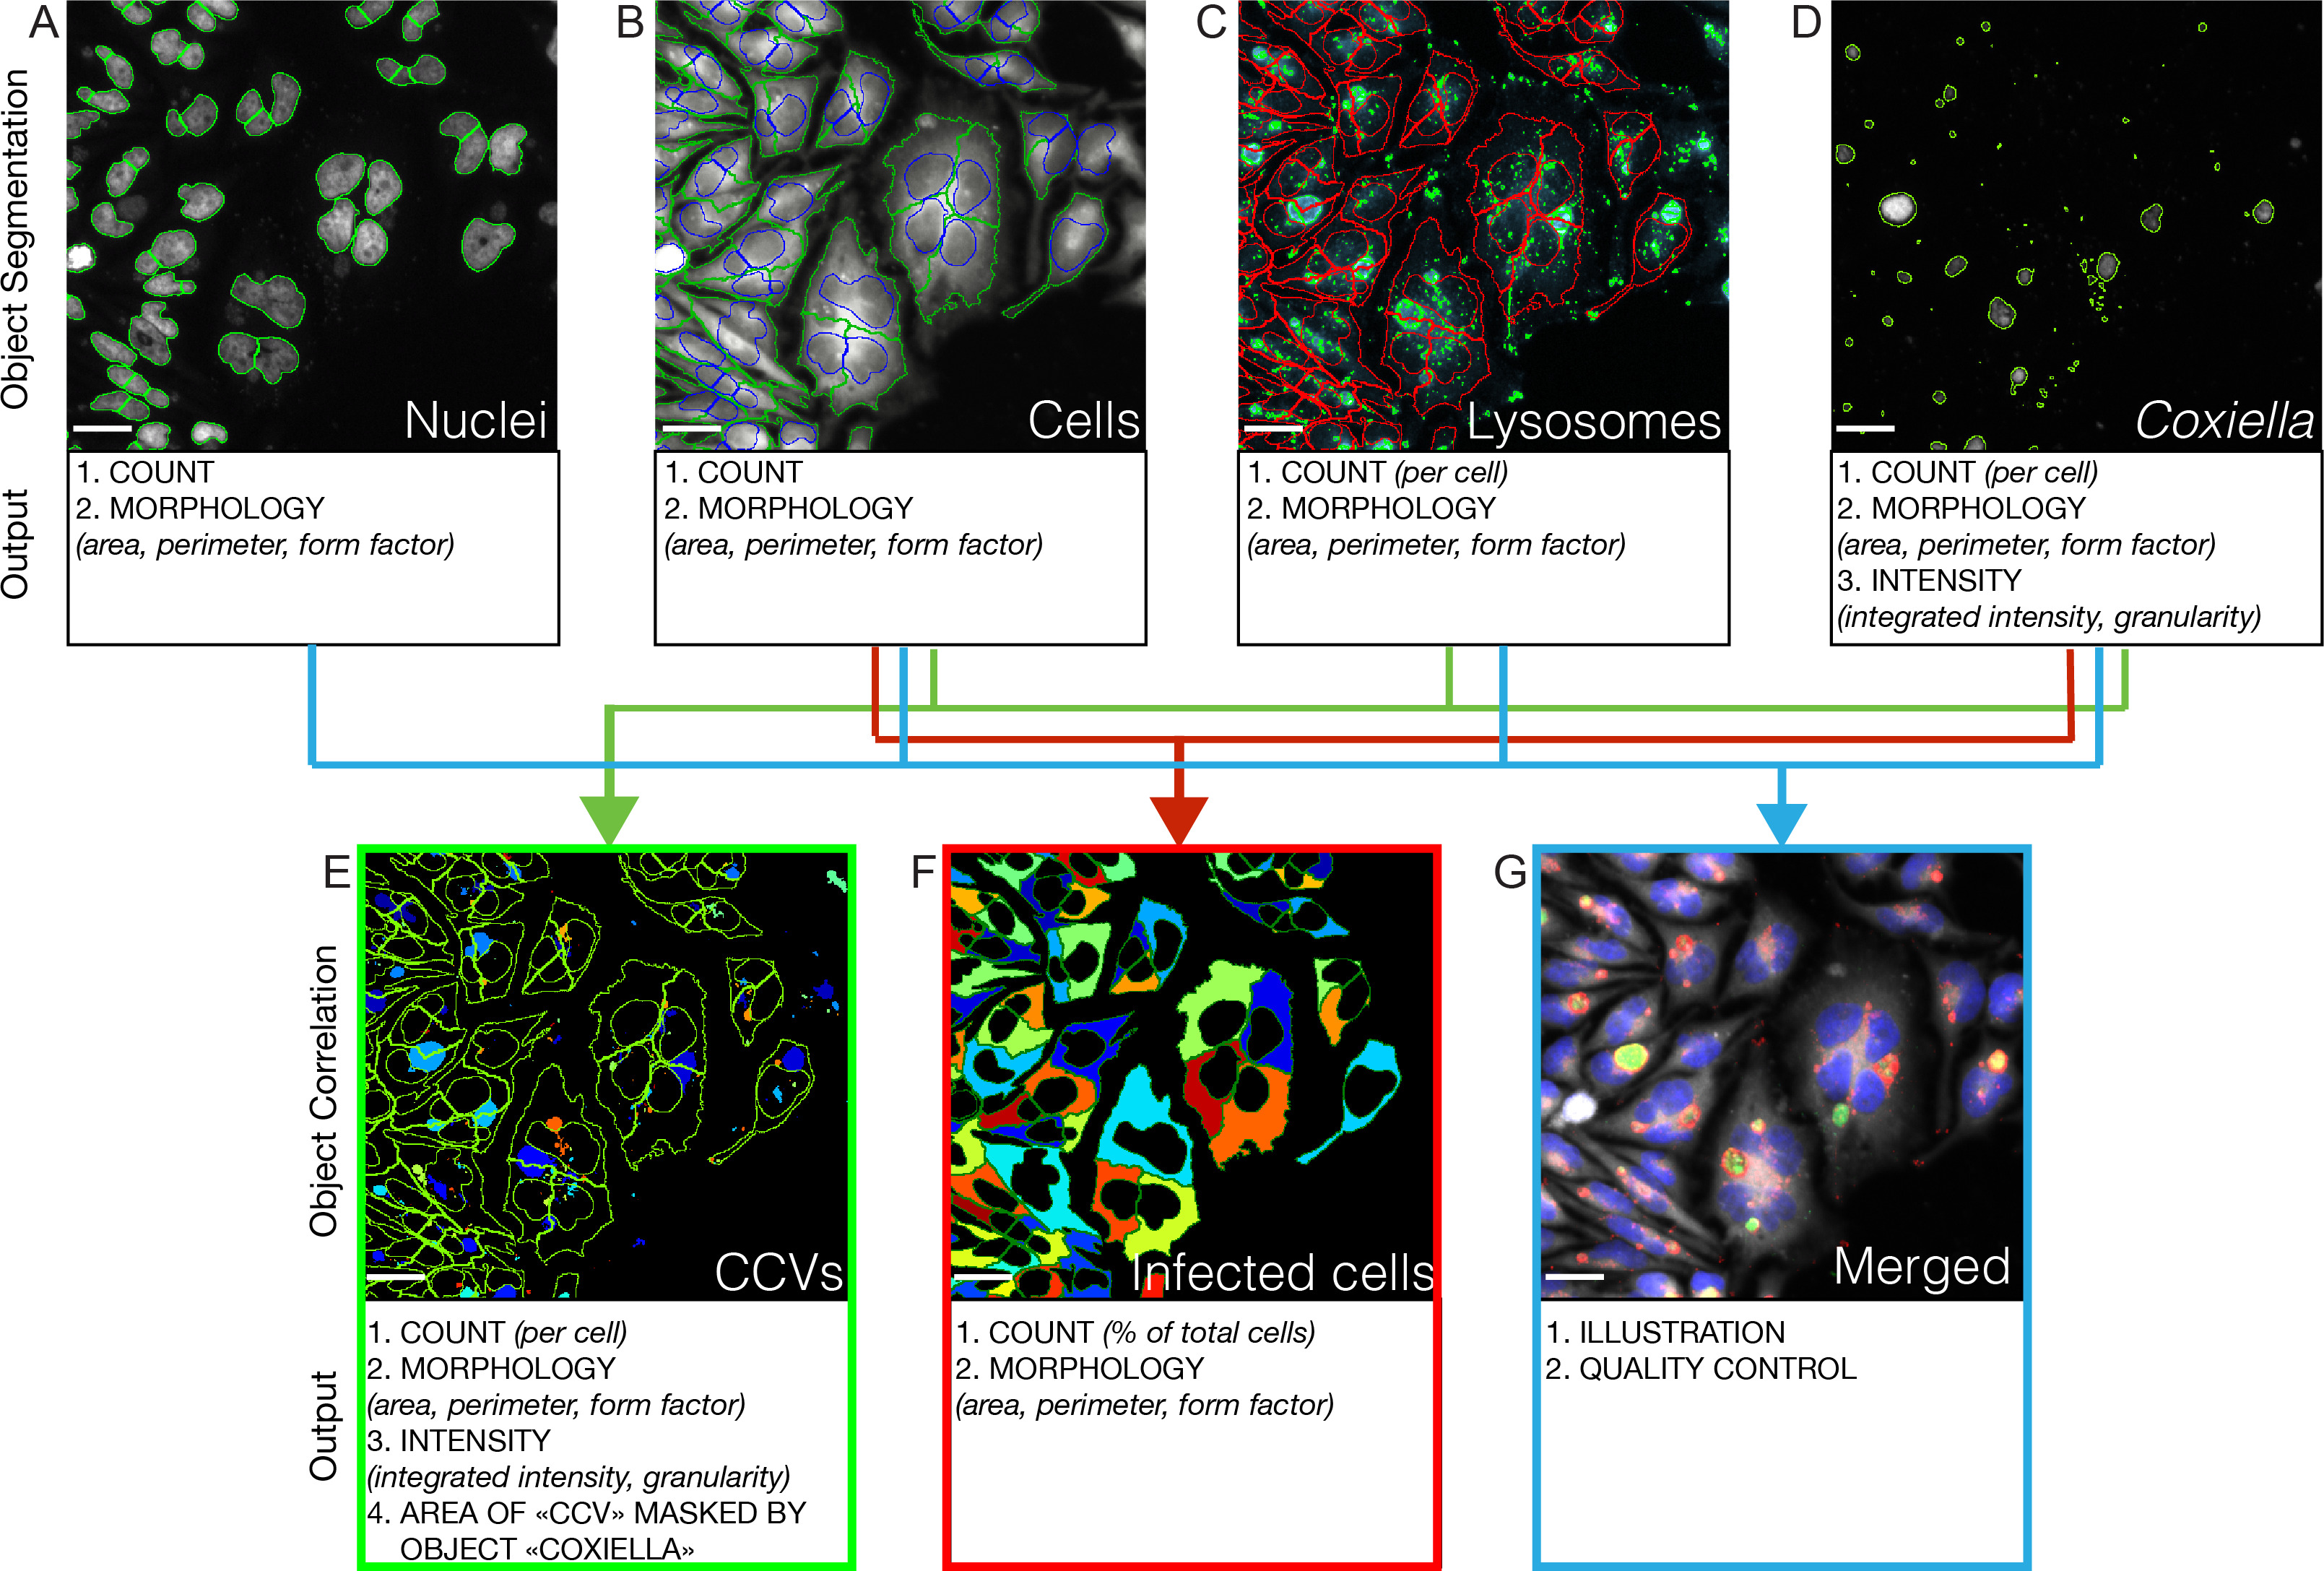
图3:自动图像分析 Coxiella 感染。 使用自动化落射荧光显微镜对三个重复的96孔板中每个孔的21个位置进行成像。图像分析软件对每个获取通道中的目标物体进行分割,以进行定量与分析。在所有情况下,接触图像边界的物体均被排除。AHoechst 通道用于识别宿主细胞核(以绿色圆圈标出)。B) 这些被用作种子点,以在Cy3通道中识别宿主细胞的轮廓(细胞核位置以蓝色圈出,细胞轮廓为绿色)。CCy5 通道用于识别 LAMP1 阳性区室(以绿色圆圈标出);仅保留位于先前识别的细胞轮廓(红色)内的对象用于图像分析。DGFP 通道用于识别 Coxiella 菌落(以绿色圈出)。(E相关性分析 Coxiella 含有LAMP1阳性区室的菌落可用于鉴定 Coxiella含共生泡囊(CCVs);仅保留先前已识别的细胞轮廓(绿色)内的对象用于图像分析。F相关性分析 Coxiella 细胞轮廓清晰的菌落可用于识别感染细胞(伪彩色)。G4个荧光通道(对应于 Coxiella 菌落(绿色)、宿主细胞核(蓝色)、宿主细胞质膜(灰色)、LAMP1阳性区室(红色)合并显示,用于示意图绘制与质量控制。比例尺 10 µm. 请点击此处以查看此图的放大版本。
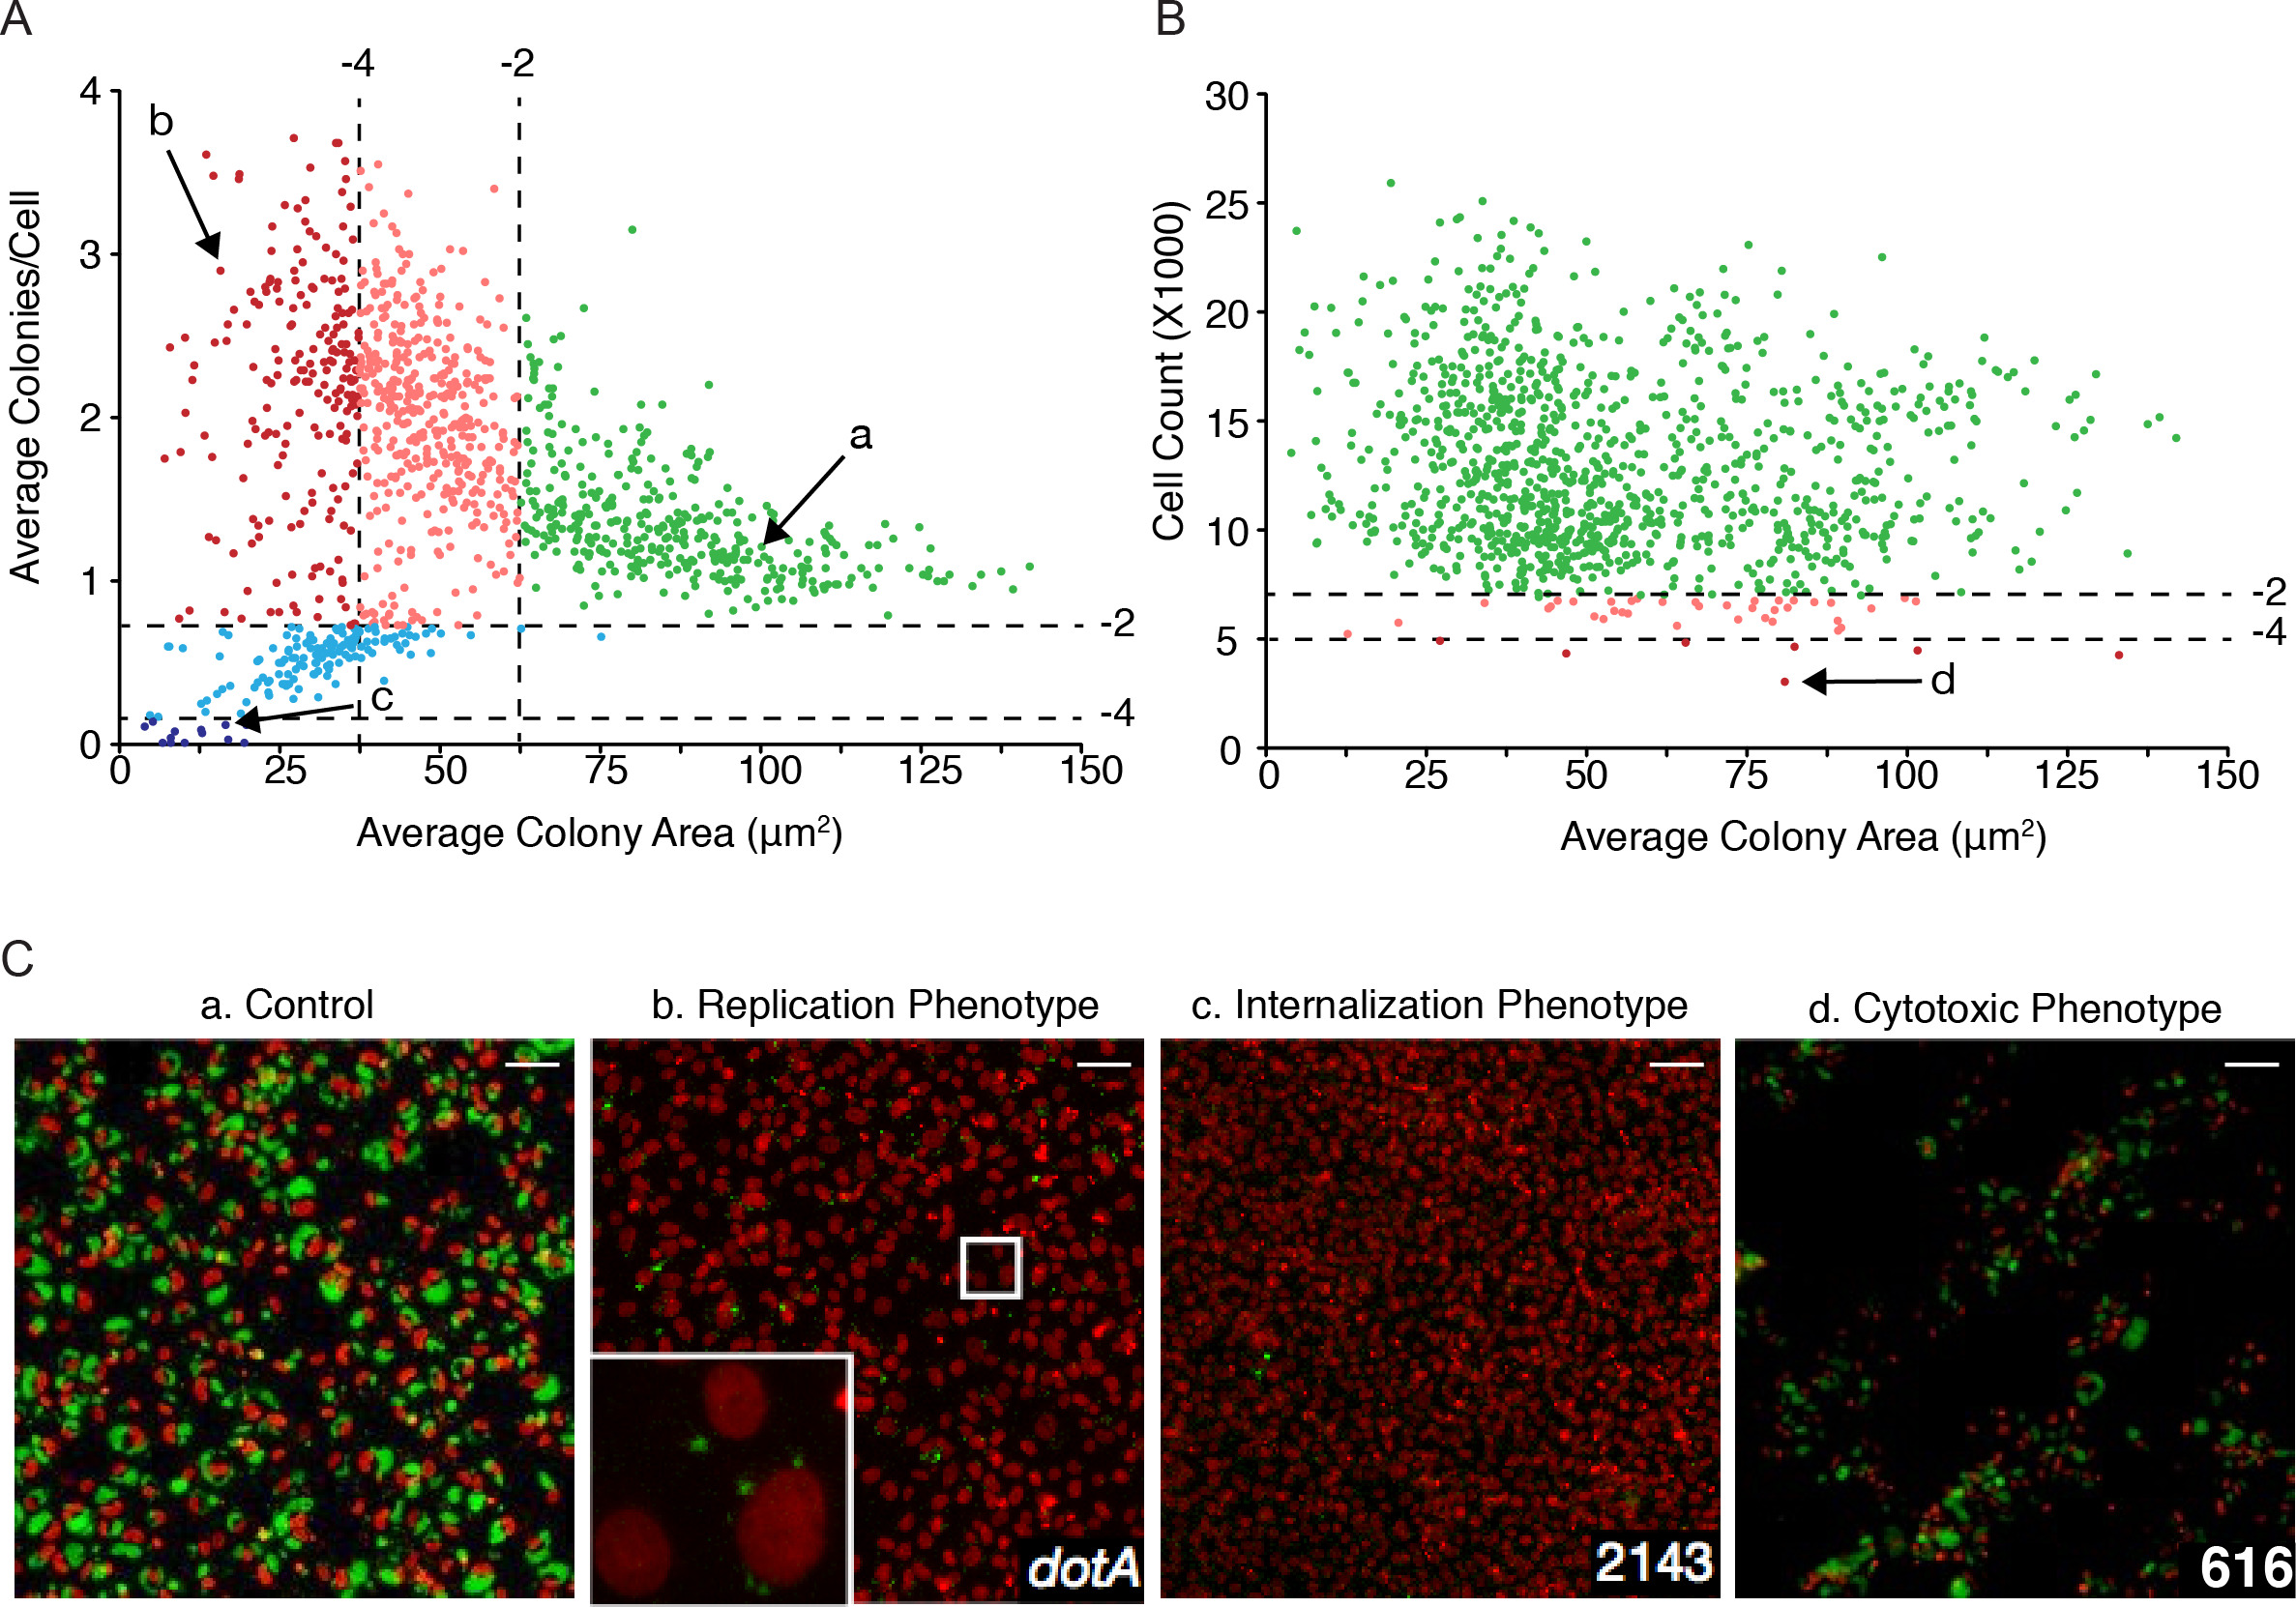
图 4:大规模鉴定参与宿主/病原体相互作用的 Coxiella 因子。 (A)将 Coxiella 菌落的平均面积(单位:μm2)与每细胞相对菌落数作图,以鉴定出具有特定复制和内化表型的突变株。绿色圆点表示与野生型 Coxiella 相比 Z 值 > -2 的表型(无显著差异)。粉色和浅蓝色圆点分别表示 Z 值介于 -2 至 -4 之间的复制和内化表型(轻度表型)。红色和深蓝色圆点表示 Z 值 ≤ -4 的表型(强表型)。 (B)将 Coxiella 菌落的平均面积(单位:μm2)与感染后 7 天存活的总细胞数(包括感染与未感染细胞)作图,以评估转座子插入所导致的细胞毒性效应。绿色圆点表示与野生型 Coxiella 相比 Z 值 > -2 的表型(无显著差异)。粉色圆点表示 Z 值介于 -2 至 -4 之间的细胞毒性表型(轻度表型)。红色圆点表示 Z 值 ≤ -4 的细胞毒性表型(强表型)。箭头指示在图 C 中以相应小写字母展示的突变株。 (C)代表性复制、内化及细胞毒性表型图像。在所有图像中,宿主细胞核呈红色,Coxiella 菌落呈绿色。比例尺为 50 µm。 请点击此处查看该图的放大版本。
讨论
研究宿主与病原体之间的相互作用已被证明是理解细菌感染并开发应对传染病替代策略的有效方法。然而,由于不同细菌病原体演化出多样的策略,识别和表征细菌毒力因子以及感染过程中被靶向的宿主信号通路仍面临巨大挑战。这迫切需要发展新的方法,以大规模鉴定宿主与病原体相互作用的关键节点。近年来新兴的高通量、高内涵筛选技术为这一目标提供了宝贵的资源,可被应用于胞内细菌病原体的研究15。在此,我们以人畜共患的细菌病原体 Coxiella burnetii 为模型,建立了结合转座子突变与基于荧光检测的筛选方法。重要的是,该筛选方法能够同时监测 Coxiella 胞内生命周期的多个阶段,全面揭示该细菌入侵、复制及在感染细胞中持续存活所采用的策略。
本文所述方法基于两种成熟的技术——转座子突变和基于荧光的检测,这些技术已成功应用于细菌病原体的研究。将这两种技术结合应用于高通量/高内涵筛选,可通过对大量事件(通常每种细菌突变可成像并分析约15,000个感染细胞)的分析,评估大量细菌突变的影响。这为细菌侵入宿主细胞和胞内复制等本质上具有高度变异性事件提供了重要的统计学分析。需要注意的是,此类筛选也可使用非上皮细胞系。然而,扁平且较大的上皮细胞更适用于图像分析,因为宿主细胞器更容易被识别。由于大多数自动显微镜可自动处理大量培养板,因此理论上可同时筛选的突变体数量几乎没有限制。根据病原体的不同,使用者可选择使用落射荧光显微镜或共聚焦显微镜。图像采集时间主要取决于显微镜相机的灵敏度、每个孔采集的视野数量以及每个视野采集的通道数。使用者可根据需要调整这些参数,以优化筛选方案。例如,我们在第5.1条所述条件下,每小时可完成一块96孔板的成像。图像分析在很大程度上取决于所使用的计算机设备(或计算机集群)。我们使用一台配备12核(2 × 3.06 GHz 六核处理器)、48 GB内存的工作站,分析一块板所采集的图像大约需要40分钟。
在开发这些检测方法时,一个需要考虑的重要方面是建立新方案(或优化现有方案),以实现对大量样本的操作和处理。一个典型的例子是单引物菌落PCR方法的开发,该方法使我们能够从小量样本中快速扩增并测序包含每个转座子插入位点的Coxiella DNA片段。根据我们的经验,为了获得可重复的结果,必须谨慎选择并测试高保真DNA聚合酶。该方法唯一的局限性可能在于观察到:在大多数情况下,约30%的处理样本由于PCR或测序步骤的问题而无法使用。然而,考虑到分离新的Coxiella转座子突变体并非速率限制步骤,这并不构成主要问题。同样,开发一种可靠的检测方法以定量突变株的细菌浓度对该策略至关重要。由于Coxiella在悬浮状态下易于聚集,因此无法使用光密度读数来计算Coxiella培养物的浓度,唯一可行的替代方法是定量PCR(qPCR)。在此过程中,使用荧光标记的DNA嵌入染料显著加快了细菌定量的速度。
根据所用病原体的不同,该方法还可利用稳定表达多种细胞内区室荧光标记物的细胞系。另一个重要方面是使用不含酚红的细胞培养基。我们观察到,这种pH指示剂具有天然的荧光,其光谱覆盖红色和绿色区域,会饱和自动荧光读板仪所记录的信号。
本文所述策略依赖于随机转座子诱变。对于目标突变体,我们建议通过Southern印迹以及转座子插入位点的PCR扩增,验证转座事件的唯一性(及克隆纯度)。
除了方案部分所述的设备外,有意采用本研究中所介绍筛选方法的团队,若能建立一个用于数据收集的关系型数据库、一个用于数据存储的服务器以及一个用于快速图像分析的工作站,将获益显著。
重要的是,此处描述的方法适用于研究其他胞内细菌病原体,前提是该病原体存在随机突变方法,能够感染细胞系,并且在感染过程中表现出特定的表型。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作获得了授予 Matteo Bonazzi 的 Avenir/ATIP 项目资助以及玛丽·居里 CIG(N° 293731)致埃里克·马丁内斯(Eric Martinez)。作者谨此感谢罗伯特·海因岑博士(Dr. Robert Heinzen)的分享 C. burnetii 菌株、抗体和工具,以及 Virginie Georget 和 Sylvain DeRossi(蒙彼利埃 Rio 成像中心-MRI,1919 号蒙德路,34293 蒙彼利埃)在技术协助和数据分析方面的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 柠檬酸 | Sigma | C0759-500G | ACCM-2 培养基组分 |
| 柠檬酸钠 | Sigma | S4641-500G | ACCM-2 培养基组分 |
| 磷酸钾 | Sigma | 60218-100G | ACCM-2 培养基组分 |
| 氯化镁 | Sigma | M2670-100G | ACCM-2 培养基组分 |
| 氯化钙 | Sigma | C5080-500G | ACCM-2 培养基组分 |
| 硫酸亚铁 | Sigma | F8633-250G | ACCM-2 培养基组分 |
| 氯化钠 | Sigma | S9625-500G | ACCM-2 培养基组分 |
| L-半胱氨酸 | Sigma | C6852-25G | ACCM-2 培养基组分 |
| Bacto Neopeptone | BD (Beckton-Dickinson) | 211681 | ACCM-2 培养基组分 |
| 酪蛋白氨基酸 | BD (Beckton-Dickinson) | 223050 | ACCM-2 培养基组分 |
| 甲基-β-环糊精 | Sigma | C4555-10G | ACCM-2 培养基组分 |
| RPMI 含谷氨酰胺 | Gibco | 61870-010 | ACCM-2 培养基组分 |
| RPMI 含谷氨酰胺,不含酚红 | Gibco | 32404-014 | 用于细胞培养和感染 |
| 胎牛血清 | GE healthcare | SH30071 | 用于细胞培养 |
| 胰蛋白酶 EDTA (0.25%) | Life Technologies | 25200-056 | 用于细胞培养 |
| 皂苷 | Sigma | 47036 | 用于免疫荧光染色 |
| 氯化铵 | Sigma | A9434 | 用于免疫荧光染色 |
| 牛血清白蛋白 | Sigma | A2153 | 用于免疫荧光染色 |
| 电穿孔比色皿 0.1 cm | Eurogentec | ce0001-50 | 用于 Coxiella 转化 |
| Trackmates 带螺帽盖的螺口管 | Thermo Scientific | 3741 | 带二维条形码的螺帽 |
| 96 孔黑色壁和底微孔板 | Greiner | 655076 | 平底暗底,用于双链 DNA 定量 |
| 96 孔 PCR 微孔板 | Biorad | 2239441 | 无 DNA 酶/RNA 酶 |
| 96 孔深孔板 | Labcon | 949481 | 用于 Coxiella 突变体感染 |
| PicoGreen | Life Technologies | P7581 | 用于双链 DNA 定量 |
| Triton X-100 | Sigma | T9284-500ML | 用于双链 DNA 定量 |
| Phusion 高保真 DNA 聚合酶 | New England Biolabs | M0530L | 用于单引物菌落 PCR |
| Celltracker Red CMTPX | Life Technologies | C34552 | 用于成像 |
| 抗 LAMP1 抗体 | Sigma | 94403-1ML | 用于免疫荧光染色 |
| Hoechst 33258 | Sigma | L1418 | 用于成像 |
| Fluorescence microplate reader Infinite 200 Pro | Tecan | ||
| Epifluorescence automated microscope Cellomics | Thermo Scientific |
参考文献
- Maurin, M., Raoult, D. Q fever. Clinical microbiology reviews. 12 (4), 518-553 (1999).
- Kim, S. G., Kim, E. H., Lafferty, C. J., Dubovi, E. Coxiella burnetii. in bulk tank milk samples, United States. Emerging infectious diseases. 11, 619-621 (2005).
- Kazar, J. Coxiella burnetii. infection. Annals of the New York Academy of Sciences. 1063, 105-114 (2005).
- Madariaga, M. G., Rezai, K., Trenholme, G. M., Weinstein, R. A. Q fever: a biological weapon in your backyard. The Lancet infectious diseases. 3, 709-721 (2003).
- Der Hoek, W. V. an, et al. Epidemic Q fever in humans in the Netherlands. Advances in Experimental Medicine and Biology. 984, 329-364 (2012).
- Capo, C., et al. Subversion of monocyte functions by Coxiella burnetii.: impairment of the cross-talk between alphavbeta3 integrin and CR3. Journal of immunology. 163 (11), Baltimore, Md. 6078-6085 (1999).
- Martinez, E., Cantet, F., Fava, L., Norville, I., Bonazzi, M. Identification of OmpA, a Coxiella burnetii. protein involved in host cell invasion, by multi-phenotypic high-content screening. PLoS pathogens. 10 (3), e1004013(2014).
- Romano, P. S., Gutierrez, M. G., Berón, W., Rabinovitch, M., Colombo, M. I. The autophagic pathway is actively modulated by phase II Coxiella burnetii. to efficiently replicate in the host cell. Cellular microbiology. 9 (4), 891-909 (2007).
- Newton, H. J., Mcdonough, J. a, Roy, C. R. Effector protein translocation by the Coxiella burnetii. Dot/Icm type IV secretion system requires endocytic maturation of the pathogen-occupied vacuole. PloS one. 8 (1), e54566(2013).
- Vogel, J. P. Turning a tiger into a house cat: using Legionella pneumophila. to study Coxiella burnetii. Trends in microbiology. 12 (3), 103-105 (2004).
- Van Schaik, E. J., Chen, C., Mertens, K., Weber, M. M., Samuel, J. E. Molecular pathogenesis of the obligate intracellular bacterium Coxiella burnetii. Nature reviews. Microbiology. 11, 561-573 (2013).
- Beare, P. A., et al. Dot/Icm type IVB secretion system requirements for Coxiella burnetii growth in human macrophages. mBio. 2, (2011).
- Omsland, A., et al. Isolation from animal tissue and genetic transformation of Coxiella burnetii. are facilitated by an improved axenic growth medium. Applied and environmental microbiology. 77 (11), 3720-3725 (2011).
- Beare, P. a, Sandoz, K. M., Omsland, A., Rockey, D. D., Heinzen, R. a Advances in genetic manipulation of obligate intracellular bacterial pathogens. Frontiers in microbiology. 2 (May), 97(2011).
- Brodin, P., Christophe, T. High-content screening in infectious diseases. Current opinion in chemical biology. 15 (4), 534-539 (2011).
重印与许可
标签
