将bm12淋巴细胞移植到C57BL/6受体小鼠体内是系统性红斑狼疮的成熟动物模型。本文介绍如何利用该模型诱导疾病发生,并通过流式细胞术对滤泡辅助性T细胞、生发中心B细胞和浆细胞进行表征分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
系统性红斑狼疮(SLE)是一种具有多种临床和免疫学表现的自身免疫性疾病。多种自发性和诱导性动物模型可模拟人类疾病的共同特征,其中包括bm12转移模型。当将bm12脾细胞或纯化的CD4 T细胞转移至C57BL/6小鼠后,这些小鼠会迅速产生大量滤泡辅助性T细胞(Tfh)、生发中心(GC)B细胞和浆细胞,并随之出现高水平的循环抗核抗体。由于该模型使用遗传背景均一的C57BL/6小鼠,研究人员可在相对较短的时间内快速、便捷地研究转基因或基因敲除小鼠品系中的疾病进展。本文描述了该模型的诱导方法,以及通过多色流式细胞术对Tfh、GC B细胞和浆细胞进行定量分析的实验方案。重要的是,这些方案也可用于表征大多数SLE小鼠模型中的疾病状态,并可用于在其他疾病模型中鉴定Tfh、GC B细胞和浆细胞。
引言
系统性红斑狼疮(SLE)是一种复杂的自身免疫性疾病,其典型特征是抗核抗体(ANA)的产生和肾小球肾炎。在部分患者中,该疾病还伴随多种其他继发性病变,包括皮肤、心肺和肝脏损害。在美国,SLE的患病率估计差异较大,约为15万至150万1,2,尤其在女性和少数族裔中发病率较高3。尽管SLE的病因尚不明确,但目前认为其由多种遗传和环境因素相互作用所致,最终导致系统性自身免疫反应。
已采用多种动物模型来研究导致疾病发生和进展的因素。系统性红斑狼疮(SLE)的经典小鼠模型包括具有遗传易感性的小鼠品系,如 NZB × NZW F1 模型及其 NZM 衍生品系、MLR/lpr 品系和 BXSB/Yaa 品系,以及可诱导模型,例如异戊烷(pristane)诱导模型和慢性移植物抗宿主病(cGVHD)模型4。早期在移植物抗宿主病(GVHD)模型中关于自身抗体产生的报道使用了多种小鼠品系或仓鼠品系进行亲本至F1代的移植5–8;目前研究狼疮样疾病更常用的方法包括 DBA/2 亲本→(C57BL/6 × DBA/2) F1 模型,以及本文所述的 bm12 移植模型。每种模型均有其局限性,但通常具有一组共同的特征,这些特征与人类疾病的临床表现相关。小鼠模型中最常报道的参数包括脾肿大、淋巴结病、肾炎、抗核抗体(ANA)的产生,以及在细胞水平上滤泡辅助性T细胞(Tfh)、生发中心(GC)B细胞和浆细胞的扩增。
可诱导的 bm12 模型通过从 I-A 抗原特异性供体小鼠中分离淋巴细胞并对其进行过继转移而建立bm12B6(C)-H2-Ab1bm12/KhEgJ (bm12) 小鼠是一种与 C57BL/6 完全相同的小鼠品系,仅在 MHC II 类分子的 I-A 上存在三个氨基酸替换。b C57BL/6 (B6) 小鼠。供体 CD4+ T 细胞被受体抗原呈递细胞(APC)同种活化后,可引发类似系统性红斑狼疮(SLE)的慢性移植物抗宿主病(cGVHD)。具体表现为:供体来源的滤泡辅助性 T 细胞(Tfh)扩增、受体来源的生发中心 B 细胞和浆细胞扩增,以及抗核抗体(ANA)的产生,包括抗双链 DNA(anti-dsDNA)、抗单链 DNA(anti-ssDNA)、抗染色质(anti-chromatin)和抗红细胞(anti-RBC)抗体。9随着时间推移,受体小鼠会出现与肾小球、间质及肾血管区域IgG沉积相关的肾小球肾炎。10我们最近的研究表明,在该模型中,I型干扰素的作用与人类疾病相似,同样具有关键性。11值得注意的是,人类系统性红斑狼疮(SLE)的定义标准包括在抗双链DNA抗体存在的情况下出现符合SLE特征的肾炎12,这两者均为该小鼠模型的显著特征。
与自发性模型相比,bm12模型具有多项优势。经典的自发产生狼疮样症状的模型依赖于杂交小鼠品系、非B6背景的近交小鼠品系,或B6背景上较大的遗传位点,这使得与基因敲除或其他遗传修饰小鼠进行杂交变得困难且耗时。而在bm12可诱导模型中,遗传修饰小鼠可作为供体或受体,从而能够更快地确定特定基因在疾病中发挥重要作用的细胞区室。此外,bm12模型的疾病发展速度显著更快,仅需2周即可出现抗核抗体(ANAs),而大多数自发性模型则需要数月时间。更重要的是,与自发性模型中疾病在不同时间点发生不同,bm12→B6模型的疾病起始和进展高度同步。这使得研究人员能够建立适当规模的实验队列,并可在疾病发展的任何阶段用于干预性或治疗性策略的研究。
以下是一项详细的实验方案,通过将bm12淋巴细胞过继转移至C57BL/6小鼠或B6背景的遗传变异小鼠中,诱导类似系统性红斑狼疮(SLE)的自身免疫反应。此外,我们还描述了一种流式细胞术染色方案,用于计数T滤泡辅助细胞(Tfh)、生发中心B细胞(GC B cells)和浆细胞——这些细胞类型与人类疾病密切相关。重要的是,这些方案也可用于表征大多数SLE小鼠模型中的疾病状态,并可在其他疾病模型中识别Tfh细胞、GC B细胞和浆细胞。
访问受限。请登录或开始试用以查看此内容。
方案
动物实验在无特定病原体条件下进行,遵循国际实验动物评估和认可委员会以及本机构动物护理与使用委员会(IACUC)制定的指南。
注意:如果可能,建议在供体或受体小鼠中使用表达同源标记(如 CD45.1)的小鼠,因为这有助于监测供体移植物的移植效率以及供体 CD4 T 细胞群体的特异性扩增。如果考虑将其他经过遗传修饰的小鼠作为供体或受体,需确保该品系已正确回交至 B6 背景,否则转移的细胞可能会被排斥——这一点将在代表性结果与讨论部分进行更详细的阐述。
注意:以下步骤详述了从4只bm12供体小鼠中收获细胞的体积,所获细胞足以注射12至16只小鼠。6至12周龄的bm12小鼠大约可获得1亿至1.4亿个淋巴细胞,其中约25%为CD4 T细胞。若起始使用的小鼠数量不同或使用不同品系的小鼠,应相应调整体积。C57BL/6小鼠的细胞产量通常相似,但CD4 T细胞比例接近20%。
注意:所有步骤均在室温下进行,并使用室温培养基,以避免热休克和冷休克,防止影响淋巴细胞的长期存活率。组织采集和组织处理步骤均应在生物安全柜中采用无菌技术操作。本方案中所有培养基均为含10%热灭活胎牛血清的IMDM,除非另有说明,下文简称为“完全培养基”。
1. 一种用于基因分型bm12小鼠的新方法
注意:此处提供一种基于限制性酶切的简要基因分型方案,作为测序方法的简单且经济的替代方案;目前测序是这些小鼠唯一已发表的基因分型方法。
- 从小鼠尾巴中分离基因组DNA。有关小鼠尾部剪取及从尾部消化物中生成cDNA的详细方案,请参考之前发表的JoVE文章13。
- 进行逆转录聚合酶链式反应(PCR)14,使用表1中列出的引物和热循环条件,扩增MHC-II I-Ab和I-Abm12共有的474 bp DNA片段。
- 对约7 µl PCR产物使用限制性内切酶PsuI(或其同裂酶之一:BstX2I、BstYI、MflI或XhoII)进行酶切消化,该酶可切割野生型I-Ab,但不能切割I-Abm12突变体。按照制造商提供的消化方案操作,该方案将指定水、缓冲液和酶的混合比例,并在37 °C下孵育5分钟至数小时15。
- 将消化产物上样,在1%聚丙烯酰胺凝胶中以150 V电泳30–45分钟(具体最佳电压和时间设置可能因所用PCR凝胶装置而异),凝胶中含溴化乙锭14。使用紫外灯观察DNA条带。图1展示了代表性结果。
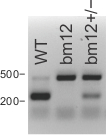
图 1. 典型的 bm12 基因分型结果。
为鉴定 I-Abm12/bm12 纯合小鼠,通过 PCR/限制性酶切基因分型方法(步骤 1)对尾部 DNA 进行 bm12 筛查。纯合野生型(I-Ab/b)DNA 产生两条带,分别为 227 bp 和 247 bp(在凝胶上显示为一条约 250 bp 的较粗条带);纯合 bm12 型(I-Abm12/bm12)DNA 产生一条 474 bp 的条带;杂合型(I-Abm12/b)DNA 产生两条带,分别位于约 250 bp 和 474 bp 处。请点击此处查看该图的放大版本。
2. 收集供体细胞
- 采用机构动物护理与使用委员会(IACUC)批准的首要和次要安乐死方法处死供体小鼠。例如,通过CO2窒息法处死小鼠,随后进行颈椎脱位。
- 采用无菌技术将脾脏和淋巴结(浅表颈淋巴结、颌下淋巴结、臂淋巴结、腋窝淋巴结、肠系膜淋巴结和腹股沟淋巴结)分离并收集至含有10 ml完全培养基的15 ml离心管中11-13。
注:有关详细的淋巴结解剖方案,请参阅先前的文献报道16–18。本模型也可仅使用小鼠脾细胞进行移植,但添加淋巴结可显著减少所需供体小鼠的数量。 - 将步骤2.2中收集的淋巴组织通过70 µm细胞筛,使用注射器活塞研磨,制备单细胞悬液。为获得更高得率,避免过度加载细胞筛——每处理4只小鼠使用约6个细胞筛,并在操作过程中频繁冲洗细胞筛。将4只小鼠的组织合并至两个50 ml尖底离心管中,随后以400 × g离心5分钟,弃去上清液。
- 将两个尖底离心管中的细胞重悬于50 ml完全培养基中,并转移至新的离心管。将该离心管置于室温下保存。
注:脂肪会附着在离心管管壁上,若不更换离心管,最终细胞得率可能降低。
3. 供体细胞计数
注意:为了保持最高的细胞活性,不建议对整个样本进行红细胞(RBC)裂解。
- 混匀步骤 2.4 中得到的单细胞悬液,取出 1 ml 转移至另一个 50 ml 锥形管中。将剩余未扰动的细胞(49 ml)在室温下放置,用于后续计数。
- 向 1 ml 供体细胞样品中加入 3 ml 基于氯化铵的红细胞裂解缓冲液。轻轻摇动 1 分钟使其混匀,然后用完全培养基补至 50 ml,以 400 × g 离心 5 分钟,弃去上清液。
- 将裂解红细胞后的细胞重悬于 10 ml 完全培养基中并进行细胞计数(例如,使用血细胞计数板和台盼蓝染色)。将计数结果乘以 49,即为之前保留的未裂解样品中剩余的总细胞数。弃去已裂解红细胞的细胞样品。
4. 供体细胞标记和/或CD4 T细胞纯化
- 如有需要,可在此阶段纯化 CD4 T 细胞,但此步骤并非必需。此外,如有需要,可使用 CFSE19 或其他细胞示踪染料对细胞进行标记,代表性结果部分的图4展示了其中一个示例。
注意:推荐采用阴性磁珠分选法进行 CD4 T 细胞纯化,该方法可实现高纯度,且细胞未受刺激,存活率高,如文献20所述。必须使用无内毒素的缓冲液;因此,配制分离缓冲液时应使用 2% FBS 而非 BSA,并加入推荐浓度的 EDTA。
5. 注射供体bm12细胞
- 在第3步中计数供体淋巴细胞后(并根据需要按第4步进行纯化或标记),以400 × g离心5分钟。弃去上清液,并将细胞重悬于PBS中,浓度为每毫升1.2亿个淋巴细胞(或每毫升3000万个纯化的CD4 T细胞)。将细胞转移至无菌的5 ml圆底管中,或其他可轻松容纳装有27.5 G × 13 mm针头的1 ml注射器的无菌管中。
- 注射前,从5.1步骤中留取少量供体细胞样品,置于4 °C保存,用于流式染色以确定供体样本中CD4 T细胞的比例。使用最小抗体组合(表2)按第8步所述方法对这些样品进行染色。
注意:若使用不同小鼠品系的细胞作为独立供体,则需特别注意;如果CD4 T细胞比例差异显著,可能需要进行纯化。 - 轻柔但充分地混匀细胞。可通过使用未安装针头的1 ml注射器反复吹打实现混匀。混匀后,将细胞吸入1 ml注射器中。排除所有气泡后再安装针头。在预充注射器时保持针头不安装,有助于维持细胞活性。
- 每只小鼠腹腔注射250 µl(相当于3000万个淋巴细胞,或每只小鼠750万个纯化的CD4 T细胞),操作方法见文献21。
注意:在本研究及我们先前的工作11中,每只小鼠注射来自bm12供体的3000万个总淋巴细胞,而非传统使用的1亿个总脾细胞。在本实验室未发表的数据中,每只小鼠注射3000万或1亿个淋巴细胞后,第14天血清抗dsDNA水平未观察到差异。尽管这显著减少了实验所需小鼠数量,但使用该数量细胞是否能够诱发肾炎尚未评估。
6. 测定接枝效率
注意1:本节将介绍如何在第3天测定受体中供体细胞的移植程度,以识别可能接受了次优注射的小鼠例如, 一只小鼠中的移植物是 <同一组其他小鼠中观察到的10%)。这些数据还可用于确定基因修饰小鼠品系的细胞在后期时间点是否被排斥(详见代表性结果部分, 图6).
注意 2:只有当供体和受体来自不同同源背景的小鼠时,本步骤才可行,例如使用 CD45.1 bm12 供体与 CD45.2 C57BL/6 受体,或当供体细胞用细胞示踪染料标记时。重要的是,在注射后第 3 天,CD4 T 细胞的扩增程度极低(参见代表性结果部分的图 4),因此观察到的移植程度差异源于注射操作的变异性,而非细胞扩增差异。
- 使用4%异氟烷或其他经IACUC批准的方法对小鼠进行麻醉。在采血前,检测后肢反射以确认小鼠已充分麻醉。
- 采用经IACUC批准的方法(如参考文献22中的眶后穿刺法)采集100–200 µl血液,并收集至含有抗凝剂的单个0.5 ml微量离心管中,例如材料表中提及的血浆采集管(含冻干的EDTA二钾)。采血后,使用无菌纱布或棉球轻压小鼠眼部,确保出血停止,随后将小鼠放回原饲养笼,直至最终组织采集(步骤7)。
注意:在小鼠恢复足够意识以维持腹卧位之前,不得无人看管;在完全恢复前,不得将其与其他小鼠合笼饲养。 - 用21 °C的PBS将血液体积补至500 µl,转移至锥底微量离心管中,然后使用200 µl移液器缓慢将200 µl 21 °C的高密度细胞分离液加入管底,注意尽量减少两相之间的混合(推荐溶液见材料表)。将细胞在20–25 °C下以700 × g离心20分钟,离心机刹车设置为低档。
- 用1 ml移液器小心吸出含有淋巴细胞的上层液体,转移至另一含有800 µl冷的完全培养基的新微量离心管中。轻轻涡旋混匀细胞。在4 °C下以700 × g离心5分钟,弃去上清液。
- 将细胞重悬于200 µl完全培养基中,转移至96孔U型底培养板,并按照步骤8所述方法使用最小抗体组合(表2)进行染色,通过流式细胞术分析CD4 T细胞移植物占外周血单个核细胞(PBMCs)的相对比例。
7. 最终组织采集
注意:结果部分所述实验在供体细胞注射后14天(或在某些情况下更短时间)进行取材,因为这些实验主要关注Tfh细胞和浆细胞的初始发育;然而,由于该模型是SLE的慢性移植物抗宿主病模型,疾病可在更晚的时间点进行监测。最佳时间范围将取决于各个实验所提出的研究问题。
- 在注射bm12供体细胞后的预定时间点(步骤5.4),采用IACUC批准的安乐死方法处死小鼠。推荐使用CO2窒息法,随后进行放血。颈椎脱位可作为辅助安乐死方法,但可能降低采血量。
- 用含有70%乙醇的喷雾瓶轻轻润湿小鼠腹部。在生殖器上方约1 cm处,用手术剪做一微小的表层切口。将腹部皮肤向胸骨方向拉开,注意保持腹膜筋膜完整。
注意:患病小鼠通常在第14天出现0.5–3 ml腹水,尽管其特性尚未充分表征,但可作为额外的疾病参数进行测量和分析。 - 将18 G针头连接至5 ml注射器。将针头插入腹部右下象限,针尖朝向动物头部,与筋膜平面呈15°角。将针尖置于盲肠附近,以防止在抽吸腹水时被肠组织堵塞。
- 小心将小鼠侧向旋转,然后缓慢将腹水吸入注射器。回收腹水后,取出注射器,并根据注射器侧面的体积刻度记录抽吸液体积。
- 将腹水排入5 ml圆底管中,置于冰上保存以备后续处理。
- 通过下腔静脉(IVC)采血,基本操作如文献22所述。使用钝头镊子将肠道轻轻移至小鼠左侧,暴露下腔静脉。将连接1 ml注射器的27.5 G针头插入下腔静脉,缓慢抽取400–500 µl血液。
- 为尽量减少溶血,缓慢将血液注入0.5 ml微量离心管(血清或血浆收集管)中。若后续需通过ELISA检测抗核抗体(ANAs),应将血液保持在冰上。
- 解剖并获取其他相关组织(脾脏,以及根据需要获取淋巴结和肾脏,特别是在较晚时间点采样且需评估肾小球肾炎时)。将肠道轻柔地移回动物右侧,牵拉胰腺(脾脏的主要结缔组织),以摘除脾脏。
- 清除残留的胰腺组织后,立即使用高精度天平称量脾脏重量,因为明显的脾肿大是系统性红斑狼疮(SLE)小鼠模型中常见的报告参数。将淋巴组织分别放入装有1 ml完全培养基的1.5 ml离心管中,并置于冰上。按照文献23所述方法,将肾脏置于10%中性缓冲福尔马林中固定,或进行速冻以备后续组织学分析。
- 采集血液后2小时内,以10,000 × g离心3分钟(4 °C)。收集血清并储存在-80 °C,用于后续通过ELISA检测抗核抗体(ANA)。有关详细的ANA ELISA操作流程,请参考既往研究报告24,25。将血清分装为多个10–20 µl的等份样品,以减少冻融循环次数,并便于未来进行更多次检测。
- 将腹水以400 × g离心5分钟。用1 ml移液器移除上清液,并分装至多个0.5 ml离心管中。将上清液在-80 °C冷冻保存,用于后续分析抗核抗体(ANAs)或其他可溶性炎症介质。
- 将细胞沉淀重悬于约1 ml完全培养基中,取200 µl转移至96孔U型底板,用于流式染色(见步骤8)。
- 将每个脾脏通过70 µm细胞筛滤入独立的离心管中,并用完全培养基冲洗。用1 ml冷红细胞裂解缓冲液重悬脾细胞,孵育1分钟,并轻轻摇动混匀。加入冷完全培养基至总体积10 ml,以400 × g离心5分钟,弃去上清液。
- 将细胞沉淀重悬于5 ml完全培养基中,使用血细胞计数板进行计数。调整体积,使200 µl完全培养基中含有100万至300万细胞。开始进行流式细胞术染色(步骤8),使用扩展抗体组合(表2)定量分析供体CD4 T细胞和受体B细胞的分化与扩增情况。
注意:根据可用的激光器、光电倍增管(PMT)及滤光片组合,可能需要将T细胞和B细胞分析组合拆分为多个独立组合。
8. 流式染色
- 将100万至300万脾细胞转移至含有200 µl完全培养基的单个5 ml圆底管中,或分别加入96孔U型底板的不同孔中。
注意:使用96孔板是同时染色多个样本的有效方法,但需注意将样本接种在交替的孔中,以避免交叉污染。因此,一块96孔板最多可容纳24个样本。 - 以500 × g离心板3分钟,然后将上清液弹入适当的(生物危害)容器中。
- 用200 µl流式缓冲液(含1% FBS的PBS)重悬细胞沉淀,其中加入制造商推荐浓度的可固定活力染料以及纯化的抗CD16/抗CD32抗体混合物(1 µg/ml)。在20–25 °C孵育10分钟,然后加入100 µl冷的完全培养基以淬灭活力染料。
注意:来自患病小鼠的脾细胞通常含有相对较多的死亡或濒死细胞;因此,建议使用活力染料,以避免死亡细胞发生非特异性抗体标记,从而获得更清晰、更可靠的数据。同样,加入抗CD16/抗CD32抗体混合物可阻断Fc受体介导的荧光标记抗体的非特异性结合。 - 以500 × g离心板3分钟,然后将上清液弹入生物危害容器中。用200 µl流式缓冲液重悬细胞。再次以500 × g离心板3分钟,然后将上清液弹入生物危害容器中。
- 用含抗体混合物(表2)的50 µl流式缓冲液重悬细胞。在4 °C孵育20分钟,然后加入150 µl流式缓冲液。重复步骤8.4的洗涤操作。
- 用100 µl含2%多聚甲醛的PBS重悬细胞。在4 °C孵育30分钟,然后加入100 µl流式缓冲液。以500 × g离心板3分钟,然后将上清液弹入生物危害容器中。
- 用200 µl流式缓冲液重悬细胞,转移至流式管插件或标准流式管中,再加入额外的100–200 µl流式缓冲液,并在4 °C避光保存,直至上机进行流式细胞术检测。
- 在染色后数天内,使用配备有适用于所选抗体组合的激光器和光电倍增管(PMT)的流式细胞仪进行检测。除前向散射面积(FSC-A)外,还需记录前向散射宽度和/或高度,以及侧向散射面积(SSC-A)和所用荧光参数的面积。为获得可靠结果,在每个野生型样本中至少采集≥1,000个供体细胞,或在供体细胞扩增极少的基因修饰小鼠或其他处理小鼠中采集等量的总淋巴细胞,此时可能无法采集如此多的事件数。
注意:流式细胞术分析的详细描述见代表性结果部分(图3–图6)。
访问受限。请登录或开始试用以查看此内容。
结果
患病小鼠在短短14天内即出现脾肿大,其脾脏质量与细胞数量可达健康小鼠的2-3倍(图2)。
脾细胞依次根据光散射特性(FSC-A 与 SSC-A)设门,排除双联体(FSC-W 或 FSC-H 与 FSC-A),选择活细胞(活力染料染色程度低),并筛选出 CD4+TCRβ+ 细胞(图 3A)。根据 CD45.1 和 CD45.2 的差异区分供体细胞与受体细胞(图 3B,左下)。供体细胞主要分化为滤泡辅助性 T 细胞(Tfh)表型,表现为 PD-1、CXCR5、Bcl-6 和 ICOS 表达上调(图 3B, C)。部分受体来源的 CD4 T 细胞群体也分化为 Tfh 细胞(图 3B,右下)。在过继转移的细胞经历初期的死亡和/或迁移后,供体来源的 Tfh 细胞呈对数扩增,在注射后第 14 天小鼠脾脏中达到 1000–2000 万个细胞(图 3D)...
访问受限。请登录或开始试用以查看此内容。
讨论
bm12 诱导模型是研究系统性红斑狼疮(SLE)细胞与分子过程的一种相对简便且高效的方法。通过过继转移的针对自身抗原的 CD4 T 细胞发生慢性活化,可导致滤泡辅助性 T 细胞(Tfh)、生发中心 B 细胞及浆细胞的积聚,这些细胞可通过流式细胞术进行检测,具体方法如本文所述。未来利用该模型的研究可快速、简便地探究候选基因与新型疗法在自身免疫生发中心反应中的作用,这些反应与 SLE 患者体内发生的病理过程相似,并最终调控自身抗体的病理性积聚。此外,本文所述的流式细胞术分析方法也可用于研究其他涉及免疫球蛋白产生的小鼠模型,包括但不限于自身免疫、感染和过敏等疾病过程。
与所有人源疾病的动物模型一样,该模型也存在一定的局限性。鉴于疾病发展迅速且程度显著,参与系统性红斑狼疮(SLE)发展的所有基因在此模型中未必都对致病性具有必要性。此外,当实验数据提示在基因修饰的受体中Tfh细胞扩增极微弱时,必须谨慎排除移植物排斥反应的可能性。应使用同源标记在收获时确认供体细胞的存在,因为受体细胞本身也可分化为Tfh细胞(图3B),这可能掩盖供体细胞缺失的情况。通过使用同源...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作部分得到了狼疮研究研究所、NCI 资助项目 CA138617、NIDDK 资助项目 DK090978、Charlotte Schmidlapp 奖(授予 E.M.J.)以及 Albert J. Ryan 奖学金(授予 J.K.)的支持。我们感谢辛辛那提儿童医院医学中心风湿病科研究流式细胞术核心实验室提供的支持与仪器使用,该核心实验室部分由 NIH AR-47363、NIH DK78392 和 NIH DK90971 项目资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| B6.SJL-Ptprca Pepcb/BoyJ | 杰克逊实验室 | 001162 | CD45.1+ BoyJ 小鼠品系 |
| B6(C)-H2-Ab1bm12/KhEgJ | 杰克逊实验室 | 001162 | Bm12 小鼠品系 |
| FastDigest PsuI | Life Technologies | FD1554 | 用于基因分型的限制性消化酶 |
| 1X RBC 裂解缓冲液 | eBioscience | 00-4333-57 | |
| IMDM | GE Healthcare | SH30228.01 | |
| 血浆分离管(PST) | BD | 365974 | 含二钾 EDTA 的采血管 |
| 血清分离管(SST) | BD | 365967 | 含凝血活化剂 / SST 凝胶的采血管 |
| Ficoll | GE Healthcare | 17-1440-02 | 高密度细胞分离溶液 |
| Lympholyte-M | Cedarlane | CL5030 | 高密度细胞分离溶液 |
| GL-7-生物素 | eBioscience | 13-5902-82 | |
| 链霉亲和素-BUV395 | BD | 564176 | |
| CD138-BV421 | BioLegend | 142508 | |
| CD4-BV510 | BioLegend | 100559 | |
| TCRβ-BV605 | BD | 562840 | |
| CD45.1-BV711 | BioLegend | 110739 | |
| CD45.2-FITC | BioLegend | 109806 | |
| PD-1-PE | BioLegend | 135206 | |
| CD19-PerCP | BioLegend | 115532 | |
| Fas-PE-Cy7 | BD | 557653 | |
| CXCR5-APC | BioLegend | 145506 | |
| 可固定活力染料 ef780 | eBioscience | 65-0865-18 | |
| CD4-BV421 | BioLegend | 100443 | |
| 1.2 ml FACS 管插件,带架 | USA Scientific | 1412-1400 | |
| BD Falcon™ 圆底管 | BD | 352017 |
参考文献
- Helmick, C. G., Felson, D. T., et al. Part I. Arthritis Rheum. Estimates of the prevalence of arthritis and other rheumatic conditions in the United States. 58, 15-25 (2008).
- Lupus Foundation of America Web Site. , Available from: http://www.lupus.org/answers/entry/what-is-lupus (2015).
- Somers, E. C., Marder, W., et al. Population-based incidence and prevalence of systemic lupus erythematosus: The Michigan lupus epidemiology and surveillance program. Arthritis and Rheumatol. 66, 369-378 (2014).
- Perry, D., Sang, A., Yin, Y., Zheng, Y. -Y., Morel, L. Murine models of systemic lupus erythematosus. J Biomed Biotechnol. 2011, 271694(2011).
- Lindholm, L., Rydberg, L., Strannegård, O. Development of host plasma cells during graft-versus-host reactions in mice. Eur J Immunol. 3 (8), 511-515 (1973).
- Fialkow, P. J., Gilchrist, C., Allison, A. C. Autoimmunity in chronic graft-versus-host disease. Clin Exp Immunol. 13, 479-486 (1973).
- Streilein, J. W., Stone, M. J., Duncan, W. R. Studies on the Specificity of Autoantibodies Produced in Systemic Graft-vs-Host Disease. J Immunol. 114 (1), 255-260 (1975).
- Gleichmann, E., Gleichmann, H. Diseases caused by reactions of T lymphocytes to in compatible structures of the major histocompatibility complex. I. Autoimmune hemolytic anemia. Eur J Immunol. 6 (12), 899(1976).
- Morris, S., Cohen, P. L., Eisenberg, R. Experimental induction of systemic lupus erythematosus by recognition of foreign Ia. Clin Immunol Immunopathol. 57 (2), 263-273 (1990).
- Chen, F., Maldonado, M., Madaio, M., Eisenberg, R. The Role of Host (Endogenous) T Cells in Chronic Graft-Versus-Host Autoimmune Disease. J Immunol. 161 (11), 5880-5885 (1998).
- Klarquist, J., Hennies, C. M., Lehn, M. A., Reboulet, R. A., Feau, S., Janssen, E. M. STING-Mediated DNA Sensing Promotes Antitumor and Autoimmune Responses to Dying Cells. J Immunol. 193, 6124-6134 (2014).
- Petri, M., Orbai, A. -M., et al. Derivation and validation of systemic lupus international collaborating clinics classification criteria for systemic lupus erythematosus. Arthritis Rheum. 64 (8), 2677-2686 (2012).
- Zangala, T. Isolation of genomic DNA from mouse tails. J Vis Exp. (6), e246(2007).
- Lorenz, T. C. Polymerase Chain Reaction: Basic Protocol Plus Troubleshooting and Optimization Strategies. J Vis Exp. (63), e3998(2012).
- Product information: Thermo Scientific FastDigest PsuI. , Thermo Scientific. Available from: https://tools.lifetechnologies.com/content/sfs/manuals/MAN0012567_FastDigest_PsuI_UG.pdf (2012).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. J Vis Exp. (7), e265(2007).
- Harrell, M. I., Iritani, B. M., Ruddell, A. Lymph node mapping in the mouse. J Immunol Methods. 332 (1-2), 170-174 (2008).
- Covelli, V. Chapter 3, Internal examination. Guide to the necroscopy of the mouse. , Available from: http://eulep.pdn.cam.ac.uk/Necropsy_of_the_Mouse/index.php?file=Chapter_3.html (2009).
- Quah, B. J. C., Parish, C. R. The use of carboxyfluorescein diacetate succinimidyl ester (CFSE) to monitor lymphocyte proliferation. J Vis Exp. (44), e2259(2010).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. J Vis Exp. (9), e53319(2007).
- Machholz, E., Mulder, G., Ruiz, C., Corning, B. F., Pritchett-Corning, K. R. Manual Restraint and Common Compound Administration Routes in Mice and Rats. J Vis Exp. (67), e2771(2012).
- Hoff, J. Methods of Blood Collection in the Mouse. Lab Animal. 29 (10), 47-53 (2000).
- Cohen, M., Varki, N. M., Jankowski, M. D., Gagneux, P. Using Unfixed, Frozen Tissues to Study Natural Mucin Distribution. J Vis Exp. (67), e3928(2012).
- Cohen, P. L., Maldonado, M. A. Animal models for SLE. Curr Protoc Immunol.. Chapter 15, Unit 15.20(2003).
- Seavey, M. M., Lu, L. D., Stump, K. L. Animal models of systemic lupus erythematosus (SLE) and ex vivo assay design for drug discovery. Curr Protoc Pharmacol. Chapter 5, Unit 5(2011).
- McKenna, K. C., Vicetti Miguel, R. D., Beatty, K. M., Bilonick, R. A. A caveat for T cell transfer studies: generation of cytotoxic anti-Thy1.2 antibodies in Thy1.1 congenic mice given Thy1.2+ tumors or T cells. J Leukoc Biol. 89 (2), 291-300 (2011).
- Scott, D. M., Ehrmann, I. E., et al. Identification of a mouse male-specific transplantation antigen H-Y. Nature. 376, 695-698 (1995).
- Joly, E., Hudrisier, D. What is trogocytosis and what is its purpose. Nat Immunol. 4 (9), 815(2003).
- Brown, D. R., Calpe, S., et al. Cutting edge: an NK cell-independent role for Slamf4 in controlling humoral autoimmunity. J Immunol. 187 (1), 21-25 (2011).
- Morris, S. C., Cheek, R. L., Cohen, P. L., Eisenberg, R. A. Allotype-specific immunoregulation of autoantibody production by host B cells in chronic graft-versus host disease. J Immunol. 144 (3), 916-922 (1990).
- Choudhury, A., Cohen, P. L., Eisenberg, R. A. B cells require “nurturing” by CD4 T cells during development in order to respond in chronic graft-versus-host model of systemic lupus erythematosus. Clin Immunol. 136 (1), 105-115 (2010).
- Slifka, M. K., Antia, R., Whitmire, J. K., Ahmed, R. Humoral immunity due to long-lived plasma cells. Immunity. 8 (3), 363-372 (1998).
访问受限。请登录或开始试用以查看此内容。
重印与许可
