鉴定与人类眼球Bruch膜特异性相关的蛋白质,是理解年龄相关性黄斑变性等眼病背后生化机制的重要步骤。本方案描述了如何富集这一细胞外基质层,以用于后续的生化分析。
本文内容
摘要
摘要
年龄相关性黄斑变性(AMD)是发达国家视力障碍的主要原因。该疾病表现为视网膜中心 区域(称为黄斑)的破坏,导致中心视力丧失。早期AMD的特征是存在称为软性玻璃膜疣的小型黄色病灶,这些病灶可进一步发展为晚期AMD,例如地图样萎缩(干性AMD)或新生血管形成(湿性AMD)。尽管AMD的临床变化已有详尽描述,且对遗传因素影响AMD风险的理解也日益深入,但目前仍缺乏重大进展的领域之一是对遗传风险所导致的生化后果的理解。这部分归因于理解布鲁赫膜(Bruch’s membrane)生化特性的困难——布鲁赫膜是一种极薄的细胞外基质,作为血液供应物质的生物滤膜,同时也是视网膜色素上皮(RPE)单层细胞附着的支架。玻璃膜疣在布鲁赫膜内形成,其存在会破坏营养物质向RPE细胞的输送。只有通过研究布鲁赫膜的蛋白质组成,以及其它蛋白质如何与其相互作用,研究人员才有望揭示玻璃膜疣形成、AMD发展及随之而来的视力丧失背后的生化机制。本文详细介绍了富集整个布鲁赫膜或仅来自黄斑区域的布鲁赫膜的方法,以便用于后续的生化分析,并举例说明这些方法如何正在改变人们对布鲁赫膜生化特性的理解。
引言
在眼科研究中使用死后人类眼组织是了解眼病发病机制的宝贵资源。对人类供体眼球的分析在阐明年龄相关性黄斑变性(AMD)的潜在机制方面做出了重要贡献,而AMD是西方世界致盲的首要原因1。全球范围内,AMD约占所有盲症病例的8.7%,随着人口老龄化加剧,预计到2020年将影响1.96亿人2。AMD导致中心视力丧失,对患者的独立性和生活质量产生深远影响3。早期AMD的特征是出现玻璃膜疣,可进展为地图样萎缩(有时称为“干性”AMD)或脉络膜新生血管形成(也称为新生血管性或“湿性”AMD)。尽管抗VEGF注射可在新生血管性AMD中稳定或改善视力,但并不能根治该病,目前尚无针对地图样萎缩的有效治疗方法。
尽管某些基因变异已被证实可改变年龄相关性黄斑变性(AMD)的风险4–8,但这些变异如何在生物化学层面影响黄斑区尚不明确。在AMD的发病机制中,一个重要的部位是布鲁赫膜(Bruch’s membrane)。玻璃膜疣在此结构内形成,多项研究已提供证据表明,在AMD中,布鲁赫膜内部及其周围存在补体系统的激活9。布鲁赫膜是一层将视网膜色素上皮(RPE)细胞与脉络膜分隔开的细胞外基质薄膜,厚度约为4 µm。布鲁赫膜与脉络膜毛细血管层(choriocapillaris)相延续,后者是脉络膜的一层,含有有孔毛细血管,其外侧则分布着含有较大血管的层次结构10(图1A)。
Bruch膜是一种由细胞外基质(ECM)构成的五层结构薄层,本方法详细描述了如何分离Bruch膜以及其下方脉络毛细血管的细胞外基质(以下简称富集的Bruch膜),该样品基本去除了细胞成分且不含红细胞。随后,富集的Bruch膜被用于蛋白质印迹(Western blotting)和组织学实验。此外,本文还介绍了仅从眼球黄斑区特异性富集Bruch膜的方法,这对于研究年龄相关性黄斑变性(AMD)生化特性的研究人员尤为有价值。
方案
用于研究的人眼组织来自曼彻斯特皇家眼科医院眼科库,在角膜被摘取用于移植后获得。人体组织用于研究符合《人体组织法案》(2004年)指南,并已获得大学研究伦理委员会批准(编号11305)。
1. 全布鲁赫膜的富集
- 使用1% (v/v) 消毒剂清洁体视显微镜周围及下方的工作区域,然后用70% (v/v) 乙醇擦拭。
- 确保以下物品已备好:一把新的 disposable 刀片、两个无菌细胞刮刀(常用于组织培养)以及三对镊子(在材料清单中分别标记为A、B和C)。
- 将眼球放入一次性培养皿中,并保留皿盖以备后续使用。使用新的 disposable 刀片去除残留的视神经,以免影响组织平铺制备。接着,做四个等间距的切口,将眼球分为四个象限;若将进行第3部分(黄斑区Bruch膜的富集),则不要切割黄斑区域。
- 确保切口贯穿眼球组织的全层——从最内层的神经感觉视网膜(NSR),穿过脉络膜和巩膜(眼球的白色部分)。从眼杯边缘开始,沿整个眼球绕行至视神经处完成切口。这样可使眼杯展平(见图1B)。
- 用镊子A夹住一个象限的展平眼杯组织(防止脉络膜脱落),使用较大的镊子B夹住玻璃体及下方的NSR,从周边开始向眼杯中心方向,再至对侧,将该组织从视网膜色素上皮(RPE)上轻轻剥离。通常情况下,玻璃体和NSR会一并脱落,但并非总是如此。使用刀片切除视盘处残留附着的NSR组织。
- 再次用镊子A固定一个象限的组织,使用无菌细胞刮刀轻轻刮除眼杯内表面完整的RPE单层细胞。这些细胞易于脱落,表现为深棕色色素团块。用PBS冲洗,轻轻洗去脱落的RPE细胞。
- 接着,使用镊子A从四个眼球象限中轻轻剥离覆盖其上的暗红色组织(包含Bruch膜和脉络膜)。将切除的组织放入干净的培养皿中。
- 使用一个细胞刮刀的扁平边缘固定切除的组织,用第二个刮刀轻轻刮除组织。翻转组织后重复操作,尽可能去除多余物质。最终将留下一层半透明的膜:即粗富集的Bruch膜。使用体视显微镜(放大倍数至少20X)对于去除脉络膜并富集Bruch膜至关重要。
- 使用巴斯德吸管,用超纯水短暂冲洗Bruch膜,以去除残留的脉络膜和血液,然后将膜放入1.5 ml 微量离心管中。
- 将富集的Bruch膜悬浮于约1 ml超纯水中,短暂涡旋振荡(约15秒),以帮助裂解任何污染的细胞成分(见图2)。在500 × g条件下离心30秒 使膜沉淀,随后吸除上清液。
注意:此时剩余的富集Bruch膜已准备好用于溶解(如下文第2节所述),或可储存于-80 °C以备后续使用。
2. 全部富集的布鲁赫膜的溶解及蛋白质印迹分析
- 将组织浸入500 µl 8 M尿素中6小时,从富集的Bruch膜中提取蛋白质 在室温下 在1.5 ml微量离心管中( 图3A).
- 将溶解后的样品在10,000 × g离心10分钟,以沉淀残留的胞外物质。弃去上清液,将上清转移至3,500 Da截留分子量透析膜中,然后将样品置于1 L PBS中透析16小时。 在 4 °C 条件下。
- 每个样本中加入 40 µl 蛋白质分离磁珠,室温下将样本与磁珠混合物在旋转混合仪上以 20 rpm 转速旋转孵育 30 分钟。
- 在10,000 × g离心5分钟以沉淀珠子。移除上清液,并将结合到珠子上的蛋白质溶于30 µl 2×上样缓冲液(65.8 mM Tris-HCl,pH 6.8,2.1% SDS,26.3% (w/v) 甘油,0.01% 溴酚蓝,3% β-巯基乙醇)中。
- 将样品在 100 °C 下孵育 10 分钟,然后在 10,000 x g 离心 5 分钟,以沉淀剩余的磁珠。
- 将含有释放蛋白的上清液加入预制的SDS-PAGE梯度凝胶(见材料列表)中进行蛋白质分离。
- 使用常规染色方法观察分离的蛋白质条带, 例如, 考马斯亮蓝
- 简而言之,向凝胶中加入20 ml考马斯亮蓝染色液(0.1%考马斯亮蓝(w/v),50%甲醇,10%冰醋酸,40%水),室温孵育30分钟。 轻柔振荡。
- 弃去染色液,用去离子水洗涤染色后的凝胶,直至背景染色足够减弱,能够清晰观察到染色的蛋白质条带。
- 或者,将分离的蛋白质条带转移至硝酸纤维素膜,用于后续的Western分析,具体步骤如下所述。
- 使用转膜缓冲液(25 mM Tris,192 mM 甘氨酸,10% [v/v] 甲醇),在半干式转膜仪中以80 mA电流将分离的蛋白质条带转移至硝酸纤维素膜上,持续2.5小时。
- 在4 °C下,用10 ml PBS、10%(w/v)脱脂奶粉和0.02%(w/v)BSA封闭膜16小时,然后加入目标一抗以检测蛋白质。
注意:此处以一个示例说明, 图 3C 显示了来自三位不同供体的可溶性Bruch膜的代表性免疫印迹结果,该印迹针对补体级联调节因子H样蛋白1(FHL-1)进行检测。
3. 黄斑部布鲁赫膜的富集
- 按照前述步骤 1.1 - 1.3 进行操作。
- 尽管NSR仍存在,需定位代表黄斑中心区域的黄色黄斑色素着色(参见 图4使用无菌的6 mm活检打孔器,将其置于黄斑中心凹区域上方,并用力切入至黄斑部。
- 保持皮肤活检打孔器位置不变,用手术刀从眼球杯边缘向活检打孔器刀片边缘做一独立切口,然后使用镊子B剥离周围的眼部组织,以获得干净的活检样本。
- 使用镊子C从打孔器中取出6 mm的组织圆片,并置于干净的培养皿盖上。将培养皿盖和黄斑打孔器置于解剖显微镜下。
- 移除薄层NSR圆盘(通过观察是否有黄色黄斑染色来判断活检的准确性)。使用无菌细胞刮刀轻轻刮除RPE细胞。
- 固定黄斑盘 通过 使用镊子A的尖端夹住巩膜,再用镊子C缓慢剥离脉络膜和布鲁赫膜复合体。再次使用细胞刮刀清除布鲁赫膜上残留的脉络膜和血液物质。
- 将黄斑部的Bruch膜放入1.5 ml微量离心管中,加入1 ml超纯水悬浮。短暂涡旋振荡(约15秒)以裂解可能残留的细胞污染物。在500 × g离心30秒使膜沉淀,随后吸除上清液。
注意:从黄斑区分离出的富集Bruch膜现在可用于蛋白质组学分析,可采用使用者偏好的消化方案进行处理。
结果
上述用于制备富集的布鲁赫膜的方案可实现布鲁赫膜及脉络膜毛细血管内皮细胞外基质的分离,并去除大部分细胞/细胞碎片,包括全部的视网膜色素上皮细胞(图2)。使用水对富集的布鲁赫膜进行洗涤,是裂解残留脉络膜细胞的关键步骤。在刮除脉络膜过程中施加的压力,似乎会将少量残留的细胞核压缩至定义为布鲁赫膜的区域(图2B)。
富集的布鲁赫膜(Bruch’s membrane)的溶解可使其蛋白成分的后续分析成为可能。使用4-12%的梯度SDS-PAGE凝胶分离溶解后富集的布鲁赫膜蛋白条带,虽然本身不足以用于鉴定蛋白成分,但能够证明该技术可有效减少非特异性结合的污染性血浆蛋白(图3B)。在这方面,蛋白凝胶电泳图谱中一个显著缺失的条带是人血清白蛋白(约66 kDa)的明显条带,该蛋白的存在通常会使后续的蛋白质印迹(western blotting)结果更难解读:这一点也得到了图2中富集的布鲁赫膜组织学分析的支持。事实上,作为先前研究工作的一部分11,已通过特异性抗体利用蛋白质印迹法(via western blotting)对多个个体供体来源的溶解态布鲁赫膜样本中的多种蛋白进行了检测(图3C)。在本例中,使用了一种针对固有免疫调节因子补体因子H(complement factor H, FH,分子量为155 kDa)的抗体(称为OX23)12,结果显示来自三位不同供体的布鲁赫膜样本中均存在一条较低分子量的条带(图3C)。后续研究证实该条带为因子H样蛋白1(factor H-like protein 1, FHL-1),这是一种与FH相关的49 kDa蛋白,由同一基因的剪接变异产生13。FHL-1似乎是布鲁赫膜中主要的补体调节蛋白11。

图1. 人眼解剖与Bruch膜富集。 (A) Bruch膜是一种细胞外基质屏障。脉络膜含有一层有孔毛细血管(称为脉络毛细血管),其持续与Bruch膜融合,并将脉络膜其余部分(含较大血管)与视网膜色素上皮(RPE)单层细胞分隔开来;RPE在生理上支持神经感觉视网膜(NSR)的光感受器细胞。 (B) 在人眼球杯上做四个切口,使其展开形成平铺结构。可用镊子去除玻璃体。神经感觉视网膜(NSR)可能随玻璃体一同脱落,也可用镊子另行去除。使用细胞刮刀将RPE细胞层从Bruch膜上刮除,此时Bruch膜仍附着于脉络膜和巩膜。将Bruch膜/脉络膜复合物从巩膜上剥离,再用新的细胞刮刀去除外层脉络膜。最后用超纯水冲洗,裂解残留的细胞物质。 请点击此处查看此图的放大版本。
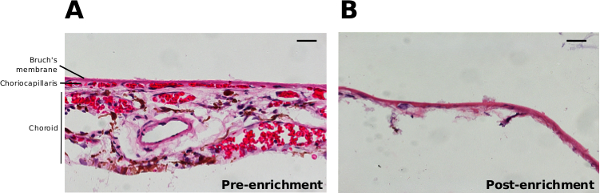
图2. 布鲁赫膜与脉络膜的组织学。 布鲁赫膜在刮除外层脉络膜结构并用超纯水清洗以获得富集的布鲁赫膜之前(A)和之后(B)的H&E染色切片。比例尺代表20 µm。请点击此处查看该图的放大版本。
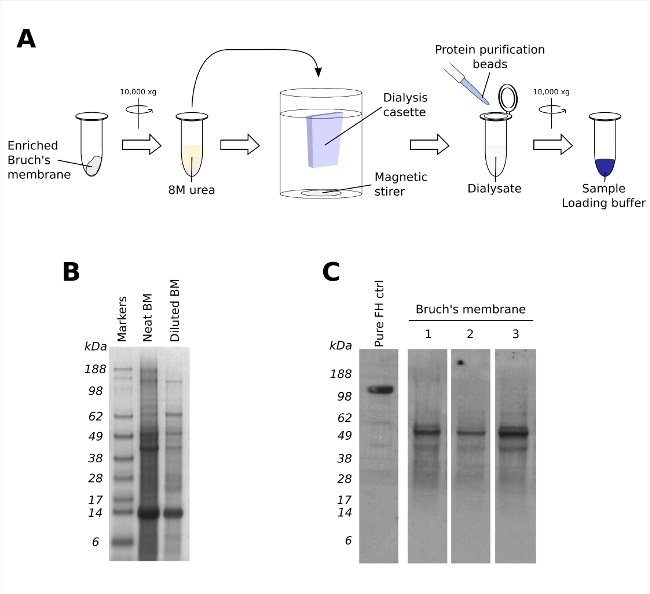
图3. 富集的布鲁赫膜用于蛋白质含量分析的溶解。 (A) 可通过在室温下用8 M尿素孵育6小时,从富集的布鲁赫膜中提取蛋白质,随后在PBS中进行透析。对于Western分析,可使用蛋白质分离珠从整个布鲁赫膜透析液中分离蛋白质,并通过与Laemmli还原性上样缓冲液煮沸洗脱。 (B) 采用(A)中所述方法溶解的布鲁赫膜(BM)的代表性考马斯亮蓝染色SDS-PAGE凝胶,显示了未稀释和稀释样品的结果。 (C) 来自3个不同供体(泳道1 - 3)的溶解布鲁赫膜的代表性Western印迹,检测因子H样蛋白1(FHL-1)。 请点击此处查看该图的放大版本。
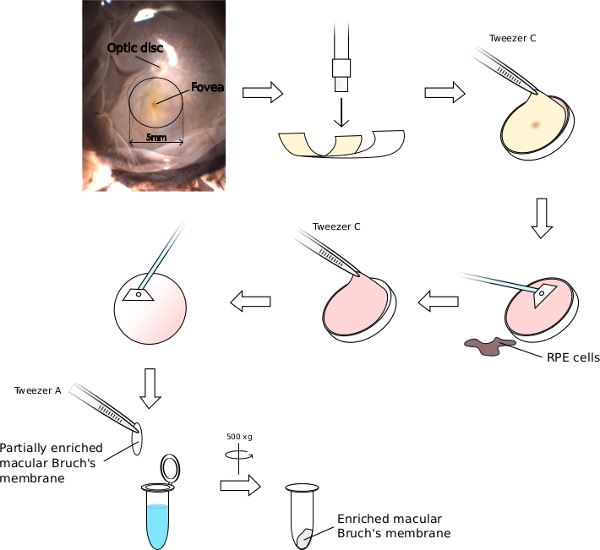
图4. 从黄斑部分离富集的Bruch膜。 视网膜的黄斑区为直径约5 mm的区域,可通过其上方中央凹的黄色着色及其与邻近视盘的位置关系轻易识别。以中央凹为定位标志,将直径6 mm的活检打孔器置于平铺的人眼组织上,切取一块6 mm的黄斑组织。去除上方的神经视网膜(NSR),并刮除切下黄斑组织上的视网膜色素上皮(RPE)细胞。剩余的Bruch膜/脉络膜复合物可从巩膜上剥离,并彻底刮除脉络膜组织,随后浸入超纯水中以裂解残留的细胞成分。请点击此处查看该图的放大版本。
讨论
本文描述了对布鲁赫膜进行富集以供进一步分析的方法,富集后的样本可用于后续实验,包括蛋白质印迹11、质谱分析,以及利用改良的厄辛室装置研究布鲁赫膜的扩散特性11,14。关键步骤包括:a)彻底刮除并清洗眼球内表面,以完全去除视网膜色素上皮(RPE)细胞;b)反复且小心地刮除下方的脉络膜组织,同时避免布鲁赫膜解体;c)将分离出的布鲁赫膜在超纯水中清洗,以确保残留细胞充分裂解。此外,若富集的布鲁赫膜将用于蛋白质组学分析,采用尿素处理进行蛋白质提取是破坏这一坚韧组织最有效的方法,优于机械匀浆等其他方法。对富集后布鲁赫膜的组织学分析表明,脉络毛细血管的细胞外基质(ECM)未被去除。这是预期结果,因为五层结构的布鲁赫膜外层由脉络毛细血管内皮细胞的基底膜构成。实际上,在年龄相关性黄斑变性(AMD)中,脉络毛细血管ECM会发生改变,例如终末补体复合物/膜攻击复合物(MAC)的沉积15,因此保留该ECM可能具有优势。需要注意的是,若需对布鲁赫膜进行详细的组织学分析,其结构在保留巩膜、脉络膜及布鲁赫膜整体的情况下进行切片会更完整。事实上,图2所示的组织学图像仅用于展示本研究所述技术所达到的富集程度。
富集黄斑部Bruch膜需要仔细解剖眼杯,确保神经感觉视网膜(NSR)尤其是黄斑中心凹不受损伤;否则将无法识别并进而分离黄斑区域。组织完整性对此过程也至关重要,因此建议使用死后时间不超过48小时的样本。所需富集程度因供体而异,可能受供体年龄、死后时间以及是否存在眼部病理改变的影响。此处使用“富集”一词是刻意为之,以承认该技术存在局限性,即通过此方法无法实现Bruch膜的“纯化”或“分离”。事实上,由于脉络膜毛细血管的细胞外基质(ECM)与Bruch膜相互融合,完全分离二者并不可行。
了解眼组织各自的生化变化对于理解眼病进展至关重要。这种对Bruch膜的独特富集有助于加深这一理解;目前的研究正在利用质谱技术,分析来自不同AMD阶段以及不同基因型受试者样本的富集黄斑区Bruch膜的蛋白质组,以增进对AMD分子病理机制的认识。目前,本文所述技术已成功鉴定出FHL-1是Bruch膜中主要的补体调节因子11,未来针对富集Bruch膜的进一步研究有望为AMD的分子病理学提供更多新的见解。
披露
作者声明不存在任何竞争性经济利益。
致谢
作者谨此感谢 Isaac Zambrano 博士及曼彻斯特眼科医院眼库工作人员提供人供体眼组织,感谢生命科学学院组织学实验室的 Pete Walker 先生提供 H&E 染色图像。特别感谢 Roger Meadows 先生在显微成像方面的协助。SJC 获得英国医学研究理事会(MRC)职业发展研究员项目(MR/K024418/1)资助,作者还感谢来自 MRC(G0900538 和 K004441)、Fight for Sight(1866)以及黄斑变性协会的其他近期研究经费支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 辅助物镜 0.5X | GT-Vision Ltd | 3638 | 对全眼平铺样本的低倍成像有用(但非必需) |
| 6 mm 活检穿孔器 | Oncall 医疗用品 | SCH-33-36 | 6mm 活检打孔器 |
| 牛血清白蛋白 | Sigma-Aldrich | A3059 | |
| 溴酚蓝 | Sigma-Aldrich | B0126 | |
| 细胞刮刀 | Sarstedt | 83.183 | 用于膜组分富集 |
| CyroPure 冻存管 | Sarstedt | 72.38 | |
| 一次性手术刀 | Fisher Scientific | 12387999 | 无菌、独立包装的Swann-Morton手术刀。 |
| 双鹅颈LED点光源,配备30 cm臂杆 | GT-Vision Ltd | 0153 | 解剖与成像必备的柔性光源 |
| 杜尔贝科’磷酸盐缓冲液 | Sigma-Aldrich | D8537 | 用于防止黄斑干燥以及在膜富集过程中使用。 |
| (A)镊子 | 科学实验室用品 | INS4280 | (A)细(100 毫米)且直 |
| (B)镊子 | 科学实验室用品 | INS4272 | (B)宽头钝头(150 mm)。适用于转移大块样品 |
| (C)镊子 | 科学实验室用品 | INS4323 | (C)直型细尖头 |
| 甘油 | Sigma-Aldrich | G1345 | |
| 甘氨酸 | Sigma - Aldrich | B0126 | |
| GXCAM 5 数码彩色相机 & GT-Vision 软件 | GT-Vision Ltd | 1122 | |
| 甲醇 | Sigma-Aldrich | M/4000/17 | |
| 硝酸纤维素膜 | Life Technologies | NP0007 | |
| NuPAGE Novex 4 - 12% Bis-Tris 蛋白凝胶 | Life Technologies | NP0322BOX | |
| 培养皿 | Sterilin | 101VR20 | 90 毫米,用作样品培养皿 |
| 蛋白质分离珠(Strataclean 树脂) | 安捷伦 | 400714-61 | |
| SDS | 伯乐(Bio-Rad) | 161-0301 | |
| 体视变焦显微镜 GXMXTL3T(放大倍数范围 7X - 45X) | GT-Vision Ltd | 5595 | 解剖过程中便于操作的带臂式立体变焦显微镜 |
| Tris-HCl | Sigma-Aldrich | T3253 |
参考文献
- Coleman, H. R., Chan, C. -C., Ferris, F. L., Chew, E. Y. Age-related macular degeneration. Lancet. 372, 1835-1845 (2008).
- Wong, W. L., et al. Global prevalence of age-related macular degeneration and disease burden projection for 2020 and 2040: A systematic review and meta-analysis. Lancet Glob Health. 2 (2), e106-e116 (2014).
- Coleman, A. L., et al. Impact of age-related macular degeneration on vision-specific quality of life: Follow-up from the 10-year and 15-year visits of the study of osteoporotic fractures. Am J Ophthalmol. 150 (5), 683-691 (2010).
- Hageman, G. S., et al. A common haplotype in the complement regulatory gene factor H (HF1/CFH) predisposes individuals to age-related macular degeneration. Proc Natl Acad Sci U S A. 102 (20), 7227-7232 (2005).
- Klein, R. J., et al. Complement factor H polymorphism in age-related macular degeneration. Science. 308 (5720), 385-389 (2005).
- Haines, J. L., et al. Complement factor H variant increases the risk of age-related macular degeneration. Science. 308 (5720), 419-421 (2005).
- Edwards, A. O., Ritter, R., Abel, K. J., Manning, A., Panhuysen, C., Farrer, L. A. Complement factor H polymorphism and age-related macular degeneration. Science. 308 (5720), 421-424 (2005).
- Fritsche, L. G., et al. Seven new loci associated with age-related macular degeneration. Nat Genet. 45 (4), 433-439 (2013).
- Clark, S., Bishop, P. Role of Factor H and Related Proteins in Regulating Complement Activation in the Macula, and Relevance to Age-Related Macular Degeneration. J Clin Med. 4 (1), 18-31 (2014).
- Booij, J. C., Baas, D. C., Beisekeeva, J., Gorgels, T. G. M. F., Bergen, A. A. B. The dynamic nature of Bruch’s membrane. Prog Retin Eye Res. 29 (1), 1-18 (2010).
- Clark, S. J., et al. Identification of factor H-like protein 1 as the predominant complement regulator in Bruch’s membrane: implications for age-related macular degeneration. J Immunol. 193 (10), 4962-4970 (2014).
- Sim, E., Palmer, M. S., Puklavec, M., Sim, R. B. Monoclonal antibodies against the complement control protein factor H (beta 1 H). Biosci Rep. 3 (12), 1119-1131 (1983).
- Ripoche, J., Day, A. J., Harris, T. J., Sim, R. B. The complete amino acid sequence of human complement factor H. Biochem J. 249 (2), 593-602 (1988).
- Moore, D. J., Clover, G. M. The effect of age on the macromolecular permeability of human Bruch’s membrane. Invest Ophthalmol Vis Sci. I. 42 (12), 2970-2975 (2001).
- McHarg, S., Clark, S. J., Day, A. J., Bishop, P. N. Age-related macular degeneration and the role of the complement system. Mol Immunol. 67 (1), 43-50 (2015).
重印与许可
