肠上皮干细胞(ISCs)与潘氏细胞相互混杂。这些潘氏细胞是ISC的分化后代,不仅支持ISC的存活,还提供抗菌保护。本文展示了我们如何利用转基因条件型小鼠模型,证实潘氏细胞在维持肠上皮稳态中发挥关键作用。
本文内容
摘要
摘要
哺乳动物肠道的上皮表面是一种动态组织,每3至7天更新一次。对这一更新过程的研究发现了一群快速循环的肠干细胞(ISCs),其特征是表达Lgr5基因。这群细胞由另一群静息状态的干细胞支持,后者以表达Bmi-1为标志,在损伤情况下能够替代活跃的ISCs。研究这两类细胞群体之间的相互作用,对于理解它们在疾病和癌症中的作用至关重要。ISCs存在于肠表面上的隐窝中,这些微环境为ISCs补充上皮细胞提供了支持。活跃型与静息型ISCs之间的相互作用可能还涉及微环境中的其他已分化细胞,因为已有研究表明,Lgr5阳性ISCs的“干性”与其邻近的潘氏细胞的存在密切相关。我们利用条件性cre-lox小鼠模型,检测了在有或无潘氏细胞的情况下,大量清除活跃ISCs所产生的影响。本文描述了用于表征肠道的实验技术与分析方法,并证明潘氏细胞在ISC微环境中发挥着关键作用,有助于肠道在遭受严重损伤后的恢复。
引言
哺乳动物肠道的腔面具有重复的隐窝结构和指状突起,后者称为绒毛,向肠腔内突出。该表面是一层连续的上皮细胞,大约每3 - 4天完成一次完全的自我更新1。这一动态组织由一群快速增殖的干细胞(ISCs;也称为隐窝基底部柱状细胞)支持,这些细胞最初因其表达Lgr5基因而被识别2,3。这些细胞存在于Lieberkühn隐窝底部的一个特化微环境中。最初,发现ISCs具有快速增殖特性与当时普遍认为干细胞本质上处于静息状态的观点相矛盾。在鉴定出Lgr5+ ISC之前,人们曾推测位于隐窝基底上方+4位置的一群静息性标记滞留细胞才是真正的ISCs1。近年来的研究已调和了这些观察结果,表明每个隐窝中主要存在一群功能等效且处于增殖状态的ISCs,其细胞命运受到邻近细胞的调控4,5。当这些细胞丢失时,原本定型为分泌谱系的静息细胞可逆分化为ISCs,从而补充受损的ISC群体6。
肠干细胞(ISC)的邻近细胞可以是肠干细胞本身,也可以是它们的子代细胞。肠干细胞产生未分化的子代细胞,这些细胞通过增殖并分化为构成肠腔上皮层的各种特化细胞类型1。杯状细胞、肠内分泌细胞、吸收细胞、簇细胞和M细胞向上迁移至肠腔表面,在那里发挥多种吸收和调节功能;而潘氏细胞则停留在隐窝底部,与肠干细胞混杂共存。近年来的研究表明,一部分注定走向分泌谱系的未分化子代细胞属于静息状态的标记滞留型Lgr5lo细胞,能够在组织损伤后逆转为肠干细胞状态6,7。
由于隐窝再生的重要性,研究重点放在了解肠干细胞(ISCs)与其邻近细胞(尤其是潘氏细胞)之间的相互作用上。潘氏细胞在其支持ISCs的微环境中发挥着关键作用8。除了分泌杀菌物质外,潘氏细胞还产生可激活调控ISC自我更新或分化的信号通路的信号分子。先前的研究表明,Lgr5+ ISCs只有在能够与其子代潘氏细胞提供的必需微环境信号进行竞争时才能存活8。这些研究探讨的是潘氏细胞对正常Lgr5+ ISCs的作用,而未涉及ISCs受损后需要由Lgr5lo 细胞群体进行补充的情况。
为了理解肠道生物学并建立疾病模型,我们使用转基因小鼠模型来研究细胞和/或基因的功能作用9,10。这些模型通常采用 cre-lox 技术对基因进行条件性修饰9,10。Cre(Causes recombination,引起重组)重组酶是一种属于整合酶家族的位点特异性重组酶,源自噬菌体 P1。Cre 能够在特定的 34 bp “Lox P”(locus χ of crossover P1)位点之间催化位点特异性的重组。通过基因工程改造的小鼠在其目标区域两侧携带 LoxP 位点,当表达 Cre 重组酶时,这些区域将被切除。将 Cre 基因的表达与特定细胞或发育阶段的启动子相连接,可实现空间特异性的基因修饰9,10,这对于克服胚胎致死性突变尤为有用。进一步将 Cre 的表达与可人工激活的受体通路相连接,则可实现时间特异性的基因调控。
利用该技术,我们在肠上皮中失活了CatnB基因11。CatnB基因的产物β-catenin是经典Wnt信号通路的关键调控因子,该通路控制着肠干细胞(ISC)的稳态。此前两项采用该策略的研究得出了相互矛盾的结果12,13。Fevr et al.12 的研究表明,干细胞和肠道稳态均发生丢失;而Ireland et al.14的研究则报告,在细胞活力下降后,隐窝-绒毛轴由表达CatnB的野生型细胞重新填充。这两项研究的主要差异在于用于在肠上皮中表达Cre的启动子。Fevr et al.的研究采用了与雌激素受体连接的绒毛蛋白(villin)基因启动子,该系统可通过给予他莫昔芬(tamoxifen)进行激活(vil-Cre-ERT2)15,16。相比之下,Ireland et al.则利用大鼠细胞色素P450A1(CYP1A1)基因的启动子元件,在异生物质β-萘黄酮(β-naphthoflavone)的诱导下驱动Cre的表达(Ah-cre)。这些不同系统的特性引出了两种假说,以解释上述差异性观察结果。第一种假说认为,与Ah-cre系统相比,vil-Cre-ERT2系统在肠干细胞中对CatnB的删除效率更高,从而将肠干细胞数量减少至无法实现再填充的水平。另一种假说则认为,这是由于在分化细胞群体中CatnB的删除存在差异。vil-Cre-ERT2系统靶向隐窝和绒毛中的所有上皮细胞,而Ah-cre系统仅靶向肠干细胞微环境及隐窝中的非潘氏细胞。这些系统为研究肠干细胞的行为及其与潘氏细胞的相互作用提供了理想的工具。本文介绍了多个详细实验方案,基于我们利用这些系统的研究,证实潘氏细胞在介导肠道对损伤的应答中发挥关键作用17。
方案
所有使用材料的相关信息见表1。所有动物实验均在英国政府内政部项目许可证授权下进行。
1. 使用 Ah-cre 和 vil-Cre-ERT2 系统删除 CatnB
- 杂交小鼠品系,以获得 10 - 14 周龄的 Ah-cre+CatnB+/+、Ah-cre+CatnBflox/flox、vil-Cre-ERT2CatnB+/+ 和 vil-Cre-ERT2CatnBflox/flox 实验组。 为通过 β-gal 染色进行重组的可视化分析,实验组应包含 Rosa26R-lacZ 报告基因17。 实验组需设置对照,以排除修饰基因的存在及诱导剂使用的影响,实验组大小应通过功效分析进行估算。
- 为诱导 Ah-cre 转基因,配制 β-萘黄酮(BNF);或为诱导 vil-Cre-ERT2 转基因,配制玉米油中的他莫昔芬(TAM),制成 10 mg/ml 的工作液。注意:称量试剂时应在通风橱内操作,并佩戴适当的个人防护装备。
- 将溶液置于棕色瓶中(BNF 对光敏感),在水浴中加热至 BNF 为 99.9 °C 或 TAM 为 80 °C。
- 转移至设定为 BNF 100 °C 或 TAM 80 °C 的加热搅拌器上,搅拌 10 分钟。
- 对于 BNF,重复步骤 1.3–1.4 直至完全溶解(可能需要 >1 小时)。
- 分装至小棕色瓶(约 5 ml),然后在 -20 °C 冻存。 经过 3 次冻融循环后应弃用瓶装试剂。 使用前若试剂析出,需解冻并重新加热至相应温度。 注射前冷却至 <37 °C。
- 通过腹腔注射(I.P.)给予小鼠 80 mg/kg 剂量,例如 25 g 小鼠注射 0.2 ml 相应的诱导剂。Ah-cre 组在 24 小时内注射三次,vil-Cre-ERT2 组每天注射一次,连续注射 4 天。
2. 用于报告基因可视化和免疫组织化学(IHC)的肠道解剖
- 根据伦理批准,使用颈椎脱位法处死小鼠,无需预先麻醉。将小鼠置于仰卧位,用70%乙醇润湿毛发,沿腹中线用剪刀纵向切开腹腔。
- 用镊子固定胃部,切断与食管的连接。通过轻拉胃部,取出至阑尾处的小肠;通过轻拉阑尾,取出至肛门处的大肠。
- 肠道分离后,移除胃和阑尾。使用配备钝头移液 tip 的注射器,以1×PBS冲洗肠道。 注意:每根肠道应立即用于后续所述的某一项应用。
3. 肠道的福尔马林固定
- 将灌流后的肠道切成三个等长的部分,并标记为近端、中段和远端。将每段切成1 cm长的小段。取一段2 cm × 2 cm的外科胶带,在胶带中央以金字塔形状排列放置三至五个1 cm长的组织片段。
- 沿长轴方向将胶带闭合并封好,形成“圆木堆”状结构。将组织置于平底容器中,加入足量的中性缓冲福尔马林固定液,固定液的体积至少为组织体积的10倍。 注意:避免将过多组织放入同一管中进行固定,应分装至多个容器中。
- 将样本在4 °C下放置至少18–24小时,然后再进行包埋和切片。 为防止核内β-catenin丢失,固定时间不得超过24小时。固定完成后,将组织转移至平底容器中,加入足量的70%乙醇(EtOH),其体积至少为组织体积的10倍。
4. 肠道的 Methacarn 固定
- 在解剖前,通过混合300 ml甲醇、150 ml氯仿和75 ml冰醋酸(4:2:1)配制甲醇-氯仿-醋酸(methacarn)固定液。将灌流后的肠管切成大小相等的三段:近端、中段和远端。
- 将每段肠管并排放置在一张滤纸(15 cm × 15 cm)上,使用弹簧剪沿肠壁纵向剪开呈“面朝上”展开状。将带有肠管的滤纸放入盛有methacarn固定液的玻璃皿中,在室温下固定3–24小时。固定完成后,用镊子夹住一段肠组织的末端。
- 将肠组织围绕镊子卷成“瑞士卷”(swiss roll)状,通过略微张开镊子并用25 G针穿刺固定该卷状结构。 将组织置于平底容器中,加入大量过量的中性缓冲福尔马林固定液(固定液体积至少为组织体积的10倍),存放至少1小时后再进行后续处理。
5. 全组织LacZ显色观察(改编自El Marjou 等18)
- 通过将熔融的石蜡与矿物油按10:1混合制备石蜡板。倒入15 cm培养皿中,静置冷却。按以下方法制备X-gal固定液 表1 并置于冰上保存。
- 取出整个肠道,用冰预冷的1×PBS冲洗,具体操作见第2节。通过灌注25 ml冰预冷的X-gal固定液固定肠道。
- 用剪刀将肠道切成3至5个等长的片段(每块培养板最多放5个)。 将每个肠段置于蜡板上,用针固定两端,使肠段沿系膜缘略微拉伸并朝上;修去多余的肠系膜组织。使用弹簧剪沿肠壁纵向剪开,并在操作过程中随时用针固定展开。
- 用X-gal固定液淹没切片,确保完全覆盖组织,4 °C下放置至少1小时 °C. 使用25 ml移液管移除X-gal固定液,加入30 ml 1×PBS洗涤一次。加入30 ml DTT去黏液溶液覆盖切片,室温下处理30–60分钟,理想条件下置于摇床上进行。
- 使用25 ml移液管移除去黏液溶液,并用30 ml 1x PBS浸润培养板。 使用巴斯德移液管用培养板中的1×PBS冲洗肠组织切片,以去除黏液。
- 用 25 ml 移液管移除 1x PBS,加入 30 ml X-gal 染色液覆盖样本。在室温避光条件下,于摇床上轻轻振荡孵育过夜。
- 过夜孵育后,检查切片是否已呈现出蓝色/绿色染色;如果背景颜色仍为白色,可添加新鲜染色液并持续观察,直至染色显现。注意:一旦切片完成染色,则不可再次进行染色。
- 使用25 ml移液管移除X-gal染色液,加入30 ml 1x PBS覆盖培养板,轻轻振荡3分钟。 移除针子,用镊子夹起一段肠组织的末端。将肠组织缠绕在镊子上形成“瑞士卷”状,略微张开镊子并用25 G针头穿过卷状结构以固定。
- 将组织置于含有过量中性缓冲福尔马林固定液的广口平底容器中,固定液体积至少为组织体积的10倍。 将样品置于4 °在包埋和切片前,于 4 °C 下固定至少 24 小时。
6. 从肠道中提取隐窝
- 按照第2节所述,分离小肠的前20 cm。将肠段置于洁净的解剖台上,用镊子和剪刀去除附着的脂肪和肠系膜。使用弹簧剪沿肠壁纵向剪开肠腔。
- 使用显微镜盖玻片用力刮擦肠腔,以去除绒毛和黏液。用剪刀将肠道切成约5 mm的小段,转移至含有25 ml 1×HBSS(添加青霉素(100 U/ml)和链霉素(100 U/ml))的50 ml离心管中。
- 孵育10分钟 在室温下,通过将样品过70 μm细胞筛,去除含抗生素的培养基 µm细胞筛
- 将肠段放入含有10 ml 1×HBSS的新鲜50 ml离心管中,并盖上管盖。
- 轻轻倒置两次,然后通过70 μm细胞滤网去除1x HBSS µm细胞滤筛。通过重复步骤6.4进一步清洗肠段 & 6.5 三次,并确保最终的上清液相对澄清。
- 将组织转移至含有10 ml EDTA(8 mM)/1×HBSS的新鲜50 ml离心管中,室温放置5 min。剧烈振荡(20–30次)或涡旋混匀,随后通过70 μm细胞滤膜 µm细胞滤筛过滤,并将组织碎片转移至含有EDTA(8 mM)/1×HBSS的新鲜50 ml离心管中。 注意:如果需要分析绒毛上皮,则可弃去或保留流穿部分。
- 将组织块置于冰上孵育 30 分钟,剧烈震荡(20 - 30 次)或涡旋振荡。将样品通过 70µ使用m细胞滤筛过滤,并保留滤过液,因为其中含有隐窝。
- 将组织块转移至含有10 ml 1×HBSS的新鲜50 ml离心管中。 剧烈振荡(20–30 次)或涡旋混合,经 70 μm 细胞筛过滤 µ使用m细胞筛过滤并收集滤过液。重复一次,以确保从肠组织碎片中最大程度回收隐窝。合并滤过液部分,在300 × g离心5分钟。弃去上清液,保留隐窝沉淀。 注意:沉淀物可立即用于培养(如适用)或在 -80 ℃ 保存 °C 在进行标准的 DNA/RNA/蛋白质提取程序之前。
7. 标准免疫组织化学染色
- 切片 5 µ将石蜡包埋组织切片贴附于多聚赖氨酸(PLL)载玻片上。注意:以下提供的是使用β-catenin抗体染色的标准操作流程,其他抗体的参数见 表2.
- 用新鲜二甲苯在切片缸中脱蜡,每次3分钟,重复2次。依次将切片在新鲜的100%乙醇(2次)、95%乙醇和70%乙醇中各通过3分钟进行水化,最后放入1×PBS中。
- 将载玻片放入盛有柠檬酸盐缓冲液(pH 6)的染色缸中,加热至 99.9°20 分钟,C 以回收抗原。让载玻片冷却,然后洗涤 3 次,每次 5 分钟 在含有1xTBS/T的切片孵育盒中孵育5分钟。从最后一次洗涤中取出切片,立即用PAP笔在组织周围画圈,然后用商用过氧化物酶阻断剂或1.5% H₂O₂覆盖切片2O2 (在蒸馏水中)2O)
- 室温(RT)孵育 20 分钟,然后在含有新鲜 1x 缓冲液的玻片盒中洗涤 3 次 TBS/T 洗涤 5 分钟。用移液器将盖玻片样本在 5% 正常兔血清(NRS)/1xTBS/T 中洗涤 30 分钟 在室温下孵育以阻断一抗的非特异性疏水结合。
- 用巴斯德吸管移除NRS封闭液,将切片覆盖于用5% NRS稀释的B-catenin一抗(1:200),孵育。更换缓冲液,清洗载玻片3次,每次5分钟 置于含新鲜 1xTBS/T 的切片浴中。注意:其他抗体需要优化稀释比例和特异性。 为确保抗体的特异性,应进行适当的无抗体对照和同型对照染色。 同型对照应与您的一抗的宿主物种和同型类别相匹配。
- 使用商业化的 HRP 检测试剂盒或合适的荧光标记二抗进行检测表2). 注意:每种抗体的孵育时间有所不同, ββ-catenin 10 - 15 秒 通常已足够。 为优化抗体的检测效果,首先应使用阳性对照切片确定显示阳性细胞所需的最适时间,然后将该条件应用于后续所有切片。
- 载玻片用 PBS 洗涤,每次 5 分钟,共 3 次 在含有新鲜 TBS/T 的切片缸中孵育切片。将切片浸入含有苏木精的切片缸中复染约 45 秒 (若使用荧光标记的二抗,则无需此步骤)。 将载玻片放入干净的染色缸中,用流动的自来水冲洗约1分钟,确保苏木精未被完全洗去。
- 通过不同浓度的酒精梯度对玻片进行脱水处理;每次30秒,共1次 在70% EtOH中处理1次,每次30秒;在95% EtOH中处理1次,每次30秒;在100% EtOH中清洗2次,每次2分钟 在二甲苯中。
- 使用商品化封片介质在盖玻片下封固载玻片。注:若使用荧光标记抗体,应选用含DAPI的封片介质以标记细胞核。
8. 特定肠上皮细胞的组织学鉴定
- 肠上皮细胞
- 使用第7节所述方法制备切片,并采用溶菌酶抗体及表2中描述的条件进行处理。
- 肠内分泌细胞(Grimelius染色18,19)。
- 按照步骤7.1–7.2制备切片。将载玻片置于含有超纯水的染色缸中清洗3分钟。将载玻片转移至含有预热银染液(表1)的染色缸中,60 °C孵育3小时。
- 取出载玻片,放入含有新鲜配制并预热的还原液(表2)的染色缸中,45 °C处理3分钟。 取出载玻片,放入含有新鲜超纯水的染色缸中清洗3分钟。随后执行第7节中的步骤7.6–7.8。
- 杯状细胞(阿利新蓝染色)。
- 按照步骤7.1–7.2制备切片。将载玻片转移至含有pH 2.5阿利新蓝溶液的染色缸中,室温染色5分钟 。用移液器吸除阿利新蓝染液,将染色缸置于流动自来水下冲洗3–5分钟。继续执行步骤7.6–7.8。 注意:阿利新蓝染色液可保留以供再次使用。
- 肠干细胞(ISCs)。
- 为鉴定肠干细胞,请参照第9节操作。
- 潘氏细胞。
- 使用第7节所述方法制备切片,并采用溶菌酶抗体及表2中描述的条件进行处理。
9. 原位 小鼠肠道中的 RNA 检测19-21
- 放置 5 µ将福尔马林固定的肠道组织(第3节)切成 m 切片,置于 PLL 载玻片上。 制备用于检测的线性化地高辛标记RNA探针 Olfm4 表达21. 按照第7节进行脱蜡和水化处理。注意:本实验应在无RNA酶的环境中进行,以防止RNA探针降解。
- 用PAP笔在组织周围画圈以减少试剂用量。将切片置于载玻片染色缸中,用6% H2O2 (在蒸馏水中)2O)30 分钟。 在载玻片染色缸中用新鲜的1×PBS洗涤两次,每次3分钟。弃去1×PBS,用移液器将4%多聚甲醛覆盖于切片上,冰上固定20分钟。
- 用新鲜的1×PBS在玻片缸中清洗两次,每次3分钟。使用移液器将蛋白酶K溶液覆盖在切片上,孵育5分钟。 在载玻片染色缸中用新鲜的1×PBS洗涤3分钟。使用移液器在室温下用4%多聚甲醛覆盖组织切片,进行5分钟的后固定。
- 在含DEPC处理的H₂O的玻片缸中清洗20,持续2分钟。用移液器将各部分覆盖于乙酸酐溶液中,持续10分钟。 轻柔振荡。在切片盒中用新鲜的1×PBS洗涤3分钟,随后用1×生理盐水洗涤3分钟。将切片依次通过含递增浓度酒精的容器进行处理:每次1次,30秒 在70% EtOH中处理1次,每次30秒;在95% EtOH中处理1次,每次30秒;用新鲜的100% EtOH洗涤2次,每次30秒;再洗涤2次,每次2分钟 在新鲜的二甲苯中浸泡并静置晾干。
- 稀释 Olfm4 探针按1:100比例加入杂交缓冲液中,并于80℃加热使探针变性˚℃ 3 分钟。加入 100 μ每张切片加入探针溶液,并用Parafilm封片以防止切片脱水。 在65℃的避光湿盒中孵育过夜 ˚C.
- 在载玻片染色缸中用 5 洗涤× SSC 在 65 ˚C孵育15分钟。用新鲜的50%甲酰胺/5在切片洗涤缸中洗涤切片两次× SSC/1% SDS 处理 30 分钟 65 时 ˚C. 用新鲜的PBT在载片盒中洗涤切片两次,每次10分钟,第一次在65 ˚C,第二个在室温下。用移液器将含有25 µg RNA酶处理45分钟 37℃ ˚C. 将切片在PBT中于载玻片染色缸内洗涤5分钟 在室温下。
- 用新鲜的50%甲酰胺/5在载玻片孵育盒中漂洗切片两次× SSC 缓冲液中孵育 30 分钟 在 65 ˚C. 封闭:用移液器将含10%羊血清的PBT覆盖组织切片,置于避光湿润的室温环境中孵育 2 - 3 小时
- 用含10%羊血清和5 mg/ml小鼠肠道粉末的PBT缓冲液将抗地高辛碱性磷酸酶偶联抗体按1:500比例稀释,制备抗体溶液。4℃孵育3小时 °在摇床上用暗处的 C 处理。离心去除多余的肠道粉末,向 supernatant 中加入 3 倍体积的含 1% 绵羊血清的 PBT。
- 用移液器从载玻片上移除组织块,并加入 100 μ向每个切片上加1滴抗体溶液,用封口膜覆盖,在黑暗湿润的孵育盒中于4℃孵育°C过夜。在玻片盒中清洗切片3× 用新鲜的PBT清洗5分钟。为封闭切片,在切片盒中用PBT洗涤3次× 用新鲜的 NTMT 缓冲液冲洗 5 分钟。
- 用移液器将BM紫覆盖每个切片,并在室温下避光孵育 24 - 72 小时 直至显现出足够深的显色为止。在切片漂洗槽中用PBT洗涤一次,然后浸入伊红中复染1分钟。 用流动水在载玻片盒中冲洗切片3至5分钟,以去除多余的伊红。 将载玻片浸入二甲苯中,待其自然晾干。使用市售封片剂在盖玻片下封片。
10. 肠道上皮的组织学表征
- 放置 5 µ固定组织的 m 切片(第 3 节) & 4) 载玻片上。 从每组至少4只小鼠中,各分析不少于25个完整的(或不少于50个半份的)隐窝,以评估以下各项参数。 注意:为保持一致性,应从每根肠管的相同位置(仅使用近端)分析隐窝。
- 标准H染色切片中的细胞参数&E 染色切片(除非另有说明):隐窝数量、高度、凋亡与有丝分裂。
- 隐窝数量。
- 使用低倍放大镜(例如 4倍或10倍)下手动计数与基底层接触的隐窝数量。 从至少4只小鼠中计数≥10个近端小肠横切面。
- 隐窝高度。
- 使用高倍放大镜(例如 20倍或40倍)下手动计数从隐窝底部到隐窝/绒毛轴的细胞数量(图3b).
- 细胞凋亡22,23.
- 方法1:使用高倍放大倍率(例如使用20倍或40倍物镜手动计数每个隐窝中的凋亡细胞数量。 凋亡细胞可通过细胞皱缩、染色质凝聚、胞质出泡以及凋亡小体的形成来识别(图3a).
- 方法2:使用第7节所述条件,对Caspase-3进行免疫组化染色 表2. 使用高倍放大镜(例如在每个隐窝中手动计数处于凋亡执行阶段的阳性细胞数量,以进行定量分析(使用20X或40X物镜)。
- 有丝分裂。
- 使用高倍放大镜(例如 20倍或40倍)以 手动计数每个隐窝中的有丝分裂细胞数量。 有丝分裂细胞含有凝缩的DNA物质,通常呈对称且形态完整(图3b).
- 增殖。
- 使用第7节中描述的条件,对Ki-67进行免疫组化(IHC)染色 表2. 手动计数阳性细胞,以定量增殖的隐窝细胞比例。
- 隐窝数量。
结果
比较 Ah-cre 与 Vil-Cre-ERT2 系统中 ISC 重组效率
为了评估潘氏细胞在肠道损伤后重建过程中的作用,需表征这些 cre-lox 系统在肠干细胞(ISC)中重组的效率。利用 Rosa26R-lacZ 条件性报告基因系统,我们证明在两种系统中,诱导后3天(d.p.i.)小肠内的重组效率均接近100%(图1a)。通过qPCR定量检测重组等位基因的存在时,由于不同系统间 Cre 表达模式的差异,结果受到干扰。vil-Cre-ERT2 系统的重组等位基因检出量较 Ah-cre 系统高出3.53倍,这是因其在更大比例的上皮细胞中表达16。为克服这一问题,我们采用了一种不同的策略,以直接比较两种系统。我们使用不同的诱导方案处理小鼠,并在诱导后30天(30 d.p.i.)进行分析,此时 LacZ 阳性的隐窝和绒毛代表了ISC中的重组事件。通过该方法,我们发现尽管 vil-Cre-ERT2 系统的初始重组水平显著更高,但在两种系统中,给予三种诱导剂注射(腹腔注射,80 mg/kg,每24小时一次),最终实现重组的ISC数量相当16(图1b-d)。此外,从重组隐窝中提取DNA并进行重组等位基因的qPCR检测,结果显示使用 vil-Cre-ERT2 系统时重组水平略有升高但无统计学意义,这可能归因于 Ah-cre 系统未能检测到潘氏细胞中的重组事件(图1d)。此外,对上皮细胞类型的染色分析未显示分化模式发生改变,所研究的每种细胞类型的代表性图像见于 图2e-2h。
肠道上皮在 CatnB 缺失后的表征
隐窝丢失的定量分析
表征这些 Cre 系统中重组的动态过程,使我们能够在等量的肠干细胞(ISCs)发生重组的情况下分析小鼠肠道。利用 LacZ 报告基因,两种系统均在重组后第3天(3 d.p.i.)显示出重组(蓝色)细胞完全丢失(图2a)。如先前报道,在 CatnB 基因缺失3天后,Ah-cre 小鼠表现出部分隐窝丢失,而 vil-Cre-ERT2 小鼠则表现出隐窝/绒毛轴的完全破坏13,16,24(图2b-d)。
上皮细胞重群动力学
利用上述技术,我们表征了多个参数,以帮助理解这一现象。使用方案7至10分析的参数和细胞类型的代表性图像见(图3a和3b)。简而言之,隐窝的丢失与两种系统中均表现出的凋亡水平升高一致(图3e)。然而,有丝分裂、增殖、隐窝细胞高度、隐窝数量及表达(未显示)等数据表明,Ah-cre系统能够恢复,可能是由于未发生重组的肠干细胞(ISCs)重新填充所致(图3c)。相比之下,尽管vil-Cre-ERT2 系统保留了上皮隐窝细胞,却未能恢复(图3d)。
隐窝内细胞表型的表征
要了解隐窝为何会从 Ah-cre 小鼠能够重建,而 vil-Cre-ERT2 我们能否在上皮细胞基因敲除三天后对其进行表征 CatnB使用 原位 杂交(第9节)和免疫组化分析(第7、8节) & 10) 我们证明了隐窝细胞在 vil-Cre-ERT2 CatnBflox/flox 小鼠的细胞无增殖活性,且不表达肠干细胞标志物Olfm4,这与隐窝中的情况不同 Ah-cre 小鼠(图 4c & f)。由于初步表征已表明隐窝中的重组效率相当,我们进而探究了潘氏细胞的作用。我们进行了双重荧光免疫组化染色,针对 CatnB 和 Lyz1 以确定哪些细胞失去了β-catenin,以及它们是否为潘氏细胞(图5a-5c)。如先前所述,我们已证明使用该方法可靶向所有隐窝细胞 vil-Cre-ERT2 系统。相比之下, Ah-cre 系统保留了潘氏细胞和绒毛上皮细胞。进一步观察到潘氏细胞仅在发生凋亡后 CatnB 使用以下方法进行缺失 vil-Cre-ERT2 系统图5d & 5e).
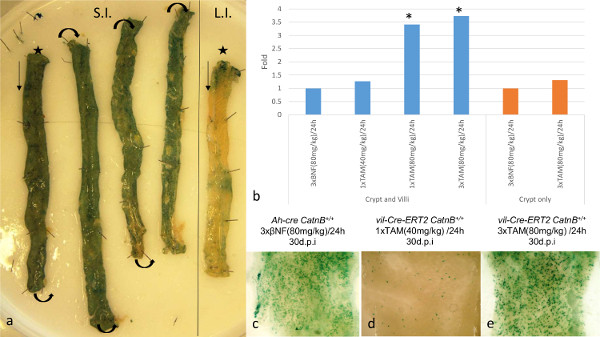
图1: 使用 Cre/Lox 系统在肠上皮中重组特异性和效率的比较 Ah-cre 和 Vil-Cre-ERT2 系统。 (a):可视化 Ah-creLacZ 野生型小鼠小肠(S.I.;*远端)和大肠(L.I.;*远端)整体标本中的报告基因表达。(b)qPCR结果,显示重组后的倍数变化 CatnBflox 1 d.p.i. 时的等位基因以比较不同诱导方案 Ah-cre CatnBflox/flox (BNF 诱导)和 vil-Cre-ERT2 CatnBflox/flox (TAM 诱导);*P >0.05(与对照组相比,Mann-Whitney [双尾] 检验)。(c)–(e):显示感染后30天LacZ阳性隐窝的全层小肠组织。图(b)–(e)经Parry修改 等16. 请点击此处以查看此图的放大版本。
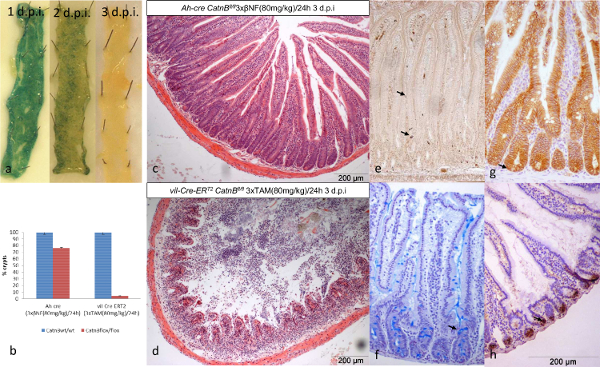
图2:在小肠上皮细胞中条件性敲除CatnB所用的Ah-cre与Vil-Cre-ERT2系统的比较。 (a):整装小肠组织显示,在Ah-cre CatnBflox/floxLacZ+ 小鼠中,重组细胞在3天内逐渐丢失。(b):CatnB敲除后3天隐窝丢失的定量分析;*P >0.05(与对照组相比,采用Mann-Whitney双尾检验)。(c&d):经甲醛固定的肠道横切面H&E染色,显示CatnB敲除后隐窝的缺失。(e)–(h) 对照组小鼠中各类细胞的示例:(e) 肠内分泌细胞,(f) 杯状细胞,(g) CatnB免疫组化染色显示一个具有核内β-catenin的肠干细胞(→),以及(h) 潘氏细胞。图(b)经Parry 等16修改。 请点击此处查看该图的放大版本。
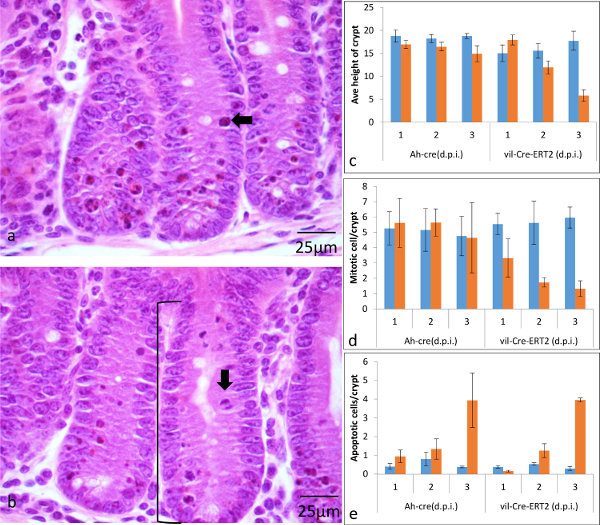
图3:使用Ah-cre和Vil-Cre-ERT2系统在小肠上皮中相似数量的ISCs内条件性敲除CatnB时表型起始的表征。 (a&b) 经甲醛固定并进行H&E染色的切片,显示隐窝高度的位置 ([)、凋亡细胞 (←) 和有丝分裂细胞 (↓)。在三个时间点(感染后天数,d.p.i.)对野生型(蓝色)和CatnBflox(橙色)小鼠每隐窝平均细胞数进行定量分析。(c) 隐窝高度,(d) 有丝分裂,(e) 凋亡(误差条表示标准差)。图(c)-(e)经Parry et al16修改。 请点击此处查看该图的放大版本。
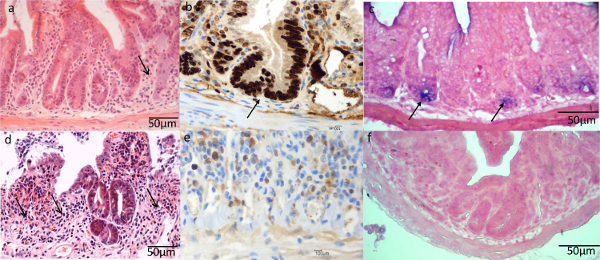
图 4:使用Ah-cre和Vil-Cre-ERT2系统在小肠上皮中条件性敲除CatnB后对肠干细胞(ISC)特征的比较。 使用Ah-cre(a-c)或vil-Cre-ERT2(d-f)系统敲除CatnB后第3天的上皮隐窝细胞。(a&d)H&E染色切片显示隐窝缺失区域;(b&e)Ki-67免疫组化(IHC)显示使用vil-Cre-ERT2系统后增殖细胞丢失;(c&f)Olfm4原位杂交显示使用Ah-cre系统后功能性肠干细胞(ISC)仍然存在。图(a)-(f)经Parry et al16修改。 请点击此处查看该图的放大版本。
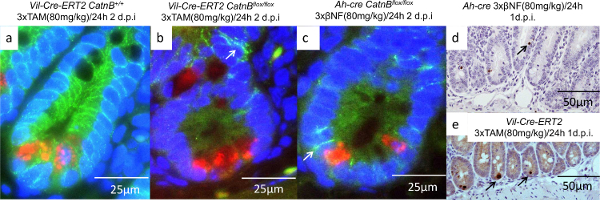
图 5:使用 Vil-Cre-ERT2 和 Ah-cre 系统删除 CatnB 后潘氏细胞的表征。 (a-c):显示潘氏细胞(红色)、β-连环蛋白(绿色)和细胞核(蓝色)的隐窝免疫荧光图像,箭头指示膜结合的 β-catenin;(d-e) Caspase-3 的免疫组化结果显示,在 Ah-cre (d) 中未见凋亡的潘氏细胞,而在 vil-Cre-ERT2 系统(e)中可见。图 (a)-(e) 经修改自 Parry et al16。请点击此处查看该图的放大版本。
| 乙酸盐缓冲液 | * | * | 配制100 ml:4.8 ml 0.2 M 乙酸,45.2 ml 0.2 M 乙酸钠,以及50 ml 蒸馏水 |
| 乙酸 | Fisher Scientific | C/0400/PB17 | |
| 乙酸酐 | Sigma | A6404 | |
| 乙酸酐溶液 | * | * | 2 M 乙酸酐溶于0.1 M 三乙醇胺盐酸盐中 |
| 阿辛蓝 | Sigma | A5268 | |
| 阿辛蓝 pH 2.5 | * | * | 配制500 ml:15 ml 乙酸,5 g 阿辛蓝,以及485 ml 蒸馏水 |
| 抗地高辛碱性磷酸酶偶联抗体 | Abcam | ab119345 | |
| B(β)-萘黄酮 | Sigma | N3633 | BNF,注射前避免溶液过度冷却,否则化合物会析出。溶液可重复使用——使用间储存于-20 °C,加热次数不超过两次。 |
| Bloxall | Vector Labs | SP-6000 | |
| BM 紫色显色液 | Roche | 11442074001 | |
| BSA | Sigma | A4503 | 牛血清白蛋白 |
| 氯仿 | Fisher Scientific | C/4920/17 | |
| 柠檬酸盐缓冲液/抗原修复液 | Vector Labs | H-3300 | |
| 玉米油 | Sigma | C8627 | |
| 去黏液溶液 | * | * | 配制500 ml:50 ml 甘油,50 ml 0.1 M Tris pH 8.8,100 ml 乙醇,300 ml 生理盐水(0.9% NaCl 水溶液),DTT 1.7 g。去黏液溶液可预先配制并储存,但DTT应在孵育前加入(每100 ml加340 mg)。 |
| DEPC处理水 | Life Technologies | 750023 | |
| DTT | Sigma | 101509944 | |
| EDTA | Sigma | O3690 | 0.5 M |
| 乙醇 | Fisher Scientific | E/0650DF/17 | |
| 滤纸 | Whatman | 3000917 | |
| 甲醛 | Sigma | F8775 | |
| 福尔马林 | Sigma | SLBL11382V | 中性缓冲福尔马林 |
| 甲酰胺 | Sigma | F5786 | |
| 戊二醛 | Sigma | G6257 | |
| H2O2 | Sigma | 216763 | |
| 苏木精 | Raymond A Lamb | 12698616 | |
| HBSS | Gibco | 14175-053 | HBSS (-MgCl2+; -CaCl2) |
| 杂交缓冲液 | * | * | 5× SSC,50% 甲酰胺,5% SDS,1 mg/ml 肝素,1 mg/ml 小牛肝tRNA |
| 对苯二酚 | Sigma | H9003 | |
| ImmPACT DAB 过氧化物酶显色试剂 | Vector Labs | SK-4105 | |
| Immpress HRP 抗小鼠IgG试剂盒 | Vector Labs | MP-7402 | |
| Immpress HRP 抗兔IgG试剂盒 | Vector Labs | MP-7401 | |
| 肠道组织粉末 | * | * | 取5只成年小鼠的小肠合并,用最小体积的冰预冷PBS匀浆。向匀浆中加入4倍体积的冰预冷丙酮,充分混匀后冰上孵育30分钟。离心后,沉淀用冰预冷丙酮洗涤。再次离心后,将所得沉淀铺于滤纸上晾干。完全干燥后,用研钵研磨成细粉。 |
| 铁氰化钾 | Sigma | P-3667 | |
| 亚铁氰化钾 | Sigma | P3289 | |
| 左旋咪唑 | Sigma | L0380000 | |
| Methacarn | * | * | 60% 甲醇 : 30% 氯仿 : 10% 乙酸 |
| 甲醇 | Fisher Scientific | M/4000/17 | |
| MgCl2 | Sigma | M8266 | |
| 正常山羊血清 | Vector Labs | S-1012 | NGS |
| 正常兔血清 | Dako | X0902 | NRS |
| NTMT | * | * | 100 mM NaCl,100 mM Tris HCl,50 mM MgCl2,0.1% Tween20,2 mM 左旋咪唑 |
| PAP笔 | Vector | H-400 | |
| 多聚甲醛 | Sigma | P6148 | |
| PBT | * | * | 0.5 M NaCl,10 mM TrisHCl pH 7.5,0.1% Tween 20 |
| 青霉素/链霉素 | Gibco | 15140-122 | 100倍溶液。 |
| 磷酸盐缓冲液(10倍浓缩液) | Fisher Scientific | BP3994 | 用蒸馏水1:10稀释成1倍工作液 |
| PLL载玻片 | Sigma | P0425-72EA | 聚-L-赖氨酸载玻片 |
| 蛋白酶K | Sigma | P2308 | |
| 蛋白酶K溶液 | * | * | 将蛋白酶K稀释至50 mM Tris,5 mM EDTA中,终浓度为200 µg/ml。 |
| Ralwax | BDH | 36154 7N | |
| 还原溶液 | * | * | 配制100 ml:1 g 对苯二酚,5 g 亚硫酸钠,以及100 ml 蒸馏水 |
| RNaseA | Sigma | R6148 | |
| 生理盐水 | * | * | 0.9% NaCl 水溶液 |
| SDS | Sigma | I3771 | |
| 绵羊血清 | Sigma | S3772 | |
| 硝酸银 | Sigma | S/1240/46 | |
| 银染溶液 | * | * | 配制100 ml:10 ml 乙酸盐缓冲液,87 ml 蒸馏水,3 ml 1% 硝酸银 |
| 乙酸钠 | Fisher Scientific | S/2120/53 | |
| 氯化钠 | Sigma | S6753 | NaCl |
| 亚硫酸钠 | Sigma | 239321 | |
| SSC | Sigma | 93017 | 20倍柠檬酸钠生理盐水 |
| 外科胶带 | Fisher Scientific | 12960495 | |
| 他莫昔芬 | Sigma | T5648 | TAM,注射前避免溶液过度冷却,否则化合物会析出。溶液可重复使用——使用间储存于-20 °C,加热次数不超过两次。 |
| TBS/T | Cell Signalling | #9997 | |
| 三乙醇胺盐酸盐 | Sigma | T1502 | |
| Tris-HCl | Invitrogen | 15567-027 | |
| Tween20 | Sigma | TP9416 | |
| VectaMount | Vector Labs | H-5000 | |
| 含DAPI的VectaShield Hardset封片剂 | Vector Labs | H-1500 | |
| Vectastain ABC试剂盒 | Vector Labs | PK-4001 | |
| X-gal | Promega | V3941 | |
| X-gal固定液 | * | * | 1×PBS中含2% 甲醛和0.1% 戊二醛 |
| X-gal染色液 | * | * | X-gal染色液:50 ml 溶液B中加入200 μl X-gal(A)(溶液B:500 ml PBS中含0.214 g MgCl2、0.48 g 铁氰化钾、0.734 g 亚铁氰化钾)。溶液B可预先配制并储存于4 °C |
| 二甲苯 | Fisher Scientific | X/0200/21 |
表1: 材料与方法
| 靶标 | beta-Catenin | Lysozyme | Ki67 | Caspase-3 | Villin |
| 一抗商业来源 | Transduction Labs | Neomarkers | Vector Labs | R&D Systems | Santa Cruz |
| 目录编号 | 610154 | RB-372 | VP-K452 | AF835 | SC-7672 |
| 一抗宿主来源 | 小鼠 (mAb) | 兔 (pAb) | 小鼠 (mAb) | 兔 (pAb) | 山羊 (pAb) |
| 抗原修复 | 沸水浴/柠檬酸缓冲液 | 沸水浴/柠檬酸缓冲液 | 沸水浴/柠檬酸缓冲液 | 沸水浴/柠檬酸缓冲液 | 沸水浴/柠檬酸缓冲液 |
| 过氧化物酶封闭 | Bloxall 或 2% H2O2,45 秒 | Bloxall 或 1.5% H2O2,30 分钟 | Bloxall 或 0.5% H2O2,20 分钟 | Bloxall 或 2% H2O2,45 秒 | Bloxall 或 3% H2O2,20 分钟 |
| 血清封闭 | 1% BSA,30 分钟 | 10% NGS,30 分钟 | 20% NRS,20 分钟 | 10% NGS,45 分钟 | 10% NRS,30 分钟 |
| 洗涤缓冲液 | PBS | TBS/T | TBS/T | PBS | TBS/T |
| 一抗孵育条件 | 1/300,室温 2 小时 | 1/100,室温 1 小时 | 1/50,室温 1 小时 | 1/750,4°C 过夜 | 1/500,室温 1 小时 |
| 二抗 | Immpress HRP Anti-Mouse IgG Kit | Immpress HRP Anti-Rabbit IgG Kit | Biotinylated Rabbit anti-Mouse | Biotinylated Goat anti-Rabbit | Biotinylated Rabbit anti-Goat |
| 二抗孵育条件 | 室温 1 小时 | 室温 30 分钟 | 1/200,室温 30 分钟 | 1/200,室温 30 分钟 | 1/200,室温 30 分钟 |
| 信号放大 | N/A | N/A | ABC 试剂盒 | ABC 试剂盒 | ABC 试剂盒 |
| 信号检测 | ImmPACT DAB Peroxidase | ImmPACT DAB Peroxidase | ImmPACT DAB Peroxidase | ImmPACT DAB Peroxidase | ImmPACT DAB Peroxidase |
| 免疫荧光抗体 | Alexafluor 488 | Alexafluor 594 | N/A | N/A | N/A |
| 免疫荧光特性 | 激发最大值 488 / 发射最大值 525 | 激发最大值 595 / 发射最大值 617 | |||
| 常用滤光片组 | FITC | Texas Red |
表2:免疫组化抗体及实验条件
讨论
利用条件性 cre-lox 转基因小鼠来解析基因和细胞的功能是一种常用的方法。这些模型已在肠道研究中成功应用于鉴定和表征干细胞2,4-6,并阐明其在疾病中的作用25。要充分运用这些模型,必须对系统进行全面表征,以确保数据能够被正确解读。由于基因很少仅特异性地表达于单一细胞类型或特定位置,加之生物学知识的缺乏以及诱导 Cre 表达系统的效率有限,全面理解这些系统往往具有挑战性。本文所述方法展示了我们如何通过实验设计并结合已有知识来克服这些问题。尽管我们使用这些方法回答了一个特定的研究问题,但所介绍的技术具有通用性,可应用于任何针对小鼠肠道的研究。
肠道组织的制备
确保获得可靠结果的关键步骤在于组织的采集与处理,必须及时进行处理,并严格遵守固定方案。几乎所有后续出现的重大问题都可归因于组织干燥和/或固定不完全所导致的假象。时间控制至关重要,以防止组织结构和/或核酸与蛋白质发生降解。固定不充分或过度均可能导致组织化学分辨率的丧失。若因固定时间不足或组织切片过厚而影响固定液渗透,会造成肠隐窝内部分辨率下降,在免疫组化分析中表现为“潮汐线”样改变。此外,固定时间也不可过长,因为在福尔马林固定后若未立即进行后续处理和石蜡包埋,核内β-catenin可能从细胞核中扩散出来。
潘氏细胞在肠干细胞微环境中的作用
本文所展示的数据有效地表明了潘氏细胞在成年肠道肠干细胞丢失后隐窝再生过程中的重要性。然而,仍存在一种可能性,即Ah-cre 系统可能保留了一部分肠干细胞群体,而这些群体可被vil-Cre-ERT2 靶向。Tian et al.26 精妙地证明了Lgr5hi 肠干细胞会被一群Lgr5lo 的备用肠干细胞所取代。目前看来,在Ah-cre 系统中这些肠干细胞可能因备用群体已被确认为分泌细胞前体而得以保留6,7。当这些分泌细胞前体需要逆转为肠干细胞状态时,成熟潘氏细胞在支持这一过程中的作用仍有待阐明。由于潘氏细胞构成了肠干细胞微环境8,并在调节肠干细胞对热量摄入27和炎症反应28中发挥重要作用,因此它们的滋养功能很可能也延伸至其自身的前体细胞。
有效建模人类结直肠癌的新方法与新技术
ISC 的发现促使了相关基因的鉴定,这些基因现正被用于构建新的小鼠模型,以研究基因和细胞在肠道生物学与疾病中的作用,详见 Clarke 的综述 等9该技术的唯一局限在于确定表达Cre蛋白的基因。目前,肠干细胞(ISCs)通常利用基于 Lgr5 基因表达模式。表达该基因的小鼠 Cre 从 Lgr5 启动子已被用于删除 Apc,结直肠癌(CRC)中最常发生突变的基因,证明了肠干细胞(ISC)是该肿瘤的起源细胞25选择性地删除这些细胞中的其他结直肠癌相关基因,有助于揭示疾病进展和扩散的机制 例如. PTEN29通过特异性消融进一步揭示ISC功能 Lgr5-利用将人源白喉毒素受体(DTR)基因敲入小鼠基因组的方法标记表达特定基因的细胞 Lgr5 位点26其他策略采用 Tet-O 系统,可实现突变蛋白的持续可逆表达30利用这些工具在不同细胞中对基因进行修饰31 和位置32,33 用于了解癌症如何发生、发展和转移34或者,利用睡美人转座子系统进行的诱变正在识别结直肠癌(CRC)新的驱动因子。小鼠模型、技术及基因改造策略的持续发展,正不断推动建立更贴近患者情况的模型。
已开发出用于表征肠上皮细胞和肠干细胞(ISCs)的新方法。通过凝集素和CD24的差异表达,可利用流式细胞术实现对不同类型上皮细胞比例的表征。35. 有望通过以下方法在理解ISC生物学及其在疾病中的作用方面取得最大进展 离体 类器官培养系统36该系统可使正常和恶性肠干细胞在三维环境中培养,在此环境中它们能够以更接近生理条件的方式进行增殖和分化。有望利用该系统对患者样本直接进行药物测试。 体外 为个性化医疗铺平道路37.
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Mark Bishop、Mathew Zverev、Victoria Marsh-Durban、Adam Blackwood 和 Sylvie Robine 的贡献。本工作由英国癌症研究基金会的项目资助支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酸盐缓冲液 | * | * | 配制100 ml溶液:0.2 M 乙酸4.8 ml,0.2 M 乙酸钠45.2 ml &和 50 ml 蒸馏水 |
| 乙酸 | Fisher Scientific | C/0400/PB17 | |
| 乙酸酐 | Sigma | A6404 | |
| 乙酸酐溶液 | * | * | 0.1 M 盐酸三乙醇胺中的 2 M 乙酸酐 |
| 阿利新蓝 | Sigma | A5268 | |
| 阿尔新蓝 pH 2.5 | * | * | 配制500 ml溶液:15 ml 乙酸,5 g 阿利新蓝 & 485 ml 蒸馏水 |
| 抗地高辛碱性磷酸酶偶联抗体 | Abcam | ab119345 | |
| B(β)-萘黄酮 | Sigma | N3633 | BNF,注入时避免溶液过度冷却,否则化合物会析出。溶液可重复使用 – -20 保存 °使用间隙需冷却至室温,加热次数不得超过两次。 |
| Bloxall | Vector Labs | SP-6000 | |
| BM 紫色 | 罗氏 | 11442074001 | |
| BSA | Sigma | A4503 | 牛血清白蛋白 |
| 氯仿 | Fisher Scientific | C/4920/17 | |
| 柠檬酸盐缓冲液/抗原修复液 | Vector Laboratories | H-3300 | |
| 玉米油 | Sigma | C8627 | |
| 去黏液溶液 | * | * | 500 ml 配方:50 ml 甘油,50 ml 0.1 M Tris(pH 8.8),100 ml 乙醇,300 ml 生理盐水(0.9% NaCl 水溶液),DTT 1.7 g 去黏液溶液可预先配制并储存,但DTT应在孵育前添加(340 mg/100 ml)。 |
| DEPC处理水 | Life Technologies | 750023 | |
| DTT | Sigma | 101509944 | |
| EDTA | Sigma | O3690 | 0.5 M |
| 乙醇 | Fisher Scientific | E/0650DF/17 | |
| 滤纸 | Whatman | 3000917 | |
| 甲醛 | Sigma | F8775 | |
| 甲醛 | Sigma | SLBL11382V | 中性缓冲甲醛 |
| 甲酰胺 | Sigma | F5786 | |
| 戊二醛 | Sigma | G6257 | |
| H2O2 | Sigma | 216763 | |
| 苏木精 | Raymond A Lamb | 12698616 | |
| HBSS | Gibco | 14175-053 | HBSS(-MgCl₂ +;-CaCl₂) |
| 杂交缓冲液 | * | * | 5× SSC、50% 甲酰胺、5% SDS、1 mg/ml 肝素、1 mg/ml 小牛肝 tRNA |
| 氢醌 | Sigma | H9003 | |
| ImmPACT DAB 过氧化物酶 | Vector Laboratories | SK-4105 | |
| Immpress HRP Anti-Mouse IgG 试剂盒 | Vector Labs | MP-7402 | |
| Immpress HRP 抗兔 IgG 试剂盒 | Vector Laboratories | MP-7401 | |
| 肠道组织粉末 | * | * | 将5只成年小鼠的小肠合并,在最小体积的冰冻PBS中匀浆。向匀浆后的肠道组织中加入4倍体积的冰冻丙酮,充分混匀后于冰上孵育30分钟。随后进行离心,沉淀用冰冻丙酮洗涤。再次离心后,将所得沉淀铺于滤纸上,静置干燥。待样品完全干燥后,用研钵和研杵研磨成细粉。 |
| K-铁氰化钾 | Sigma | P-3667 | |
| K-亚铁氰化物 | Sigma | P3289 | |
| 左旋咪唑 | Sigma | L0380000 | |
| Methacarn | * | * | 60% 甲醇 : 30% 氯仿 : 10% 乙酸 |
| 甲醇 | Fisher Scientific | M/4000/17 | |
| MgCl2 | Sigma | M8266 | |
| 正常山羊血清 | Vector Laboratories | S-1012 | NGS |
| 正常兔血清 | Dako | X0902 | NRS |
| NTMT | * | * | 100 mM NaCl,100 mM Tris HCl,50 mM MgCl2,0.1% Tween20,2 mM 左旋咪唑 |
| PAP笔 | 载体 | H-400 | |
| 多聚甲醛 | Sigma | P6148 | |
| PBT | * | * | 0.5 M NaCl,10 mM TrisHCl pH 7.5,0.1% Tween 20 |
| 青霉素/链霉素 | Gibco | 15140-122 | 100倍浓缩液 |
| 磷酸盐缓冲液(10倍浓度) | Fisher Scientific | BP3994 | 用蒸馏水按1:10比例稀释,配制成1x溶液 |
| PLL载玻片 | Sigma | P0425-72EA | 多聚-L-赖氨酸载玻片 |
| 蛋白酶K | Sigma | P2308 | |
| 蛋白酶K溶液 | * | * | 稀释蛋白酶K至200 µg/ml,溶于50 mM Tris、5 mM EDTA中。 |
| Ralwax | BDH | 36154 7N | |
| 还原剂溶液 | * | * | 配制100 ml溶液:1 g 氢醌,5 g 亚硫酸钠 && 100 ml 蒸馏水 |
| RnaseA | Sigma | R6148 | |
| 生理盐水 | * | * | 蒸馏水中0.9% NaCl |
| SDS | Sigma | I3771 | |
| 羊血清 | Sigma | S3772 | |
| 硝酸银 | Sigma | S/1240/46 | |
| 银溶液 | * | * | 配制100 ml溶液:10 ml 乙酸盐缓冲液,87 ml 蒸馏水,3 ml 1% 硝酸银 |
| 乙酸钠 | Fisher Scientific | S/2120/53 | |
| 氯化钠 | Sigma | S6753 | NaCl |
| 亚硫酸钠 | Sigma | 239321 | |
| SSC | Sigma | 93017 | 20x 柠檬酸钠盐水 |
| 手术胶带 | Fisher Scientific | 12960495 | |
| 他莫昔芬 | Sigma | T5648 | TAM,在溶液未过度冷却前进行注射,以免化合物析出。溶液可重复使用 – -20储存 °使用间隙需冷却至室温,且加热次数不得超过两次。 |
| TBS/T | 细胞信号传导 | #9997 | |
| 三乙醇胺盐酸盐 | Sigma | T1502 | |
| Tris-HCl | Invitrogen | 15567-027 | |
| Tween 20 | Sigma | TP9416 | |
| VectaMount | Vector Laboratories | H-5000 | |
| 含DAPI的VectaShield封片剂 | Vector Labs | H-1500 | |
| Vectastain ABC试剂盒 | Vector Labs | PK-4001 | |
| X-gal | Promega | V3941 | |
| X-gal 固定液 | * | * | 2% 甲醛,0.1% 戊二醛,溶于 1x PBS 中 |
| X-gal 染色 | * | * | X-gal 染色;200 μl X-gal(A)溶于50 ml溶液B(0.214 g MgCl₂、0.48 g 铁氰化钾、0.734 g 亚铁氰化钾溶于500 ml PBS中)。 溶液B可预先配制,并在4℃保存 °C |
| 二甲苯 | Fisher Scientific | X/0200/21 |
参考文献
- Cheng, H., Origin Leblond, C. P. differentiation and renewal of the four main epithelial cell types in the mouse small intestine. V. Unitarian Theory of the origin of the four epithelial cell types. Am J Anat. 141 (4), 537-561 (1974).
- Barker, N., et al. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449 (7165), 1003-1007 (2007).
- Clevers, H. The gut, a clonal conveyor belt. , Available from: http://www.molecularmovies.com/movies/view/96 (2015).
- Snippert, H., et al. Intestinal crypt homeostasis results from neutral competition between symmetrically dividing Lgr5 stem cells. Cell. 143 (1), 134-144 (2010).
- Lopez-Garcia, C., Klein, A. M., Simons, B. D., Winton, D. J. Intestinal stem cell replacement follows a pattern of neutral drift. Science. 330 (6005), 822-825 (2010).
- Buczacki, S. J., et al. Intestinal label-retaining cells are secretory precursors expressing Lgr5. Nature. 495 (7439), 65-69 (2013).
- Basak, O., et al. Mapping early fate determination in Lgr5+ crypt stem cells using a novel Ki67-RFP allele. EMBO J. 33 (18), 2057-2068 (2014).
- Sato, T., et al. Paneth cells constitute the niche for Lgr5 stem cells in intestinal crypts. Nature. 469 (7330), 415-418 (2011).
- Young, M., Ordonez, L., Clarke, A. R. What are the best routes to effectively model human colorectal cancer. Molecular oncology. 7 (2), 178-189 (2013).
- Sauer, B., Henderson, N. Site-specific DNA recombination in mammalian cells by the Cre recombinase of bacteriophage P1. Proc Natl Acad Sci U.S.A. 85 (14), 5166-5170 (1988).
- Brault, V., et al. Inactivation of the beta-catenin gene by Wnt1-Cre-mediated deletion results in dramatic brain malformation and failure of craniofacial development. Development. 128 (8), 1253-1264 (2001).
- Fevr, T., Robine, S., Louvard, D., Huelsken, J. Wnt/β-catenin is essential for intestinal homeostasis and maintenance of intestinal stem cells. Molecular and Cellular Biology. 27 (21), 7551-7559 (2007).
- Ireland, H., et al. Inducible Cre-mediated control of gene expression in the murine gastrointestinal tract: effect of loss of beta-catenin. Gastroenterology. 126 (5), 1236-1246 (2004).
- Kemp, R., et al. Elimination of background recombination: somatic induction of Cre by combined transcriptional regulation and hormone binding affinity. Nucleic Acids Res. 32 (11), e92(2004).
- Madison, B. B., et al. Cis elements of the villin gene control expression in restricted domains of the vertical (crypt) and horizontal (duodenum, cecum) axes of the intestine. J Biol Chem. 277 (36), 33275-33283 (2002).
- Parry, L., Young, M., El Marjou, F., Clarke, A. R. Evidence for a crucial role of paneth cells in mediating the intestinal response to injury. Stem Cells. 31 (4), 776-785 (2013).
- Soriano, P. Generalized lacZ expression with the ROSA26 Cre reporter strain. Nat Genet. 21 (1), 70-71 (1999).
- el Marjou, F., et al. Tissue-specific and inducible Cre-mediated recombination in the gut epithelium. Genesis. 39 (3), 186-193 (2004).
- Guillemot, F., Nagy, A., Auerbach, A., Rossant, J., Joyner, A. L. Essential role of Mash-2 in extraembryonic development. Nature. 371 (6495), 333-336 (1994).
- Gregorieff, A., et al. Expression pattern of Wnt signaling components in the adult intestine. Gastroenterology. 129 (2), 626-638 (2005).
- van der Flier, L. G., Haegebarth, A., Stange, D. E., van de Wetering, M., Clevers, H. OLFM4 is a robust marker for stem cells in human intestine and marks a subset of colorectal cancer cells. Gastroenterology. 137 (1), 15-17 (2009).
- Merritt, A., Allen, T., Potten, C., Hickman, J. Apoptosis in small intestinal epithelial from p53-null mice: evidence for a delayed, p53-independent G2/M-associated cell death after gamma-irradiation. Oncogene. 14 (23), 2759-2766 (1997).
- Marshman, E., Ottewell, P., Potten, C., Watson, A. Caspase activation during spontaneous and radiation-induced apoptosis in the murine intestine. J Pathol. 195 (3), 285-292 (2001).
- Fevr, T., Robine, S., Louvard, D., Huelsken, J. Wnt/beta-catenin is essential for intestinal homeostasis and maintenance of intestinal stem cells. Mol Cell Biol. 27 (21), 7551-7559 (2007).
- Barker, N., et al. Crypt stem cells as the cells-of-origin of intestinal cancer. Nature. 457 (7229), 608-611 (2009).
- Tian, H., et al. A reserve stem cell population in small intestine renders Lgr5-positive cells dispensable. Nature. 478 (7368), 255-259 (2011).
- Yilmaz, O. H., et al. mTORC1 in the Paneth cell niche couples intestinal stem-cell function to calorie intake. Nature. 486 (7404), 490-495 (2012).
- Adolph, T. E., et al. Paneth cells as a site of origin for intestinal inflammation. Nature. 503 (7475), 272-276 (2013).
- Marsh, V., et al. Epithelial Pten is dispensable for intestinal homeostasis but suppresses adenoma development and progression after Apc mutation. Nat Genet. 40 (12), 1436-1444 (2008).
- Jardé, T., et al. In vivo and in vitro models for the therapeutic targeting of Wnt signaling using a Tet-OΔN89β-catenin system. Oncogene. 32 (7), 883-893 (2013).
- Hung, K. E., et al. Development of a mouse model for sporadic and metastatic colon tumors and its use in assessing drug treatment. Proc Natl Acad Sci U S A. 107 (4), 1565-1570 (2010).
- Dacquin, R., Starbuck, M., Schinke, T., Karsenty, G. Mouse alpha1(I)-collagen promoter is the best known promoter to drive efficient Cre recombinase expression in osteoblast. Dev Dyn. 224 (2), 245-251 (2002).
- Hinoi, T., et al. Mouse model of colonic adenoma-carcinoma progression based on somatic Apc inactivation. Cancer Res. 67 (20), 9721-9730 (2007).
- Sansom, O. J., et al. Loss of Apc allows phenotypic manifestation of the transforming properties of an endogenous K-ras oncogene in vivo. Proc Natl Acad Sci U.S.A. 103 (38), 14122-14127 (2006).
- Wong, V. W., et al. Lrig1 controls intestinal stem-cell homeostasis by negative regulation of ErbB signalling. Nat Cell Biol. 14 (4), 401-408 (2012).
- Sato, T., et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459 (7244), 262-265 (2009).
- van de Wetering, M., et al. Prospective Derivation of a Living Organoid Biobank of Colorectal Cancer Patients. Cell. 161 (4), 933-945 (2015).
重印与许可
