本文所述方法利用能够进行光学切片的荧光解剖显微镜,以及简单的重新调整策略来校正焦平面和层面漂移,从而实现对斑马鱼胚胎器官发育过程的延时分析。
本文内容
摘要
摘要
为了理解器官发生过程,需要记录组织发育过程中发生的空间和时间变化。本文所述方法利用配备结构化照明和z轴层析成像功能的荧光解剖显微镜,对斑马鱼胚胎中正常及受损肾脏的发育进行延时分析。为观察肾发生过程,采用了肾结构荧光标记的转基因斑马鱼(Tg(wt1b:GFP))。通过注射针对Wilms肿瘤基因wt1a的反义吗啉代寡核苷酸,诱导产生肾脏缺陷,该基因是已知对肾脏发育至关重要的因子。
实验装置的优势在于将变倍显微镜与无需额外设备即可重新调整x、y或z方向运动的简单策略相结合。为避免由温度变化和机械振动引起的焦平面漂移,采用了自动对焦策略,而无需使用通常必需的环境培养室。为了校正因xy漂移导致的位置变化,使用了印有定位网格的成像腔室。
与使用共聚焦激光扫描 或光片显微镜等更为复杂的延时成像光学切片装置相比,变倍显微镜操作简便。此外,它还具备解剖显微镜特有的优势,例如高景深和较长的工作距离。
本文介绍的器官发生研究方法也可用于不具备光学切片功能的荧光体视显微镜。尽管该技术在高通量方面存在局限,但它为通常用于组织发育和器官动态延时记录的更复杂设备提供了一种替代方案。
引言
原肠胚形成之后,器官发生是个体生命周期的下一个阶段。该过程涉及细胞的重排、相互作用,以及常常发生的细胞迁移,从而形成组织和器官。器官发育过程中若出现任何偏差,常会导致疾病,这些疾病可能在发育早期即表现出来,也可能在生命后期才显现。因此,理解器官发生的机制一直是发育生物学和生物医学研究的重要目标。为了能够研究某一特定器官的发育过程,该器官必须能够透过胚胎体壁被观察到,这样才能记录发育过程中发生的时空变化。此外,为了分析参与器官发生的各种因素的重要性,该器官还必须易于进行实验操作。
一种非常适合用于研究的生物体 在体 器官发生研究中常用的模式生物是斑马鱼。其胚胎发育过程中的透明特性,结合荧光转基因品系的应用,可实现对蛋白质定位与表达动态的观察,以及对内脏器官的可视化成像。 1这相较于哺乳动物模型具有独特优势,因为哺乳动物的器官无法在显微镜下进行实时观察,而斑马鱼的器官发育过程可被直接监测。此外,目前已有多种工具可用于操控斑马鱼的胚胎发育。除构建突变品系外,还可使用反义吗啉代寡核苷酸(MO)来抑制特定基因的活性,这些基因参与特定器官的发育过程。MO可靶向结合pre-mRNA的剪接位点或翻译起始密码子(AUG),从而干扰pre-mRNA的剪接或蛋白质的翻译。
斑马鱼胚胎肾脏(前肾)是一种结构简单但极具研究价值的模型,可用于研究肾脏发育及与肾脏疾病相关的基因功能2。它仅由两个称为肾单位的功能单元组成。每个肾单位包含一个进行血液滤过的肾小球3。其他组成部分包括短颈区域、用于溶质分泌和重吸收的分段小管,以及最终通向泄殖腔的导管4。尽管其结构简单,斑马鱼前肾的组织结构和多种细胞类型与哺乳动物肾脏非常相似5,6。
一个在肾脏发育中起关键作用的因子由Wilms肿瘤抑制基因Wt17编码。斑马鱼具有两个旁系同源基因wt1a和wt1b,在前肾发育过程中呈现部分重叠但不完全相同的表达模式8。通过使用GFP标记前肾结构的转基因斑马鱼模型,研究发现完全敲低wt1a或特定剪接形式分别会导致胚胎肾脏出现严重或轻度的畸形9,10。
本文所述方法利用配备结构化照明光学切片功能的荧光解剖显微镜,实现对斑马鱼胚胎中正常及受损肾发生过程的延时分析。光学切片技术通常可获取仅包含聚焦信息的图像,通过多种方法(如数学算法)可避免非聚焦信息的干扰。例如. 去卷积),光学设计(例如 共聚焦激光扫描显微镜)或两者结合使用(例如 结构照明显微技术
为了诱导肾脏发育缺陷,我们将针对wt1a的反义吗啉代寡核苷酸(MO)注射到一种转基因斑马鱼品系(Tg(wt1b:GFP))中。该品系在肾小球、颈区以及小管前段呈现GFP荧光9,10。与使用激光扫描或光片显微镜等进行光学切片的延时成像的更复杂装置相比,变倍显微镜操作简便且成本较低。此外,结构化照明设备可轻松与常规荧光设备(例如荧光灯、滤光片)结合使用,并具备解剖显微镜特有的优势,如更长的工作距离和更大的视场。实验中漂移问题的解决无需额外设备(如环境控制舱或防震台),这些设备通常为获得稳定结果所必需。为校正焦平面漂移,我们建立了自动对焦策略,并使用带有印刻重定位网格的成像腔室,以便在x或y方向发生漂移后重新调整位置。
该方法也可应用于无光学切片功能的显微镜,例如荧光体视显微镜,并为通常用于组织发育和器官动态延时记录的更复杂设备提供了一种替代方案。
方案
所有动物实验均按照《实验动物护理原则》以及现行的德国动物保护法进行。
1. 反义吗啉代寡核苷酸(MO)的制备
- 配制3 mM的MO储存液:将100 µl无菌超纯水加入含有冻干MO的玻璃小瓶(含300 nmol MO)中。为确保完全溶解,将储存液于65 °C加热5分钟。用Parafilm封口膜密封小瓶,并将MO储存液于室温(RT)保存。切勿将MO储存液冷藏,以免MO与小瓶管壁发生结合。
- 通过将MO储存液用无菌超纯水稀释,配制1 mM的MO工作液,并加入0.5%酚红溶液至终浓度为0.05%。
- 配制10 µl的MO工作液,需将3.3 µl MO储备液和1 µl 0.5%酚红溶液加入5.7 µl水中。在配制新的一批工作液前,将MO储备液于65 °C加热5分钟。
- 使用前将MO工作液离心,以防止堵塞注射针。例如,取10 µl MO储备液在15,000 × g下离心5分钟(室温),吸取8 µl上清液用于注射。
注意:吗啉代寡核苷酸溶液随时间推移可能出现活性降低 11为排除此因素,可按照制造商提供的方案,通过紫外分光光度法检测溶液。. 若使用过 wt1a 在长期储存过程中未观察到吗啉代寡核苷酸(morpholino)的有效性降低(3 mM工作溶液储存超过一年)。
2. 设置交配对并收集受精卵
- 显微注射前一日下午,设置五对 Tg (wt1b: GFP) 品系鱼,每对置于一个带有可拆卸筛网的繁殖容器中,以便在夜间将雄鱼和雌鱼分隔开。
注意:为确保有足够数量的卵用于成功的注射实验,作为交配对使用的鱼应事先经过筛选,并评估为产卵性能良好的"高产鱼"。 - 次日早晨,在灯光开启后,将雄鱼和雌鱼一起放置在筛网之上,该筛网可防止鱼类吞食其产下的卵。
- 观察产卵过程。一旦产卵数量达到可在4细胞期之前完成注射的数量(约50枚),立即再次将雄鱼与雌鱼分开。使用巴斯德移液管将卵转移至含有胚胎用水的培养皿中,进行第一轮注射。如需获得更多批次的卵,可将一对亲鱼多次合笼交配并重复分离。
3. 显微注射的准备工作
注意:提前完成步骤 3.1 和 3.2。
- 准备一个在注射过程中固定胚胎的培养皿(显微注射用培养皿):将一块载玻片以40–45°角插入盛有液态、透明、纯净、食品级硅胶的94 mm培养皿中。待硅胶固化后取出载玻片,即可在硅胶层中形成一条凹槽。
注意:也可使用1.5–3%琼脂糖代替硅胶,并将培养皿置于4 °C保存。 - 使用拉针仪从玻璃毛细管制备注射针。
- 使用带有内部细丝的毛细管。
注意:在回填后,细丝有助于将MO溶液向针尖方向输送(见3.3)。 - 在拉针仪上设置合适的参数。用于斑马鱼注射的优质针头应具有细长的尖端 12. 制备末端长约10 mm、直径约1.5–2 µm的微电极尖端。例如,使用水平拉针仪,设置参数如下:加热值 = 330,拉力 = 0,速度 = 40,时间 = 100。
- 在解剖显微镜下检查针头质量,剔除针尖过短或过长的针头。
注意:尖端较短的针容易损伤胚胎,而过长且过细的针在接触绒毛膜时容易弯曲,无法刺入。
- 使用带有内部细丝的毛细管。
- 用 2 µl 回填针头 使用微量移液器吸头吸取MO工作液,并将其插入显微注射装置的针头夹持器中。
- 由于针头尖端是封闭的,需在解剖显微镜下用尖头镊子夹住针的最末端并向后挤压,以形成开口。或者,也可使用显微注射装置将针尖轻轻推向坚硬表面来打开尖端。例如小金属块或镊子背面。
- 通过将MO工作液注射到置于网格刻度上的矿物油滴中来校准注射体积。调整注射时间,使液滴直径达到75 µm,从而获得约200 pl的注射体积。
4. 显微注射步骤
- 将1细胞期胚胎沿显微注射培养皿的凹槽排列,使植物极朝向针头进入的方向(即凹槽的45°角方向)。
- 用针头刺穿卵膜和卵黄,向1至2细胞期胚胎的卵黄中注射200 pl的1 mM MO工作溶液(0.2 pmol)。
- 使用开口较宽的巴斯德吸管,将所有已注射的胚胎收集至盛有胚胎培养液的培养皿中,并在28.5 °C条件下孵育。
- 下午时,用开口较宽的巴斯德吸管移除死亡胚胎,并更换胚胎培养液。
5. 胚胎制备 在体 内 成像
- 第二天早晨,将胚胎水更换为含有 0.003% N-苯硫脲(PTU)的胚胎水,以抑制黑色素形成。在原肠胚形成结束前不得使用 PTU,因为它会干扰早期胚胎发育。
注意:PTU 具有毒性和致畸性。操作时务必佩戴手套,避免吸入或接触皮肤。 - 在解剖显微镜下,使用尖头镊子在所需发育阶段去除胚胎的卵膜。用一对镊子夹住卵膜的一侧,再用另一对镊子尝试夹住卵膜的另一侧,小心地向相反方向拉动镊子,同时避免损伤胚胎。
- 通过将含有 0.003% PTU 的胚胎水更换为含有 0.003% PTU 和 0.02% 3-氨基苯甲酸乙酯甲磺酸盐(Tricaine)的胚胎水,对胚胎进行麻醉。
- 将胚胎包埋在底部为盖玻片、带有 50 µm 定位网格的 µ-培养皿中的低熔点琼脂糖中。正确的包埋操作需要一定练习。
- 在 1.5 ml 离心管中分装 1 ml 0.7% 琼脂糖,并置于 36 °C 的加热块上保温。使用开口较宽的巴斯德吸管将胚胎转移至 µ-培养皿中,用超细尖巴斯德吸管吸除多余胚胎水,然后覆盖温育过的琼脂糖。
- 在琼脂糖仍处于液态时,使用两个加样器吸头将胚胎调整至理想位置,需考虑目标结构及其与定位网格的距离。将目标结构(此处为前肾)尽可能靠近玻璃底部(此处为背侧朝下),并靠近网格区域。
- 为获得最佳成像质量,应通过将胚胎的目标结构尽可能贴近底部,以最小化胚胎与玻璃底之间的琼脂糖层厚度。此外,应将胚胎置于靠近网格的位置,但需注意避免网格与目标结构重叠。每个 µ-培养皿中包埋 3–4 个胚胎,选择位置最优者用于后续实验。
- 待琼脂糖凝固至足以固定胚胎后,静置 2–3 分钟,然后在包埋好的胚胎上覆盖含有 0.003% PTU 和 0.02% Tricaine 的胚胎水。倾去多余的胚胎水,或用超细尖巴斯德吸管吸除,并将 µ-培养皿盖旋至锁紧位置,防止蒸发。
注意:应避免 µ-培养皿中产生气泡,否则会影响图像采集。
6. 显微镜检查
注意:使用配备结构照明显微成像功能的显微镜。使用包含以下模块的软件进行图像采集:多通道、Z轴层扫、时间序列、软件自动对焦和扩展聚焦。
- 获取Z轴层扫图像
- 将 µ-dish 倒置,使玻璃底朝向物镜,此时 µ-dish 作为成像腔室使用。
- 将滑块切换至网格位置,并在软件控制中启用结构照明显微模式。
- 根据待检测样本(包埋的胚胎)选择相应通道,按照“焦点校准向导”的指示完成网格焦点的校准。
- 启动Z轴层扫采集模式,并设置为中心模式。将焦点对准样本中部,点击Center将其设为Z层扫的中心平面;通过定义中心位置周围的范围来设定Z层扫的尺寸。
注意:在Z层扫的第一层和最后一层之外,不应清晰看到目标结构。 - 调整光学切片之间的间距。为获得最佳Z轴分辨率,请点击Optimal按钮。软件将根据物镜的景深,依据奈奎斯特准则(50%重叠)推荐一个合适的间距。
注意:若希望减小文件大小且结构允许,可手动设置更大的间距。设置比推荐值更小的步长只会增加文件大小,而不会提升横向信息分辨率。
- 延时成像
- 打开时间序列工具,设置时间序列实验的时间间隔。例如,在5小时内每隔30分钟记录一次Z层扫图像。
- 为校正随时间发生的焦平面漂移,需设置自动对焦策略。勾选“Focus Strategy”对话框,从下拉菜单中选择软件自动对焦(Software Autofocus),并选择TL-明场通道作为参考通道。
- 每个时间点开始时均执行自动对焦。为在优化的时间范围内确保可靠的搜索范围,设置固定的200 µm相对搜索范围。该范围将以最大步长(Sampling参数)、基础质量(Quality参数)进行完整扫描(Range Coverage参数)。
- 为提高自动对焦的精度,激活在感兴趣焦点区域(focus ROI)内的测光功能,并在实时预览窗口中将该焦点ROI定位至目标结构周围。
注意:若系统未配备可在延时记录期间自动更新中心Z位置的软件自动对焦模块,则应在特定时间暂停实验,手动调整焦点后继续实验。 - 为补偿时间序列记录过程中可能发生的XY方向漂移,将成像腔室上印制的网格中某一特定点对准软件中的十字准线,并通过截图保存该定位位置。
- 启动时间序列实验。在时间间隔结束前暂停实验,如有必要,根据之前保存的截图重新调整定位,然后继续实验。
7. 图像处理
- 切换到处理选项卡,在“方法”对话框中选择扩展焦深(Extended Depth of Focus, EDF)。由于获取的是光学切片图像,需对图像序列应用最大投影(Maximum Projection)算法。
注意:此处算法首先将从图像栈中投影最亮或最暗的像素生成一幅复合二维图像,最终选择每个时间点方差最大的图像作为结果图像。 - 使用“电影导出”方法创建延时电影(例如 avi 或 move 文件)从 EDF 图像序列中导出。
结果
延时显微镜是一种强大的技术,可用于长时间观察动态的生物学过程。在延时成像过程中,一个常见的问题是由于温度变化和机械振动引起的 x、y 或 z 方向上的移动,称为漂移。本文介绍的方法能够在解剖显微镜上对斑马鱼胚胎或幼鱼中荧光标记的结构进行延时记录,且无需使用环境控制舱或防震台。
为补偿xy方向的漂移,将样品置于带有印刻重定位网格的成像腔室中(图1)。利用网格中特定位置点与软件工具十字线的对应关系,可将样品恢复至先前调整好的位置(图2A)。实验结果通过使用具备集成滑块的变倍显微镜获得,该滑块可实现基于结构化照明的光学切片(图2B)。为实现持续的焦平面校正,建立了自动对焦策略。在此策略中,软件自动对焦在每个时间点前基于最大对比度确定焦点位置,并将该焦点平面设为z轴层扫采集的中心平面。为尽量减少样品的光毒性,在自动对焦步骤中采用透射光明场通道作为参考通道,因其可在自动对焦过程中实现足够短的曝光时间(图2C)。
该方法被用于对照组和实验组肾脏发育的比较分析 wt1a 转基因斑马鱼品系的形态发生抑制胚胎(Tg(wt1b:GFP))。在肾发生的早期,该谱系在肾祖细胞起源的中胚层中表现出绿色荧光 9,10 以及随后形成的肾小管和肾单位原基中(图3).
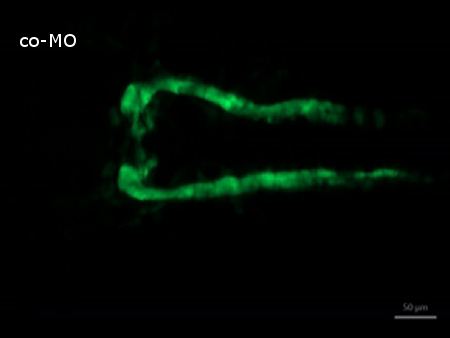
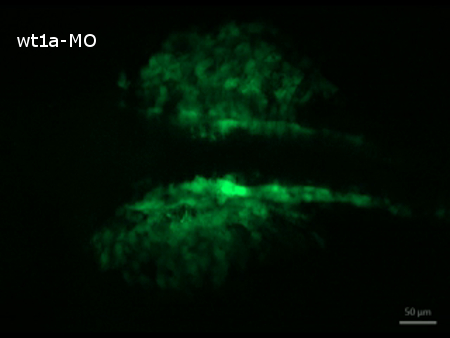
延时成像结果显示,与未注射的胚胎相比,对照形态学寡核苷酸(morpholino)注射胚胎中的肾发生过程未发生改变(结果未显示),并遵循已报道的早期斑马鱼肾脏发育步骤3。在受精后20小时(20 hpf),可观察到正在发育的前肾小管,其前端出现球形的细胞聚集,代表正在形成的肾单位原基。在随后的数小时内,小管和肾单位原基逐渐生长,之后原基在中线处开始融合(图4,视频2)。相比之下,wt1a 缺失胚胎中的肾发生过程受到严重破坏。尽管在20 hpf时仍可见GFP阳性的小管结构,但其形态更为弥散且发育不完全。此外,未形成正常的肾单位原基。与此时期对照胚胎最显著的差异在于,大量荧光标记的细胞出现在发育中的前肾区域之外(图4,视频2)。随后,这些细胞离开前肾区域并向腹侧迁移(视频2)。
既往通过在不同固定时间点成像,比较了对照胚胎与wt1b转基因品系中wt1a吗啉代寡核苷酸敲降胚胎的肾脏发育情况9,10。与这种静态方法不同,延时成像技术能够动态追踪正常肾发生过程中以及因wt1a缺失导致肾前体细胞迁移异常的过程。
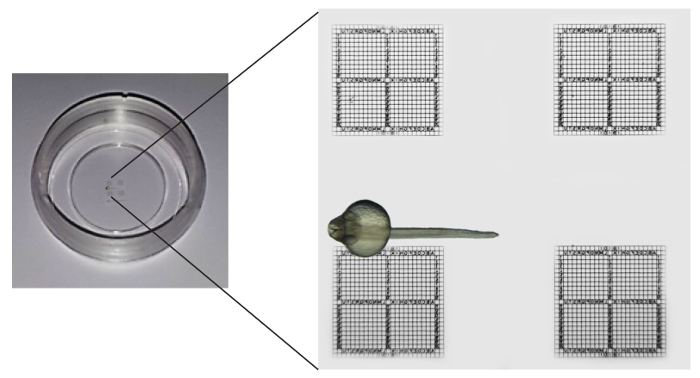
图1:商业可得培养腔室中带有定位网格的包埋胚胎示意图。该培养皿包含四个网格,每个网格进一步划分为50 µm的重复间距,刻印于玻璃盖玻片底部。待成像的胚胎倒置包埋,其肾脏结构靠近观察方格,但不与网格线重叠。请点击此处查看该图的放大版本。
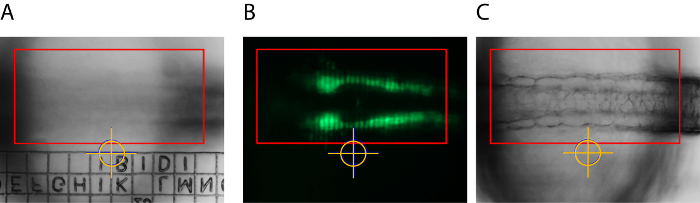
图 2:时间推移成像中漂移补偿的调整及结构照明显微的网格投影。 将重定位网格的一个特定位置移至图像中心(以黄色十字线标记),作为后续xy轴对齐的参考点,以应对微小位移。红色矩形代表自动对焦策略中使用的感兴趣区域(ROI)(A)。光学切片通过结构照明显微实现。图像显示在正确校准后,网格结构被投射到焦平面上(B)。自动对焦策略的感兴趣区域(红色矩形)被设定为覆盖对比度高的显著胚胎结构(此处为体节),从而可实现对目标结构的可靠自动对焦(C)。 请点击此处查看该图的放大版本。
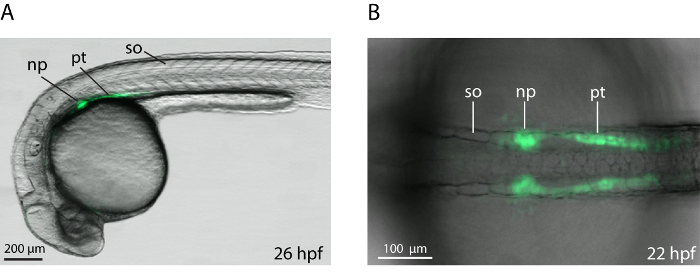
图3:在发育中的肾脏中呈现绿色荧光的转基因 wt1b:GFP 胚胎。 显示背侧(A)或侧视(B)透射光与荧光图像的叠加,左侧为头端。np,肾单位原基;pt,前肾小管;so,体节。请点击此处查看该图的放大版本。
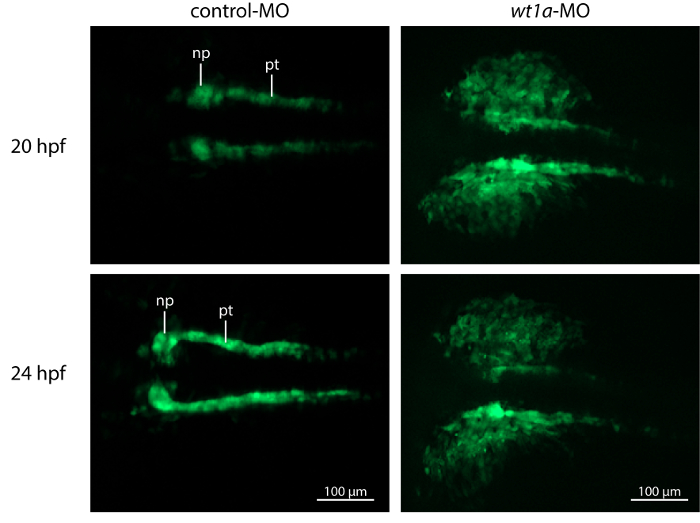
图 4:敲低 wt1a 会破坏胚胎肾脏发育。 来自延时记录的代表性扩展焦深图像。在注射对照形态素(morpholino)的胚胎中,肾脏发育进展正常,肾小管和肾单位原基逐渐生长,并在中线处开始融合。相比之下,wt1a 形态素处理的胚胎无法形成正常的肾单位原基,大量GFP阳性细胞位于前肾区域之外。(np,肾单位原基;pt,前肾小管)。请点击此处查看该图的放大版本。
补充视频 1. 对照吗啉代注射胚胎中正常肾脏发育的延时记录。(右键单击可下载) 该视频展示了肾小管如何生长以及肾单位原基开始融合的过程。从20 hpf开始,每隔30分钟采集一次图像,持续5小时。
补充视频2. wt1a 形态发生素干扰胚胎中肾发生异常的延时记录。(右键单击可下载) 该视频显示了GFP阳性细胞从原肾区域迁移出去的过程。从20 hpf开始,每隔30分钟采集一次图像,持续5小时。
讨论
斑马鱼已成为研究脊椎动物发育和人类疾病建模的常用模式生物。由于斑马鱼胚胎保持透明,使用标准体视显微镜即可观察脑、心脏等正在发育的器官。利用带有器官特异性荧光标记的转基因品系,可通过荧光显微镜在活体胚胎的不同发育阶段对器官发生过程进行评估。然而,使用标准落射荧光显微镜对整个器官的结构细节进行成像时存在一个局限性,即来自焦平面之上和之下的信号干扰。这种离焦光不仅降低了图像的对比度和分辨率,还可能遮蔽感兴趣的重要结构13,14。为减少离焦信息、提高图像对比度和轴向分辨率,已发展出多种技术,如激光扫描共聚焦显微镜、转盘共聚焦显微镜和多光子显微镜。另一种获取光学切片的方法是无需激光和扫描的结构光照明显微技术,这是一种基于宽场照明的技术,可在普通显微镜上简便实现15。本文展示的结果表明,将结构光照明显微技术实现的光学切片应用于解剖显微镜,并结合扩展焦距图像的重建,能够清晰呈现斑马鱼正常及异常肾脏发育的结构细节。特别是,在wt1a morphant(基因功能抑制)胚胎中,GFP阳性细胞分布在不同的焦平面上,若仅获取单一层面上的图像并受离焦模糊影响,将低估该表型的三维复杂性。
为了追踪器官组织的动态变化、重排或破坏过程,延时荧光显微镜是一种强大但较为复杂的技术。在延时成像过程中,轻微的振动或微小的温度波动会导致x、y或z方向的漂移,因此需要额外的设备(如环境培养箱、防震台)才能获得稳定的结果。本文介绍的方法利用体视显微镜配备电动聚焦驱动装置的功能,在无需额外设备的情况下实现延时图像的采集。为保持稳定的焦平面,建立了自动对焦策略,并在成像培养皿底部印制了位置重定位网格,用于校正x、y方向的不稳定性。
正确包埋胚胎是本方案中的关键步骤。需要经过一定练习,才能将目标结构尽可能靠近玻璃底部,并紧邻网格但不与之重叠地放置。
该方法的主要优势在于,它是一种经济且简便的工具,可用于在数小时内直接观察活体胚胎的发育过程,如生长和迁移。此外,解剖显微镜特有的优点,如大视野和长工作距离,有助于对包括完整器官在内的较大样本进行观察。然而,也需注意一些局限性。实验过程中需暂停以检查和重新调整样本位置,导致操作耗时;同时,缺乏稳定的温度控制会改变 "标准" 发育时间,定义为受精后在28.5 °C下的小时数(hr post fertilization) 16另一个潜在的问题是成像在动物体内的穿透深度受限,特别是当目标结构位于胚胎或幼体内部时。例如斑马鱼的前肾肾小球,其位置处于体节与卵黄囊之间。研究发现,对肾小球进行成像的深度极限约为200 µm,这一深度在发育5天后即达到。相比之下,靠近动物体表的荧光结构则可进行更长时间的成像观察。例如,肝细胞至少可被清晰成像至9 dpf。另一个限制因素是,长期将胚胎或幼体固定于琼脂糖中以及使用Tricaine处理会分别导致生长迟滞和心脏水肿。由于这些因素可能干扰正常的发育过程,建议将延时成像的持续时间限制在特定的研究时间段内。为确保在成像期间目标结构能够正常发育,可在实验结束时将成像样本的整体形态与在相同实验条件下但未经包埋和麻醉处理的个体进行比较。
每隔30分钟记录一次z轴光学切片的z-stack图像,持续5小时,并随后计算扩展焦深图像,从而获得了正常及受干扰肾脏发育早期事件的空间和时间信息,其中受干扰的发育由吗啉代介导的wt1a基因敲低所诱导。此前的吗啉代敲低实验已表明,Wt1a在前肾形成过程中发挥早期且关键的作用。原位杂交使用肾脏标志物17,18,并结合转基因wt1b:GFP品系在固定时间点成像前肾发育过程9,10,结果显示wt1a功能缺失会导致肾小球形态发生紊乱以及足细胞特化失败。与这些静态研究方法不同,延时成像可直接可视化对照胚胎中早期肾发生的动态过程,以及在wt1a吗啉代敲低胚胎中GFP阳性细胞从前肾区域迁移的现象。对异常迁移细胞进行长时间追踪的可能性,使得表型分析更加详尽。
总体而言,本文介绍的方法为通常用于延时成像的复杂且不易获取的设备(如配备环境控制舱和防震台的激光扫描显微镜或光片显微镜)提供了一种成本低廉且易于使用的替代方案。所述的解决漂移问题的常规方法也可应用于不具备光学切片功能的设备进行延时成像,例如荧光体视显微镜。
该技术不仅适用于研究肾脏发育,还可用于监测心脏或肝脏等其他器官的正常与异常形态发生过程。此外,该方法还可用于观察胚胎和成年模式生物中的多种动态过程,例如伤口愈合或再生。
披露
作者 Michael Graf 是 Carl Zeiss Microscopy GmbH 的员工,该公司生产本文所用的仪器。
致谢
感谢 Thomas Bates 对稿件的审阅和改进。我们还感谢 Christina Ebert 和 Sabrina Stötzer 在鱼类饲养方面提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>材料 | |||
| 对照吗啉代寡核苷酸 | Gene tools, LLC | 标准对照寡核苷酸 | 已制备 对照 寡核苷酸 |
| wt1a 吗啉寡核苷酸 | 基因工具有限责任公司 | 定制的 | 旨在靶向第一个剪接供体位点,序列见参考文献中已发表内容 9 |
| 0.5% 酚红溶液 | Sigma | P0290 | 注射示踪剂 |
| peqGOLD 通用琼脂糖 | peqlab | 35-1020 | 制备显微注射培养皿 |
| 玻璃毛细管 (GC100F-10) | Hugo Sachs Elektronik | 30-0019 | 制备注射针头 |
| 微载样头 | Eppendorf | 5242956003 | 加载显微注射针 |
| 杜蒙特镊子 | 精细科学工具 | 91150-20 | 在针尖处形成开口 |
| 胚胎水(0.3x Danieaus)´ 溶液 | 1x:58 mM NaCl,0.7 mM KCl,0.4 mM MgSO₄4, 0.6 Ca(NO3)2,5 mM HEPES,pH:7.5;切勿添加亚甲蓝! | ||
| 5毫米/0.05毫米网格 | 科学服务 | PY68039-02 | 注射量的计算 |
| 巴斯德吸管 137 mm,4.8 ml | Roth | E305.1 | 收集卵子、移植胚胎以及清除死亡胚胎 |
| 超细尖巴斯德吸管,157 毫米,3.5 毫升 | 罗斯 | E304.1 | 去除多余的水分 |
| N-苯基硫脲(PTU) | Sigma | P7629 | 为抑制黑色素化 |
| 甲磺酸三卡因(Tricaine) | Sigma | E10521 | 麻醉斑马鱼 |
| 低熔点琼脂糖 | Biozym | 850111 | 用于包埋 |
| µ-培养皿 35 毫米,高 玻璃底网格-50 | ibidi | 81148 | 成像室 |
| 凝胶加样枪头 | Hartenstein | GS05 | 为胚胎的正确包埋进行定向 |
| <强>名称 | <强>公司 | <强>货号 | <强>评论 |
| <强>仪器设备 | |||
| 微量移液器拉制仪(型号 P-97) | Sutter Instrument | 制备注射针头 | |
| 显微操作仪 | Saur 的实验室需求 | 用于显微注射 | |
| Thermomixer copact | Eppendorf | 用于温控低熔点琼脂糖的恒温块 | |
| SZ61(体视显微镜) | 奥林巴斯 | 用于注射对照 | |
| Axio Zoom. V16 | 蔡司 | 用于包埋与成像 | |
| ApoTome.2 滑块 | Zeiss | 用于光学切片 | |
| AxioCam MRm | Zeiss | 用于图像采集 | |
| ZEN 2012 | Zeiss | 成像软件 |
参考文献
- Lieschke, G. J. Animal models of human disease: zebrafish swim into view. Nat Rev Genet. 8 (5), 353-367 (2007).
- Drummond, I. A. Kidney development and disease in the zebrafish. J Am Soc Nephrol. 16 (2), 299-304 (2005).
- Drummond, I. A., et al. Early development of the zebrafish pronephros and analysis of mutations affecting pronephric function. Development. 125 (23), 4655-4667 (1998).
- Wingert, R. A., et al. The cdx genes and retinoic acid control the positioning and segmentation of the zebrafish pronephros. PLoS Genet. 3 (10), 1922-1938 (2007).
- Kramer-Zucker, A. G., Wiessner, S., Jensen, A. M., Drummond, I. A. Organization of the pronephric filtration apparatus in zebrafish requires Nephrin, Podocin and the FERM domain protein Mosaic eyes. Dev Biol. 285 (2), 316-329 (2005).
- Wingert, R. A., Davidson, A. J. The zebrafish pronephros: a model to study nephron segmentation. Kidney Int. 73 (10), 1120-1127 (2008).
- Kreidberg, J. A., et al. Wt-1 Is Required for Early Kidney Development. Cell. 74 (4), 679-691 (1993).
- Bollig, F., et al. Identification and comparative expression analysis of a second wt1 gene in zebrafish. Dev Dyn. 235 (2), 554-561 (2006).
- Perner, B., Englert, C., Bollig, F. The Wilms tumor genes wt1a and wt1b control different steps during formation of the zebrafish pronephros. Dev Biol. 309 (1), 87-96 (2007).
- Schnerwitzki, D., et al. Alternative splicing of Wilms tumor suppressor 1 (Wt1) exon 4 results in protein isoforms with different functions. Dev Biol. 393 (1), 24-32 (2014).
- Bedell, V. M., Westcot, S. E., Ekker, S. C. Lessons from morpholino-based screening in zebrafish. Brief Funct Genomics. 10 (4), 181-188 (2011).
- Rembold, M., Lahiri, K., Foulkes, N. S., Wittbrodt, J. Transgenesis in fish: efficient selection of transgenic fish by co-injection with a fluorescent reporter construct. Nat Protoc. 1 (3), 1133-1139 (2006).
- Conchello, J. A., Lichtman, J. W. Optical sectioning microscopy. Nat Methods. 2 (12), 920-931 (2005).
- Jensen, E. C. Types of imaging, Part 2: an overview of fluorescence microscopy. Anat Rec (Hoboken). 295 (10), 1621-1627 (2012).
- Chasles, F., Dubertret, B., Boccara, A. C. Optimization and characterization of a structured illumination microscope. Opt Express. 15 (24), 16130-16140 (2007).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Dev Dyn. 203 (3), 253-310 (1995).
- Hsu, H. J., Lin, G., Chung, B. C. Parallel early development of zebrafish interrenal glands and pronephros: differential control by wt1 and ff1b. Development. 130 (10), 2107-2116 (2003).
- O'Brien, L. L., et al. Wt1a, Foxc1a, and the Notch mediator Rbpj physically interact and regulate the formation of podocytes in zebrafish. Dev Biol. 358 (2), 318-330 (2011).
重印与许可
