研究成体干细胞生物学的理想模型是小鼠毛囊。本文介绍了一种分离不同群体毛囊干细胞和表皮角质形成细胞的方案,该方法包括对小鼠背部皮肤进行酶消化处理,随后进行流式细胞术分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
毛囊(HF)是研究成体干细胞(SCs)生物学及其调控机制的理想体系。这一动态的微型器官由位于毛囊永久部、即隆突区(bulge)的不同干细胞群持续补充。这些多能性隆突干细胞最初被鉴定为缓慢循环的标记滞留细胞;然而,随着CD34和角蛋白15(K15)等特异性细胞标记物的发现,其分离才成为可能。本文介绍一种利用荧光激活细胞分选(FACS)技术从小鼠毛囊中高效分离隆突干细胞及表皮角质形成细胞的可靠方法。分离所得的毛囊干细胞(HFSCs)可用于多种研究 体内 嫁接模型,具有重要价值 体外 用于研究多能性、静息与激活调控机制的模型。
引言
成体干细胞(SCs)对于维持组织稳态至关重要,它们通过替换死亡细胞以及在损伤后修复受损组织来实现这一功能。这些干细胞的定义特征是能够持续进行自我更新,并分化为多种细胞谱系1-3。目前研究最为深入的依赖成体干细胞进行更新的系统包括造血系统、肠道和皮肤1,2,4。
在胚胎发育过程中,皮肤最初由单层表皮细胞构成。当间充质细胞迁入皮肤并形成下方的胶原性真皮层时,毛囊(HF)的形态发生开始5。这些特化的间充质细胞随后构成真皮乳头(DP),位于表皮层正下方,可诱导上皮细胞形成毛发胚基,并开始向内生长6。位于毛囊底部的高增殖基质细胞包裹这些间充质细胞,形成毛球结构,而内层细胞则开始分化为同心圆状的结构,进而形成毛干(HS)及包绕其周围的内根鞘(IRS)2,3。
出生后,皮肤表皮由三个区室组成:表皮间区(IFE)、皮脂腺(SG)和毛囊(HF)。与始终处于稳态的 IFE 和 SG 不同,HF 是一个动态的微型器官,会持续经历生长期(anagen)、退化期(catagen)和休止期(telogen)的循环4,7。驱动这一持续循环的毛囊干细胞(HFSCs)位于 HF 内一个称为隆突区(bulge)的特化微环境之中4。在 anagen 期,HFSCs 在毛乳头(DP)发出的激活信号作用下离开隆突区,开始增殖并向下迁移,形成一条细长的细胞链,即外根鞘(ORS)8–10。位于 HF 底部、环绕 DP 的基质细胞快速分裂并向上迁移,经历终末分化,从而生成毛干(HS)和内根鞘(IRS)10(图1)。anagen 期的持续时间决定了毛发的长度,其长短依赖于基质细胞的增殖能力和分化能力6。当 HF 进入 catagen 期时,位于球部的过渡性扩增基质细胞停止增殖,发生凋亡并完全退化,同时将 DP 向上牵拉,直至其到达 HF 的非周期性区域8,11。在此回缩过程中,HF 形成一种称为上皮细丝(epithelial strand)的临时结构,这是 catagen 期的典型特征,其中含有大量凋亡细胞。在小鼠中,catagen 期持续 3–4 天,并且在第一次毛发周期中高度同步。当 HF 进入 telogen 期时,所有 HFSCs 均进入静息状态。HF 周期的不同阶段还伴随着小鼠皮肤颜色的变化,这是由于黑色素生成所致。皮肤颜色在 anagen 期为黑色,catagen 期变为深灰色,到 telogen 期则变为粉红色6,7,12,13。
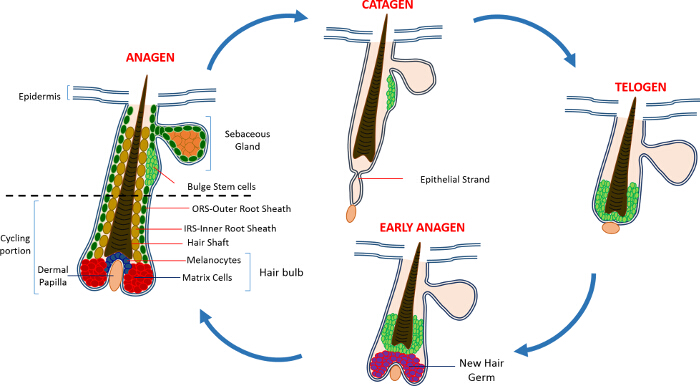
图1:毛囊周期。毛囊(HF)由一个永久性的上部和一个不断重塑、周期性变化的下部组成,该下部经历持续的快速生长阶段(生长期)、退化阶段(退化期)以及相对静止或休息阶段(休止期)。请点击此处查看此图的放大版本。
最初通过使用氚标记胸腺嘧啶的示踪实验鉴定了维持毛囊(HF)的干细胞(SCs),该实验揭示了一群位于皮脂腺(SG)下方毛囊永久区域的慢周期、标记物保留细胞(LRC)14。随着对毛囊干细胞(HFSCs)表征技术的进步,现已发现少数可用于识别和分离毛囊干细胞微环境(niche)中特定干细胞的标志物15。其中最有效的富集毛囊干细胞的标志物可能是CD34,这是一种细胞表面标志物,在人类中也被确认为造血干细胞的标志物16。在CD34+细胞群体中,还可根据α6整合素的表达水平进一步分离出两个不同的亚群2。另一个标志物是角蛋白15(K15),其在隆突区(bulge region)高表达,且与CD34的表达共定位;此外,K15启动子已被用于在转基因动物中靶向和分离毛囊干细胞15,17-19。在过去十年中,还陆续报道了多个位于毛囊内的不同毛囊干细胞及前体细胞群体17,20-27。
毛囊干细胞(HFSCs)另一个令人兴奋的特性是其在皮肤修复中的重要作用。在正常情况下,HFSCs 仅更新毛囊(HF),并不参与表皮(IFE)的稳态维持。然而,在受到损伤刺激时,这些细胞会离开其干细胞微环境(SC niche),并参与表皮(IFE)的重新定植。 9. 我们最近证实,缺失促凋亡 Sept4/ARTS基因表达显示出更多的CD34、K15和Sox9+ HFSCs,表现出对凋亡的抵抗性。HFSCs 从 Sept4/ARTS-/- 利用荧光激活细胞分选(FACS)对背部皮肤进行分析,发现CD34阳性细胞数量增加两倍以上+ 和 K15+ HFSCs。这些 Sept4/ARTS-/- HFSCs 被扩增 体外 不仅形成的菌落数量更多,而且与对照组相比,还能耐受更严苛的条件 28.
由于毛囊干细胞(HFSCs)数量增加, Sept4/ARTS-/- 小鼠在皮肤切除损伤后愈合速度显著加快。值得注意的是, Sept4/ARTS-/- 小鼠伤口床显示出大量再生的毛囊,且疤痕显著缩小。此外,针对ARTS的生化靶点XIAP(凋亡抑制蛋白X连锁)基因敲除的小鼠表现出愈合受损 28.
我们的研究结果以及其他实验室的工作表明,毛囊干细胞(HFSCs)是研究成体干细胞生物学特性与功能的理想模型。本文介绍了基于四种标志物表达对毛囊干细胞和表皮角质形成细胞进行富集和分离的方法:整合素α6;整合素β1;Sca-1(表皮角质形成细胞标志物)和CD34。类似地,也可利用K15-GFP报告小鼠对K15+毛囊干细胞进行分离19。
访问受限。请登录或开始试用以查看此内容。
方案
本研究严格遵循以色列卫生部《实验动物护理与使用指南》中的建议进行。所有动物均按照以色列理工学院批准的机构动物护理方案 IL-02302-2015 执行操作。
1. 实验准备
- 螯合胎牛血清的制备
注意:上皮细胞对钙非常敏感,因此控制这些细胞与钙的接触至关重要。为了确保在分离过程中细胞不会接触到钙,需使用螯合方法去除用于制备染色缓冲液的胎牛血清中残留的钙29。以下方案可制备约1 L无钙胎牛血清,用于FACS染色缓冲液的配制。- 将400 g干燥的螯合材料(例如,Chelex)加入4 L烧杯中,加入蒸馏H2O至总体积为4 L。盖上盖子,使用磁力搅拌器持续搅拌。
- 在搅拌的同时,用10 N HCl溶液调节pH至7.4。继续搅拌20分钟,并根据需要重新调节pH,直至pH在超过20分钟内保持稳定。
- 将烧杯置于4 °C过夜孵育,使螯合材料形成致密沉淀。小心吸除H2O,并加入新鲜蒸馏H2O至总体积4 L。
- 重复步骤1.1.2中的pH调节过程。
- 将烧杯置于4 °C孵育1小时,使螯合材料再次形成致密沉淀。小心吸除H2O。
- 缓慢将两瓶500 ml的胎牛血清加入螯合材料中。在4 °C缓慢搅拌1小时,确保转速设置不会产生气泡。
- 将烧杯置于4 °C孵育1小时,使螯合材料形成致密沉淀。
- 小心将血清转移至1 L玻璃瓶中,并在无菌条件下通过瓶顶滤器过滤。将螯合后的血清储存于-20 °C或立即使用。
- 染色缓冲液的制备
- 配制100 ml含3%螯合胎牛血清的PBS(不含Ca2+和Mg2+),并置于冰上保存。
2. 从成人表皮中分离毛囊
- 使用诱导箱以5%异氟烷麻醉小鼠。本方案所描述的步骤使用处于毛囊周期休止期的50-80日龄小鼠进行优化。
- 根据标准实验室程序处死小鼠。此处采用在安乐死舱中使用过量CO2的方式处死小鼠。
- 使用电动剪刀剃除背部皮肤上的全部毛发,避免操作头部和四肢。操作时应尽量使剪刀贴近皮肤,避免损伤皮肤及皮下组织。
- 当所有毛发去除后,使用70%乙醇清除残留毛发并消毒背部皮肤。
- 将小鼠置于解剖垫上,用镊子提起尾部附近的皮肤,用剪刀做一小切口。沿后向前方向小心剪开整个背部皮肤,将其与筋膜分离。注意避免损伤皮下组织。
- 将皮肤放置于解剖板上,毛发面朝下,并用针固定皮肤相邻两侧边缘以固定位置。用钝头解剖刀轻轻刮除脂肪组织,直至真皮层清晰整洁。
注意:刮除脂肪时,使用弯头镊子对皮肤施加轻柔压力,应以镊子的弯曲面接触皮肤,以防止皮肤撕裂。 - 将皮肤真皮面朝下放入100 mm无菌培养皿中,展平皮肤以确保无皱褶。加入10 ml不含Ca2+和Mg2+的磷酸盐缓冲液(PBS--),必要时再次展平皮肤。
- 吸除PBS,加入10 ml 0.25%胰蛋白酶。确保皮肤完全展开并自由漂浮。每10 ml 0.25%胰蛋白酶中仅放置一片皮肤进行孵育。
- 将样品在37 °C孵育30-120分钟,或在4 °C过夜孵育。
3. 毛囊单细胞悬液的制备
- 使用弯头镊子和手术刀,沿从前往后的方向将皮肤上的所有毛发刮除。用弯头镊子固定皮肤,用手术刀刮除毛发。
注意:将刮下的毛发直接刮入步骤 2.8 中已加入的胰蛋白酶溶液中。从尾部开始,顺着毛发生长方向进行刮除。逆着毛发生长方向刮除会导致毛囊(HFs)大量丢失,并降低细胞得率。毛囊容易相互粘附形成小团块;为减少毛囊团块的大小,应每次刮除一小片区域。 - 将去毛后的皮肤转移至新的培养皿中,并加入 10 ml PBS-- 以防止干燥。检查皮肤并刮除任何残留的毛发。
- 使用手术刀和镊子将毛囊(HFs)切碎,直至获得单个毛囊的悬浮液。用 10 ml 移液器剧烈吹打毛囊悬浮液数分钟,以彻底分散所有毛囊团块。
注意:后续所有步骤均需在冰上操作。 - 将毛囊悬浮液转移至预先标记的 50 ml 离心管中。
- 吸除皮肤中的 PBS--,并用其冲洗盛有毛囊悬浮液的细胞培养皿,然后将冲洗液一并转移至 50 ml 离心管中。
- 洗涤
- 将悬浮液通过装在 50 ml 离心管上的 70 µm 细胞筛过滤。用 10 ml 染色缓冲液(含 3% 螯合 FBS 的 PBS--)冲洗初始的 50 ml 管和细胞筛。
- 再将悬浮液通过装在 50 ml 离心管上的 40 µm 细胞筛过滤。用 5–10 ml 染色缓冲液冲洗离心管,确保所有细胞均转移至新管中。在所有动物样本处理完成前,始终将细胞悬浮液置于冰上保存。
- 在 4 °C 条件下,以 300 × g 离心 15 分钟。小心吸除上清液,避免扰动沉淀,然后将沉淀重悬于 5 ml 染色缓冲液中。
- 在 4 °C 条件下,以 300 × g 离心 5 分钟。小心吸除上清液,将细胞沉淀重悬于 800 µl 染色缓冲液中。
注意:上述体积适用于来自两只成年小鼠的细胞染色。
- 将悬浮液转移至预先标记的 FACS 管中。
- 对于对照管,取 25–50 µl 细胞悬浮液(或细胞悬浮液中剩余的任何残余量),用染色缓冲液补足至总体积 300 µl。
注意:需准备以下对照管(总体积均为 300 µl):未染色对照(不加抗体和 DAPI);仅 DAPI;Integrin β1;Integrin α6;Sca-1;CD34。
- 对于对照管,取 25–50 µl 细胞悬浮液(或细胞悬浮液中剩余的任何残余量),用染色缓冲液补足至总体积 300 µl。
- 按照材料表中推荐的稀释比例,向各相应试管中加入一抗和 DAPI至所需浓度。轻轻弹击试管以混匀细胞悬浮液。将试管放回冰上,并用铝箔包裹以避光。
- 在冰上孵育 30 分钟,每隔 10 分钟轻轻弹击试管一次,以确保细胞保持悬浮状态。
- 每管 FACS 管中加入染色缓冲液至满(约每管 4 ml)进行洗涤;在 4 °C 条件下,以 300 × g 离心 5 分钟。
- 小心吸除上清液,将细胞沉淀重悬于 800 µl 染色缓冲液中。
- 将细胞悬浮液转移至带有细胞筛帽的 FACS 管中,以确保获得单细胞悬浮液。
4. 流式细胞术分析
- 立即使用配备适当滤光片的流式细胞仪进行细胞分选,以检测信号。采用405 nm紫色激光(用于DAPI检测)、488 nm蓝色激光(用于FSC、SSC、PE、PE-Cy7和FITC检测)以及633 nm红色激光(用于APC激发)
注意:确保仪器正在记录所有三个荧光通道的检测器信号。 - 根据未染色样本设置荧光门控,并利用单染对照样本进行光谱重叠的补偿调节。
注意:使用单染对照样本调节通道间的补偿,以消除荧光信号之间的任何重叠。补偿调节将取决于所使用的FACS分选仪型号。 - 基于DAPI设置初始门控,以排除死细胞。
- 调整散点图(SSC-A vs FSC-A),选择单细胞事件。
- 设置FSC和SSC的高度与宽度参数,以排除双联体并区分单细胞事件。
- 对高表达α6和β1的细胞设门,并在此群体中进一步对高表达CD34或高表达Sca1的细胞进行分选。
- 将细胞分选至预先标记的FACS管中。
注意:可分离出两类主要细胞群体:α6+/β1+/CD34+/Sca-1- 和 α6+/β1+/Sca-1+/CD34-。分选后的细胞应始终置于冰上,直至用于后续实验,如细胞培养或RNA提取。
访问受限。请登录或开始试用以查看此内容。
结果
本方案详细描述了两类细胞群体的富集与分离:毛囊隆突区干细胞(bulge SCs)和表皮角质形成细胞(epidermal keratinocytes)。图2展示了该方案的主要步骤。利用8周龄小鼠背部皮肤组织,我们通过CD34标记物富集毛囊隆突区干细胞,该标记物仅在毛囊干细胞(HFSCs)中表达;同时使用Sca-1标记物标记表皮角质形成细胞。图3显示了在皮肤上皮细胞的α6+/β1+群体中,CD34与Sca-1表达的不同模式。首先根据整合素α6和整合素β1的表达对细胞进行设门,该门区在图3中标记为P1。随后,在α6/β1阳性表达的细胞群体中,进一步根据CD34和Sca-1的表达进行分群。在CD34与Sca-1的散点图中可观察到两个不同的细胞群体:α6+/β1+/CD34+/Sca-1−代表毛囊干细胞(在图3中标记为...
访问受限。请登录或开始试用以查看此内容。
讨论
此处描述的方案已广泛用于从成年小鼠背部皮肤中分离毛囊干细胞(HFSCs),但通过选择不同的标记物,同样适用于分离毛囊结构中的其他细胞群体。 2,16,23,28,29该方法相较于其他细胞分离方法(如组织解离)具有显著优势,能够从异质性细胞群体的混合物中选择并收获特定类型的细胞。此外,本文所述方法快速且可靠,可根据所用标记物表达水平的差异,分离出多达四种不同的毛囊干细胞(HFSC)群体。该方法可用于毛囊干细胞的富集与分离,进而开展分子水平分析(如RNA测序或质谱分析),也可用于后续的细胞培养与扩增。 体内 嫁接
制备高质量的单细胞悬液是成功进行FACS的必要环节29。该方案的效率还取决于用于毛囊(HF)分离的起始材料。为尽量减少起始材料中非表皮组织的含量,在剃除毛发和解剖背部皮肤时必须格外小心,以提高表皮细胞的纯度和得率。为确保获得理想的单细胞悬液,应沿毛囊头至尾的方向逐量刮取毛囊,并使用解剖刀将毛团充分切碎成更小的片段,从而获得单个毛囊的悬液。此外,操作过程中应始终轻柔处理细胞,并将细胞悬液置于冰上以维持细胞活性。最后,...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无任何利益冲突
致谢
本工作部分由美国国立卫生研究院(NIH)资助项目RO1GM60124(资助对象:H.S.)支持。H.S. 是霍华德·休斯医学研究所的研究员。Y.F. 受德尔罗职业发展讲席基金及德国-以色列基金会(I-2381-412.13/2015)支持。D.S. 受科尔曼-科恩博士后奖学金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 异氟烷 | Primal Critical Care | 66794-017-10 | |
| 二氧化碳 | - | - | |
| 电动剃毛器 | Oster | Golden A5 | 可使用其他公司的剃毛器 |
| 70% 乙醇 | Gadot Lab | 830000051 | 96% 乙醇用蒸馏水稀释而成 |
| 解剖垫 | 可使用任意供应商的解剖工具 | ||
| 镊子 | Dumont | 11251-10 | 可使用其他公司的镊子 |
| 剪刀 | Dumont | 14094-11 | 可使用其他公司的剪刀 |
| 针/固定针 | - | - | |
| 手术刀 | Albion | 10 | 确保手术刀具有钝端 |
| 组织培养皿 60 mm × 15 mm | Sigma-Aldrich | CLS430166 | |
| PBS | - | 实验室自制不含钙和镁的 PBS | |
| 0.25% 胰蛋白酶/EDTA | Biological Industries | 03-050-1A | 来自不同公司的胰蛋白酶可能具有不同的活性,因此胰蛋白酶消化时间需相应调整 |
| 10 ml 移液管 | Sigma-Aldrich | Corning, 4488 | |
| 冰 | - | - | |
| 50 ml 无菌离心管 | Minplast Ein-shemer | 35050-43 | |
| 70 µm 细胞筛 | Fisher | 22362548 | |
| 40 µm 细胞筛 | Fisher | 22362549 | |
| 染色缓冲液 | - | ||
| 离心机 | Eppendorf 5804 R | 5805 000.017 | |
| 带细胞筛帽的 FACS 管 | Falcon | 352235 | |
| FACS 管 | Falcon | 352063 | |
| 整合素 β1 | eBioscience | 25-0291 | 1:400 |
| 整合素 α6 | eBioscience | 15-0495 | 1:600 |
| Sca I | eBioscience | 11-5981 | 1:200 |
| CD34 | eBioscience | 9011-0349 | 1:300 |
| DAPI | Sigma-Aldrich | D9542 | 50 ng/ml |
| 干燥 Chelex | BioRad | 142-2842 | |
| 烧杯 | Pyrex | - | |
| 蒸馏 H2O | - | - | |
| 搅拌子 | - | - | |
| NHCl | BioLab | 1903059 | |
| 胎牛血清(FBS) | Beit Haemek Biological Industries | 400718 | 可使用其他公司提供的 FBS |
| 1 L 玻璃瓶 | Ilmabor | Boro 3.3 | |
| 瓶顶过滤器 | Autofil | 1102-RLS |
参考文献
- Wagers, A. J., Weissman, I. L. Plasticity of adult stem cells. Cell. 116, 639-648 (2004).
- Blanpain, C., Lowry, W. E., Geoghegan, A., Polak, L., Fuchs, E. Self-renewal, multipotency, and the existence of two cell populations within an epithelial stem cell niche. Cell. 118, 635-648 (2004).
- Fuchs, E. Scratching the surface of skin development. Nature. 445, 834-842 (2007).
- Hsu, Y. C., Fuchs, E. A family business: stem cell progeny join the niche to regulate homeostasis. Nat Rev Mol Cell Biol. 13, 103-114 (2012).
- Blanpain, C., Fuchs, E. Epidermal homeostasis: a balancing act of stem cells in the skin. Nat Rev Mol Cell Biol. 10, 207-217 (2009).
- Alonso, L., Fuchs, E. The hair cycle. J Cell Sci. 119, 391-393 (2006).
- Muller-Rover, S., et al. A comprehensive guide for the accurate classification of murine hair follicles in distinct hair cycle stages. J Invest Dermatol. 117, 3-15 (2001).
- Zhang, Y. V., Cheong, J., Ciapurin, N., McDermitt, D. J., Tumbar, T. Distinct self-renewal and differentiation phases in the niche of infrequently dividing hair follicle stem cells. Cell Stem Cell. 5, 267-278 (2009).
- Ito, M., et al. Stem cells in the hair follicle bulge contribute to wound repair but not to homeostasis of the epidermis. Nat Med. 11, 1351-1354 (2005).
- Hsu, Y. C., Pasolli, H. A., Fuchs, E. Dynamics between stem cells, niche, and progeny in the hair follicle. Cell. 144, 92-105 (2011).
- Fuchs, E. The tortoise and the hair: slow-cycling cells in the stem cell race. Cell. 137, 811-819 (2009).
- Plikus, M. V., Chuong, C. M. Complex hair cycle domain patterns and regenerative hair waves in living rodents. J Invest Dermatol. 128, 1071-1080 (2008).
- Ito, M., Kizawa, K., Hamada, K., Cotsarelis, G. Hair follicle stem cells in the lower bulge form the secondary germ, a biochemically distinct but functionally equivalent progenitor cell population, at the termination of catagen. Differentiation. 72, 548-557 (2004).
- Cotsarelis, G., Sun, T. T., Lavker, R. M. Label-retaining cells reside in the bulge area of pilosebaceous unit: implications for follicular stem cells, hair cycle, and skin carcinogenesis. Cell. 61, 1329-1337 (1990).
- Cotsarelis, G. Epithelial stem cells: a folliculocentric view. J Invest Dermatol. 126, 1459-1468 (2006).
- Trempus, C. S., et al. Enrichment for living murine keratinocytes from the hair follicle bulge with the cell surface marker CD34. J Invest Dermatol. 120, 501-511 (2003).
- Morris, R. J., et al. Capturing and profiling adult hair follicle stem cells. Nat Biotechnol. 22, 411-417 (2004).
- Lyle, S., et al. The C8/144B monoclonal antibody recognizes cytokeratin 15 and defines the location of human hair follicle stem cells. J Cell Sci. 111 (Pt 21), 3179-3188 (1998).
- Liu, Y., Lyle, S., Yang, Z., Cotsarelis, G. Keratin 15 promoter targets putative epithelial stem cells in the hair follicle bulge. J Invest Dermatol. 121, 963-968 (2003).
- Vidal, V. P., et al. Sox9 is essential for outer root sheath differentiation and the formation of the hair stem cell compartment. Curr Biol. 15, 1340-1351 (2005).
- Snippert, H. J., et al. Lgr6 marks stem cells in the hair follicle that generate all cell lineages of the skin. Science. 327, 1385-1389 (2010).
- Nijhof, J. G., et al. The cell-surface marker MTS24 identifies a novel population of follicular keratinocytes with characteristics of progenitor cells. Development. 133, 3027-3037 (2006).
- Jensen, U. B., et al. A distinct population of clonogenic and multipotent murine follicular keratinocytes residing in the upper isthmus. J Cell Sci. 121, 609-617 (2008).
- Jensen, K. B., et al. Lrig1 expression defines a distinct multipotent stem cell population in mammalian epidermis. Cell Stem Cell. 4, 427-439 (2009).
- Jaks, V., et al. Lgr5 marks cycling, yet long-lived, hair follicle stem cells. Nat Genet. 40, 1291-1299 (2008).
- Horsley, V., et al. Blimp1 defines a progenitor population that governs cellular input to the sebaceous gland. Cell. 126, 597-609 (2006).
- Goldstein, J., Horsley, V. Home sweet home: skin stem cell niches. Cell Mol Life Sci. 69, 2573-2582 (2012).
- Fuchs, Y., et al. Sept4/ARTS regulates stem cell apoptosis and skin regeneration. Science. 341, 286-289 (2013).
- Nowak, J. A., Fuchs, E. Isolation and culture of epithelial stem cells. Methods Mol Biol. 482, 215-232 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
