本文介绍了一种用于测量和分析非洲爪蟾(Xenopus laevis)嗅球温度反应的实验方案。通过差异性染色标记嗅觉感受神经元和僧帽细胞,随后记录钙离子变化,以反映嗅球中某些神经网络对鼻部诱导的温度下降具有敏感性。
方法文章
通过监测嗅球内钙离子变化记录温度诱导的神经元活动 Xenopus laevis
* These authors contributed equally
本文内容
摘要
摘要
嗅觉系统专门负责化学分子的检测、整合与处理,很可能是被研究得最为深入的感觉系统。然而,越来越多的证据表明,嗅觉不仅局限于化学敏感性,还包含温度敏感性。变态前的Xenopus laevis为半透明动物,其外突的鼻腔缺乏筛板结构,无法将鼻腔与嗅球分隔开。这些特征使其成为研究嗅觉、尤其是温度敏感性的理想模型。本文详细描述了在X. laevis幼体嗅球中测量温度反应的完整实验流程。首先,将光谱不同的染料加载至鼻腔,对嗅觉感受神经元(ORNs)进行电穿孔,以标记其在嗅球神经 Neuropil 中的轴突末梢。左右两侧感受神经元的差异性染色有助于识别γ-小球,这是唯一由对侧突触前传入纤维所支配的结构。其次,将电穿孔与嗅球局部团状染料加载相结合,以标记僧帽细胞及其树突。随后,在线照明显微镜下扫描脑组织的三维体积,同时在嗅觉上皮施加轻微的温度下降,以获取快速的钙成像数据。最后,通过采集后的数据分析,可根据特定温度诱导的Ca2+信号轨迹,对包含γ-小球及其支配的僧帽细胞在内的温度敏感神经网络进行形态学重建。除温度跳跃外,使用化学气味分子作为刺激,可实现嗅球中温度敏感网络与化学敏感网络之间的比较研究。
引言
近年来,温度敏感性不再仅仅被视为一种躯体感觉,还被认为是一种与嗅觉系统相关的生理功能。在啮齿类动物中,主嗅球接收来自鼻腔内格吕内贝格神经节(Grueneberg ganglion, GG)的输入,该器官由对温度敏感的神经元组成。GG神经元不仅对低温有反应1,也对化学刺激产生响应,且其化学敏感性受到温度波动的调节2。这些发现提示,嗅球可能整合来自鼻部采集的化学和温度信息。为了验证这一假设,本文介绍了一套可在非转基因动物中检测嗅球温度反应的实验方法,采用非洲爪蟾(Xenopus laevis)幼体作为模型。这些动物的嗅觉系统结构与哺乳动物高度相似。前变态期的 X. laevis 嗅觉感受神经元以簇状终止,并与二级神经元——即僧帽细胞的树突形成突触连接。突触前与突触后纤维相互交织,形成束状的神经纤维网结构,称为嗅小球3。嗅小球层富含突触,是嗅觉信息处理的第一个中枢。僧帽细胞进一步整合感觉输入,并将其传递至更高级的嗅觉中枢区域。
我们开发了一种将嗅觉受体神经元(ORNs)电穿孔与钙敏感及非敏感染料结合,并对球状体和僧帽细胞的突触后网络进行团块负载染色的技术方案。通过在鼻腔内加载两种光谱不同的染料并进行电穿孔染色,可利用来自双侧嗅上皮的ORNs对γ-球状体3的双侧支配特征将其单独标记出来。因此,在进行后续测量之前即可确定γ-球状体的位置。随后,在包含γ-球状体的区域进行Fluo-8乙酰甲酯(Fluo-8 AM)的团块负载4。利用快速共聚焦显微镜成像钙离子变化,可实现对该系统中这一独特温敏性球状体周围三维神经 Neuropil 区域温度响应的可视化观察5。支配该特定结构的僧帽细胞也可通过其对诱导性温度下降产生响应的Ca2+信号被识别。接下来,活动相关性成像6利用这些细胞特有的Ca2+信号轨迹揭示温敏性僧帽细胞的树突形态。在同一实验中交替重复施加冷Ringer溶液和化学气味物质,可用于可视化围绕γ-球状体的气味与温度信息处理相关的僧帽细胞网络,并识别潜在的重叠区域。为了明确区分响应是由化学刺激还是温度刺激引起,我们持续监测嗅上皮处的温度。
方案
所有关于Xenopus laevis蝌蚪的实验均按照哥廷根大学动物实验伦理委员会批准的指南进行。
1. 电穿孔
- 根据 Nieuwkoop 和 Faber 的分期标准,选择发育阶段为 49–54 期的动物7。
- 确保记录装置包含一个工作距离较大的体视显微镜,以及能够以至少 2 Hz 的频率施加 20 V、20 毫秒电压脉冲的电穿孔设备。通过两个直径约为 200 µm 的铂电极施加电压脉冲,使其能够无损地插入蝌蚪的鼻孔中。
- 通过将通常提供的 5 mg 右旋糖酐偶联染料(例如,Calcium Green 10 kDa Dextran 或 Alexa Fluor 647 10 kDa Dextran)溶解于约 100 µl 蒸馏水中,取 2 µl 小液滴在 Parafilm 膜上干燥,制备染料晶体。
注意:晶体在不到一天内即可干燥,并可在 -18 °C 冰箱中保存一年以上。 - 将动物置于含 3% 三卡因甲磺酸盐的自来水中麻醉 1–2 分钟,直至其达到外科麻醉状态,表现为心率降低、所有运动消失以及对机械刺激无反应。
- 将麻醉后的动物浸入纯自来水中 10 秒。
- 将动物置于凝胶垫上,并用针在其周围固定,注意不要造成损伤。
注意:不要通过将针插入皮肤的方式固定动物。 - 用纸巾轻轻擦干鼻孔周围的区域。
- 将动物置于体视显微镜下,并对准鼻孔进行聚焦。
- 使用镊子取一个大小与鼻孔匹配的染料晶体,将其放入一个鼻腔中,并等待其完全溶解(耗时少于 1 分钟)。若晶体较小,可在每个鼻腔中加入 2–3 个,直至形成不透明的高浓度溶液。
- 将阴极置于蝌蚪皮肤上,阳极插入其中一个鼻孔中。
注意:此特定设置适用于步骤 1.3 中引用的染料。对于具有不同极性的染料,可将阴极插入鼻孔以改善染色效果。若不确定染料的极性,可将两个电极同时插入两个鼻孔(每鼻孔一个),并在单个电压脉冲之间交替极性。 - 施加六个 20 V、20 毫秒的脉冲,刺激间隔约为 0.5 秒。
注意:若电极与皮肤及鼻孔内的溶液接触良好,在电穿孔过程中鼻孔电极周围应出现微小气泡。若未见气泡,请检查连接线缆,并确认电穿孔设备是否输出所需电压脉冲。 - 对另一侧鼻孔重复步骤(1.9–1.11)。
- 将完成电穿孔的蝌蚪转移至盛有室温自来水的烧杯中。等待 5–10 分钟,直至动物恢复意识并重新开始游动。给予喂食,并使其恢复至少 1 天,以便染料沿嗅觉神经运输至嗅球。
- 为获得最佳成像效果,建议在电穿孔后 1–7 天内使用电穿孔动物。成像前应至少预留 24 小时,以确保染料充分运输及动物完全恢复。
2. 整体封片制备
- 将动物置于含有3%三卡因甲磺酸盐的自来水中麻醉,直至所有运动停止且对机械刺激无反应。
- 将蝌蚪转移至体视显微镜下的凝胶垫上,并用针穿过前脑两侧皮肤将其牢固固定。
- 通过切断脊髓处死蝌蚪。
- 使用解剖刀切取包含双侧鼻腔、嗅神经和嗅球的组织块(图1A)。首先在左侧鼻孔附近(不接触鼻孔)做第一道切口,然后将刀片向前移动,沿左侧嗅神经和嗅球切至端脑-间脑边界。右侧同样操作。最后在端脑后方做一横切,将制备的组织块与其余神经系统分离。
- 弃去蝌蚪身体部分,并小心将组织块翻转,使脑组织腹面朝上。
- 再次用两根针插入两侧嗅神经之间,将组织块固定。
- 在组织上滴加一滴林格氏液(98 mM NaCl,2 mM KCl,1 mM CaCl2,2 mM MgCl2,5 mM葡萄糖,5 mM Na-丙酮酸盐,10 mM HEPES,调至pH 7.8,渗透压为230 mOsmol/L)。
- 使用精细剪刀做三道切口,去除覆盖在轴突分选区和嗅球上的脑膜。从组织块后缘开始,紧贴左侧嗅球由后向前剪切,直至嗅神经进入嗅球的入口处(即轴突分选区)。
- 对右侧半脑重复步骤2.8。
- 用镊子提起脑膜,在轴突分选区做第三道与前两道切口垂直的切口。
注意:此时嗅球腹面已暴露,可用于成像和批量染料加载。 - 为提高透射光图像质量,可对背侧重复上述操作。这些额外步骤有助于引导微量移液管进行染料加载,但并非必需。
- 将样本转移至盛有林格氏液的记录室中,进行后续处理和成像。确保样本腹面朝上,并用覆盖在小型铂金框架上的尼龙丝网固定样本。
- 为便于施加刺激,可将鼻腔置于其中一根尼龙丝上方。
3. 团注加载
- 将50 µg的钙离子AM染料(例如,Fluo-8 AM)溶解于20 µl含有20% Pluronic F-127(w/v)的二甲基亚砜(DMSO)中,配制AM染料的储备液。将储备液分装为1–2 µl的小份后冷冻保存。储备液在至少半年内稳定,但应避免反复冻融。
- 使用微电极拉制仪制备微电极,使其电阻为5–8 MΩ,尖端直径为1–2 µm。
- 将制备好的染料储备液用林格氏液(Frog Ringer's solution)稀释至浓度为250–500 µM。
- 加入MK571至终浓度为500 µM,以阻断多药耐药转运蛋白。
- 使用长尖移液器吸取10 µl上述溶液填充微电极,并通过轻弹微电极的方式彻底去除所有气泡。
- 将微电极安装至电极夹持器中,确保可通过注射器或气动给药装置手动施加压力,并使用压力计监测所施加的压力。
- 如有可能,使用具备激发所注射染料能力的显微镜系统,以便观察并调节微电极尖端的染料流出情况。理想情况下使用共聚焦成像系统。采用配备浸物物镜的直立显微镜,以便微电极能够到达组织。
- 将整体组织制备样本置于显微镜下,沿嗅神经追踪至嗅球,并将焦点对准嗅球中的目标区域。
- 持续用新鲜林格氏液灌流记录腔室,以提高样本活性,并洗脱从微电极尖端泄漏的染料。
- 将微电极缓慢下放至嗅球表面,使其尖端朝向样本的吻侧方向。
- 向微电极施加较小且恒定的正压(约25 hPa),以防止电极堵塞,并轻柔地将其插入组织中。
- 当微电极穿透外层组织后,将其向吻背侧方向推进至僧帽细胞层。(注意:通过电穿孔对嗅觉感受神经元进行反向染色有助于调整微电极的位置。)理想情况下,将微电极尖端置于距离目标记录位点50–100 µm处。
- 若需标记温度敏感的γ小球,应将目标区域定位于γ小球突触前神经网位置吻侧约50 µm处。
- 施加100–200 hPa范围内的正压。根据微电极尖端的大小调整压力强度。首次施压时,在明场照明下观察是否有轻微的组织移动,以确认染料从电极尖端流出。
- 在微电极保留在组织中的同时,维持恒定压力约10分钟。如有可能,期间在荧光照明下检查神经网,观察细胞染色情况;成功加载时,可见细胞胞体荧光强度随时间逐渐增强。
注意:加载失败的常见原因是组织进入电极尖端导致堵塞,或染料聚集形成颗粒。有时可通过轻柔地将电极尖端触碰记录腔室底部表面来恢复通畅,但电极尖端延伸长度不应超过数微米。若电极开口较大,可在团注加载时降低压力予以补偿。 - 加载10分钟后,将施加的压力降至零,并检查染色效果。
注意:染色区域的大小差异显著,取决于注射染料量及喷出位点位置等多种参数。理想的染色区域约为100 µm × 100 µm。 - 若染色区域过小或未覆盖目标记录位点,重复步骤3.10–3.13。若微电极尚未堵塞,可继续使用同一电极进行下一次注射。
- 末次注射后至少等待30分钟再开始任何实验,以确保染料充分摄取并完成去酯化过程。在此期间应持续用新鲜林格氏液灌流记录腔室。
4. 测量设置
- 确保测量装置包含一台具有足够速度以记录三维体积的共聚焦显微镜。选择每秒至少采集1帧(1 Hz)的成像速率。
注意:合适的装置示例包括采用线照明方式的显微镜,其以逐线扫描而非逐点扫描的方式对样品成像。此类装置的一种简单实现方式此前已有描述6。其他可选方案包括转盘式显微镜。若无此类装置,仍可使用常规的点扫描装置对较小区域进行测量。 - 设置测量参数,使成像体积足以覆盖肾小球的尺寸。
注意:典型的成像体积厚度约为20 µm,应至少由5层图像覆盖。 - 检查所有突触前测量是否存在漂白现象。调节激光功率,使记录图像的平均荧光强度在记录过程中不随时间下降。
- 尽量限制突触后侧记录的测量时间和区域,以最大程度避免漂白;尽管如此,当测量时间超过20–30秒时,漂白仍可能发生。
5. 气味施加与温度实验
- 将25 ml新鲜的林格溶液(先前储存在4 °C)倒入50 ml离心管中,将离心管置于装有冰块的容器中。
- 将洁净的温度计探头插入管中,监测冷却林格液的温度。待温度降至1 °C以下后再开始实验。
- 配制50 ml浓度为10 µM的L-组氨酸Ringer溶液。
- 使用漏斗式施用器8 或类似的给药系统,可在灌注任氏液的同时递送刺激物,从而在刺激溶液释放期间保持灌流室内水流恒定且不中断。将漏斗放置在距离嗅上皮远端出口不到1毫米的位置。
- 将连接至数字温度计的镍铬-镍温度传感器放置在靠近上皮组织和漏斗涂敷器出口的位置。将温度计的输出端口连接至计算机,以记录并实时显示反映微小温度变化的电压信号。
- 实验开始前,将另一个温度传感器连接至标准温度计,以建立电压与温度之间的换算比例系数。
- 监测记录室中浴液的温度,确保其不超过 22 °C。
- 开始图像采集,随后通过电子移液器依次施加200–400 µl的冷林格液、L-组氨酸和室温林格液(20–22 °C),刺激间间隔为20–30秒。为更精确控制刺激施加过程,若条件允许,可通过所选成像系统向移液器发送触发信号来释放刺激物。为获得可重复的结果,重复该刺激施加程序。
- 进行多轮刺激,获取多组较长时间的记录,因为这些数据更适合用于活动相关成像的后期图像分析。
注意:需在记录时间与脑片活性之间找到一个平衡点。测量 约 2分钟内覆盖6次刺激应用足以提供良好的网络重建所需的活动数据。
6. 使用活动相关成像(ACI)进行图像处理
- 突触前记录的图像处理
- 在使用冷Ringer溶液和组氨酸刺激的记录中,通过它们不同的反应特征区分温度敏感的γ神经毡与邻近的组氨酸敏感的小球(参见Kludt et al.5)。
- 对已通过电穿孔将两种不同染料导入嗅觉受体神经元(ORNs)的脑组织记录数据,在轴向上生成最大强度投影,以可视化γ小球的双侧神经支配。
- 使用活动相关成像(ACI)进行突触后记录的图像处理
- 选择具有足够时间点(超过100帧)且具有较明显活动(至少两个事件)的记录。
注意:该活动可以是自发性的,用于揭示单个僧帽细胞的过程;也可以是在同一记录期间多次施加刺激诱发的,用于揭示嗅觉刺激所激活的细胞网络。 - 选择在记录过程中测量结构移动不超过2–3像素的记录。
注意:对于移动过多的记录,可通过应用Kludt et al.5中描述的位移校正程序进行补救。 - 检查记录是否存在漂白现象。如果整幅图像的平均强度在记录过程中逐渐下降,则需要进行漂白校正;否则跳过接下来的两个步骤。
- 通过对每个像素的时间轨迹进行线性回归,计算其线性趋势。
- 从每个像素中单独减去计算结果,以消除漂白的线性成分。
注意:可选方案是采用Bao和Schild9所述的勒让德(Legendre)拟合方法。 - 下载Junek et al.6所述的即用型MATLAB脚本及活动相关成像(ACI)的分步操作指南。
注意:可按照Junek et al.6中描述的步骤操作,作为使用所提供MATLAB脚本的替代方案。 - 将下载包中的文件“aci.m”、“matVis.m”和“aci_roiSelector.m”移至用于数据分析的系统的MATLAB路径中。
- 将步骤5.8中获取的原始数据作为变量加载到MATLAB用户工作区,组织为[x,y,z,t]矩阵形式,其中x和y表示横向维度,z表示轴向,t表示时间进程。
- 在MATLAB命令行中调用“aci”函数。
- 在出现的用户界面(UI)中,选择“Prepare Data”,然后选择包含数据的变量以及用于保存结果的目录。
注意:有关用户界面的完整说明,请参阅随aci脚本提供的手册。 - 通过移动UI中相应的滑块浏览测量的z层,以概览所显示的方差图。
- 在UI中输入感兴趣区域(ROI)的大小。对于僧帽细胞胞体,将ROI调整为横向约10 µm,轴向约5 µm;对于小球,合适的尺寸略大,分别为横向20 µm和轴向10 µm。
注意:ROI大小需以像素数输入,具体数值取决于记录时选择的像素缩放比例。 - 通过鼠标中键点击细胞/小球中心,选择包含γ小球以及周围每个可见僧帽细胞胞体的额外区域作为ROI。
- 关闭主UI,触发对所有参考轨迹的相关图计算。结果将自动保存并显示。
- 选择具有足够时间点(超过100帧)且具有较明显活动(至少两个事件)的记录。
结果
通过将Alexa Fluor染料或与葡聚糖分子偶联的钙指示剂用于顺行标记,经由活跃的轴突运输,实现了对嗅觉感受神经元(ORNs)的电穿孔标记。前者染料可对感觉神经元及其在嗅球小球层分支的轴突末梢进行明亮的染色,而后者则可用于检测这些细胞的神经元活动(图1和图2)。首先,通过在左侧和右侧嗅上皮分别电穿孔导入Alexa Fluor 647 Dextran和Alexa Fluor 546 Dextran,以可视化热敏感γ-小球的位置及其神经支配模式(图1A)。操作24小时后,在荧光显微镜下可观察到鼻孔中的嗅觉感受神经元、两侧的嗅神经以及双侧半球的嗅小球。不同嗅小球簇可根据其各自的位置进行识别,尤其是包含γ-小球的小型簇(图1B)。少量对侧嗅觉纤维穿过对侧嗅球,经前连合交叉后终止于同侧的γ-小球(图2A)。
为了记录γ-小球突触前纤维的钙反应,按照相同步骤,通过电穿孔将钙绿标记的葡聚糖(Calcium Green Dextran)导入嗅觉神经元(ORNs)。通过可控释放冰冻的任氏液(0–1 °C),在鼻孔处诱导负向温度跳变。使用快速线照明显微镜对包含γ-小球的三维体积进行成像。–1 °C的ΔT即可触发γ-小球及其传入纤维的冷反应,表现为ΔF/F钙离子(Ca2+)信号中可逆的峰值(图2B、C)。
进一步的实验步骤用于测量通过分支状树突末梢与γ-小球相连的僧帽细胞中的冷诱导活性。在将Alexa 647葡聚糖电穿孔至嗅觉受体神经元几天后,通过团注加载钙敏感性染料Fluo-8 AM,有效标记了这些突触后纤维及其周围的神经 Neuropil(图3A、B)。僧帽细胞被Fluo-8 AM填充后,嗅觉上皮依次接受两次刺激:冷Ringer液、组氨酸(10 µM)以及室温Ringer液。从记录体积中的感兴趣区域获取两条参考轨迹,其中一条仅对温度下降有反应,另一条仅对组氨酸有反应。基于选定的参考轨迹计算活动相关成像(ACI)6,以高对比度可视化对应于温度或组氨酸响应性Ca2+信号的突触后网络的树突形态(图3C、D)。最后,将热敏感和化学敏感图谱进行颜色编码并相互叠加,展示温度和化学信息如何从单个小球传递至嗅觉二级神经元(图3E)。有关两种信息在共享嗅觉网络中的整合与处理的描述,请参见Kludt et al.5
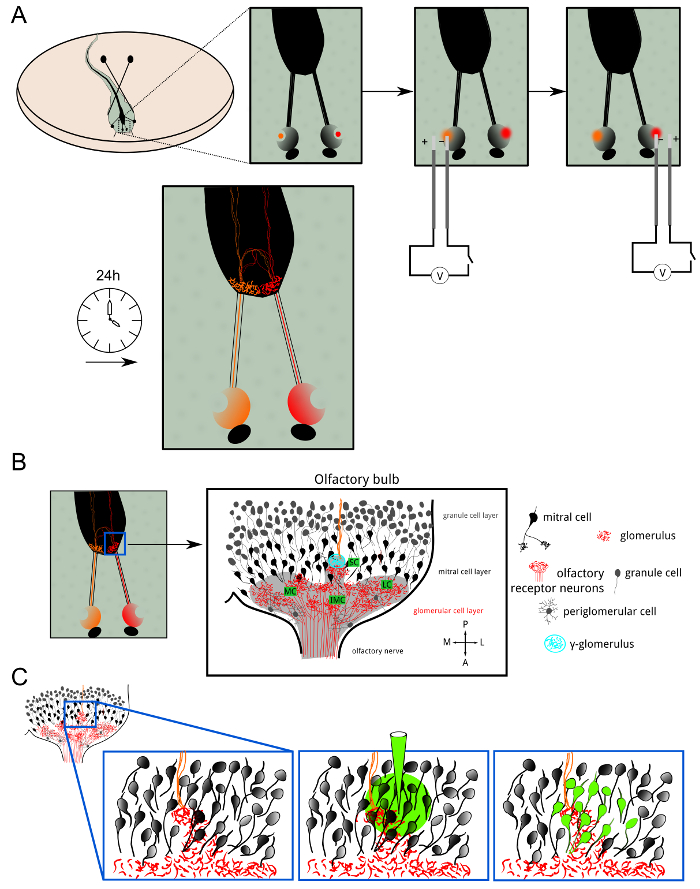
图1:ORN电穿孔与团注标记的总体示意图。(A)在 X. laevis 幼体的双侧鼻腔中,嗅觉感受神经元通过电穿孔导入与葡聚糖分子偶联的Alexa染料或钙敏感性染料。荧光指示剂被顺向运输至轴突末梢的分支区域。电穿孔后24小时,双侧半球的肾小球层均显示出荧光染色。(B)单侧嗅球细胞结构的示意图。肾小球层以簇状分布于嗅球中:包括内侧、小型、中间和外侧簇。嗅觉信息通过肾小球中的兴奋性突触,从感受神经元传递至僧帽细胞。球周细胞和颗粒细胞为抑制性神经元,参与调节嗅觉信息的处理与编码。γ-肾小球(青色)易于识别,是同侧(红色)与对侧(橙色)嗅觉纤维汇合的小型神经纤维网区域。(C)在γ-肾小球附近实施团注标记,以染色主要由僧帽细胞及其在肾小球层中广泛分支的树突构成的突触后神经纤维网。请点击此处查看该图的放大版本。
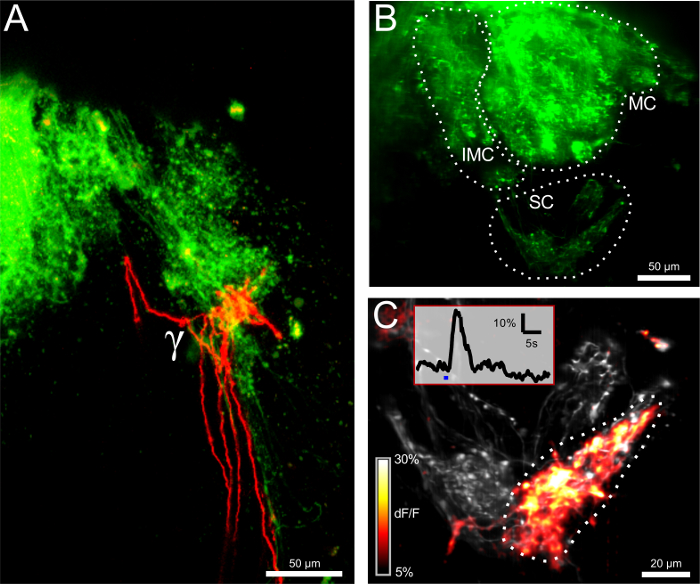
图2:嗅觉受体神经元(ORNs)的电穿孔揭示了其结构与功能连接性。(A)同侧(绿色)和对侧(红色)嗅觉受体神经元(ORNs)对γ-小球的双侧支配。比例尺 = 50 µm。(B)使用钙离子敏感性染料Calcium Green Dextran进行电穿孔后的嗅球。中间群(IMC)、内侧群(MC)和小群(SC)清晰可见。图像为100 µm厚测量体积的最大投影。比例尺 = 50 µm。(C)小群的放大视图。记录体积(12 µm)以最大投影方式呈现。图像以灰色显示基础荧光水平,并叠加颜色编码的ΔF/F图。图中绘制了冷Ringer溶液刺激下的最大反应。γ-小球表现出强烈反应,而两个相邻的小球则无反应。插图显示对应于所标示感兴趣区域的γ-小球的ΔF/F轨迹。蓝色条表示刺激施加时段。比例尺 = 20 µm。请点击此处查看该图的放大版本。
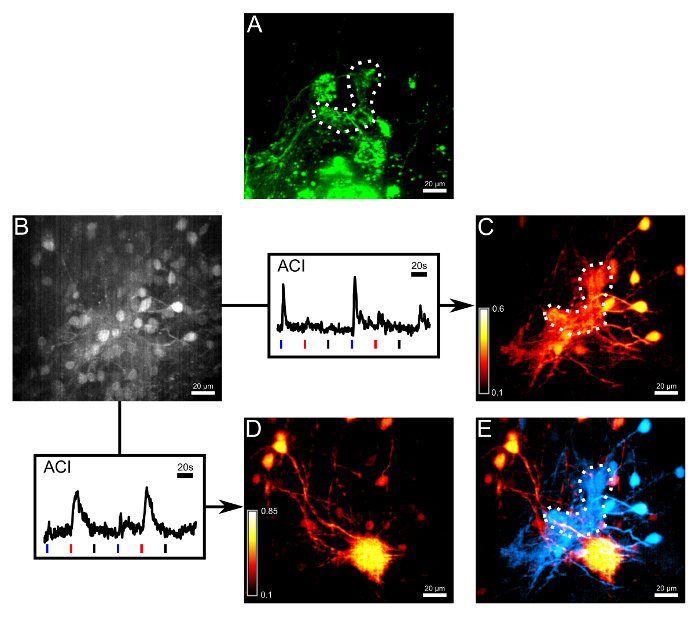
图3:团注加载与活动相关成像(ACI)可分离热敏感和化学敏感神经网络。(A)通过电穿孔将非钙敏感性染料Alexa 647 Dextran标记至终止于小簇区域的嗅觉受体神经元(ORN)轴突。虚线勾勒出γ-肾小球轮廓。(B)在使用钙敏感性染料Fluo-8 AM进行团注加载后,同一区域(如A图所示)在第二检测通道中的图像。部分僧帽细胞胞体可见,但对比度有限。沿箭头所示,绘制了两条响应曲线,用于活动相关成像(ACI)。曲线下方的蓝色、红色和黑色条分别表示低温林格液、组氨酸(10 µM)以及室温林格液(作为阴性对照)开始施加的时间点。两条Ca2+信号曲线取自测量体积中不同感兴趣区域。(C)基于(B)中曲线的ACI结果,突出主要对低温林格液产生响应的区域。(D)基于(B)中曲线的ACI结果,突出主要对组氨酸产生响应的区域。(E)两张ACI图谱的叠加结果。对组氨酸响应的僧帽细胞及其支配的肾小球(红色)与热敏感的僧帽细胞及γ-肾小球(青色)可清晰区分。本图所有图像均为28 µm厚体积的最大强度投影。比例尺 = 20 µm。请点击此处查看该图的放大版本。
讨论
本文所述方法旨在记录非洲爪蟾(Xenopus laevis)蝌蚪嗅球中的温度信息处理过程。该实验方案对嗅球中的一级和二级神经元进行染色,并提供一种嗅觉系统基本保持完整的样品制备方法。因此,可对温度敏感的γ小球的激活情况进行监测,并将其与邻近的化学敏感小球进行比较。通过使用光谱不同的染料进行细胞电穿孔,可清晰显示该小球独特的双侧神经支配结构。此外,团块加载法(bolus loading)可实现对跨越嗅球较大体积的僧帽细胞进行染色。通过重复施加刺激并结合钙成像测量,再利用活性相关成像技术对数据进行分析,从而揭示神经网络在处理温度诱导信号过程中的活动模式。
本实验方案强调了两种复杂的染色方法,这两种方法均需谨慎操作并经过练习,才能获得满意且可重复的结果。在电穿孔过程中,必须避免对动物造成任何损伤,尤其是在将电极插入鼻孔时。理想情况下,应避免与嗅上皮发生任何接触。需要注意的是,电穿孔后动物仍然存活,因此必须考虑其恢复时间。如果一轮电穿孔后染色信号仍太弱(这可能取决于所用染料的类型),可通过增加鼻腔内染料浓度来增强信号强度。由于与葡聚糖偶联的分子可通过多种机制转运,包括慢速轴突运输(速度为1-2 mm/天10)和被动扩散,另一种替代方案是在电穿孔后等待48小时再处死动物。或者,也可在动物恢复一天后重复进行电穿孔。
团注加载是一个关键步骤,因为进入僧帽细胞的染料量难以调控,且取决于多种参数,如移液管尖端大小和施加位置。在共聚焦荧光显微镜下监测该过程有助于调整染料施加时间,从而在不同样本间获得相似的染色结果。此外,应使用先前已进行电穿孔的蝌蚪,通过确定小细胞簇(包含γ-肾小球)的位置,来优化染料施加的最佳位置。测量过程中最关键的步骤是避免样品发生位移和光漂白。可通过在显微镜下仔细调节林格液的流动位置来避免位移。为减少感兴趣区域的光漂白,应将测量时间缩短至必要限度。
使用钙离子敏感性染料进行团注式负载染色仅能提供非常有限的对比度,因为健康细胞通常钙离子水平较低,因而基础荧光信号较弱。采用活动相关成像技术可克服这一限制,该方法基于细胞活动性生成对比度,并突出显示具有相似钙信号的结构。这种采集后分析方法计算所选感兴趣区域(参考轨迹)的钙信号与三维容积中每个单独像素钙信号之间的相关系数。因此,所得结果在很大程度上依赖于所选的参考轨迹活动模式。若主要目标是可视化展示僧帽细胞的神经支配模式,则优先选用源自自发神经元活动的参考信号,且选择活性最高的僧帽细胞可获得最佳结果。若旨在揭示僧帽细胞的化学或温度敏感性网络,则应选择仅包含对组氨酸或冷任氏液刺激响应的参考轨迹。将整个嗅小球或僧帽细胞胞体作为感兴趣区域时,未必总能获得清晰的参考信号,特别是当对两种不同刺激产生响应的结构相互重叠时。在此类情况下,通常选择嗅小球或细胞体的较小区域作为感兴趣区域更为有效。
近几十年来,电穿孔技术被描述为一种高效标记单个或多个细胞的方法11,12。本文中该技术用于特异性标记嗅觉感受神经元。使用葡聚糖偶联分子可获得最高标记效率,对于非钙离子敏感性染料,可选范围广泛,覆盖荧光显微镜常用的整个光谱范围13。然而,目前成功通过电穿孔导入嗅觉感受神经元的钙离子敏感性染料仅限于钙绿葡聚糖(calcium-green dextran),以及若仍可商业获取的Fluo-4葡聚糖。此外,记录主要局限于嗅球腹侧表面的浅层区域,因为快速测量技术的穿透深度有限。双光子成像可在一定程度上克服这一限制,但通常速度较慢,并进一步限制了可用钙离子敏感性染料的选择范围。
本文介绍了一种用于测量嗅球中温度诱导活性的实验方案。通过对脑部神经网状结构进行三维体积扫描,以可视化参与温度嗅觉信息处理的复杂细胞网络。最近才首次报道了对嗅球中温度诱导活性的测量方法5,该方法需要专门定制的流程,结合多种技术手段。上述技术的一个主要优势在于,可在大部分嗅觉系统保持完整的组织样本中,实现对数百个细胞进行三维成像。这些优势对染色技术、脑组织制备以及成像过程提出了较高要求。例如,细胞电穿孔与团块加载(bolus loading)技术可高效地标记嗅上皮和嗅球中的大量细胞,从而实现对完整细胞网络的可视化。此外,通过团块加载方式递送化学指示剂,而非使用基因编码的荧光蛋白,使得该方法有望应用于更广泛的物种。其他替代方法,如使用乙酰氧基甲基酯(AM)染料进行浴孵育,主要适用于脑片样本,但此类方法会严重破坏嗅球结构,仅能保留数百微米范围的完整组织。相比之下,本方案所采用的整体封片(whole mount)制备方法可确保例如γ-小球的双侧神经支配保持完整,因此记录是在仍具有功能活性的系统中进行的。最后,成像本身采用线照明显微技术,以实现三维体积图像的获取。线照明显微技术属于共聚焦技术之一,能够达到目前最高的图像采集速率6,这对于覆盖嗅球较大区域至关重要。虽然也可使用较慢的采集系统,但其缺点是必须缩小记录的体积范围。近年来,已有其他快速成像方法被开发出来,可作为替代选择14,15。然而,线照明显微技术仍是实现足够速度与分辨率的最简便方法之一。以下提供一些指导性信息,用于选择合适的成像系统。由于钙成像是在较厚的脑组织样本中进行的,成像系统应具备良好的共聚焦能力,物镜的数值孔径应达到1.0或更高。作为参考,线照明显微镜所获取的记录相当于在标准激光扫描显微镜下使用0.5–1艾里单位(airy units)针孔尺寸所获得的图像。快速的采集速度是理想需求。对于厚度为20 µm、至少包含5层切片、横向视场为100 µm × 100 µm、像素尺寸为0.5 µm或更小的三维图像,其扫描速度应至少达到每秒1 Hz(每堆栈)。在必要时,可通过降低共聚焦能力来增加收集的光子数量,从而实现更快的采集速度,但其缺点是会引入更多离焦光信号。然而,由于该方法会增加光学切片的厚度,实际上有助于在应用ACI6后追踪穿过不同z平面的树突结构。
本文介绍了用于深入研究嗅球网络中温度信息处理的必要工具。通过钙敏感染料记录第一级和第二级神经元中的温度诱导活动,检测到达和离开γ-小球的信号。此外,还可评估单个僧帽细胞对化学和温度信息进行整合处理的程度。由于该制备方法能够保持嗅球结构的完整性,因此可进一步研究双侧神经支配在嗅觉信息处理中的作用。该方法还可用于揭示热信息与化学信息如何在重叠的嗅觉网络中被编码。最后,上述技术不仅限于研究嗅球对温度刺激的响应,还可广泛应用于嗅觉系统的整体评估,特别是大体积三维空间内细胞水平的信息处理网络。团块加载(bolus loading)与活动相关性成像技术是观察和比较数十个神经元活动的强大工具,适用于多种脑网络的研究516。
披露
作者无任何利益冲突需要披露。
致谢
本项目由德国研究基金会(DFG)卓越集群171、脑部纳米级显微与分子生理学中心、伯恩斯坦计算神经科学中心以及ENC网络(伊拉斯谟世界联合博士项目)资助。作者感谢Stephan Junek、Mihai Alevra和Guobin Bao提供了用于图像评估和数据分析的MATLAB代码及自定义程序。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>试剂 | |||
| 氯化钠 | 默克密理博 | 1064040500 | |
| 氯化钾 | 默克密理博 | 1049360250 | |
| 二水合氯化钙 | 默克密理博 | 1023820250 | |
| 六水合氯化镁 | 默克密理博 | 1058330250 | |
| D(+)-葡萄糖 | 默克密理博 | 1083371000 | |
| 丙酮酸钠 | Sigma-Aldrich | P2256 | |
| HEPES | 默克密理博 | 1101100250 | |
| 钙绿素 10 kDa 右旋糖酐 | 赛默飞世尔科技 | C-3713 | |
| 葡聚糖,Alexa Fluor 647 | 赛默飞世尔科技 | D-22914 | |
| 葡聚糖,Alexa Fluor 546 | 赛默飞世尔科技 | D-22911 | |
| Fluo-8 AM | TEFlabs | 203 | |
| MK571 | Alexis 生物化学公司 | 340-021-M005 | |
| MS-222 | Sigma-Aldrich | E10521 | |
| 泊洛沙姆 F-127 | Sigma-Aldrich | P2443 | 粉末 |
| L-组氨酸单盐酸盐一水合物 | Sigma-Aldrich | 53370 | |
| DMSO | 默克密理博 | 1029522500 | |
| <强>仪器设备 | |||
| 电子移液器 | BrandTech | HandyStep 电子重复移液器 | |
| NiCr-Ni热电偶 | Greisinger Elektronik | GTF 300 | |
| 微移液管拉制仪 | Narishige | 模型 PC-10 | 两步拉制仪 |
| 漏斗式施用器 | (定制) | ||
| 线照明显微镜 | (定制) | 否则,使用 commercially available 转盘式显微镜 | |
| 63倍/1.0 数值孔径W复消色差物镜 | 蔡司 | 441470-9900-000 | |
| 目标物镜 W 平场复消色差 40X/1.0 DIC | Zeiss | 441452-9900-000 | |
| <强>软件 | |||
| MATLAB | The MathWorks | 从 R2010b 及更高版本 |
参考文献
- Mamasuew, K., Breer, H., Fleischer, J. Grueneberg ganglion neurons respond to cool ambient temperatures. Eur J Neurosci. 28 (9), 1775-1785 (2008).
- Brechbühl, J., Moine, F., Broillet, M. -C. Mouse Grueneberg ganglion neurons share molecular and functional features with C. elegans amphid neurons. Front. Behav. Neurosci. 7 (193), (2013).
- Gaudin, A., Gascuel, J. 3D atlas describing the ontogenic evolution of the primary olfactory projections in the olfactory bulb of Xenopus laevis. J Comp Neurol. 489 (4), 403-424 (2005).
- Stosiek, C., Garaschuk, O., Holthoff, K., Konnerth, A. In vivo two-photon calcium imaging of neuronal networks. Proc Natl Acad Sci U S A. 100 (12), 7319-7324 (2003).
- Kludt, E., Okom, C., Brinkmann, A., Schild, D. Integrating temperature with odor processing in the olfactory bulb. J Neurosci. 35 (20), 7892-7902 (2015).
- Junek, S., Chen, T. W., Alevra, M., Schild, D. Activity correlation imaging: visualizing function and structure of neuronal populations. Biophys J. 96 (9), 3801-3809 (2009).
- Nieuwkoop, P. D., Faber, J. Normal Table of Xenopus laevis. , Garland Publishing Inc. New York. (1994).
- Schild, D. A computer-controlled device for the application of odors to aquatic animals. J Electrophysiol Tec. 12 (2), 71-79 (1985).
- Bao, G., Schild, D. Fast and Accurate Fitting and Filtering of Noisy Exponentials in Legendre Space. PLoSONE. 9 (3), (2014).
- Terasaki, M., Schmidek, A., Galbraith, J. A., Gallant, P. E., Reese, T. S. Transport of cytoskeletal elements in the squid giant axon. Proc Natl Acad Sci U S A. 92 (25), 11500-11503 (1995).
- Haas, K., Sin, W. C., Javaherian, A., Li, Z., Cline, H. T. Single-Cell Electroporationfor Gene Transfer In Vivo. Neuron. 29 (3), 583-591 (2001).
- Haas, K., Jensen, K., Sin, W. C., Foa, L., Cline, H. T. Targeted electroporation in Xenopus tadpoles in vivo-from single cells to the entire brain. Differentiation. 70 (4-5), 148-154 (2002).
- Paredes, R. M., Etzler, J. C., Watts, L. T., Lechleiter, J. D. Chemical Calcium Indicators. Methods. 46 (3), 143-151 (2008).
- Salome, R., et al. Ultrafast random-access scanning in two-photon microscopy using acousto-optic deflectors. J Neurosci Methods. 154 (1), 161-174 (2006).
- Keller, P. J., Ahrens, M. B., Freeman, J. Light-sheet imaging for systems neuroscience. Nature Methods. 12 (1), 27-29 (2015).
- Hjorth, J. J., et al. Detection of silent cells, synchronization and modulatory activity in developing cellular networks. Dev Neurobiol. , (2015).
重印与许可
