小鼠能够发出复杂且包含多个音节的超声波发声(USVs)。这些超声波发声被广泛用作神经精神疾病的研究指标。本实验方案描述了我们在持续诱导、采集和分析小鼠鸣叫声的声学特征与发声序列结构过程中总结并发展出的一些实践方法。
本文内容
摘要
摘要
小鼠在发育期和成年期的多种社交情境中会产生超声波发声(USVs)。这些超声波发声被用于母鼠与幼崽之间的召回1、幼年个体间的互动2、异性及同性个体间的交流3,4,5,以及领地性互动6。数十年来,研究人员一直将超声波发声作为研究神经精神疾病、发育障碍或行为异常的间接指标7,8,9,而近年来也被用于理解脊椎动物发声交流的机制与进化过程10。在性相关互动中,成年雄性小鼠会发出具有多音节结构的超声波歌曲,其中某些特征与鸣禽的求偶鸣唱相似11。此类多音节发声序列的使用可增强其潜在的灵活性和信息承载能力,因为这些音节在组织方式和重新组合方式上可以发生变化,即所谓的“句法”。本实验方案描述了一种可靠的方法,用于在不同社交情境下诱发雄性小鼠产生超声波歌曲,例如暴露于新鲜雌鼠尿液、麻醉个体或处于动情期的雌鼠。该方法包含能够诱导小鼠产生大量音节的实验条件。我们采用低成本的隔音装置以减少环境噪声的干扰,并提供一种可自动检测、分类和分析超声波发声的量化方法。后者包括对发声频率、发声类型库、声学参数以及句法结构的评估。本文还介绍了多种利用播放实验(playbacks)研究动物对特定歌曲类型偏好的方法与见解。这些方法已被用于描述雄性小鼠在不同情境下的声学特征与句法变化,以及雌性小鼠的歌曲偏好。
引言
与人类相比,小鼠能够发出低频和高频两种类型的叫声,其中高频叫声称为超声波发声(USVs),其频率高于人类的听觉范围。USVs 出现在多种行为情境中,包括母鼠与幼崽间的呼唤、青少年期小鼠间的互动,以及成年小鼠同性或异性间的互动4,12。这些超声波发声具有多样化的多音节发声图谱,可通过人工方法9或自动化方法10,11进行分类。近年来,对 USVs 在交流中的作用的研究日益增多,包括将其作为神经精神疾病、发育障碍或行为异常小鼠模型的表型指标7,8,以及反映个体内部动机或情绪状态的指标13。目前认为,USVs 能够传递发声个体状态的可靠信息,对听者具有行为学意义14,15。
2005年,Holy 和 Guo 11,提出了成年雄性小鼠的超声波发声(USVs)由多音节发声单元或音节有序组成,类似于鸣禽的鸣唱。在许多物种中,多音节发声库允许发声者以不同方式组合和排列音节,从而增加声音信号所携带的潜在信息量。这种发声句法的变异被认为在性行为和配偶偏好中具有生态行为学意义。16,17后续研究表明,雄性小鼠能够在雌性出现之前、期间和之后改变其发出的音节类型相对组成。5,18也就是说,成年雄性小鼠利用其超声波发声(USVs)进行求偶行为,以吸引雌性、维持与雌性的近距离接触,或促进交配。19,20,21它们也在雄性之间的互动中释放,可能用于在互动过程中传递社会信息4为了捕捉这些发声谱系的变化,科学家通常会测量其声学特征参数(如振幅、频率等)。 等等。),USV音节或叫声的数量,以及首次发出USV的潜伏期。然而,很少有研究真正详细地分析这些USV的序列动态特征22最近,我们课题组开发了一种新方法,用于测量超声波发声音节序列的动态变化23我们发现,歌曲中音节的排列顺序(即句法)并非随机,而是会随社会情境的变化而改变,并且听觉动物能够察觉到这些变化并将其识别为具有生态学意义的信息。
我们注意到,许多研究动物交流的科研人员所使用的“语法”一词,其确切含义并不等同于人类语言中的语法。在动物交流研究中,我们仅指声音以某种规则排列形成的有序、非随机的序列。而对于人类而言,特定的序列具有特定的意义。目前尚不清楚小鼠是否存在类似情况。
本文及配套视频旨在提供可靠的实验方案,用于记录雄性小鼠在不同情境下的求偶超声波发声(USVs),并进行回放实验。文中展示了三种依次使用的软件:1)用于自动录音;2)用于音节检测与编码;3)用于对音节特征和语法进行深入分析(图1)。该方法有助于我们更深入地了解雄性小鼠超声波发声的结构与功能。我们相信,此类方法可简化数据分析过程,并分别为研究沟通障碍及神经精神疾病小鼠模型中正常与异常发声交流的表征开辟新的研究前景。
方案
伦理声明:所有实验方案均经杜克大学机构动物照护与使用委员会(IACUC)根据方案编号 A095-14-04 批准。注:有关所用软件的详细信息,请参见"材料与设备"部分的表 1。
1. 小鼠超声波发声的刺激与记录
- 录制会话前雄性的准备
注意:代表性结果使用7至8周龄的B6D2F1/J年轻雄性小鼠获得。本方案可适用于任何品系。- 将动物房的光照周期设置为12小时光照/12小时黑暗循环,除非实验有特殊要求。除另有规定或需要外,按照每笼饲养4至5只雄性动物的标准饲养规范进行。记录前3天,将雄性个体单独与同品系性成熟且处于发情期的雌性动物(每笼最多3只雄性与1只雌性)同笼过夜。
- 第二天将雌性从小笼中移出,并将雄性单独饲养至少两天后再进行首次录音,以增强其鸣叫的社会动机(基于我们的试错经验分析)。
- 记录箱的制备
- 使用一个沙滩冷藏箱(内部尺寸为长 27 × 宽 23 × 高 47 cm)作为隔音箱工作室图2A在盒子顶部钻一个小孔,以便麦克风的导线穿入。
注意:为了同时记录数十只小鼠时避免它们听到或看到彼此,防止环境噪音(如房间内设备和人员活动)干扰录音,并获得清晰的小鼠声音记录,建议在隔音且视觉隔离的环境中进行动物录音。图2B)。在比较同一只小鼠在隔音衰减舱内与舱外的发声时,我们未发现声音回声或失真现象图2C);相反,那里的声音可能更大,且在腔内谐波较少。 - 将麦克风连接到导线,导线连接到声卡,声卡连接到计算机,以配合声音录制软件使用例如 软件A在 图1 和 表1需要使用适当的录音软件,例如能够生成 .wav 音频文件的软件 A。
- 将一个空笼子(58 x 33 x 40 cm)放入隔音箱内,调节麦克风高度,使麦克风膜位于笼底上方35 - 40 cm处,并确保麦克风位于笼子正上方中央位置见图2A).
- 使用一个沙滩冷藏箱(内部尺寸为长 27 × 宽 23 × 高 47 cm)作为隔音箱工作室图2A在盒子顶部钻一个小孔,以便麦克风的导线穿入。
- 记录软件A的配置表1用于连续记录
- 双击并打开软件 A。点击并打开 "构型" 菜单中选择设备名称、采样率(250,000 Hz)、格式(16 位)。
- 选择关键项 "触发" 选项并检查 "切换".
注意:此设置允许通过按键盘上的键(F1、F2)开始录制 等等。将刺激物放入小鼠笼内。 - 输入小鼠的 ID "名称" 参数
- 将最大文件大小设置为所需的录制时长(我们通常设置为 5 min)。
注意:录制时间越长,所需的计算机存储内存越多。如果未设置连续模式,软件将根据设定参数截取序列的开头或结尾部分的鸣唱片段,因此无法可靠地对序列进行定量分析。
- 使用不同刺激记录超声波发声(USVs)。注意:每种刺激可根据用户的实验需求独立使用。
- 轻轻抓住待记录动物的尾巴将其提起,放入隔音箱内的无垫料笼子中(以防止垫料产生运动噪声),然后将笼子的开放式金属网盖盖在上面,网盖朝上。
- 关闭隔音箱,让动物适应环境15分钟。此时进行刺激准备(1.4)。
- 刺激材料准备
- 新鲜尿液(UR)样本作为刺激物的制备
- 在录音开始前最多5分钟内采集尿液样本,以确保最大程度地诱导雄性鸣叫。注意:放置时间较长的尿液,尤其是数小时或过夜的样本,效果较差。24,25,这一点我们已通过实验验证23.
- 选取一只雌性或雄性小鼠(根据所用刺激物的性别而定),将其从笼中取出,用一只手抓住其颈部后方的皮肤,像进行药物注射操作一样将动物固定,使腹部暴露。
- 使用一对镊子夹取一个棉签头(长 3 - 4 mm,宽 2 mm)。轻轻揉压并推动动物的膀胱,以挤出一滴新鲜尿液。擦拭雌性动物的阴道或雄性动物的阴茎,使整滴尿液被棉签头完全收集。
- 然后,选择另一个笼子,并使用之前用过的同一根棉签,对另一只雌性或雄性小鼠重复相同的步骤。
注意:此步骤需确保将至少两个独立笼子中两隻雌性或雄性小鼠的尿液混合于同一根棉签上,以避免发情期或其他个体因素的影响,因为已知发情周期可能会影响鸣叫行为。18,26. - 将待使用的棉签尖端置于干净的玻璃或塑料培养皿中。
注意:由于含有尿液的棉签需在接下来的5分钟内使用,因此无需加盖以防蒸发。
- 活体雌性(FE)刺激物的制备作为刺激源
- 选择一到两个装有性成熟雌性小鼠的新笼子。通过肉眼观察识别处于动情前期或动情期的雌鼠(阴道口开阔且周围呈粉红色,如图所示)。27,28将它们分开放置在不同的笼子中,直至使用。
- 麻醉雌性动物(AF)或雄性动物(AM)作为刺激源的制备
- 对于AF,从上述群体中选择一只雌性小鼠(处于动情前期或动情期)。对于AM,从成年雄性小鼠笼中选择一只雄性小鼠。
- 用氯胺酮/赛拉嗪溶液(分别为100和10 mg/kg)进行腹腔注射,使雌性或雄性动物麻醉。
- 使用眼膏以防止动物在麻醉期间眼睛脱水。通过捏压足爪并观察回缩反射来检查麻醉效果。将已麻醉的动物置于铺有纸巾的清洁笼内,笼子放置在设定好的加热垫上 "最低热量" 以确保体温的控制。
- 如有需要,可在动物苏醒前(通常约45分钟)对同一动物进行2至3次不同记录会话。每次记录会话后,将其放回加热垫上。
- 通过目测控制呼吸频率(约 60 - 80 次/分钟),并通过每 5 分钟触碰动物一次来控制体温(应感觉温暖)。
- 准备开始记录时,点击 "记录" 软件A的按钮
注意:除非用户点击每个通道对应的关键按钮,否则录音不会开始;请通过计算机屏幕监控来自笼子的实时音频,以确保动物鸣叫且录音被正常获取。 - 同时按下要记录的相应盒子的按键即 F1 用于盒子 1),并引入所需的刺激。
- 以以下方式之一呈现刺激:将带有新鲜尿液样本的棉签放入笼内,或将活体雌性放入笼内,或将其中一只麻醉动物(AF 或 AM)放置在笼子金属盖顶部。
- 安静地关闭录音箱,让录音持续预设的分钟数(例如 5 分钟,具体操作见第 1.3 节。
- 录制完成后,点击红色的方形停止按钮以结束录制。
- 若使用麻醉动物作为刺激源,打开隔音记录箱,将麻醉动物从笼子的金属盖上取出,并在下一次记录前放回加热垫上;若不再使用该动物作为刺激源,则每15分钟检查一次,直至其恢复足够的意识以维持胸卧位。
- 打开笼子,取出清醒的测试动物,并将其放回其居住笼中。用70%酒精和蒸馏水清洁测试笼。
- 新鲜尿液(UR)样本作为刺激物的制备
2. 使用 Mouse Song Analyzer v1.3 处理 .wav 文件并进行音节编码
- 开放编码软件 B图1, 表1)并将包含该文件夹的 软件脚本 C 的 "小鼠鸣叫分析仪" (图1, 表1在软件 B 的路径中单击以 "设置路径" 在软件B中添加该文件夹,然后关闭软件B以保存。
- 配置组合软件 B+C 的音节识别设置。注意:软件脚本 C 代码会自动创建一个名为 "超声图像" .wav 文件所在的文件夹中应包含相同位置的 .sng 格式文件。通常建议将使用软件 A 在同一次录音会话中生成的所有 .wav 文件放在同一个文件夹中。
- 使用C配置的开源软件B。
注意:此版本的软件B与软件脚本C完全兼容。无法保证任何后续版本均能接受当前代码中包含的全部功能。 - 导航至包含待分析的 .wav 录音文件的目标文件夹 "当前文件夹" 窗。
- 在 "命令窗口",输入 "whis_gui" 命令
- 在新的 whis-gui 窗口中,观察包含不同参数的多个子窗口区域图3),包括 "超声图像参数", "哨子选项",并调整检测USVs的参数。使用以下参数设置来检测实验室小鼠的USVs音节(例如 B6D2F1/J 和 C57BL/6J 小鼠品系(本研究中使用):
- 在“超声参数”部分,调整 最小频率 至15,000 Hz,的 最大频率 至125,000 Hz,采样频率(频率数量)至 256 kHz,并且 阈值 至 0.3。
- 在哨音选项部分,调整 纯度阈值 至 0.075,的 最短持续时间 音节的持续时间至 3 毫秒, 最低频率 扫频至 20,000 Hz,以及 过滤时长 至 3 毫秒。
- 在其他部分,调整 最短音符时长 3毫秒,并且 最小笔记数量 到 1.
- 对于 音节分类方案在 whis_gui 窗口的中部区域,选中相应的复选框:
默认分类基于 Holy 和 Guo11 和 Arriaga 等10,该编码方式根据音节的音高跳跃次数及跳跃方向进行编码: S 用于简单的连续音节; D 一次音高下降用 d;一次音高上升用 U DD 连续两次向下跳变; DU 一次下降跳跃和一次上升跳跃; 等等。 如果用户未进行任何选择,则将使用此默认设置。用户可通过勾选各个代表性选项框,选择在特定音节类型上运行分析。
按照 Scattoni 所述的方法进行音节分类, 等9,此外选择 分割 s 类别,该类别根据音节形状将此类型进一步划分为更多子类别。
选择 谐波 如果用户希望进一步将音节按是否含有谐波进行分类。
- 使用C配置的开源软件B。
- 对感兴趣的 .wav 文件中的音节进行分类
- 在 whis_gui 窗口的左上部分,选择一个录音会话中的所有 .wav 文件。
- 点击 "获取超声图像" 在 whis_gui 窗口的中央图3). 将创建一个包含声谱图的新文件夹,文件格式为 .sng。在 whis-gui 窗口左上角选中所有声谱图(.sng 文件)。输入 "动物编号" 和 "会话 ID" 在声谱图文件窗口下方的框中,然后单击处理声谱图。
- 观察声像图文件夹中的三种文件类型: "动物编号-实验编号-备注.csv" (包含从音节中提取的音符信息) "动物编号-实验会话编号-音节.csv"(包含所有已分类音节的数值,包括它们的频谱特征以及在声谱图中检测到的音节总数) "动物编号-实验编号-信号轨迹.mat"(包含所有音节的图示表示)。
注意: "动物编号-会话编号-音节" 文件中有时包含少量(2%–16%)未分类的USV音节,这些音节比所选音节更为复杂,或存在两个动物的音节相互重叠的情况23如有需要,可单独检查这些内容。
- 观察声像图文件夹中的三种文件类型: "动物编号-实验编号-备注.csv" (包含从音节中提取的音符信息) "动物编号-实验会话编号-音节.csv"(包含所有已分类音节的数值,包括它们的频谱特征以及在声谱图中检测到的音节总数) "动物编号-实验编号-信号轨迹.mat"(包含所有音节的图示表示)。
3. 音节声学结构与句法的量化
注意:初始句法分析步骤的操作说明包含在我们自定义设计的电子表格计算器 E(图 1,表 1)文件《" Song Analysis Guide v1.1.xlsx "》的“" READ ME! "”工作表中。
- 打开软件脚本 C 文件输出 "动物编号-实验会话编号-音节.csv" 在上一节中通过电子表格获得 软件 D (图1, 表1)。它包含在所有声谱图中检测到的音节总数及其所有频谱特征。
- 如果尚未转换,请在电子表格软件 D 中将此 .csv 文件转换为以列分隔的格式,以便将每个值放入单独的列中。
- 打开 "Song Analysis Guide v1.1.xlsx" 文件也保存在软件 D 中。然后单击 模板 电子表格,并复制粘贴 "动物编号-实验会话编号-音节.csv" 按照“模板”工作表中的说明,将文件数据输入此工作表中。删除音节分类为“未分类”的行。
- 删除“未分类”行后,首先将O列中的ISI(音节间间隔)数据复制并重新计算到E列;其次,将A列到N列的所有数据复制到“Data”工作表中。
- 在数据表格中输入动物编号(AF 列)和记录时长(以分钟为单位;AC 列)。
注意:动物编号必须与录音设置中输入的编号一致。程序将读取输入的字符,并与 .wav 文件的文件名进行比对。 - 使用标记为的电子表格确定 ISI 截断值以定义序列 "密度 ISI",即“ISI图”结果。
注意:在我们之前的研究中23我们将截止值设定为最后一个峰中心的两个标准差。该截止值包括持续时间超过250毫秒的长间隔(LI),用于分隔一次鸣唱会话中不同的鸣唱片段。 - 在“特征”电子表格中查看主要结果(汇总了从每只动物测得的所有光谱特征)。
注意:如果用户在第2.8.9节所述的软件脚本C中使用了默认的音节类别设置,则音节将如上所述进一步分为4类,详见Chabout, 等 231)无任何音高跳跃的简单音节,记为“s”;2)两个音符之间仅有一个向上跳跃的双音音节,记为“u”;3)两个音符之间仅有一个向下跳跃的双音音节,记为“d”;4)音符之间包含两个或以上音高跳跃的更复杂音节,记为“m”。 - 对于语法值,请点击 "全局概率" 使用以下公式计算每对音节转换类型的概率(无论起始音节为何)的电子表格 23.
P(发生某种转换类型的概率)= 某种转换类型的总发生次数 / 转换事件的总次数 全部 类型 - 单击“条件概率”工作表,以计算每种转换类型相对于起始音节的条件概率,该计算使用以下公式:
P(给定起始音节下某类音节转换发生的概率)= 某类音节转换出现的总次数 / 起始音节出现的总次数 全部 具有相同起始音节的转场类型 - 为了检验上述哪些转移概率与随机情况存在显著差异,采用一阶马尔可夫模型,按照以下方法进行23,以使用自定义 软件 F (例如 R Studio 中的语法解码器; 图1, 表1)并使用以下 R 脚本:Tests_For_Differences_In_Dynamics_Between_Contexts.R,用于不同条件下组内比较;或 Tests_For_Differences_In_Dynamics_Between_Genotypes.R,用于相同条件下组间比较。
- 采用卡方检验或其他您选择的统计方法,按照以下方法对同一动物在不同情境下(成对比较)的转移概率进行统计学差异检验。23.
注意:有关用于比较各组间句法的统计模型的更多细节,见于23研究人员可以采用其他方法来分析全局或条件转移概率,这些概率可能是由他们自己或他人所构建的。 - 为了以句法图的形式直观展示序列,将数值输入网络图中进行绘图 软件 G (参见 图1, 表1),其中节点表示不同的音节类别,箭头颜色和/或像素厚度代表音节之间概率值的范围。
注意:为了清晰起见,在全局概率图中,我们仅显示高于 0.005 的转移(即发生概率高于 0.5%);对于条件概率,我们采用 0.05 作为阈值,因为每个条件概率中的数值 "全球模型" 较低,因为我们是除以音节总数,而不仅仅是一种特定类型的音节。
4. 歌曲编辑及测试对特定类型歌曲的偏好
注意:可通过播放超声波发声(USVs)来实验性地检测动物的行为反应,包括对特定鸣唱类型的偏好。由于雌性的偏好可能随动情周期状态而变化,因此在测试前需确保雌性处于相同的动情周期状态,具体方法如下:
- 在回放实验前数天准备具有交配经验的雌性
- 将性成熟的雌性(> 7周龄)在实验前3天暴露于雄性个体,以诱导动情周期(Whitten 28 效应);将雌性置于分隔笼中(带钻孔的透明实心塑料笼),使雌性能看到并闻到雄性,但无法进行交配。
- 监测动情周期,当出现前动情期或动情期特征(如阴道开口及粉红色周围组织,见27)时,将雌性放回其原有笼中。次日即可用于测试。
- 准备用于回放的歌曲文件
- 使用声音处理软件 H(例如 SASLap Pro;图1,表1)中的复制和粘贴功能,创建两个编辑好的.wav文件,作为刺激使用的不同条件。为避免发声量作为变量干扰实验,需确保两个声音文件包含相同数量的音节和序列长度(歌曲片段),这些声音可来自相同或不同个体(雄性/雌性),但需来自目标情境(例如 UR)。
- 在软件H中打开包含条件1歌曲的第一个文件,然后进入文件菜单 File > Specials > Add channel(s) from file,选择包含条件2测试声音的第二个文件。此操作将生成两个通道,每个条件各占一个通道。
- 如有需要,通过进入 Edit > Volume,以视觉方式调整音量,确保两个文件的音量一致。
- 然后进入 Edit > Format > Sampling Frequency Conversion,选择将采样频率从250,000 Hz转换为1,000,000 Hz,即将.wav文件的采样频率从256 kHz提升至1 MHz。此步骤为播放设备读取.wav文件所必需。
- 将这些新文件保存为待播放的测试文件。务必标明哪个通道(1或2)对应哪段歌曲。为便于识别,建议命名为"文件名.wav"。
- 进入 Exit > Format > Swap Channels,交换两个通道。将交换后的版本另存为不同文件名。注意:此为通道反转的反向副本,后续命名为“file name_swapped.wav”。
- 准备回放装置
- 使用70%酒精对回放装置"Y迷宫"进行清洁,随后用蒸馏水冲洗,并用纸巾擦干。本实验所用Y迷宫为自制不透明黑色实心塑料装置,每臂长30 cm,迷宫两端底部设有钻孔,用于安装超声扬声器,使其与迷宫地面齐平(图4A)。
- 确保扬声器处于正确位置并连接至声卡,且声卡已连接至计算机。
- 打开软件A,选择 Play > Device,选择用于回放的声卡设备。选择"use file header rate"。进入 Play > Playlist,加载包含两个通道的待测文件(即 "file.wav")。选择"loop mode"。在迷宫上方架设摄像机,确保完整覆盖整个迷宫区域。
- 执行回放实验
- 将待测雌性放入迷宫,进行10分钟适应期。10分钟后,若雌性未处于起始臂,则轻柔将其推回起始臂,并关闭塑料分隔窗。
- 选择已准备好的文件("file.wav")开始回放。启动视频录制,并确保在视频画面中通过纸条标注明确每个通道对应Y迷宫的哪一侧臂(例如:左侧为UR,右侧为FE)。
- 让雌性在循环模式下聆听歌曲,并在设定时间内自由探索迷宫(例如 5分钟):此为一次实验会话。随后将雌性重新放回起始臂。让其休息1分钟,同时准备下一会话。使用蒸馏水清除任何尿液痕迹和排泄物。
- 加载"file_swapped.wav"文件"。交换视频录制画面中纸条的位置,将左侧移至右侧,反之亦然。1分钟后开始播放该文件,释放雌性进入第二次会话。
- 重复步骤4.4.3至4.4.4,共进行4次会话×5分钟,以控制检测测试过程中可能存在的侧偏效应。所有会话结束后,点击红色停止按钮结束视频录制。在测试不同雌性之间,使用70%酒精和蒸馏水清洁迷宫。
- 一周后,使用相同雌性个体,更换不同歌曲样本重复全部步骤,以获得足够数据验证结果的可靠性。
- 后续观察录像,利用视频计时器和秒表,测量雌性在每次会话中于各臂停留的时间。对所得数据进行统计分析,以判断是否存在歌曲偏好。
结果
在本实验方案中,对雄性B6D2F1/J小鼠的发声行为及发声序列结构的变化进行了表征。通常情况下,使用本方案可在每次5分钟的实验中,平均每只雄性小鼠记录到:对雌性新鲜尿液(UR)刺激产生675 ± 98.5个分类音节,对清醒雌性(FE)产生615.6 ± 72个音节,对麻醉雌性(AF)产生450 ± 134个音节,对清醒雄性(AM)产生75.6 ± 38.9个音节,对雄性新鲜尿液刺激仅产生0.2 ± 0.1个音节(n = 12只雄性小鼠)。在雌性尿液刺激、清醒雌性和麻醉雌性情境下的发声速率分别为约130音节/分钟、约120音节/分钟和约100音节/分钟(图5A)。雄性小鼠对新采集的尿液产生的音节数量明显多于过夜收集的尿液10,23。此外,当面对麻醉雄性或新鲜雄性尿液时,雄性小鼠的发声显著减少(图5A)。雄性小鼠的发声类型也会随情境变化而改变23。例如,B6D2F1/J雄性小鼠在雌性尿液刺激条件下会显著增加多音高跳跃型“m”类音节的产生(图5B)。它们还会在不同情境下改变单个音节的声学特征。例如,与其它情境相比,B6D2F1/J雄性小鼠在雌性尿液情境中发出的音节具有更高的振幅和带宽,而在清醒雌性情境中则表现出更高的谱纯度(图6)23。
该方案还提供了一种测量序列动态特征及句法变化的方法。采用Ey等人改进的方法, 等 22,我们使用 ISI 来定义序列之间的间隔(图7A)23,然后利用这些间隙来区分和分析音节序列的时间模式。我们发现,在清醒的雌性情境下会产生更长的序列长度图 7B)23该技术使我们能够计算复杂序列(由至少2个“m”音节类型组成)与简单序列(由1个或无“m”类型组成,因此主要由“s”类型构成)之间的比率。我们发现,在B6D2F1/J雄性小鼠中,雌性尿液环境所引发的该比率高于其他条件图7C)23,表明它们在雌性尿液条件下产生了更复杂的音节,且这些音节分布在更多的序列中。
我们还可以计算从一种音节类型到另一种音节类型的条件转移概率(共24种转移类型,包括与“静音”状态之间的转移)23。我们发现,在不同条件下,小鼠在给定起始音节时选择的转移类型有所不同,且在雌性尿液刺激条件下具有更高的鸣叫句法多样性(图8)23。这些观察结果与先前的研究报道一致,表明雄性个体能够根据不同的刺激和经历改变其发声的声学特征或鸣叫类型组成4,5,24。
最后,本方案提供了利用回放实验测试雌性偏好行为的指导。我们发现,B6D2F1/J品系雌性更倾向于比简单鸣唱(仅含1个“m”音节)更复杂的鸣唱(包含2个或更多“m”音节)23大多数雌性倾向于更频繁地停留在Y迷宫中播放复杂鸣唱的一侧(图 4B).
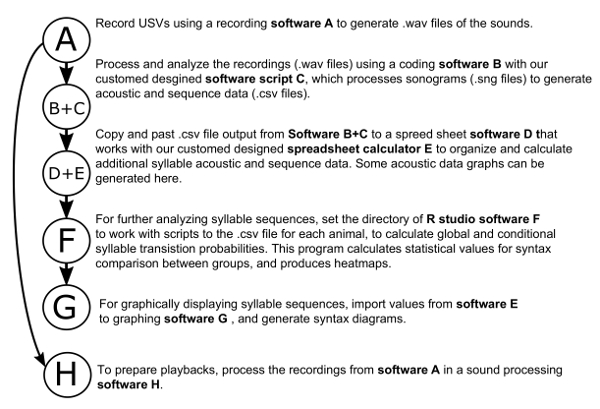
图1:软件使用与分析流程图。 每个程序及其相关代码均以字母命名,以帮助在正文中说明其身份和用途。()内为我们方案中所使用的具体程序。请点击此处查看该图的放大版本。
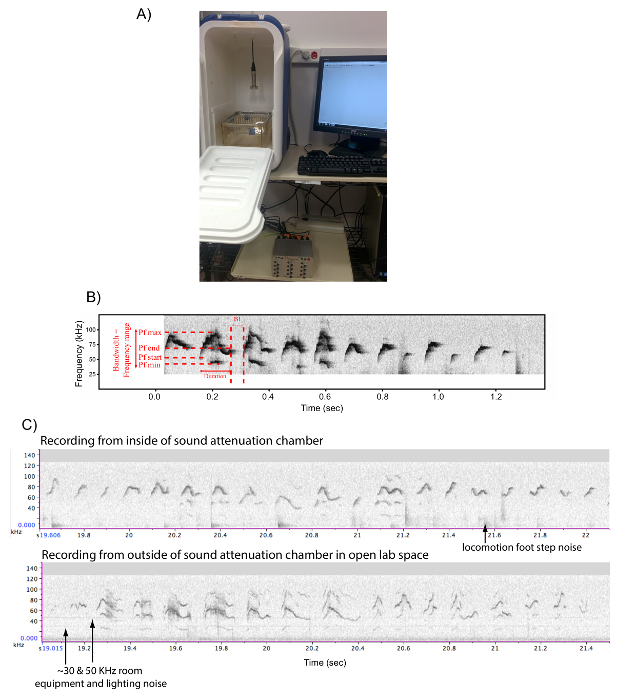
图 2:雄性小鼠鸣叫录音的实验装置。 (A) 声音衰减录音箱及其记录超声波发声(USV)的设置示意图。 (B) 使用软件 A(表 1)获得的录音示例声谱图,其中包含由“Mouse Song Analyzer v1.3”计算出的详细频谱特征:持续时间、音节间间隔(ISI)、峰值频率最小值(Pf min)、峰值频率最大值(Pf max)、峰值频率起始值(Pf start)、峰值频率结束值(Pf end)以及带宽。 (C) 同一只雄性小鼠在声音衰减箱内和实验室台面上(同一房间内但箱外)对一只活体雌鼠鸣叫时的声谱图对比。根据我们的经验观察,箱内录音显示声音音量更大(强度更高)、谐波更少,但即使在未使用吸音棉的情况下,箱内也未发现明显回声。 请点击此处查看该图的放大版本。
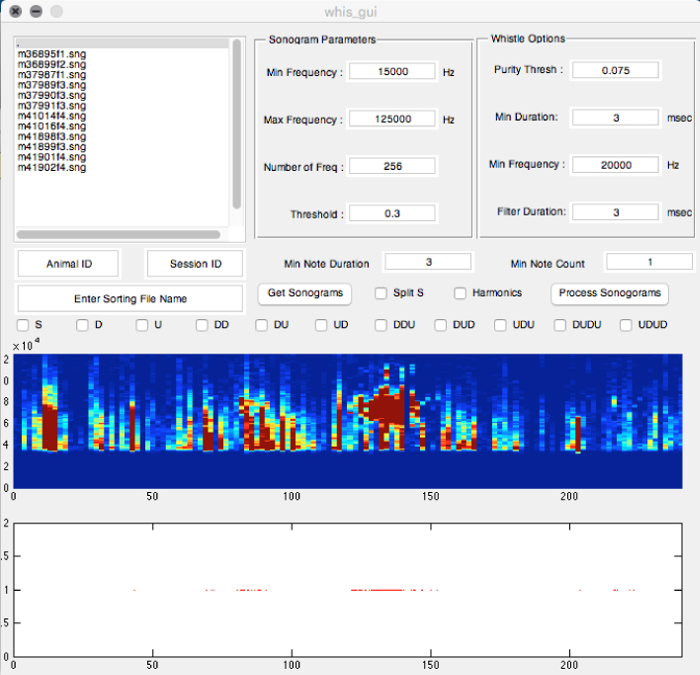
图3:“Mouse Song Analyzer v1.3” whis_gui 窗口的截图,显示可用于分析的不同选项。图中所示参数用于记录雄性小鼠超声发声(USVs)的图像和数据分析(除最短音符持续时间设为3 ms外)。请点击此处查看该图的放大版本。
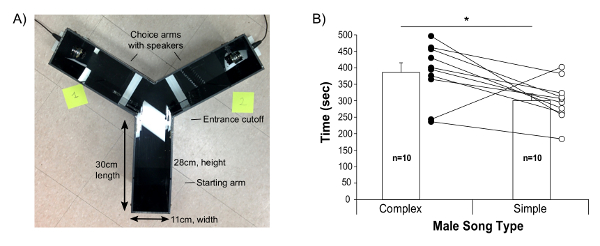
图4:雌性对复杂与简单鸣叫回放的选择偏好。(A) 所使用的Y迷宫装置示意图及尺寸测量。(B) 雌性在播放同一雄性个体鸣叫的两个臂中的停留时间,其中一种为更复杂的鸣叫(由雌性尿液诱导产生),另一种为较简单的鸣叫(由清醒雌性诱导产生)。数据以n = 10只B6D2F1J雌性小鼠的平均值±标准误表示,同时展示了单个数据点;10只雌性中有9只更偏好音节/序列更复杂的鸣叫。* p < 0.05,配对样本t检验。本图经许可改编自Chabout, et al. 23。请点击此处查看该图的放大版本。
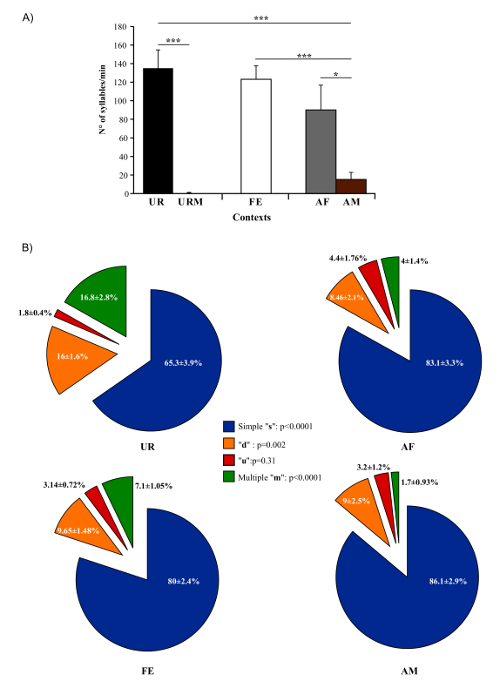
图5:不同条件下发出的音节数量与发声范围. (A) 不同情境下男性音节产生速率 (B) 雄性在接触雌性尿液(UR)、麻醉雌性(AF)、清醒雌性(FE)和麻醉雄性(AM)情境下的鸣唱曲目组成。数据以均值 ± 标准误(SEM)表示。* p<0.03;** p<0.005;*** p<0.0001(经 Benjamini 和 Hochberg 校正后的事后配对样本 t 检验,n = 12 只雄性)。图片来自 Chabout, 等 23 经许可。 请点击此处以查看此图的放大版本。
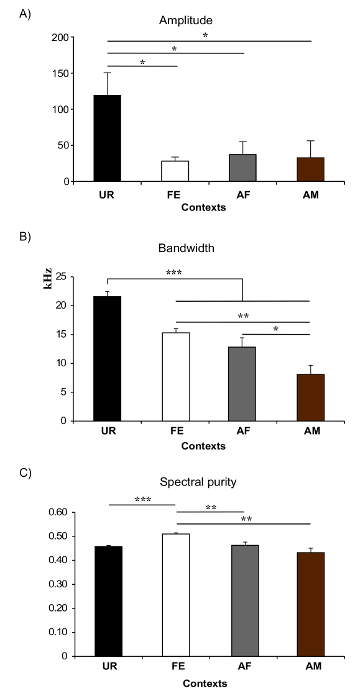
图6:不同背景下的光谱特征示例 (A) 振幅。* p< 校正后事后配对样本 t 检验的 p 值为 0.025。 (B) 频率范围或带宽。*:p < 0.041;**:p < 0.005;***:p < 0.0001,校正后。 (C) 音节的光谱纯度。* p: < 0.025;**:p < 0.005;***:p < 校正后为 0.0001。缩写:女性尿液(UR)、麻醉雌性(AF)、清醒雌性(FE)和麻醉雄性(AM)。图片改编自 Chabout, 等 23 经许可。 请点击此处以查看此图的放大版本。
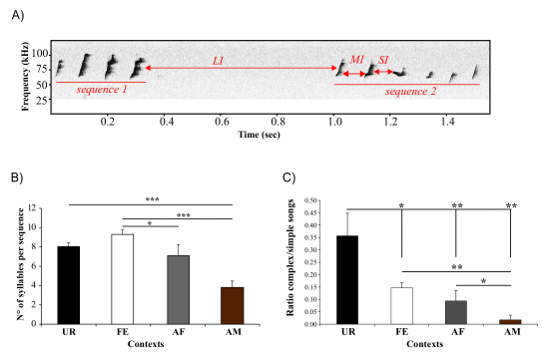
图7:序列测量。 (A) 使用ISI来分隔序列。短ISI(SI)和中等ISI(MI)用于分隔序列内的音节,而长ISI(超过250 ms,LI)用于分隔两个序列。 (B) 不同情境下雄性个体发出的序列长度(以每个序列的音节数量衡量)。*:p < 0.025;** p < 0.005;*** p < 0.0001,校正后。 (C) 不同情境下雄性个体发出的复杂歌曲与简单歌曲的比例。* p < 0.041; ** p < 0.005;*** p < 0.0001。数据以均值 ± 标准误表示(n = 12 只雄性)。图源自 Chabout, 等 23 经许可。 请点击此处以查看此图的放大版本。
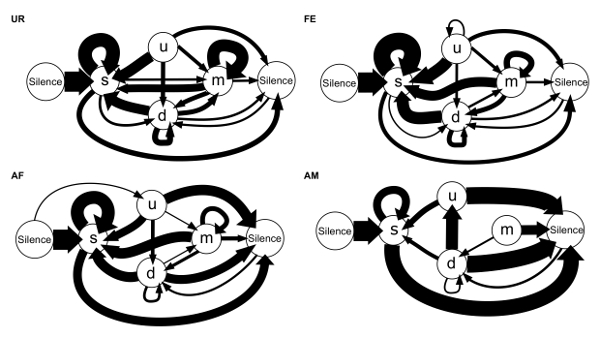
图8:基于每种语境下条件概率的序列音节句法图。 箭头粗细与每种语境中转移类型的条件概率发生率成正比,该概率由 n = 12 只雄性个体的数据取平均值计算得出:P(给定起始音节时发生某种转移的概率)。为清晰起见,发生概率低于 0.05 的罕见转移未予显示。图源自 Chabout,et al. 23,经许可使用。请点击此处查看此图的放大版本。
讨论
本方案提供了在实验室条件下,针对多种主要与雌性相关的刺激,收集、量化和研究雄性小鼠求偶发声的方法。如Chabout先前所述, 等 23在代表性结果中,该方法使我们能够发现对接受雌性具有重要意义的、依赖于情境的发声行为及语音结构。这些刺激的标准化将有助于可靠地收集大量超声波发声(USVs),并实现对雄性求偶歌曲及其发声序列的详细分析。
当有活体雌性与雄性共处时,本方案无法明确区分发声的来源个体。然而,先前的研究表明,在此类情境下记录到的大部分发声信号来自雄性26,29。大多数使用同种个体(雄性或雌性)作为雄性刺激的研究认为,雌性在此类情境中的发声量可忽略不计4,5,22,30。然而,最近一项研究采用三角定位法,在群体饲养条件下对发声个体进行了声源定位31,结果表明,在配对关系中,雌性贡献了约10%的超声波发声(USVs)。在本方案中,使用麻醉雌性可使研究者在存在雌性刺激的情况下研究雄性的发声行为,同时避免雌性自身发声的干扰。与上述近期研究的预期相反31,我们发现雌性存在(FE)与麻醉雌性(AF)两种条件下,雄性发出的音节数量并无显著差异23。这一结果可能说明活体雌性在录音中并未显著贡献发声信号,或雄性在活体雌性面前的发声频率低于在麻醉雌性面前。尽管如此,我们认为未来的研究应考虑采用这种三角定位方法,以评估雌性发声可能带来的影响。
还有其他软件可以执行我们所述的部分步骤,但我们认为,对于本研究提出的问题,仅使用单一软件尚不足以充分解决。因此,我们结合了三种程序:软件A、使用软件B的Mouse Song Analyzer软件脚本C、基于自定义电子表格软件D+E计算的句法分析软件,以及使用R语言的句法解码器。例如,最近有研究提出了一款名为VoICE的软件,该软件可允许用户从声谱图中自动提取声学参数,或直接对由用户手动选定的单元进行声学变量提取。32但自动化或半自动化的序列分析不如我们的方法详细。一些商业软件可以自动分析声学特征,但无法对音节进行自动分类;用户仍需在之后对不同音节进行手动分类。Grimsley, Gadziola, 等 33 开发了一种基于表格的虚拟小鼠发声器官程序,该程序可根据共享的声学特征对音节进行聚类,但不提供音节的自动检测功能。他们的程序34 其独特之处在于利用马尔可夫模型从录制的歌曲中生成全新的序列,因此相较于简单的编辑具有更先进的功能。
以往关于小鼠交流的大多数研究都集中在发声者一方35,36。少数研究探讨了接收者一方30,37,38。回放与辨别实验方案为研究接收者行为提供了简单的方法,例如Asaba, Kato, et al. 39近期所描述的方法。在该研究中,作者使用了一个用吸音泡沫分隔的双选择测试箱,而非本文所述的Y型迷宫箱。两种选择装置各有优缺点。首先,Y型迷宫无法将一个臂中的声音与另一个臂完全隔离,而双选择箱则可以实现声音隔离。然而,采用Y型迷宫设计,动物能够快速评估同时播放的两种歌声,并向其偏好的一方移动。尽管如此,总体而言,回放实验有助于研究者确定发声对同种动物所具有的意义及其功能。总之,在掌握本实验方案及其分析技术后,读者应能够探讨诸多影响小鼠超声波发声(USVs)的情境、遗传学及神经生物学因素的问题。
使用 B6D2F1/J 小鼠时,我们在实验室中测试的雄性小鼠几乎总是会被雌性相关的刺激诱发发出超声波发声(USVs)。为了能够进行有力的统计学分析,关键是要收集足够的音节(> 100 个/5 分钟)。如果未记录到超声波发声(或数量不足),可参考以下故障排除方法:首先检查设备配置,确保声音正在被正常记录;在引入刺激后,通过计算机屏幕上实时显示的声谱图,现场观察笼内发生的情况。否则,可尝试将雄性小鼠与性成熟且具有接受性的雌鼠共处一晚,随后单独饲养数天至一周,再进行下一次记录。根据经验性观察,我们发现某些雄性小鼠在某一天可能持续鸣唱很长时间(几乎持续整整 5 分钟),而第二天则发声很少,之后又可能在另一天再次大量发声。目前尚不清楚此类个体内部变异发生的原因,但我们推测这可能与雄性自身的动机或季节性因素有关,也可能与雌性尿液所反映的动情周期状态相关。如果仍未记录到超声波发声,建议在多个不同日期重复记录,以捕捉这些可变效应。与鸣禽不同的是,我们并未观察到一天中不同时间段在鸣唱量上的明显差异。我们发现,雄性小鼠在7周龄之前通常发声较少(< 100 个音节/5 分钟)。
本文介绍的检测方法可在几分钟内提取出数千个音节及所有声学参数。但与所有自动检测方法一样,该方法对背景噪声非常敏感。使用 Mouse Song Analyzer 检测软件分析噪声较多的录音(例如在垫料环境中录制的动物声音)时,可能需要调整检测"阈值"以增加灵活性。然而,这也会增加误检音节的数量,甚至导致自动检测失败。在此情况下,可采用人工编码方法。
如前所述,不同品系小鼠发声的数量、类型和潜伏期存在广泛差异,因此可能需要调整参数(录音时长、刺激方式、自动音节检测)。 等。) 对某些菌株进行处理,以确保获得适用于统计分析的最佳记录数据。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了霍华德·休斯医学研究所对 EDJ 的资助。我们感谢普鲁·西尔维·格拉诺(NeuroPSI - 巴黎第十一大学 - 法国)出借扬声器硬件。我们还感谢贾维斯实验室成员对本研究的支持、讨论以及在修改和评论方面提供的帮助,特别感谢约书亚·琼斯·马科普森在图示绘制和测试方面给予的帮助。我们感谢古斯塔沃·阿里亚加博士在小鼠鸣叫分析软件(Mouse Song Analyzer)方面的协助,他为我们将软件升级至 V1.3 版本,并协助了本方案的其他方面工作。该软件 v1.0 版本由 Holy 和郭开发,v1.1 和 v1.3 版本由阿里亚加开发。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 隔音沙滩冷藏箱 | 参见 Gus 论文,其中包含有关具体类型的更多信息 | 内部尺寸(长 27 × 宽 23 × 高 47 cm): | |
| 电容式超声麦克风 CM16/CMPA | Avisoft Bioacoustics,德国柏林 | #40011 | 包含延长电缆 |
| Ultrasound Gate 1216H 声卡 | Avisoft Bioacoustics,德国柏林 | #34175 | 12通道声卡 |
| 超声门控播放器 216H | Avisoft Bioacoustics,柏林,德国 | #70117 | 2通道播放器 |
| 超声波静电扬声器 ESS 胶片 | Avisoft Bioacoustics,德国柏林 | #60103 | 2 个播放扬声器 |
| 测试笼 | Ace | #PC75J | 30 × 8 × 13 cm 高度;聚甲基丙烯酸甲酯(PMMA) |
| 亚克力隔板分离 | 自制 | - | 4 个 13 厘米长的聚甲基丙烯酸甲酯管,每管带有 1 厘米直径的孔 |
| 视频摄像机 | 罗技 | C920 | 罗技 HD Pro 网络摄像头 C920 |
| 加热垫 | 阳光束 | 722-810-000 | |
| Y迷宫 | 自制 | - | 内部尺寸(长 30 × 宽 11 × 高 29 cm): |
| 镊子 | |||
| 软件 | |||
| Avisoft Recorder(软件 A) | Avisoft Bioacoustics,德国柏林 | #10101, #10111, #10102, #10112 | http://www.avisoft.com |
| MATLAB R2013a(软件 B) | MathWorks | - | MATLAB R2013a (8.1.0.604) |
| 小鼠鸣叫分析仪 v1.3(软件 C) | 由 Holy、Guo、Arriaga 定制设计 & Jarvis;使用软件 B 运行 | http://jarvislab.net/wp-content/uploads/2014/12/Mouse_Song_Analyzer_ v1.3-2015-03-23.zip | |
| Microsoft Office Excel 2013(软件 D) | 微软 | - | Microsoft Office Excel |
| 歌曲分析指南 v1.1(软件 E) | 由 Chabout 定制设计 & Jarvis. Excel 计算器表格,与软件 D 配合使用 | http://jarvislab.net/wp-content/uploads/2014/12/Song-analysis_Guided.xlsx | |
| 语法解码器 v1.1(软件 F) | 由 Sakar、Chabout、Dunson、Jarvis 在 R studio 中定制设计 | https://www.rstudio.com/products/rstudio/download/ | |
| Graphiz(软件 G) | AT&T 研究及其他团队 | http://www.graphviz.org | |
| Avisoft SASLab(软件 H) | Avisoft Bioacoustics,柏林,德国 | #10101, #10111, #10102, #10112 | http://www.avisoft.com |
| 试剂 | |||
| Xylazine(20 mg/mL) | 安内静 | - | |
| 盐酸氯胺酮(100 mg/mL) | Henry Schein | #045822 | |
| 蒸馏水 | |||
| 眼膏 | Puralube Vet 软膏 | NDC 17033-211-38 | |
| 棉签 | |||
| 培养皿 |
参考文献
- Amato, F. R., Scalera, E., Sarli, C., Moles, A. Pups call, mothers rush: does maternal responsiveness affect the amount of ultrasonic vocalizations in mouse pups. Behav. Genet. 35, 103-112 (2005).
- Panksepp, J. B., et al. Affiliative behavior, ultrasonic communication and social reward are influenced by genetic variation in adolescent mice. PloS ONE. 2, e351(2007).
- Moles, A., Costantini, F., Garbugino, L., Zanettini, C., D'Amato, F. R. Ultrasonic vocalizations emitted during dyadic interactions in female mice: a possible index of sociability. Behav. Brain Res. 182, 223-230 (2007).
- Chabout, J., et al. Adult male mice emit context-specific ultrasonic vocalizations that are modulated by prior isolation or group rearing environment. PloS ONE. 7, e29401(2012).
- Yang, M., Loureiro, D., Kalikhman, D., Crawley, J. N. Male mice emit distinct ultrasonic vocalizations when the female leaves the social interaction arena. Front. Behav. Neurosci. 7, (2013).
- Petric, R., Kalcounis-Rueppell, M. C. Female and male adult brush mice (Peromyscus boylii) use ultrasonic vocalizations in the wild. Behaviour. 150, 1747-1766 (2013).
- Bishop, S. L., Lahvis, G. P. The autism diagnosis in translation: shared affect in children and mouse models of ASD. Autism Res. 4, 317-335 (2011).
- Lahvis, G. P., Alleva, E., Scattoni, M. L. Translating mouse vocalizations: prosody and frequency modulation. Genes Brain & Behav. 10, 4-16 (2011).
- Scattoni, M. L., Gandhy, S. U., Ricceri, L., Crawley, J. N. Unusual repertoire of vocalizations in the BTBR T+tf/J mouse model of autism. PloS ONE. 3, (2008).
- Arriaga, G., Zhou, E. P., Jarvis, E. D. Of mice, birds, and men: the mouse ultrasonic song system has some features similar to humans and song-learning birds. PloS ONE. 7, (2012).
- Holy, T. E., Guo, Z. Ultrasonic songs of male mice. PLoS Biol. 3, 2177-2186 (2005).
- Portfors, C. V. Types and functions of ultrasonic vocalizations in laboratory rats and mice. J. Amer. Assoc. Lab. Anim. Science: JAALAS. 46, 28-28 (2007).
- Wohr, M., Schwarting, R. K. Affective communication in rodents: ultrasonic vocalizations as a tool for research on emotion and motivation. Cell Tissue Res. , 81-97 (2013).
- Pasch, B., George, A. S., Campbell, P., Phelps, S. M. Androgen-dependent male vocal performance influences female preference in Neotropical singing mice. Animal Behav. 82, 177-183 (2011).
- Asaba, A., Hattori, T., Mogi, K., Kikusui, T. Sexual attractiveness of male chemicals and vocalizations in mice. Front. Neurosci. 8, (2014).
- Balaban, E. Bird song syntax: learned intraspecific variation is meaningful. Proc. Natl. Acad. Sci. USA. 85, 3657-3660 (1988).
- Byers, B. E., Kroodsma, D. E. Female mate choice and songbird song repertoires. Animal Behav. 77, 13-22 (2009).
- Hanson, J. L., Hurley, L. M. Female presence and estrous state influence mouse ultrasonic courtship vocalizations. PloS ONE. 7, (2012).
- Pomerantz, S. M., Nunez, A. A., Bean, N. J. Female behavior is affected by male ultrasonic vocalizations in house mice. Physiol. & Behav. 31, 91-96 (1983).
- White, N. R., Prasad, M., Barfield, R. J., Nyby, J. G. 40- and 70-kHz Vocalizations of Mice (Mus musculus) during Copulation. Physiol. & Behav. 63, 467-473 (1998).
- Hammerschmidt, K., Radyushkin, K., Ehrenreich, H., Fischer, J. Female mice respond to male ultrasonic 'songs' with approach behaviour. Biology Letters. 5, 589-592 (2009).
- Ey, E., et al. The Autism ProSAP1/Shank2 mouse model displays quantitative and structural abnormalities in ultrasonic vocalisations. Behav. Brain Res. 256, 677-689 (2013).
- Chabout, J., Sarkar, A., Dunson, D. B., Jarvis, E. D. Male mice song syntax depends on social contexts and influences female preferences. Front. Behav. Neurosci. 9. 76, (2015).
- Hoffmann, F., Musolf, K., Penn, D. J. Freezing urine reduces its efficacy for eliciting ultrasonic vocalizations from male mice. Physiol. & Behav. 96, 602-605 (2009).
- Roullet, F. I., Wohr, M., Crawley, J. N. Female urine-induced male mice ultrasonic vocalizations, but not scent-marking, is modulated by social experience. Behav. Brain Res. 216, 19-28 (2011).
- Barthelemy, M., Gourbal, B. E., Gabrion, C., Petit, G. Influence of the female sexual cycle on BALB/c mouse calling behaviour during mating. Die Naturwissenschaften. 91, 135-138 (2004).
- Byers, S. L., Wiles, M. V., Dunn, S. L., Taft, R. A. Mouse estrous cycle identification tool and images. PloS ONE. 7, (2012).
- Whitten, W. K. Modification of the oestrous cycle of the mouse by external stimuli associated with the male. J. Endocrinol. 13, 399-404 (1956).
- Whitney, G., Coble, J. R., Stockton, M. D., Tilson, E. F. ULTRASONIC EMISSIONS: DO THEY FACILITATE COURTSHIP OF MICE. J. Comp. Physiolog. Psych. 84, 445-452 (1973).
- Asaba, A., et al. Developmental social environment imprints female preference for male song in mice. PloS ONE. 9, 87186(2014).
- Neunuebel, J. P., Taylor, A. L., Arthur, B. J., Egnor, S. E. Female mice ultrasonically interact with males during courtship displays. eLife. 4, (2015).
- Burkett, Z. D., Day, N. F., Penagarikano, O., Geschwind, D. H., White, S. A. VoICE: A semi-automated pipeline for standardizing vocal analysis across models. Scientific Reports. 5, 10237(2015).
- Grimsley, J. M., Gadziola, M. A., Wenstrup, J. J. Automated classification of mouse pup isolation syllables: from cluster analysis to an Excel-based "mouse pup syllable classification calculator". Front. Behav. Neurosci. 6, (2012).
- Grimsley, J. M. S., Monaghan, J. J. M., Wenstrup, J. J. Development of social vocalizations in mice. PloS ONE. 6, (2011).
- Portfors, C. V., Perkel, D. J. The role of ultrasonic vocalizations in mouse communication. Curr. Opin. Neurobiol. 28, 115-120 (2014).
- Merten, S., Hoier, S., Pfeifle, C., Tautz, D. A role for ultrasonic vocalisation in social communication and divergence of natural populations of the house mouse (Mus musculus domesticus). PloS ONE. 9, 97244(2014).
- Neilans, E. G., Holfoth, D. P., Radziwon, K. E., Portfors, C. V., Dent, M. L. Discrimination of ultrasonic vocalizations by CBA/CaJ mice (Mus musculus) is related to spectrotemporal dissimilarity of vocalizations. PloS ONE. 9, 85405(2014).
- Holfoth, D. P., Neilans, E. G., Dent, M. L. Discrimination of partial from whole ultrasonic vocalizations using a go/no-go task in mice. J. Acoust. Soc. Am. 136, 3401(2014).
- Asaba, A., Kato, M., Koshida, N., Kikusui, T. Determining Ultrasonic Vocalization Preferences in Mice using a Two-choice Playback. J Vis Exp. , (2015).
重印与许可
