雷诺丁受体的寡聚化,一种介导Ca²⁺释放的同源四聚体离子通道2+ 来自细胞内储存的释放,对骨骼肌和心肌收缩至关重要。本文中,我们介绍互补的 体内 和 体外 检测蛋白质自关联及确定同源寡聚体化学计量比的方法
本文内容
摘要
摘要
寡聚化通常是蛋白质发挥其特定细胞功能所需的结构条件。例如,兰尼碱受体(RyR)的四聚化是形成功能性 Ca2+ 释放通道孔道的必要条件。本文中,我们描述了评估蛋白质自关联的详细实验方案,包括酵母双杂交(Y2H)、共免疫沉淀(co-IP)和化学交联实验。在Y2H系统中,通过检测共同表达GAL4诱饵和目标融合蛋白的酵母中的β-半乳糖苷酶活性,来判断蛋白质的自相互作用。进一步利用在哺乳动物HEK293细胞中共表达的HA标签和cMyc标签融合蛋白,通过共免疫沉淀实验验证蛋白质的自相互作用。通过在HEK293细胞中表达后进行交联处理及SDS-PAGE分析,可精确测定蛋白质同源寡聚体的化学计量比。利用这些不同但互补的技术,我们持续观察到RyR N端结构域的自关联现象,并证实其具有内在形成四聚体的能力。这些方法可广泛应用于其他哺乳动物整合膜蛋白的蛋白质-蛋白质相互作用及同源寡聚化研究。
引言
骨骼肌和心肌的收缩由兰尼碱受体(RyR)介导的肌浆网Ca2+释放触发。哺乳动物中存在三种RyR亚型,其功能性通道由四个相同的亚基组成。每个RyR亚基包含一个较大的细胞质调节性N端部分和一个较小的C端部分,后者含有跨膜结构域,形成高通导性的Ca2+孔道。异常的亚基内和亚基间相互作用会导致RyR通道功能障碍,进而引发神经肌肉和心脏疾病1。因此,鉴定并表征参与RyR结构与功能关系的特定结构域,对于理解RyR的病理生理机制至关重要。
传统的生物化学蛋白质-蛋白质相互作用技术需要大量纯化的蛋白质,这些蛋白质通常在细菌中表达。然而,对于由约5000个氨基酸组成的巨大膜蛋白RyR而言,这种方法并不可行,因为其重组片段难以在细菌系统中有效表达和纯化。因此,哺乳动物整合膜蛋白需要采用涉及真核宿主细胞的替代表达系统。我们此前已综合运用酵母双杂交(Y2H)、共免疫沉淀(co-IP)和交联实验,证明N端四聚化是三种哺乳动物RyR亚型中保守的结构特征2,3。重要的是,我们发现与致心律失常性心脏疾病相关的一个单点突变会破坏N端的自身结合,导致RyR通道功能异常4。我们还将这些技术应用于RyR胞质C端尾部的寡聚化研究5,以及同源的细胞内Ca2+释放通道——肌醇1,4,5-三磷酸受体N端区域的研究2。
在酵母双杂交(Y2H)实验中,通过功能性的转录因子(GAL4)的重建及其对报告基因的后续激活来检测两种蛋白质(X 和 Y)之间的相互作用6-9。使用两种不同的克隆载体,将待测的两种蛋白质分别与GAL4的两个物理上可分离的独立结构域融合:DNA结合结构域(DNA-BD)与蛋白质X的融合体(诱饵),以及激活结构域(AD)与蛋白质Y的融合体(靶标)。通过构建同一蛋白质与GAL4的DNA-BD和AD的融合体,Y2H也可用于检测某蛋白质是否能与自身发生相互作用。经过基因改造的Y2H酵母菌株缺失GAL4和GAL80基因(GAL80蛋白是GAL4的抑制因子),同时也缺失TRP1和LEU2基因(以分别提供对诱饵和猎物质粒的营养筛选)。在酵母细胞核内,只有当X与Y发生相互作用时,重组的DNA-BD和AD多肽才会在空间上紧密接近,从而形成杂合的GAL4转录因子。该方法可通过平行激活营养型(HIS3,编码组氨酸生物合成所必需的酶)和显色型(LacZ,编码β-半乳糖苷酶(β-Gal))报告基因,实现快速的遗传筛选以检测蛋白质-蛋白质相互作用。Y2H的主要优势在于它是一种体内实验方法,能够检测到即使很弱或瞬时的蛋白质-蛋白质相互作用。此外,检测过程仅需使用生长筛选(在缺乏组氨酸的培养基中)或比色法(β-Gal)检测,无需纯化诱饵蛋白和靶标蛋白,也无需制备特异性抗体。此外,Y2H还可用于筛选随机未知克隆文库(与GAL4 AD融合的cDNA文库克隆),以寻找诱饵蛋白的新结合伙伴,并可直接获得文库中对应蛋白的cDNA。
为了进一步验证Y2H实验结果,可采用独立的生物化学技术。免疫共沉淀(Co-IP)和交联实验结合免疫印迹分析,是用于在复杂样品混合物中检测蛋白质相互作用的方法。 例如全细胞裂解液10其主要优势在于能够报告来自天然组织的蛋白质-蛋白质相互作用,而不同于其他需要使用重组蛋白的方法。重组蛋白通常在哺乳动物细胞系中表达,这种表达系统中重组蛋白更可能具有正确的构象、翻译后修饰以及亚细胞定位。然而,由于共免疫沉淀和交联实验是 体外 在使用匀浆细胞的实验中,有必要确认两种蛋白质伙伴是否在完整细胞中共定位11我们常规采用磷酸钙沉淀法转染哺乳动物HEK293细胞,以瞬时表达哺乳动物的整合膜蛋白和胞质蛋白。2-4,12-14,此处已详细描述。这是一种经济高效地将质粒DNA导入细胞的方法,但其效果依赖于所使用的特定细胞系、细胞融合度以及质粒DNA的纯度。11,15.
共免疫沉淀(co-IP)实验是在非变性条件下,从细胞裂解液中分离目标天然蛋白或重组蛋白,从而实现其潜在相互作用伙伴的共纯化10,16。该实验需要使用两种独立的抗体:用于沉淀蛋白X的免疫沉淀抗体,以及用于检测蛋白伙伴Y的免疫印迹抗体。通过构建带有两种不同表位标签(例如,HA和cMyc)的融合蛋白,该方法也可用于检测某蛋白是否与自身发生相互作用。免疫沉淀抗体通过其Fc区结合到蛋白A(或蛋白G,取决于抗体来源的动物物种)上,而蛋白A(或G)则偶联于琼脂糖(或Sepharose)树脂。将抗体-蛋白A树脂与细胞裂解液(即匀浆细胞的去垢剂可溶性组分)孵育后,蛋白X被沉淀下来。蛋白免疫复合物随后用含SDS的缓冲液洗脱,并通过SDS-PAGE分离及免疫印迹分析,利用特异性抗体检测蛋白Y的存在17。共免疫沉淀实验应使用去垢剂可溶性蛋白进行,以避免过度的非特异性结合。针对每一对X:Y蛋白,应优化去垢剂的种类及其浓度,以及洗涤次数10,16,18。
交联法用于确定寡聚蛋白复合物的化学计量比。该方法基于化学反应,在相邻的相互作用亚基之间形成共价键,从而可在SDS-PAGE分离过程中保持蛋白的寡聚状态。目前已有多类交联试剂,其长度和化学性质各异,可靶向蛋白上的不同反应性基团,通常为伯胺基、羧基或巯基。本文描述了使用戊二醛(OHC(CH2)3CHO)的方法,这是一种两端均含有醛基的同双功能交联剂,可与赖氨酸残基中的游离氨基发生反应19,20。通过浓度梯度或时间梯度进行交联反应,从而形成加合物。使用肼(H2NNH2)终止戊二醛反应后,通过SDS-PAGE和免疫印迹分析蛋白样品17,以评估其寡聚化状态。需要指出的是,交联反应本身不会诱导蛋白寡聚化,而仅在预先存在的蛋白复合物之间形成稳定的连接桥。进行交联实验时的重要考虑因素包括交联剂的选择、其浓度以及反应时间19,20。
方案
1. 酵母双杂交
- 酵母转化
- 配制以下培养基和缓冲液:
- 配制酵母完全培养基(YPD),成分包括:20 g/L 胀蛋白胨、10 g/L 酵母提取物、2% w/v 葡萄糖(灭菌后加入)以及 20 g/L 琼脂(仅用于平板);经高压灭菌后,于实验当日新鲜使用。
- 制备酵母最小合成定义培养基(SD培养基,缺乏亮氨酸和色氨酸以维持对诱饵和靶质粒的选择性压力):将6.7 g/L酵母氮源基础培养基、1.6 g/L缺乏亮氨酸和色氨酸的Dropout补充剂、2% w/v葡萄糖(高压灭菌后加入)和20 g/L琼脂(仅用于平板)混合溶解;经高压灭菌后,在实验当天新鲜使用。
- 制备50% w/v PEG(聚乙二醇)3350;通过滤膜除菌 0.2 µm 过滤后于室温保存。
- 配制 100 mM Tris/10 mM EDTA (10x TE),调节 pH 至 7.5,经滤膜除菌 0.2 µm 过滤并在室温下保存。
- 配制 1 M 醋酸锂(10x LiAc);用 CH 调节 pH 至 7.53COOH,通过一个 0.2 µm 过滤后于室温保存。
- 复苏Y2H菌株(例如, Y190)通过将少量冻存的甘油菌种划线接种至YPD平板上。于30°C培养 30 °C 直到酵母菌落直径达到约 2 mm(通常需要 3 - 5 天,具体时间取决于酵母菌株)。
- 接种单个较大的菌落(直径 2 - 3 mm)至 0.5 ml YPD 培养基中(置于 1.5 ml 离心管内),剧烈涡旋振荡约 2 分钟以充分分散菌体团块。
- 将细胞悬液转移至含有50 ml YPD培养基的500 ml锥形瓶中。于30°C、200 rpm振荡培养 30 °C 在250 rpm振荡条件下培养16–18小时,使酵母达到稳定期。
- 将4–5 ml过夜培养物转移至200 ml YPD培养基中(置于1 L锥形瓶内),使600 nm处的光密度(OD600使用分光光度计测定的吸光度为 0.2 - 0.3(200 ml 可满足 20 次转化实验所需)。
- 孵育于 30 °C 以250 rpm振荡培养,直至细胞进入对数中期。 即,OD600 = 0.5 - 0.6(通常为 2 - 3 小时)。
- 通过离心(使用50 ml离心管)收集酵母,1,500 × g、室温下离心5 min。弃去上清液,将每份沉淀重悬于5 ml无菌H2O 并合并。
- 在室温下以 1,500 × g 离心 5 分钟,弃上清液。将酵母沉淀重悬于 1 ml 新鲜配制的无菌 1× LiAc/TE 溶液中。
注意:制备后1小时内使用感受态酵母细胞。 - 准备质粒样品(置于1.5 ml离心管中),单次转化加入200 ng质粒DNA,或0.5 - 1 µg 每种质粒DNA用于共转化,以及 100 µg 鲱鱼精载体DNA(使用前煮沸20分钟,冰上冷却)。
注意:需设置阳性对照, 例如携带 pVA3(编码与 GAL4 DNA 结合域融合的 p53 蛋白)和 pTD1(编码与 GAL4 激活域融合的 SV40 大 T 抗原)的酵母共转化株。 - 添加 100 µl 新鲜制备的感受态酵母悬液(步骤 1.1.8) 600 µl 1× LiAc/PEG 溶液(8 ml PEG 3350 储液,1 ml TE 储液,1 ml LiAc 储液),涡旋混匀约 30 秒。30 °C 培育 30 °C 在200 rpm条件下振荡孵育30分钟。
- 添加 80 µl 二甲基亚砜(终浓度10% v/v),轻轻翻转混匀。在 42 °C 水浴中孵育,每2-3分钟混匀一次。
- 将细胞悬液置于冰上冷却2分钟,室温下以14,000 x g离心15秒以收集酵母。
- 重悬细胞沉淀于 100 µl 用1× TE悬浮,并涂布于适当的SD选择性培养基平板(缺乏亮氨酸和色氨酸的培养基,以维持对诱饵和目标质粒的选择性压力)进行选择性培养。
- 倒置培养板于 30 °C 直至菌落直径达约2 mm(通常为4–5天)。平板可保存于 4 °C 2-3周;如需长期保存,应制备甘油菌种并储存于-80 °C.
注意:通过免疫印迹法验证诱饵蛋白和靶蛋白在酵母中的表达17,且当它们分别在酵母中单独表达时,不会产生自主的报告基因激活(通过1.3节所述的β-半乳糖苷酶检测法测定)。
- 配制以下培养基和缓冲液:
- 菌落印迹滤纸β-半乳糖苷酶检测
- 配制以下缓冲液:
- 制备含有 100 mM Na 的 Z 缓冲液2HPO4,40 mM NaH2PO4,10 mM KCl,1 mM MgSO₄4;调节pH至7.4。经高压灭菌后,室温保存。
- 通过将5-溴-4-氯-3-吲哚基-β-D-半乳糖吡喃糖苷以20 mg/ml浓度溶于N,N-二甲基甲酰胺中配制X-Gal缓冲液,并避光保存于-20 °C. 配制Z缓冲液/X-Gal溶液。使用前将X-Gal配制成0.33 mg/ml,β-巯基乙醇配制成0.27% v/v,溶于Z缓冲液中。每份样品使用2.5 ml。
- 在洁净的100 mm培养皿中加入2.5 ml新配制的Z缓冲液/X-Gal溶液,并放入一张纤维素滤纸。
- 将一张新的滤纸覆盖在含有待检测酵母菌落的平板表面,用镊子轻轻按压滤纸使其与平板接触,并静置约5分钟,使菌落附着于滤纸上。
注意:平行处理阳性对照, 即,用pVA3和pTD1共转化的酵母。 - 用镊子将滤纸提起并浸入液氮中30秒(操作液氮时需谨慎,务必佩戴厚手套和护目镜)。将冷冻后的滤纸在室温下解冻约2分钟。
- 将滤纸(菌落面朝上)放置于100 mm培养皿内已预浸润的滤纸上,于指定条件下培养 30 °C.
- 定期(约每30分钟)观察蓝色菌落的出现情况。共转化阳性对照质粒(pVA3 + pTD1)的酵母Y190在60分钟内将变为蓝色(未发表观察结果)。
注意:较弱的诱饵:靶标相互作用可能需要数小时才能产生阳性蓝色信号(避免长时间孵育)>8 小时)可能导致假阳性结果)。为获得最佳效果,应使用新鲜共转化的菌落, 即,于 30 °C 4至5天,直径约2毫米。
- 配制以下缓冲液:
- 液体培养 β-半乳糖苷酶检测
- 配制以下缓冲液:
- 制备含有 100 mM Na 的 Z 缓冲液2HPO4,40 mM NaH2PO4,10 mM KCl,1 mM MgSO₄4;调节pH至7.4,经高压灭菌后室温保存。
1 M Na2CO3;室温保存。 - 制备 Z 缓冲液/β-巯基乙醇。使用前,在 Z 缓冲液中加入终体积分数为 0.27% 的 β-巯基乙醇,混匀后使用 700 µl 每样品。配制Z缓冲液/ONPG溶液。使用前将ONPG(邻硝基苯基-β-D-半乳糖苷)以4 mg/ml浓度和β-巯基乙醇以0.27%(v/v)浓度加入Z缓冲液中混合配制,备用 160 µl 每样本
- 制备含有 100 mM Na 的 Z 缓冲液2HPO4,40 mM NaH2PO4,10 mM KCl,1 mM MgSO₄4;调节pH至7.4,经高压灭菌后室温保存。
- 使用单个菌落接种 5 ml 缺乏亮氨酸和色氨酸的最低 SD 培养基(以维持对诱饵和目标质粒的选择压力),并在 30°C 下培养 30°C 在250 rpm条件下振荡孵育16-18小时。
注意:对共转化了相同诱饵质粒和靶质粒的五个独立菌落进行检测。 - 将适量的过夜培养物转移至10 ml新鲜SD培养基中,以获得指定的OD值600 = 0.2 - 0.3。于 30 °C 以250 rpm振荡培养,直至细胞进入对数中期(OD600 = 0.5 - 0.6).
- 将0.5 ml酵母培养物转移至1.5 ml离心管中,在室温下以14,000 × g离心2分钟。记录确切的OD值600 收集细胞时,将沉淀重悬于 100µl Z缓冲液;这将产生5倍的浓缩因子。
- 将试管置于液氮中约 1 分钟(操作液氮时应小心谨慎;务必佩戴厚手套和护目镜),然后放入 37 °C 37℃水浴中孵育3分钟以融化。重复此冻融循环两次,以确保细胞充分裂解。
- 设置一个空白管 100 µl Z缓冲液
- 添加 700 µl Z缓冲液/β-巯基乙醇 160 µl 将Z缓冲液/ONPG加入样品管和空白管中;启动计时器,并置于 30 °C 培养箱
- 定期检查是否出现黄色。添加 400 µl 1 M Na2CO3 以终止显色反应,并记录所用时间(单位:分钟)。携带阳性对照质粒(pVA3 + pTD1)共转化的酵母Y190菌株将在60分钟内变为黄色。
注意:较弱的诱饵:靶标相互作用可能需要数小时才能产生阳性黄色信号。为获得最佳结果,应使用新鲜共转化的菌落。 即,于 30 °C 4至5天,直径约2毫米。 - 在室温下以14,000 × g离心5分钟,沉淀细胞碎片,然后将上清液转移至洁净的比色皿中。
- 使用分光光度计,在 420 nm 处测定吸光度(A420样品相对于空白的值(应在 0.02 - 1.0 之间)。
- 计算β-半乳糖苷酶活性单位,其中1个单位定义为能够水解 1 µmol 根据以下公式计算每个细胞每分钟将ONPG转化为邻硝基苯酚和D-半乳糖的量:
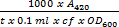 β-半乳糖苷酶单位
其中:t:孵育 elapsed time(单位:分钟);cf:步骤 1.4.8 中的浓缩因子; 即,cf = 5;OD600:当细胞被收获时。
- 配制以下缓冲液:
2. 哺乳动物细胞系中的蛋白质表达
- 哺乳动物细胞转染
- 配制以下培养基和缓冲液:
- 通过将DMEM与4.5 g/L葡萄糖、10% v/v胎牛血清和2 mM L-谷氨酰胺混合配制培养基;经0.22 μm滤膜过滤除菌 0.2 µm 过滤并储存于 4 °C.
- 配制2× HEPES缓冲盐溶液(2× HBS),成分为280 mM NaCl、10 mM KCl、1.5 mM Na2HPO4,12 mM 葡萄糖,50 mM Hepes;调节pH至7.05,经滤膜除菌 0.2 µm 过滤并在 -20 °C. 配制 2.5 M CaCl₂2. 通过一个无菌过滤器进行灭菌 0.2 µm 过滤并在 -20 °C.
- 转染前一天,接种 1 - 2 x 10⁶ 在100 mm培养皿中接种HEK293细胞,使其在次日达到60-70%汇合度。于37°C、5% CO₂培养箱中培养16-18小时。 37 °C 在含5% CO₂的湿润培养箱中2.
- 转染当天,弃去旧培养基,加入10 ml新鲜生长培养基培养细胞。
注意:转染期间培养基中 omit 抗生素,因为它们可能会增加细胞死亡。 - 稀释 24 µg 质粒DNA(共转染时,两种质粒的摩尔比相等)以及 60 µl 2.5 M CaCl2 在 600 µl 总体积(用无菌去离子水配制)2O)加入1.5 ml离心管中;涡旋混匀。
注意:为了获得最高的转染效率,质粒 DNA 应具有最高纯度, 即,具有 Abs260/摘要280 比例 = ~1.8。 - 将质粒DNA/氯化钙溶液逐滴加入含有50 ml培养基的50 ml离心管中 600 µl 在持续剧烈涡旋混合的同时,加入2倍体积的HBS。室温孵育20分钟,以形成磷酸钙/质粒DNA复合物。
- 孵育20分钟后,短暂涡旋混匀,然后将溶液逐滴加入细胞中,确保覆盖100 mm培养皿的整个表面。
- 将细胞置于培养箱中孵育 37 °C 在5% CO₂中2约6小时后更换培养基,然后放回培养箱中。
- 转染后24小时,于室温下以1,000 × g离心3分钟收集细胞,弃去上清液。细胞沉淀可保存于-80 °C 直到需要时
注意:转染后 24 - 72 小时通常为表达高峰。
- 配制以下培养基和缓冲液:
- 细胞匀浆化
- 配制以下缓冲液:
- 通过混合 150 mM NaCl 和 20 mM Tris 配制 Co-IP 匀浆缓冲液;调节 pH 至 7.4,并于 4 °C 保存 4 °C.
- 配制交联匀浆缓冲液:混合 5 mM Hepes 和 0.3 M 蔗糖;调节 pH 至 7.4,并于 4 °C 保存 4 °C (使用前过滤以去除任何不溶物)。使用前添加蛋白酶抑制剂。
- 添加 250 µl 425 - 600 微米的玻璃珠置于 1.5 ml 离心管中,洗涤 500 µl 加入匀浆缓冲液。短暂离心(1,000 × g,5 秒)使玻璃珠沉淀,弃上清液。重复洗涤步骤一次。
- 将细胞沉淀(来自步骤 2.1.8)重悬于 500 µl 加入冰冷的匀浆缓冲液,然后将细胞悬液转移至含有玻璃珠的离心管中。
- 在冰上使用连接1 ml注射器的细针(23 G,0.6 × 30 mm)反复吹打细胞20次以进行匀浆。保持管盖闭合,将针头刺入管盖并用力将细胞悬液通过玻璃珠反复吹打分散。
- 1,500 × g 离心 10 分钟,温度设为 4 °C 去除细胞核和未破裂的细胞,弃去沉淀。保留上清液(即核后组分),并根据需要直接进行免疫共沉淀或交联实验。
- 配制以下缓冲液:
3. 体外 生化方法
- 共免疫沉淀
- 配制以下缓冲液:
- 按照2.2.1.1节所述配制Co-IP匀浆缓冲液。通过混合20 mM Tris、150 mM NaCl、0.5% (w/v) CHAPS和2 mM二硫苏糖醇(可选;可加入二硫苏糖醇以减少因空气氧化而形成的蛋白质聚集体)配制IP缓冲液;调节pH至7.4,并于 4 °C.
- 配制含2% w/v CHAPS的co-IP匀浆缓冲液;储存于 4 °C.
- 通过混合60 mM Tris、2% w/v SDS、10% v/v甘油、5 mM EDTA、0.01% w/v溴酚蓝和2% v/v β-巯基乙醇(可选)制备蛋白上样缓冲液;调节pH至6.8,室温保存。
- 从一个汇合的100 mm培养皿(约8 x 10⁶个细胞)中匀浆细胞6 细胞(如HEK293细胞,使用血细胞计数板计数),具体方法见第2.2节。
- 用0.5% CHAPS(使用2%储备液)溶解核后亚细胞组分,并在≥2小时的孵育时间内 4 °C 持续混匀。在20,000 × g下离心10分钟 4 °C 离心以沉淀不溶性物质,并弃去沉淀。保留上清液,称为细胞裂解液。
注意:添加去垢剂并去除不溶性物质对于最大限度减少非特异性结合至关重要。中等强度的去垢剂, 例如CHAPS 或 Triton X-100,浓度为 0.2 - 1%,是最常用的。 - 准备两个独立的 1.5 ml 离心管,每管加入约20 µl (根据IgG结合能力)每毫升Protein-A或Protein-G琼脂糖(或Sepharose)凝胶珠使用6 mg。用 200 µl IP缓冲液
注意:根据用于制备免疫沉淀抗体的动物物种,选择合适的免疫球蛋白结合树脂。与 Protein-A 相比,Protein-G 能结合更广泛的免疫球蛋白亚型。 - 通过在 1,500 x g 条件下离心 2 分钟回收珠子 4 °C再用 IP 缓冲液洗涤一次,然后将磁珠重悬于 200 µl IP缓冲液
- 添加 1 µg (5 ng/µl) 分别加入含 Protein-A/G 的两支试管中,其中一支加入免疫沉淀抗体,另一支加入非免疫 IgG(作为阴性对照)。在 ≥2 小时的条件下孵育 4 °C 持续混匀。
注意:使用与免疫沉淀抗体相同动物种属产生的非免疫IgG时,始终需进行阴性对照处理。 - 通过在1,500 × g下离心2分钟回收珠子 4 °C 用移液器小心弃去上清液。
- 转移 200 µl 将细胞裂解液(来自步骤3.1.3)分别加入含抗体和Protein-A/G珠的两支管中。在≥2小时的条件下孵育 4 °C 持续混匀以促进抗原-抗体结合。
- 回收磁珠并用 200 µl IP缓冲液;在 4 °C 混匀后回收磁珠,并再清洗两次(避免多次清洗,以免降低特异性与非特异性结合)。用移液器小心吸弃上清液。
- 添加 30 µl 加入蛋白上样缓冲液以洗脱免疫沉淀的蛋白质。在1,500 x g离心2分钟,4°C 4 °C弃去珠子,保留含有洗脱的共免疫沉淀样品的上清液。
- 为验证蛋白X沉淀是否成功,加载少量样品(1/10)th, 3 µl将共免疫沉淀样品在SDS-PAGE凝胶上进行电泳,以便通过免疫印迹分析17 使用针对蛋白X的特异性抗体进行孵育。请保留一份细胞裂解液 aliquot,用于验证样本中蛋白X的表达情况。
- 为检测共沉淀的蛋白质Y的存在,将剩余部分(9/10)上样th, 27 µl将共免疫沉淀样品在另一块SDS-PAGE凝胶上电泳,用于免疫印迹分析17 使用针对蛋白Y的特异性抗体进行孵育。请保留一份细胞裂解液 aliquot,用于验证样本中蛋白Y的表达情况。
- 配制以下缓冲液:
- 化学交联
- 配制以下缓冲液:
- 如2.2.1.1节所述,使用交联匀浆缓冲液
- 通过混合以下成分制备5×蛋白质上样缓冲液:300 mM Tris、10% w/v SDS、50% v/v 甘油、25 mM EDTA、0.05% w/v 溴酚蓝、10% v/v β-巯基乙醇(可选);调节pH至6.8,室温保存;使用前加热 50 °C 使用前
- 从一个汇合的100 mm培养皿(约8 x 10⁶个细胞)中匀浆细胞6 细胞(如HEK293细胞,使用血细胞计数板计数),具体方法见第2.2节。
注意:使用蔗糖(0.3 M)配制等渗缓冲液。盐, 例如,可根据感兴趣的寡聚蛋白复合物的不同,使用120 - 150 mM的NaCl或KCl替代。 - 将核后亚细胞组分在 20,000 x g 离心 10 分钟,温度为 4 °C 离心以沉淀蛋白质聚集体,并保留上清液。取八份等量样品。 20 µl 每个(通常约 ~20 µg 将蛋白质分别加入多个0.5 ml离心管中。
- 向所有样品中加入0.0025% v/v戊二醛并开始计时。让8个样品分别在室温下与戊二醛反应:0、2、5、10、15、20、30、60分钟。
注意:戊二醛含有两个可与游离胺基反应的醛基。应避免使用含伯氨基的pH缓冲液或其他物质,因其会淬灭戊二醛的反应。 - 在指定时间用2% v/v 肼终止戊二醛反应,并加入 5 µl 加入5倍体积的蛋白上样缓冲液以变性蛋白质。
- 进行 SDS-PAGE 和免疫印迹分析17.
- 配制以下缓冲液:
结果
在酵母双杂交系统中,首先通过在缺乏(色氨酸、亮氨酸和)组氨酸的培养基中进行酵母生长筛选来初步检测诱饵与猎物的相互作用,随后通过β-半乳糖苷酶活性检测进行评估图1)。在缺乏组氨酸的培养基中培养的酵母,其生长速度较慢,且生长情况依赖于诱饵蛋白与猎物蛋白相互作用的强度。β-半乳糖苷酶(β-Gal)检测在仅缺乏色氨酸和亮氨酸的培养基中培养的酵母中进行,酵母可生长于固体支持物(琼脂平板)或液体培养基中,后者可获得定量结果。我们已成功利用酵母双杂交系统(Y2H)鉴定了RyR2内部的结构域-结构域相互作用以及新的蛋白互作伙伴。2-4,12,21,22例如,我们筛选了一系列覆盖RyR2肽序列全长的重叠片段,以检测其与N端片段(AD4L:RyR2残基1 - 906与GAL4 AD融合)的相互作用3菌落提滤纸β-半乳糖苷酶检测仅对BT4L:AD4L组合显示出明显的蓝色酵母菌落图2A),表明AD4L可与自身相互作用,即与BT4L构建体(RyR2残基1-906与GAL4 DNA-BD融合)发生相互作用。BT8:AD4L配对组检测到浅蓝色菌落,提示AD4L与极端C末端结构域(BT8)之间存在较弱的次级相互作用,而与其他任何构建体共转化的酵母菌落仍为白色,表明诱饵蛋白与猎物蛋白之间无相互作用。通过液体β-半乳糖苷酶(β-Gal)检测获得的定量结果(图2B),表明BT4L与AD4L之间的相互作用较强,其强度相当于已知的p53蛋白(pVA3)与SV40大T抗原(pTD1)之间的结合,而BT8与AD4L的相互作用则明显较弱(<10%(与对照组相比)。
我们常规进行共免疫沉淀实验(图3在哺乳动物细胞系(HEK293)中进行瞬时表达后,作为独立的生物化学检测方法,以验证酵母双杂交(Y2H)实验结果2-4,12-14,21-24为验证RyR2 N端的自身相互作用,采用磷酸钙沉淀法将分别编码RyR2第1–906位氨基酸并融合cMyc或HA肽段表位(分别为BT4L和AD4L)的两种不同质粒共转染至HEK293细胞中。3将细胞匀浆后的去核组分用去垢剂CHAPS溶解,并通过离心去除不溶物,从而制备细胞裂解液。细胞裂解液经还原剂二硫苏糖醇处理后,与Ab孵育。HA 以及 Protein-A Sepharose 珠用于免疫共沉淀 HA 标签的 AD4L。用含 SDS 的缓冲液洗脱的 Co-IP 样品被分别上样到两块独立的 SDS-PAGE 凝胶中(1/10)th 和 9/10th 分装后通过免疫印迹法(使用Ab)进行分析HA 和 AbcMyc,分别。通过抗体对AD4L(约100 kDa)进行直接免疫沉淀成功HA 通过免疫印迹验证,但在使用非免疫兔IgG的阴性对照中未检测到图 4A)。重要的是,仅在抗体中回收到带cMyc标签的BT4L(约100 kDa)HA IP,而在未免疫沉淀AD4L的阴性对照中则无图4B).
Y2H 和共免疫沉淀(co-IP)实验一致表明 RyR2 N 末端存在自相互作用,但这些方法无法揭示 N 末端结构域的寡聚化状态,即其是否仅形成二聚体或更高阶的复合物。需要注意的是,由于 SDS 和加热导致蛋白质变性,破坏了蛋白质-蛋白质相互作用,因此复合物会解离,SDS-PAGE 只能检测到其组成的亚基。为克服这一限制,我们采用交联法(图 5),该方法可化学性地稳定连接预先存在的蛋白质寡聚体,随后通过 SDS-PAGE 按分子大小进行分离,从而检测其分子质量2-5。例如,对表达 cMyc-BT4L 的 HEK293 细胞匀浆液,在加入还原剂二硫苏糖醇(dithiothreitol)处理后,用戊二醛进行交联反应,并通过 SDS-PAGE 和免疫印迹(使用 AbcMyc 抗体)进行分析(图 6)。除单体(约 100 kDa)外,还以时间依赖的方式检测到一条约 400 kDa 的高分子质量蛋白条带,表明 RyR2 N 末端可形成四聚体3。值得注意的是,四聚体是主要的寡聚化形式,仅观察到极少量的二聚体和三聚体条带。为确定其表观分子质量,BT4L 寡聚体通过 4 - 15% 的梯度 SDS-PAGE 凝胶进行分离3。我们使用分子质量范围为 30 - 460 kDa 的蛋白质标准品绘制分子质量与凝胶滞留关系的标准曲线,计算得出该寡聚体的表观分子质量为 358 ± 15 kDa(n = 4)。该表观分子质量与 BT4L 四聚体呈闭合环状排列的结构相符,而非线性排列,这也与天然 RyR2 通道中四个亚基的空间排布预期一致。

图1. 酵母双杂交流程图。 将含有诱饵和靶标质粒共转化的酵母,在缺乏组氨酸的培养基中进行筛选生长,和/或通过β-半乳糖苷酶(β-Gal)酶活性检测进行分析。请点击此处查看该图的放大版本。
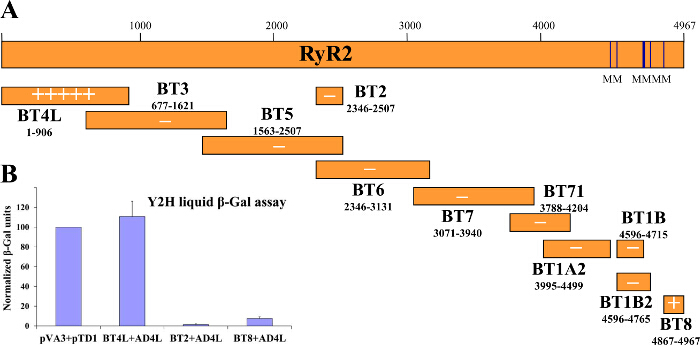
图2. 酵母双杂交实验提示RyR2 N端结构域存在自相互作用。(A) 示意图显示在酵母双杂交系统中,用于检测与RyR2 N端AD4L(捕获物)构建体相互作用的一系列人源RyR2重叠蛋白片段(诱饵)。通过菌落提升滤膜法β-半乳糖苷酶检测获得的定性结果以“+”的个数表示相互作用强度,“-”表示无相互作用。(B) 定量液体β-半乳糖苷酶检测结果,已相对于阳性对照(pVA3编码GAL4 DNA结合域与p53蛋白的融合蛋白;pTD1编码GAL4激活域与SV40大T抗原的融合蛋白)进行归一化处理。改编自3。请点击此处查看该图的放大版本。
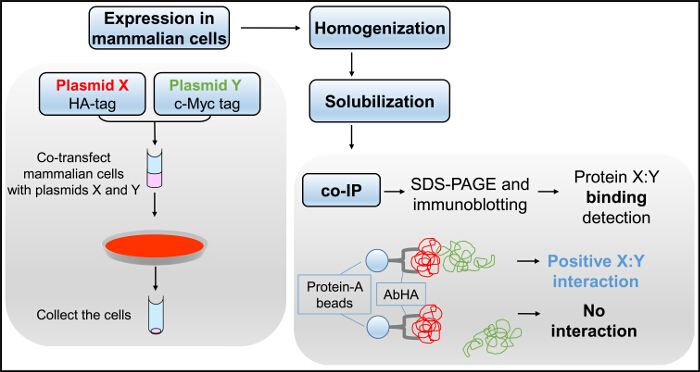
图3. 共免疫沉淀流程图。将质粒X和质粒Y共转染至哺乳动物细胞中,随后对细胞进行匀浆和去垢剂溶解,制备用于共免疫沉淀实验的细胞裂解液,再进行SDS-PAGE电泳及免疫印迹分析。请点击此处查看该图的放大版本。
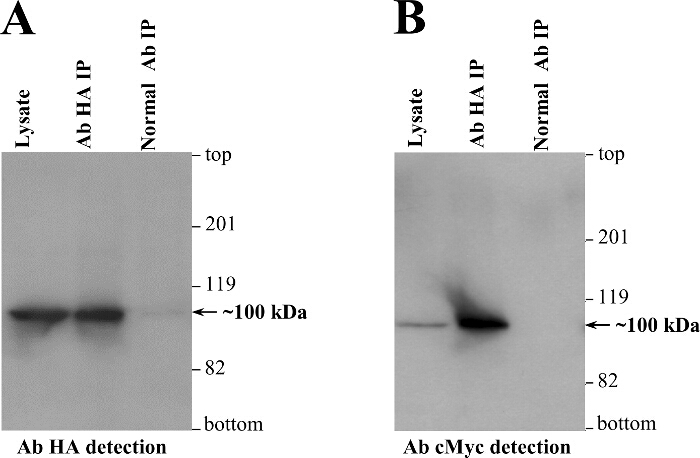
图4. Co-IP 表明哺乳动物细胞中 RyR2 氨基末端结构域的自身相互作用 HEK293 细胞被共转染以瞬时共表达带 cMyc 标签(BT4L)和 HA 标签(AD4L)的 RyR2 氨基末端结构域(残基 1 - 906)。使用抗体对 AD4L 进行免疫沉淀HA 来自经CHAPS溶解并用二硫苏糖醇处理的HEK293细胞裂解液,而阴性对照则使用非免疫兔IgG进行共免疫沉淀实验。免疫沉淀的蛋白质在加热条件下处理 85 °C 5分钟,然后在20 mA电流下电泳3小时,分别上样于6% SDS-PAGE凝胶(上样量为1/10)th 或 9/10th IP 样品的蛋白在80 V电压下转移2小时至聚偏二氟乙烯膜,随后使用(1:1,000稀释)Ab进行免疫印迹分析。HA(A) 或 AbcMyc (B),随后加入辣根过氧化物酶标记的抗小鼠 IgG 抗体(1:10,000 稀释),并采用增强型化学发光法检测(曝光 1 分钟)。取一份细胞裂解液,1/50 体积th IP 样品处理体积的相应比例也包含在内,作为分子质量标准。改编自3. 请点击此处以查看此图的放大版本。
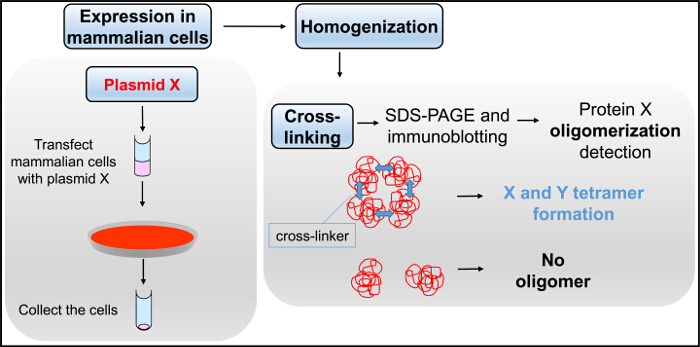
图 5. 交联实验流程图。 转染质粒X的哺乳动物细胞经匀浆处理后,在交联实验中与戊二醛反应,随后进行SDS-PAGE及免疫印迹分析。请点击此处查看该图的放大版本。
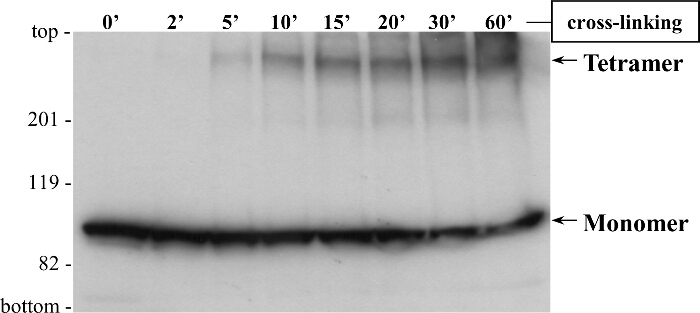
图6. 交联实验表明RyR2 N端结构域形成四聚体。将HEK293细胞转染以瞬时表达带cMyc标签(BT4L)的RyR2 N端结构域(残基1–906)。细胞匀浆经还原剂二硫苏糖醇处理后,与戊二醛在指定时间点孵育。样品在85 °C加热5分钟,随后在6% SDS-PAGE凝胶中以20 mA电流电泳3小时进行分离。蛋白质经80 V、2小时转印至聚偏二氟乙烯膜后,使用AbcMyc(1:1,000稀释)进行免疫印迹分析,继而用辣根过氧化物酶标记的抗小鼠IgG(1:10,000稀释)孵育,并通过增强型化学发光法检测(曝光1分钟)。箭头所示为单体(M:约100 kDa)和四聚体(T)形式。改编自3。请点击此处查看该图的放大版本。
讨论
蛋白质同源寡聚体的形成是一种基本的生物学过程,可调控转录因子、酶、离子通道和受体的活性25,26。重要的是,蛋白质寡聚化也具有病理学意义,包括神经退行性疾病和致心律失常性心脏病4,27。本文所述的方法用于鉴定介导蛋白质自身结合和寡聚化的结构域-结构域相互作用。下文将指出各实验方案中的关键步骤,并讨论重要的注意事项、局限性及故障排除方法。
由于酵母双杂交(Y2H)系统具有相对较高的通量筛选能力、操作简便以及结果高度可重复等优点,可首先用于筛选潜在的相互作用蛋白伙伴。Y2H实验在微生物学实验室中进行,仅需标准的培养设备(如平板或摇床培养箱)和基本的生物安全防护设施。高效酵母转化的关键在于使用 freshly prepared competent cells(步骤1.1.8),而在进行β-半乳糖苷酶(β-Gal)检测时,为获得最佳结果,应使用新鲜培养的酵母菌落(不超过5天)(步骤1.2.3)。目前已有基于GAL4以外的转录因子和/或额外或替代性报告基因的Y2H系统,因此诱饵(bait)和猎物(prey)质粒必须与相应的Y2H菌株相匹配。
为了抑制HIS3报告基因的任何组成型表达,某些菌株应在含有3-氨基-1,2,4-三唑(3-amino-1,2,4-triazole)的培养基中培养,该物质是HIS3蛋白的竞争性抑制剂7,8。诱饵蛋白和靶蛋白融合蛋白的表达应通过免疫印迹法进行验证17。如果诱饵/猎物融合蛋白对酵母具有毒性,可通过将基因克隆至不同载体中以降低蛋白表达水平,这些载体中诱饵/猎物的表达由不同的启动子驱动。此外,必须确保诱饵/猎物融合蛋白本身不具有自主激活报告基因的能力。若发生自主激活报告基因的情况,可通过修饰构建体以删除引起该活性的区域,或交换两个被检测蛋白的GAL4 DNA结合域(DNA-BD)和激活域(AD)融合方式来解决。此外,应尽量避免在诱饵/猎物构建体中包含跨膜结构域,因为它们可能导致融合蛋白在细胞内膜区室中发生错误折叠或错误定位。事实上,酵母双杂交系统的主要缺点在于,诱饵蛋白和靶蛋白定位于酵母细胞核内,偏离了其生理状态下的亚细胞定位,并可能缺乏特定的翻译后修饰,从而导致假阳性或假阴性相互作用结果6-9。
在构象、翻译后修饰和亚细胞定位方面,哺乳动物异源表达系统更适合研究哺乳动物的整合膜蛋白。最常用的细胞转染方法之一是磷酸钙沉淀法,主要原因是其所需的设备和试剂最少11,15。其他方法,如电穿孔、脂质体、阳离子脂质和聚合物,可能根据所使用的细胞系和质粒构建体不同而获得更高的转染效率。通常,影响转染效率的主要因素是质粒DNA的质量以及细胞的健康状况/活力。当使用纯度最高的质粒DNA(A260/A280吸光度比值约为1.8)和处于活跃分裂期的细胞时,可获得最佳结果。因此,细胞转染时融合度不应超过60–70%(步骤2.1.2),因为细胞摄取外源DNA的能力与暴露于培养基中的细胞表面积相关11。此外,不建议在转染期间(步骤2.1.3)于培养基中添加抗生素,因其可能导致细胞死亡增加15。
对于磷酸钙沉淀法而言,2× HBS 溶液的仔细配制和精确调节 pH 至 7.05(步骤 2.1.1),以及通过剧烈混匀充分形成质粒 DNA/钙/磷酸盐复合物(步骤 2.1.5),是实现高效转染的关键步骤。通常情况下,瞬时转染后的蛋白表达在 24–72 小时内达到峰值。
细胞收获后,后续操作必须在4°C下进行,以尽量减少蛋白酶活性,建议添加蛋白酶抑制剂。细胞匀浆后应进行离心步骤以去除细胞核,因为染色体DNA可能增加溶液黏度并增强非特异性结合。因此,通常在等渗缓冲液(如0.3 M蔗糖或150 mM NaCl)中通过机械方法进行匀浆。一般而言,基于蔗糖的缓冲液有助于提高蛋白质稳定性并减少非天然蛋白质聚集的可能性,但由于蛋白质表面的优先水合作用,会促进静电蛋白-蛋白相互作用。相反,基于盐的缓冲液会影响蛋白质表面带电氨基酸侧链基团的净电荷,从而更倾向于疏水性相互作用28。
共免疫沉淀(Co-IP)是最常用于评估蛋白质-蛋白质相互作用的生化实验方法,尤其适用于天然组织来源的样本。其主要局限在于需要使用经过验证、适用于免疫沉淀和免疫印迹的高度特异性抗体。10,16,18因此,重组蛋白通常会带上一个肽段表位标签, 例如,流感病毒血凝素(YPYDVPDYA)或人源cMyc(EQKLISEEDL),这些标签均有市售的高亲和力特异性抗体。如需要,可将用于免疫沉淀的抗体通过化学方法偶联到Protein-A树脂上,以避免其在免疫印迹阶段被洗脱和检测,从而防止干扰共沉淀蛋白的检测16;为实现这一目的,我们已成功使用化学交联剂3,3'-dithiobis(sulfosuccinimidylpropionate)24必须在免疫沉淀缓冲液中加入适当的去垢剂,并通过离心去除匀浆细胞中的不溶性物质,以尽量减少非特异性结合(步骤 3.1.3)。去垢剂的选择及其浓度至关重要:强效去垢剂和/或高浓度虽可显著降低非特异性结合,但可能破坏 X:Y 蛋白相互作用;而低浓度或温和型去垢剂虽可能保留较弱的相互作用,却可能导致过度的非特异性结合。因此,优先选用中等强度的去垢剂。 例如,0.5 - 1% 浓度的 Triton X-100。为进一步降低非特异性结合,可加入中性蛋白(例如, 可在免疫沉淀缓冲液中加入牛血清白蛋白(100 µg/ml),和/或使用蛋白A树脂单独预先孵育细胞裂解液以进行预清除。针对所检测的X:Y蛋白对,应优化洗涤次数,通常用免疫沉淀缓冲液洗涤3次,每次10分钟(步骤3.1.9)。无论如何,均应平行处理以非免疫性IgG作为免疫沉淀抗体的共免疫沉淀样品,作为阴性对照(步骤3.1.6)。
化学交联的主要优势在于能够揭示蛋白质同源寡聚体的化学计量组成。戊二醛是一种常用的交联剂,因其无需特殊设备,且可在相互作用的蛋白质之间形成热稳定和化学稳定的交联键19,20。由于含有游离氨基的化合物会淬灭化学反应,因此应在检测缓冲液(步骤 3.2.1)中避免使用此类物质。戊二醛的浓度和反应时间(步骤 3.2.4)应针对目标寡聚蛋白质复合物进行优化。该技术的主要缺点在于其化学反应的非特异性,尤其是在全细胞样品中进行时,可能产生缺乏生物学意义的人工蛋白质聚集体。
替代方法 体内 (例如,荧光共振能量转移,双分子荧光或发光互补)和 体外 技术(例如,可用于表征蛋白质自缔合并评估寡聚化化学计量比的尺寸排阻色谱、分析型超速离心、等温滴定 calorimetry) 29,30每种方法都有其各自的优缺点,其适用性可能取决于蛋白质纯化/稳定性以及仪器/试剂的可获得性,因而更适合于特定蛋白质的研究。本文详细描述的三种互补方法——酵母双杂交(Y2H)、免疫共沉淀(co-IP)和交联技术——已被联合使用,为RyR2在分离状态及活细胞内形成同源寡聚体提供了有力证据。
披露
作者声明无任何利益冲突。
致谢
本工作获得了英国心脏基金会授予SZ的博士后奖学金(FS/08/063和FS/15/30/31494)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 第一部分 酵母双杂交 | |||
| 培养皿恒温箱 | Hereaus | B6120 | 使用温度为 30 °C |
| 轨道摇床恒温箱 | New Brunswick Scientific | INNOVA 4300 | 使用温度为 30 °C,振荡速度为 230 - 250 rpm |
| 分光光度计 | Perkin Elmer | Lambda Bio+ | 用于测定酵母培养物的 OD600;用于液体 β-半乳糖苷酶实验中 420 nm 处的吸光度测定 |
| Matchmaker 双杂交系统 2 试剂盒 | Takara Clontech | K1604-1 | 包含诱饵载体 pGBKT7、猎物载体 pACT2 和酵母菌株 Y190 |
| 酵母氮源基础培养基 | Sigma-Aldrich | Y0626 | 用于配制最低限度 SD 生长培养基 |
| 缺乏亮氨酸和色氨酸的缺失补充剂 | Sigma-Aldrich | Y0750 | 用于配制最低限度 SD 生长培养基 |
| 缺乏亮氨酸、色氨酸和组氨酸的缺失补充剂 | Sigma-Aldrich | Y2001 | 用于配制最低限度 SD 生长培养基 |
| 鲱鱼睾丸载体 DNA | Takara Clontech | 630440 | 用于酵母转化 |
| Whatman 5 号滤纸 | Sigma-Aldrich | WHA1005070 | 用于菌落印迹滤纸 β-半乳糖苷酶实验 |
| X-Gal(5-溴-4-氯-3-吲哚基-β-D-半乳糖吡喃糖苷) | Sigma-Aldrich | B4252 | 用于菌落印迹滤纸 β-半乳糖苷酶实验 |
| ONPG(邻硝基苯基-β-D-半乳糖吡喃糖苷) | Sigma-Aldrich | N1127 | 用于液体 β-半乳糖苷酶实验 |
| 第二部分 哺乳动物细胞系中的蛋白表达 | |||
| HEK293 细胞系 | ATCC | ATCC® CRL-1573™ | |
| 加湿恒温培养箱(5% CO2, 37 °C) | SANYO | MCO-18AIC | 用于哺乳动物细胞培养 |
| DMEM(杜尔贝科改良伊格尔培养基) | Invitrogen (ThermoFisher) | 41966 | 用于配制哺乳动物细胞生长培养基 |
| 胎牛血清 | Invitrogen (ThermoFisher) | 10500 | 用于配制哺乳动物细胞生长培养基 |
| 玻璃珠 | Sigma-Aldrich | G8772 | 用于细胞匀浆 |
| 23 G 针头(0.6 x 30 mm) | BD Microlance | 300700 | 用于细胞匀浆 |
| 蛋白酶抑制剂混合物(Complete) | Roche | 11873508001 | 用于防止蛋白水解 |
| 第三部分 体外生化方法 | |||
| Mini-PROTEAN Tetra 电泳槽(SDS-PAGE 系统) | Bio-Rad | 1658000EDU | 用于聚丙烯酰胺凝胶电泳 |
| Trans-Blot SD(半干式转膜系统) | Bio-Rad | 1703940 | 用于电泳转膜 |
| 紧凑型 X 光胶片处理器 | Xograph | X4 | 用于免疫印迹实验 |
| 戊二醛 | Sigma-Aldrich | G5882 | 用于化学交联 |
| Protein-A Sepharose 微珠 | GE Healthcare Life Sciences | 17-5280-01 | 用于共免疫沉淀(co-IP)实验 |
| 抗 HA 抗体(Y-11 兔多克隆 IgG) | Santa Cruz Biotechnology | sc-805 | 用于共免疫沉淀(co-IP)实验 |
| 非免疫兔 IgG | Santa Cruz Biotechnology | sc-2027 | 用于共免疫沉淀(co-IP)实验 |
| 抗 cMyc 抗体(9E10 小鼠单克隆 IgG) | Santa Cruz Biotechnology | sc-40 | 用于免疫印迹 |
| 抗 HA 抗体(16B12 小鼠单克隆 IgG) | Covance | MMS-101P | 用于免疫印迹 |
| 抗小鼠 IgG-HRP | Santa Cruz Biotechnology | sc-2005 | 用于免疫印迹 |
| Hyperfilm ECL 胶片 | GE Healthcare Life Sciences | 28906836 | 用于免疫印迹 |
| ECL 蛋白质印迹底物 | Pierce (ThermoFisher) | 32106 | 用于免疫印迹 |
参考文献
- Seidel, M., Lai, F. A., Zissimopoulos, S. Structural and functional interactions within ryanodine receptor. Biochem Soc Trans. 43 (3), 377-383 (2015).
- Zissimopoulos, S., Marsh, J., Stannard, L., Seidel, M., Lai, F. A. Amino-terminus oligomerisation is conserved in intracellular calcium release channels. Biochem J. 459 (2), 265-273 (2014).
- Zissimopoulos, S., et al. N-terminus oligomerization regulates the function of cardiac ryanodine receptors. J Cell Sci. 126 (Pt 21), 5042-5051 (2013).
- Seidel, M., Thomas, N. L., Williams, A. J., Lai, F. A., Zissimopoulos, S. Dantrolene rescues aberrant N-terminus inter-subunit interactions in mutant pro-arrhythmic cardiac ryanodine receptors. Cardiovasc Res. 105 (1), 118-128 (2015).
- Stewart, R., Zissimopoulos, S., Lai, F. Oligomerization of the cardiac ryanodine receptor C-terminal tail. Biochem J. 376, 795-799 (2003).
- Deane, C. M., Salwinski, L., Xenarios, I., Eisenberg, D. Protein interactions: two methods for assessment of the reliability of high throughput observations. Mol Cell Proteomics. 1 (5), 349-356 (2002).
- Fashena, S. J., Serebriiskii, I., Golemis, E. A. The continued evolution of two-hybrid screening approaches in yeast: how to outwit different preys with different baits. Gene. 250 (1-2), 1-14 (2000).
- Stynen, B., Tournu, H., Tavernier, J., Van Dijck, P. Diversity in genetic in vivo methods for protein-protein interaction studies: from the yeast two-hybrid system to the mammalian split-luciferase system. Microbiol Mol Biol Rev. 76 (2), 331-382 (2012).
- Yang, M., Wu, Z., Fields, S. Protein-peptide interactions analyzed with the yeast two-hybrid system. Nucleic Acids Res. 23 (7), 1152-1156 (1995).
- Elion, E. A. Chapter 8, Detection of protein-protein interactions by coprecipitation. Curr Protoc Immunol. , (2007).
- Kingston, R. E., Chen, C. A., Rose, J. K. Chapter 9, Calcium phosphate transfection. Curr Protoc Mol Biol. , (2003).
- Lam, A. K., Galione, A., Lai, F. A., Zissimopoulos, S. Hax-1 identified as a two-pore channel (TPC)-binding protein. FEBS letters. , (2013).
- Zissimopoulos, S., Lai, F. Interaction of FKBP12.6 with the cardiac ryanodine receptor C-terminal domain. J Biol Chem. 280, 5475-5485 (2005).
- Zissimopoulos, S., Thomas, N. L., Jamaluddin, W. W., Lai, F. A. FKBP12.6 binding of ryanodine receptors carrying mutations associated with arrhythmogenic cardiac disease. Biochem J. 419 (2), 273-278 (2009).
- Jordan, M., Wurm, F. Transfection of adherent and suspended cells by calcium phosphate. Methods. 33 (2), 136-143 (2004).
- Kaboord, B., Perr, M. Isolation of proteins and protein complexes by immunoprecipitation. Methods Mol Biol. 424, 349-364 (2008).
- Sambrook, J., Fritsch, E. F., Maniatis, T. Molecular cloning: a laboratory manual. , 2nd, Cold Spring Harbor Laboratory Press. (1989).
- Yang, W., Steen, H., Freeman, M. R. Proteomic approaches to the analysis of multiprotein signaling complexes. Proteomics. 8 (4), 832-851 (2008).
- Migneault, I., Dartiguenave, C., Bertrand, M. J., Waldron, K. C. Glutaraldehyde: behavior in aqueous solution, reaction with proteins, and application to enzyme crosslinking. Biotechniques. 37 (5), 790-796 (2004).
- Wine, Y., Cohen-Hadar, N., Freeman, A., Frolow, F. Elucidation of the mechanism and end products of glutaraldehyde crosslinking reaction by X-ray structure analysis. Biotechnol Bioeng. 98 (3), 711-718 (2007).
- Zissimopoulos, S., Lai, F. Central domain of the human cardiac muscle ryanodine receptor does not mediate interaction with FKBP12.6. Cell Biochem Biophys. 43, 203-220 (2005).
- Zissimopoulos, S., West, D., Williams, A., Lai, F. Ryanodine receptor interaction with the SNARE-associated protein snapin. J Cell Sci. 119, 2386-2397 (2006).
- Zissimopoulos, S., Docrat, N., Lai, F. Redox sensitivity of the ryanodine receptor interaction with FK506-binding protein. J Biol Chem. 282, 6976-6983 (2007).
- Zissimopoulos, S., Seifan, S., Maxwell, C., Williams, A. J., Lai, F. A. Disparities in the association of the ryanodine receptor and the FK506-binding proteins in mammalian heart. J Cell Sci. 125. 125 (Pt 7), 1759-1769 (2012).
- Ali, M. H., Imperiali, B. Protein oligomerization: how and why. Bioorg Med Chem. 13 (17), 5013-5020 (2005).
- Hashimoto, K., Panchenko, A. R. Mechanisms of protein oligomerization, the critical role of insertions and deletions in maintaining different oligomeric states. Proc Natl Acad Sci U S A. 107 (47), 20352-20357 (2010).
- Haass, C., Selkoe, D. J. Soluble protein oligomers in neurodegeneration: lessons from the Alzheimer's amyloid beta-peptide. Nat Rev Mol Cell Biol. 8 (2), 101-112 (2007).
- Chi, E. Y., Krishnan, S., Randolph, T. W., Carpenter, J. F. Physical stability of proteins in aqueous solution: mechanism and driving forces in nonnative protein aggregation. Pharm Res. 20 (9), 1325-1336 (2003).
- Gell, D. A., Grant, R. P., Mackay, J. P. The detection and quantitation of protein oligomerization. Adv Exp Med Biol. 747, 19-41 (2012).
- Kaczor, A. A., Selent, J. Oligomerization of G protein-coupled receptors: biochemical and biophysical methods. Curr Med Chem. 18 (30), 4606-4634 (2011).
重印与许可
