我们在此展示一种 体外 基于小麦胚芽表达系统合成的YFP标记Gag蛋白,通过可视化分析HIV-1 Gag与脂质膜之间的相互作用的膜结合实验 体外 翻译系统和通过电形成技术制备的GUVs。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
HIV-1 结构蛋白 Pr55Gag (或 Gag)在病毒组装过程中会结合到细胞的质膜上。Gag 与膜的结合是病毒颗粒形成的关键步骤,因为 Gag 膜结合功能的缺陷会导致病毒颗粒生成严重受损。为了深入理解 Gag 与脂质膜相互作用的分子机制, 体外 基于核磁共振、蛋白质足迹法、表面等离子共振、脂质体漂浮离心或荧光脂质微珠结合的方法已被相继开发。然而,这些方法中的每一种 体外 方法有其局限性。为了克服其中一些局限性,并为先前建立的方法提供一种互补的途径,我们开发了一种 体外 HIV-1 Gag 与脂质膜相互作用发生的检测实验 "类细胞" 环境。在该实验中,通过基于小麦胚芽的体外合成YFP标记的Gag,直观分析Gag与脂质膜的结合情况 体外 翻译系统及通过电形成技术制备的GUV。本文中,我们描述了获得肉豆蔻酰化全长Gag蛋白和检测Gag-GUV结合所必需的GUV膜的背景知识与实验方案,以及通过显微镜检测Gag-GUV结合的方法。
引言
人类免疫缺陷病毒1型(HIV-1)是一种包膜病毒,在大多数细胞类型中,其在质膜(PM)处组装并出芽。HIV-1病毒颗粒的组装由一种称为Pr55Gag(Gag)的55 kDa病毒核心蛋白驱动。Gag以一种前体多聚蛋白的形式合成,包含四个主要结构域:基质(matrix)、衣壳(capsid)、核衣壳(nucleocapsid)和p6,以及两个间隔肽SP1和SP2。在组装过程中,基质(MA)结构域负责将Gag靶向至组装位点,衣壳(CA)结构域介导Gag与Gag之间的相互作用,核衣壳(NC)结构域招募病毒基因组RNA,而p6则招募有助于病毒颗粒从质膜上切割释放的宿主因子。此外,Gag在其N端还会发生共翻译修饰,即添加一个14碳的脂肪酸(肉豆蔻酸)基团。
Gag与膜的结合是病毒组装的必要条件,因为膜结合功能缺陷的突变体无法产生病毒颗粒。我们及其他研究者已证实,Gag的膜结合由MA结构域内的双组分信号介导:其一是位于N端的肉豆蔻酰基团,可通过疏水作用与脂质双分子层相互作用;其二是MA结构域内被称为高度碱性区(HBR)的一簇碱性残基,可与质膜上的酸性脂质相互作用。1-4. 利用异位表达多磷酸肌醇5-磷酸酶IV(5ptaseIV)研究Gag-膜相互作用,该酶可催化质膜特异性酸性磷脂磷脂酰肌醇-(4,5)-二磷酸[PI(4,5)P2] 转化为细胞中的磷脂酰肌醇-4-磷酸,表明Gag-PM定位由PI(4,5)P介导23,5 。然而, 体外 旨在深入了解Gag与PI(4,5)P2相互作用机制细节的研究2 由于多种原因,这些相互作用的研究已被证明具有挑战性。例如,全长肉豆蔻酰化HIV-1 Gag蛋白的纯化在生化实验中存在技术困难,部分原因在于Gag在纯化过程中易于聚集。因此,在需要纯化Gag的研究中,常使用HIV-1 Gag的截短形式,如Myr-MA或Myr-MA-CA,或非肉豆蔻酰化形式例如核磁共振、蛋白质足迹法、表面等离子共振6-9)。或者,偶联的 体外 转录-翻译反应已在此前的其他生物化学研究中用于生产全长的肉豆蔻酰化HIV-1 Gag1,2通常在此系统中,编码Gag的质粒在真核细胞裂解液中进行转录和翻译。例如,兔网织红细胞裂解液)不含任何细胞膜和信使RNA,但含有转录和翻译所需的分子机制。反应完成后,将含有Gag的细胞裂解液与膜成分混合,以分析Gag与脂质的相互作用。除了制备全长肉豆蔻酰化Gag的简便性外,使用该方法的 体外 转录翻译系统具有一项优势,即Gag的合成及随后的膜结合反应发生于一种“类似真核细胞胞质”的环境中,该环境可能更接近生理条件。这一特性促进了相关研究的开展,这些研究证明了结合于MA结构域的RNA分子能够以竞争性方式调控Gag与酸性脂质的结合1,2,10-12然而,由于这些细胞裂解液中获得的Gag蛋白总量较低,因此必须使用放射性标记的氨基酸对蛋白进行代谢标记,才能实现其检测。
根据测量Gag-脂质相互作用的方法不同,已使用多种膜制备方式。每种方法均有其优势与局限性。大多数基于核磁共振(NMR)的检测需要使用短酰基链的水溶性脂质例如,C4-和C8-PI(4,5)P2)6,8尽管用于检测Gag与细胞中长链酰基脂质结合的NMR方法正在开发中,但迄今为止这些方法仅应用于肉豆蔻酰化或非肉豆蔻酰化的MA8,13或者,也可使用由具有天然长度酰基链的脂质制备的脂质体,应用于生化方法,如脂质体漂浮法或荧光脂质体微珠结合实验。2,3,10,14-16然而,这些实验中使用的脂质体直径较小,因此其膜具有较陡的正曲率。相比之下,在HIV-1感染细胞中病毒颗粒组装的早期阶段,Gag蛋白结合到质膜(PM)上,而质膜在Gag尺度上近乎平面,并在出芽过程中诱导负曲率的形成。因此,具有陡峭正曲率的脂质体膜可能并非研究Gag-脂质相互作用的理想双分子层模型。至于脂质体漂浮实验,另一个潜在的局限性在于:在离心过程中,Gag-脂质复合物暴露于高渗蔗糖梯度中,可能会影响实验结果。为了克服这些限制并提供一种互补的实验体系,近年来已发展出Gag蛋白与巨大单层囊泡(GUVs)结合的检测方法。GUVs是单层脂质双分子层囊泡,其直径可达数十微米,因此其膜曲率在Gag尺度上更接近质膜。此外,由于GUVs体积较大,可在光学显微镜下直接观察,因此在混合后,通过荧光标记的Gag蛋白与这些囊泡膜的结合情况可直接判定,无需对Gag-脂质复合物进行后续处理。
本文介绍了一种利用电形成法制备的大型单层囊泡(GUVs)研究HIV-1 Gag膜结合的实验方案。多种方法,如温和水化法、凝胶辅助水化法、微流控喷射法和电形成法17-22 已采用多种方法制备大型单层囊泡(GUVs)。本文所述方案主要采用电形成法,因其在含酸性脂质的GUVs制备中效率较高,且操作相对简便,无需昂贵设备。由于需要荧光标记以实现Gag蛋白的可视化,因此将黄色荧光蛋白(YFP)通过基因工程手段连接至Gag蛋白的C末端(Gag-YFP)。Gag-YFP蛋白通过以下方法获得: 体外 基于连续交换-连续流动(CECF)技术的小麦胚芽裂解物中的转录和翻译反应。在该技术中,通过透析机制实现反应抑制性副产物的去除以及反应底物和能量组分的持续供给。这些反应使用一种质粒,该质粒在T7启动子控制下编码Gag-YFP。值得注意的是,如先前所示,小麦胚芽裂解物可在无需额外组分的情况下支持豆蔻酰化修饰。23,24利用该方法,已能够获得足量的全长肉豆蔻酰化Gag-YFP,用于可视化GUV膜上的Gag蛋白24. 本文描述了HIV-1 Gag与PI(4,5)P结合的实验方案2含有GUV的膜在结合反应后无需 lengthy 的后续处理即可进行检测,我们建议该方法可作为现有Gag-膜结合检测方法的补充,并可进一步用于深入理解HIV-1 Gag与膜的结合机制。
访问受限。请登录或开始试用以查看此内容。
方案
第1天:利用小麦胚芽裂解物表达Gag蛋白 体外 转录-翻译系统
1. HIV-1 Gag 的制备
- 从冷冻柜中取出商业小麦胚芽无细胞表达试剂盒的所有试剂(小麦胚芽裂解物储存在 -80 ºC;其他试剂储存在 -20 ºC)。在冰上融化,并按照表 1所示混合各组分。
| Mix-1(饲液混合物) | |
| 饲液 | 900 µl |
| 氨基酸 | 80 µl |
| 甲硫氨酸 | 20 µl |
| 总计 | 1,000 µl |
| Mix-2(裂解物混合物) | |
| 小麦胚芽裂解物 | 15 µl |
| 无RNase水 | 7 µl |
| 氨基酸 | 4 µl |
| 甲硫氨酸 | 1 µl |
| TE缓冲液中的质粒DNA (1 µg/µl)** | 4 µl |
| 反应缓冲液 | 15 µl |
| RNasin* | 4 µl |
| 总计 | 50 µl |
表1:小麦胚芽反应所需混合物的组分。
注意:如果实验旨在研究RNase去除RNA对Gag膜结合的影响,应将核糖核酸酶抑制剂替换为无RNase水。质粒DNA应根据制造商说明确保无杂质。然而,使用常规质粒提取试剂盒(非内毒素去除型)制备的质粒也已成功应用。制造商说明还建议使用溶于无核酸酶水中的DNA。若使用TE缓冲液[含1 mM EDTA的10 mM Tris-HCl (pH 7.4)]悬浮的DNA,应避免使用较低浓度的DNA,因为TE中的EDTA可能影响产量。浓度范围为0.8–1 µg/µl、溶于TE缓冲液的质粒已成功使用。
- 首先将喂养混合液(Mix-1)加入反应卡盒(透明腔室)中,然后将裂解液混合物(Mix-2)加入另一腔室(红色腔室)。添加混合液时,切勿引入气泡,否则可能导致溶液组分交换不充分,从而降低反应效率。
- 用试剂盒附带的粘性膜覆盖各腔室。
- 将反应卡盒插入卡盒支架中,并在 Eppendorf Thermomixer R 中于 24 ºC、900 rpm 恒定振荡条件下孵育 24 小时。
第2天:通过电形成法制备大单层脂质体并收获小麦胚芽裂解物
2. GUVs 的制备
- 将溶解于氯仿或氯仿与甲醇混合液等无机溶剂中的脂质分装至带有聚四氟乙烯(Teflon)衬垫并用Parafilm封口膜包裹的玻璃小瓶中。使用Hamilton型玻璃注射器或(如有)耐氯仿的塑料吸头操作脂质。从-20 °C冰箱中取出用于制备GUV的含脂质玻璃小瓶。
- 待小瓶恢复至室温后,通过肉眼观察确认脂质悬液是否澄清。脂质的质量,尤其是酸性脂质(如棕榈酰油酰基磷脂酰丝氨酸(POPS)和PI(4,5)P2)的质量,对实验成功至关重要。避免使用分装储存超过2个月的脂质。
- 将金属加热块预热至所需温度。该温度必须至少高于最高相变温度(Tm)的脂质之Tm 5 °C。
- 根据所需的摩尔脂质比例计算所需脂质体积。本实验中用于研究HIV-1 Gag结合时,请采用表2所示的摩尔比例。
| 脂质混合物 | 摩尔比 | 体积(µl) | 储备浓度 |
| POPC+POPS+Chol | 46.6+23.3+30 | 19.74+10.18+6.57 | POPC, POPS, Chol:10 mg/ml |
| POPC+POPS+Chol+Brain-PI(4,5)P2 | 40+20+30+10 | 16.11+8.3+6.25+58.19 | POPC, POPS, Chol:10 mg/ml |
| Brain-PI(4,5)P2:1 mg/ml |
表2:制备GUVs所用不同脂质的体积。
- 将所需体积的脂质加入洁净的带螺帽玻璃小瓶中。
- 使用尺寸为 25 x 50 x 1.1 mm3、电阻为 70–100 Ω 的 ITO 涂层载玻片(如产品目录中所述)。将两张 ITO 涂层载玻片放置在洁净的实验台上。每个电形成腔室需要两张氧化铟锡(ITO)涂层玻璃载玻片。使用万用表检测玻璃载玻片导电面是否朝上,电阻值应约为 200 Ω。使用无绒布蘸取 70% 乙醇轻轻擦拭,确保载玻片表面清洁。
- 用氯仿冲洗注射器针头外表面以清洁,并将注射器置于加热块上。
- 将一张新的 ITO 涂层玻璃载玻片导电面朝上放置在加热块上,使其平衡至所需温度,通常约需 2–3 分钟。请勿重复使用 ITO 涂层玻璃载玻片,因为在清洗过程中 ITO 涂层可能受损,存在潜在风险。
- 每张载玻片使用 40–50 µl 脂质混合物,以确保脂质在玻璃载玻片上均匀且快速铺展。根据需要使用适当的有机溶剂(如氯仿)调节总体积。
- 将脂质混合物总体积的一半滴加到玻璃载玻片上,并立即使用已清洁的注射器(步骤 2.6)铺展脂质,形成均匀的脂膜(在载玻片上移动针头 2–3 次)。应轻柔但迅速地铺展脂膜,以避免对薄 ITO 涂层造成损伤。不均匀或粗暴的铺展可能导致 GUVs 产率不理想或计算异质性。
- 因此,在进入下一步之前,应检查铺展后的脂膜是否均匀。若发现膜的不透明度明显不均,应更换新载玻片重新操作。
- 将涂有脂质的载玻片放入培养皿中,涂层面朝上。
- 对剩余混合物使用另一张 ITO 涂层载玻片,重复步骤 2.6–2.9。
- 将含有两张载玻片的培养皿放入常规真空干燥器中,抽真空 60–90 分钟,以彻底去除残留的有机溶剂。
- 在此期间,将培养箱温度设定为与加热块相同(大多数情况下为 65 ºC),并在培养箱中预热 300 mM 蔗糖溶液。
- 干燥后,将培养皿移至实验台,并将载玻片放置在洁净表面上。
- 使用 70% 乙醇轻轻清洁 PDMS 垫圈(图 1),并完全干燥。
- 如 图 1 所示,将其放置在脂质涂层载玻片上,并轻压并牢固按压,使垫圈形成防水密封。确认 PDMS 垫圈与载玻片之间无间隙。由此形成一个可容纳蔗糖溶液的浅腔室。
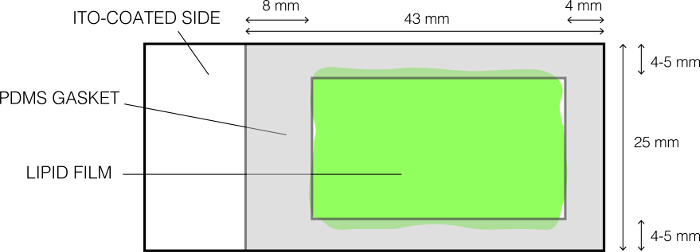
图1:用于电穿孔法的ITO涂层玻璃载玻片的布局。 请点击此处查看该图的放大版本。
- 用预热的蔗糖溶液填充腔室,避免产生气泡。
- 将另一张涂覆的载玻片盖在上方,形成紧密密封。确保无气泡存在。最终组装效果应如图2所示。使用长尾夹固定腔室。
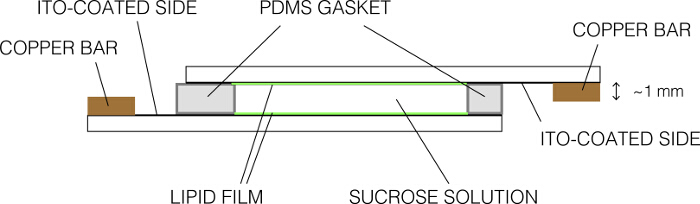
图2:电形成腔室的示意图(侧视图)。 请点击此处查看该图的放大版本。
- 用移液管吸除多余的蔗糖,并使用无绒擦拭布清洁载玻片。将载玻片固定在铜棒上,确保导电面与铜棒均匀接触。注意仅使载玻片的一个导电面与一根铜棒接触。
- 使用鳄鱼夹将铜棒连接至函数发生器的输出端。将组装好的装置放入培养箱中,使其平衡至目标温度。
- 施加频率为 10 Hz、电压差为 1 V 的正弦波,持续 90 分钟。通过万用表确认电压为 1 V,如图 3所示。持续进行该过程 90 分钟。
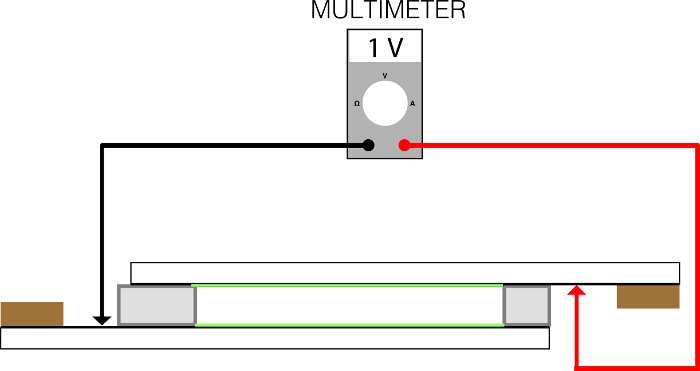
图3:万用表电极放置的位置,用于测量频率和电流。 请点击此处查看该图的放大版本。
- 90分钟后,缓慢将频率降至2 Hz,并继续电形成10分钟。在此期间,收集 体外 翻译反应(步骤 3.1–3.2)。
- 关闭函数发生器,使组装装置在室温下缓慢冷却(关闭培养箱,并将培养箱门略微打开)。
- 冷却后,断开载玻片组件与发生器之间的电缆连接。GUVs 可能非常脆弱,因此必须轻柔操作。小心地将组件移至实验台。
- 用镊子轻轻取下顶部盖玻片,拆卸腔室。用剪切过的 1,000 µl 尖端部分转移至洁净离心管中。操作离心管时应轻柔,以防止GUVs破坏。
- 立即使用GUVs。GUVs在室温下储存时,收获后至少90分钟内保持稳定。
3. 收获 体外 翻译反应
- 收获 体外 使用微量移液器将红室中含有所需蛋白质的翻译反应液转移至离心管中。
- 为去除聚集的蛋白质,将裂解液在台式离心机中以16,200 x g离心15分钟,小心将上清液转移至另一管中。
4. GUV 结合实验
- 使用切口吸头混匀 5 µl 的 体外 含有翻译后蛋白质的翻译反应 5 µl 将GUVs放入离心管中,在室温下孵育2-3分钟。
- 将一块带小孔(直径3-4 mm)的PDMS片贴在干净的盖玻片上,轻轻而牢固地按压以确保密封紧密。
- 放置 10 µl 将第4.1步中的混合物注入小孔中。
- 在室温下,使用倒置荧光显微镜或共聚焦荧光显微镜观察混合物。
注意:为防止蒸发,可用盖玻片覆盖成像腔。
访问受限。请登录或开始试用以查看此内容。
结果
采用上述方案,我们制备了由POPC+POPS+Chol(摩尔比:4.66:2.33:3)组成的GUVs。选择该组分是为了大致模拟质膜(PM)中磷脂酰丝氨酸(PS)和胆固醇的浓度。只有当将脑源性PI(4,5)P2加入POPC+POPS+Chol混合物时(本示例中为POPC+POPS+Chol+脑源性PI(4,5)P2,摩尔比:4:2:3:1),才观察到Gag蛋白的强效且稳定的结合(图4,比较B和D与A和C)。在含有POPC+POPS+Chol+脑源性PI(4,5)P2的GUVs上,Gag-YFP的结合可通过膜表面荧光强度的增强明显看出。这种增强也可在穿过GUV边界的线(图4C和D中的X-X')的荧光强度分布曲线中观察到(图4,底部)。
访问受限。请登录或开始试用以查看此内容。
讨论
如上所述,GUV 结合实验为其他蛋白质-脂质相互作用实验存在局限性的情况提供了一种良好的替代方案。该实验使我们能够在脂双层环境中检测肉豆蔻酰化全长 Gag 蛋白与含天然长度酰基链的酸性脂质之间的相互作用,且无需通过高密度蔗糖梯度进行耗时的浮力离心,也无需对 Gag-脂质复合物进行其他结合后的处理步骤。另一个优势在于,可以在复杂混合物(例如,在胞质组分存在的情况下)中观察 Gag 的行为,而这一点在表面等离子共振等其他实时检测技术中难以实现。因此,可以认为本文所述的实验方法相较于该领域常用的其他实验,能够在更接近天然的环境中实现实时评估 Gag 与酸性脂质的相互作用。
然而,该方法也存在一些局限性。为了确保同一批制备的GUVs之间以及与原始混合物具有相似的组分,电形成过程必须在混合物中相变温度最高的脂质的相变温度以上充分进行25,26。然而,脂质在较高温度下长时间暴露可能导致脂质降解25,27。因此,除了通过添加荧光脂质染料(例如,DiD)进行肉眼观察外,还建议使用特异性脂质探针检测目标脂质(例如...
访问受限。请登录或开始试用以查看此内容。
披露
我们声明不存在利益冲突。
致谢
我们感谢Mohammad Saleem、Jing Wu和Krishnan Raghunathan的有益讨论。同时感谢Priya Begani在拍摄过程中提供的协助。本工作得到美国国立卫生研究院基金R01 AI071727(资助A.O.)和R01 GM110052(资助S.L.V.)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 数字万用表 | Meterman | 30XR | 能够测量电阻和电压的通用型万用表即可满足要求。 |
| 函数发生器 | Instek | GFG-8216A | 能够生成10 Hz、1 V正弦波的通用函数发生器即可满足要求。 |
| ITO 涂层玻璃载片 | Delta Technologies, Loveland, CO | CG-90IN | |
| 培养箱 | Hoefer | 任何能够精确维持温度的培养箱均可满足要求 | |
| 真空室 | Nalgene | ||
| Thermomixer R | Eppendorf | 21516-166 | |
| 注射器 | Hamilton | 80400 | 规格22S,注射器编号702 |
| PDMS | Sylgard 弹性体基础试剂盒,Dow-Corning | Sylgard, 184 | |
| RTS 100 小麦胚芽 CECF 试剂盒 | BiotechRabbit, Berlin, Germany | BR1401001 | |
| DiD | Life Technologies, Carlsbad, CA | D7757 | |
| POPC | Avanti Polar Lipids, Alabaster, AL | 850457C | |
| POPS | Avanti Polar Lipids | 840034C | |
| 胆固醇 | Avanti Polar Lipids | 700041P | |
| 脑组织来源-PI(4,5)P2 | Avanti Polar Lipids | 840046X |
参考文献
- Chukkapalli, V., Inlora, J., Todd, G. C., Ono, A. Evidence in support of RNA-mediated inhibition of phosphatidylserine-dependent HIV-1 Gag membrane binding in cells. J Virol. 87 (12), 7155-7159 (2013).
- Chukkapalli, V., Oh, S. J., Ono, A. Opposing mechanisms involving RNA and lipids regulate HIV-1 Gag membrane binding through the highly basic region of the matrix domain. Proc Natl Acad Sci U S A. 107 (4), 1600-1605 (2010).
- Chukkapalli, V., Hogue, I. B., Boyko, V., Hu, W. S., Ono, A. Interaction between the human immunodeficiency virus type 1 Gag matrix domain and phosphatidylinositol-(4,5)-bisphosphate is essential for efficient gag membrane binding. J Virol. 82 (5), 2405-2417 (2008).
- Zhou, W., Parent, L. J., Wills, J. W., Resh, M. D. Identification of a membrane-binding domain within the amino-terminal region of human immunodeficiency virus type 1 Gag protein which interacts with acidic phospholipids. J Virol. 68 (4), 2556-2569 (1994).
- Ono, A., Ablan, S. D., Lockett, S. J., Nagashima, K., Freed, E. O. Phosphatidylinositol (4,5) bisphosphate regulates HIV-1 Gag targeting to the plasma membrane. Proc Natl Acad Sci U S A. 101 (41), 14889-14894 (2004).
- Saad, J. S., et al. Structural basis for targeting HIV-1 Gag proteins to the plasma membrane for virus assembly. Proc Natl Acad Sci U S A. 103 (30), 11364-11369 (2006).
- Shkriabai, N., et al. Interactions of HIV-1 Gag with assembly cofactors. Biochemistry. 45 (13), 4077-4083 (2006).
- Vlach, J., Saad, J. S. Trio engagement via plasma membrane phospholipids and the myristoyl moiety governs HIV-1 matrix binding to bilayers. Proc Natl Acad Sci U S A. 110 (9), 3525-3530 (2013).
- Anraku, K., et al. Highly sensitive analysis of the interaction between HIV-1 Gag and phosphoinositide derivatives based on surface plasmon resonance. Biochemistry. 49 (25), 5109-5116 (2010).
- Llewellyn, G. N., Grover, J. R., Olety, B., Ono, A. HIV-1 Gag associates with specific uropod-directed microdomains in a manner dependent on its MA highly basic region. J Virol. 87 (11), 6441-6454 (2013).
- Inlora, J., Chukkapalli, V., Derse, D., Ono, A. Gag localization and virus-like particle release mediated by the matrix domain of human T-lymphotropic virus type 1 Gag are less dependent on phosphatidylinositol-(4,5)-bisphosphate than those mediated by the matrix domain of HIV-1 Gag. J Virol. 85 (8), 3802-3810 (2011).
- Inlora, J., Collins, D. R., Trubin, M. E., Chung, J. Y., Ono, A. Membrane binding and subcellular localization of retroviral Gag proteins are differentially regulated by MA interactions with phosphatidylinositol-(4,5)-bisphosphate and RNA. MBio. 5 (6), e02202(2014).
- Valentine, K. G., et al. Reverse micelle encapsulation of membrane-anchored proteins for solution NMR studies. Structure. 18 (1), 9-16 (2010).
- Dick, R. A., Goh, S. L., Feigenson, G. W., Vogt, V. M. HIV-1 Gag protein can sense the cholesterol and acyl chain environment in model membranes. Proc Natl Acad Sci U S A. 109 (46), 18761-18766 (2012).
- Dick, R. A., Kamynina, E., Vogt, V. M. Effect of multimerization on membrane association of Rous sarcoma virus and HIV-1 MA proteins. J Virol. 87 (24), 13598-13608 (2013).
- Alfadhli, A., Still, A., Barklis, E. Analysis of human immunodeficiency virus type 1 matrix binding to membranes and nucleic acids. J Virol. 83 (23), 12196-12203 (2009).
- Rodriguez, N., Pincet, F., Cribier, S. Giant vesicles formed by gentle hydration and electroformation: a comparison by fluorescence microscopy. Colloids Surf B Biointerfaces. 42 (2), 125-130 (2005).
- Needham, D., McIntosh, T. J., Evans, E. Thermomechanical and transition properties of dimyristoylphosphatidylcholine/cholesterol bilayers. Biochemistry. 27 (13), 4668-4673 (1988).
- Darszon, A., et al. Reassembly of protein-lipid complexes into large bilayer vesicles: perspectives for membrane reconstitution. Proc Natl Acad Sci U S A. 77 (1), 239-243 (1980).
- Angelova, M. I., Dimitrov, D. S. Liposome electroformation. Faraday Discuss. Chem. Soc. (81), 303-311 (1986).
- Angelova, M. I., Soléau, S., Méléard, P. h, Faucon, F., Bothorel, P. Preparation of giant vesicles by external AC electric fields. Progr Colloid Polymer Sci. 89, 127-131 (1992).
- Stachowiak, J. C., et al. Unilamellar vesicle formation and encapsulation by microfluidic jetting. Proc Natl Acad Sci U S A. 105 (12), 4697-4702 (2008).
- Yamauchi, S., et al. The consensus motif for N-myristoylation of plant proteins in a wheat germ cell-free translation system. FEBS J. 277 (17), 3596-3607 (2010).
- Olety, B., Veatch, S. L., Ono, A. Phosphatidylinositol-(4,5)-Bisphosphate Acyl Chains Differentiate Membrane Binding of HIV-1 Gag from That of the Phospholipase Cdelta1 Pleckstrin Homology Domain. J Virol. 89 (15), 7861-7873 (2015).
- Morales-Penningston, N. F., et al. GUV preparation and imaging: minimizing artifacts. Biochim Biophys Acta. 1798 (7), 1324-1332 (2010).
- Veatch, S. L. Electro-formation and fluorescence microscopy of giant vesicles with coexisting liquid phases. Methods Mol Biol. 398, 59-72 (2007).
- Ayuyan, A. G., Cohen, F. S. Lipid peroxides promote large rafts: effects of excitation of probes in fluorescence microscopy and electrochemical reactions during vesicle formation. Biophys J. 91 (6), 2172-2183 (2006).
- Montes, L. R., et al. Electroformation of giant unilamellar vesicles from native membranes and organic lipid mixtures for the study of lipid domains under physiological ionic-strength conditions. Methods Mol Biol. 606, 105-114 (2010).
- Olety, B., Ono, A. Roles played by acidic lipids in HIV-1 Gag membrane binding. Virus Res. 193, 108-115 (2014).
- Keller, H., Krausslich, H. G., Schwille, P. Multimerizable HIV Gag derivative binds to the liquid-disordered phase in model membranes. Cell Microbiol. 15 (2), 237-247 (2013).
- Carlson, L. A., Hurley, J. H. In vitro reconstitution of the ordered assembly of the endosomal sorting complex required for transport at membrane-bound HIV-1 Gag clusters. Proc Natl Acad Sci U S A. 109 (42), 16928-16933 (2012).
- Gui, D., et al. A novel minimal in vitro system for analyzing HIV-1 Gag-mediated budding. J Biol Phys. 41 (2), 135-149 (2015).
- Prevost, C., et al. IRSp53 senses negative membrane curvature and phase separates along membrane tubules. Nat Commun. 6, 8529(2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
