这种改进的提取方案可从组织病理学组织块中更精确靶向的目标区域提高RNA和DNA的得率。
本文内容
摘要
摘要
福尔马林固定石蜡包埋组织(FFPET)是分子研究中一种具有重要价值且注释详尽的样本材料。然而,由于组织成分的异质性以及核酸提取得率较低,FFPET在分子分析中的应用面临挑战。文献检索显示,目前极少有实验方案能够解决上述问题,更未见任何经过验证的、可从FFPET特定区域同步提取RNA和DNA的方法。本方法有效解决了这两个难题。通过在显微镜玻片上标记感兴趣的癌组织区域,并将这些注释信息转移至FFPET组织块,实现了组织特异性取材。使用0.6 mm的微阵列打孔针从目标区域获取组织芯。采用商业化的FFPET核酸提取系统进行核酸提取,并对匀浆、脱蜡及蛋白酶K消化步骤进行了优化,以增强组织消化效果并提高核酸得率。改进后的方案可获得足量且高质量的核酸,适用于多种下游分析,包括多指标基因表达检测平台、mRNA表达的逆转录实时PCR分析,以及DNA甲基化的甲基化特异性PCR(MSP)分析。
引言
基因组生物标志物研究旨在识别能够准确、可靠地反映疾病状态,并以具有临床实用性的分子相关指标。1 生物标志物的开发依赖于对经过良好注释的组织样本进行回顾性分析。疾病组织与正常组织样本通常以两种形式保存:一种是存放在专业生物样本库中的新鲜冷冻组织,另一种是临床档案中保存的福尔马林固定石蜡包埋组织(FFPET)块。新鲜冷冻组织可提取高质量的核酸,已被广泛应用于基因组生物标志物的发现研究中。2,3 然而,生物样本库中可用的组织样本数量较少,且此类组织的研究容易产生偏倚,倾向于纳入体积较大的样本、罕见类型的疾病,以及在具备更强组织保存能力的专科医疗中心就诊的患者。4 相比之下,FFPET是人类和动物疾病组织保存的常规方法。尽管FFPET块能够保持细胞形态,但固定过程会导致核酸与其他细胞成分发生交联。交联后的RNA和DNA仍可被回收,但仅以降解且高度片段化的形式存在。5,6 尽管如此,这些DNA和RNA片段仍适用于越来越多的检测方法进行分析,包括mRNA表达检测、DNA高甲基化分析以及靶向测序等。7,8 为了充分利用研究中可获得的大量且多样化的FFPET资源,亟需一种高效且可靠的核酸提取方案。
组织中的生物标志物研究大部分集中于癌症。与其他类型的病变组织一样,癌组织通常在细胞保存状态和细胞类型方面表现出显著的区域性异质性。由于生物标志物研究依赖于将病变组织的组分与分子特征相关联的能力,因此该过程的关键步骤是精确采集保存良好且富含目标疾病细胞的组织。在福尔马林固定石蜡包埋组织(FFPET)中,常采用两种富集技术:激光显微切割(LCM)和切片机切片。LCM可实现高度靶向的组织采集,可用于从异质性组织中分离特定且保存良好的细胞类型9,10。然而,LCM需要昂贵的设备,且对大量样本进行操作时耗时过长,难以普及。切片机切片是一种更广泛使用的方法,通过从FFPET组织块上切下薄片获取样本11,12。切片机所获得的切片通常包含细胞保存状态(例如,坏死组织与保存良好组织)和组织组成(例如,癌组织与良性实质组织)均不均一的区域,因此可能导致本应分别分析的分子特征被混合均质化。因此,亟需一种高通量的方法,以实现对目标细胞的有效富集。第三种方法——从FFPET组织芯中提取核酸——可提供此类富集,适用于高通量实验流程,并已被其他研究者用于从独立的组织芯中分离RNA或DNA7,13,14。
已有多种已发表的方案详细说明了从福尔马林固定石蜡包埋组织(FFPET)中提取核酸的方法(表1)。然而,那些从同一样本组织中同时提取RNA和DNA的方案,目前仅针对切片机获取的组织切片进行了优化,尚未针对组织芯进行优化15,16。类似地,一些已发表的方案虽然通过组织芯或载玻片显微切割提高了组织特异性,但仅提供了DNA提取的流程,未涉及RNA提取7,17。本文展示了一种从同一组织芯中同时提取DNA和RNA的优化方案。组织芯通过将组织微阵列(TMA)打孔针插入已标记在FFPET蜡块上的目标区域获得。标记过程是先用记号笔在显微镜玻片上标注目标区域,再将该标注转移至对应的FFPET蜡块表面(图1)。
此前为开发本方案所开展的工作包括对多种市售核酸提取系统的比较。在该比较中,如下文所述对商业试剂盒方案进行的修改可获得最高产量和质量的DNA与RNA(Selvarajah 等,待发表)。组织芯样本比通常用于FFPET提取方案的5–10 µm切片更厚11,12,14,18-20,且可能含有更多可变含量的石蜡。为弥补这一差异,通过重复使用二甲苯和乙醇处理,并引入机械驱动的均质化步骤,增强了脱蜡效果(图1)。此外,延长蛋白酶K消化时间以提高DNA得率。总体而言,本方案成本较低,能够在大规模、特征明确的人群中建立分子特征与组织病理学特征之间的关联。整个方案可在2天内稳定完成,包括3小时的实际操作时间,且几乎无需特殊或昂贵的设备。
以下分步方案为生产商方案的修改版本21。有关特定试剂、设备及生产商信息,请参见材料/设备表。
方案
1. 组织取芯
- 检查显微镜玻片,并使用细头永久性记号笔标出感兴趣区域。剪下一足够大的石蜡膜片,以覆盖玻片上的感兴趣区域。将膜片牢固地贴在玻片上,并将边缘包裹住,防止膜片滑动。使用细头永久性记号笔,在组织整体轮廓以及组织内的感兴趣区域内进行描边,描边应紧贴但位于该区域外侧。
- 取下膜片并转移至对应的组织包埋块上。通过翻转或旋转膜片,使其组织整体轮廓与包埋块中观察到的组织形状相匹配(图1)。将膜片部分牢固按压在包埋块表面,防止滑动。
- 使用永久性记号笔的笔尖,沿着感兴趣区域的轮廓制作浅但可见的(约0.2 mm)压痕,然后取下膜片。分别向1.5或2.0 ml微量离心管中加入1 ml漂白剂、70%乙醇和水。
- 将0.6 mm打孔器套装中的受体(红色)打孔针浸入含漂白剂的管中,上下滑动数次以清洗针头。依次用70%乙醇和水重复上述步骤(此步骤至关重要,以确保彻底去除残留漂白剂)。
- 将打孔针插入感兴趣区域内,深入组织3 mm后拔出。用探针将组织芯推出,收集至低吸附性的1.5或2 ml离心管中。将组织芯储存于-20 °C(长期)或4 °C(短期)备用。
- 按照步骤1.4清洁打孔针,然后继续处理下一个区域或样本。
2. 脱去FFPE组织芯中的石蜡
- 在1.5或2 ml离心管中进行脱蜡:向组织芯中加入1 ml二甲苯,剧烈涡旋振荡10秒,然后在50 °C下加热3分钟。
- 在室温(RT)下以最大速度(21,130 × g)离心2分钟,将离心管置于冰上5分钟(使蜡质残留物在上层凝固)。
- 用移液器吸头小心移除弯月面周围积聚的石蜡及上清液,并重复二甲苯处理步骤(步骤2.1–2.2)。
- 加入1 ml无水乙醇(100%),剧烈涡旋振荡10秒。在室温下以最大速度离心2分钟,小心弃去乙醇。重复上述步骤一次。
3. 脱蜡组织芯的匀浆化
- 在均质化前,用 700 µl 无水乙醇(100%)重悬组织芯。使用电动组织匀浆器,在中等转速下将组织芯研磨成细小颗粒(约 1 分钟)。每次处理不同样本之间需清洁匀浆探针,以尽量减少交叉污染。
- 准备 15 ml 离心管,分别加入约 10 ml 次氯酸钠溶液、RNase 中和液和 70% 乙醇。样本匀浆后,按上述顺序依次在三种清洗溶液中清洗匀浆探针。清洗过程中,将匀浆器调至最高速运行。
- 用纸巾擦拭探针,并在处理下一个样本前确保探针完全干燥。目视检查探针刀片是否残留组织碎片,如发现残留,应再次清洁。次氯酸钠溶液、乙醇和 RNase 中和液需每日更换。
- 匀浆完成后,加入约 300 µl 无水乙醇,使样本总体积达到 1 ml。以最大转速离心 15 分钟,小心吸除乙醇,将沉淀物在空气中干燥约 15–20 分钟,随后进行 RNA 提取。
4. 使用蛋白酶K进行消化
- 将沉淀重悬于150 µl蛋白酶K消化缓冲液中,轻弹管壁以充分松动沉淀。加入10 µl耐高温蛋白酶K,通过轻弹混匀(切勿涡旋振荡)。将管内物质在56 °C孵育15分钟,并保持轻微振荡。
- 将管置于冰上孵育3分钟。充分冷却对下一步高效沉淀至关重要。于最大转速离心15分钟。
5. 分离RNA与DNA
- 小心转移上清液,避免扰动沉淀,至新的1.5 ml离心管中用于RNA纯化。
- 保留沉淀用于DNA纯化(沉淀可在室温下保存2小时,在2-8 °C下保存最多1天,或在-20 °C下长期保存)。
6. RNA 纯化
- 将含有 RNA 的上清液在 80 °C 下孵育 15 分钟(不得超过此时间)。随后短暂离心管子,以收集管盖内壁的液滴。
- 加入 320 µl Buffer RLT 以调节结合条件,并用移液器吹打混匀。接着加入 720 µl 乙醇(100%),并涡旋振荡。
- 将最多 600 µl 的样品(包括可能形成的任何沉淀物)转移至已置于 2 ml 收集管中的 RNA 离心柱(试剂盒提供),并将剩余样品暂存。在 ≥8,000 × g 条件下离心 15 秒,弃去穿流液并重复使用收集管。
- 将剩余样品(包括可能积聚在管盖内的液滴)转移至离心柱中,在 ≥8,000 × g 条件下离心 15 秒,弃去穿流液。
- 向离心柱中加入 350 µl Buffer FRN,在 ≥8,000 × g 条件下离心 15 秒,弃去穿流液,并在下一步中重复使用收集管。
- 将 10 µl DNase I 储存液与 70 µl Buffer RDD 轻柔混匀,直接加至离心柱膜上,在室温下孵育 15 分钟。
- 向离心柱中加入 500 µl Buffer FRN,在 ≥8,000 × g 条件下离心 15 秒,保留穿流液用于下一步。为提高小 RNA 的回收率,将离心柱放入新的 2 ml 收集管中,并将上一步所得穿流液重新加至离心柱上。
- 在 ≥8,000 × g 条件下离心 15 秒,弃去穿流液,并在下一步中重复使用收集管。向离心柱中加入 500 µl Buffer RPE,在 ≥8,000 × g 条件下离心 15 秒,弃去穿流液,并在下一步中重复使用收集管。
- 向离心柱中加入 500 µl Buffer RPE,在 ≥8,000 × g 条件下离心 15 秒,连同穿流液一起弃去收集管。
- 将离心柱放入新的 2 ml 收集管中,打开管盖,在最大转速下离心 5 分钟。连同穿流液一起弃去收集管。
- 将离心柱放入新的 1.5 ml 收集管中,直接向离心柱膜上加入 20 µl 无 RNase 水,室温孵育 1 分钟。在最大转速下离心 1 分钟以洗脱 RNA。将洗脱的 RNA 样品储存在 -80 °C 下。
7. DNA 纯化
- 通过逐步加入45 µl蛋白酶K缓冲液(400 mM Tris 7.5,400 mM NaCl,3 mM MgCl2,4% SDS)、45 µl H2O和400 µg高活性蛋白酶K,重悬RNA提取过程中获得的沉淀。
- 将上述溶液在56 °C孵育24小时(推荐)或过夜。也可在90 °C孵育2小时而不振荡,并短暂离心微量离心管以收集管盖内壁的液滴。
- 让样品冷却至室温,然后加入4 µl RNase A(100 mg/ml)。在室温下孵育2分钟。
- 向样品中加入200 µl Buffer AL,通过涡旋充分混匀。接着加入200 µl 100%乙醇,再次通过涡旋充分混匀。将全部样品转移至提供的离心柱中,放入2 ml收集管中,在≥8,000 x g条件下离心1分钟。
- 弃去含有穿流液的收集管,将离心柱放入新的2 ml收集管中。向离心柱中加入700 µl Buffer AW1,在≥8,000 x g条件下离心15秒,弃去穿流液并重复使用该收集管。
- 向离心柱中加入700 µl Buffer AW2,在≥8,000 x g条件下离心15秒,弃去穿流液并重复使用该收集管。接着向离心柱中加入700 µl 100%乙醇,在≥8,000 x g条件下离心15秒,然后弃去含有穿流液的收集管。
- 将离心柱放入新的2 ml收集管中,打开离心柱盖子,在最大转速下离心5分钟。弃去含有穿流液的收集管。
- 将离心柱放入新的1.5 ml收集管中,加入25 µl预热的无核酸酶水(50 °C)。将离心柱和收集管在50 °C孵育10分钟。在最大转速下离心1分钟,然后向离心柱中加入25 µl无核酸酶水(室温),并在室温下孵育1分钟。
- 在最大转速(21,130 x g)下离心1分钟,收集含有基因组DNA的穿流液(总共约50 µl DNA)。将离心柱储存于-20 °C(以备后续可能需要再次洗脱)。
结果
本方案提供了一种优化的从组织芯中回收 DNA 和 RNA 的方法,该方法对专为组织切片设计的商业化提取系统进行了改良。优化内容包括引入组织匀浆步骤、采用活性更强的蛋白酶 K 进行 DNA 提取,以及延长组织消化时间。图示与统计分析采用了双因素方差分析(2-way ANOVA)、线性回归与相关性分析。
蛋白酶消化的优化
商用试剂盒中包含一种室温稳定的蛋白酶K溶液,现替换为一种活性更强的蛋白酶K,从而获得更高的DNA产量(图2A)。为进一步提高DNA产量,将消化时间从2小时延长至24小时。两个时间点之间的DNA产量无显著差异,但24小时消化在不同样本间的产量更为稳定。然而,进一步将孵育时间延长至48小时并未进一步改善DNA回收率(图2B;p = 0.74)。
福尔马林固定石蜡包埋的前列腺癌组织样本中典型的DNA回收
采用优化后的实验方案,从333例前列腺癌FFPET样本中同时提取了RNA和DNA,样本保存时间介于3至14年之间。每个样本使用3个组织芯(平均总组织体积为0.95 ± 0.13 mm3)作为起始材料。尽管存在其他基于微流控凝胶电泳的方法可用于估算核酸分子的浓度并评估其片段大小分布,但这类方法无法实现可重复的核酸定量,也不能像荧光法检测那样有效区分RNA与DNA22。此外,由于基于微流控的凝胶电泳在分析来自FFPET的片段化核酸时结果不可靠23,因此本研究采用荧光法测定核酸得率(详见试剂列表)。平均得率为2,270 ng RNA和820 ng DNA(图3A)。本研究中约90%的FFPET样本可获得≥100 ng DNA和≥500 ng RNA。有趣的是,FFPET样本保存时间与核酸回收量之间无显著相关性(图3B)。总体而言,不同样本间的RNA与DNA得率呈正相关(R2 = 0.39;p <0.0001),但每个样本中回收的RNA量超过DNA量两倍以上(图3C)。
由于初步试验和优化工作是在前列腺组织上进行的,下一步是评估该方案在其他几种存档组织类型上的表现。从手术切除和尸检获得的福尔马林固定石蜡包埋组织(FFPET)样本开始,包括良性肝脏组织(1个病例的1个样本)、脑癌(1个病例的8个样本)、膀胱癌(2个病例的2个样本)以及乳腺癌(3个病例的3个样本),该方案获得了 >100 ng 来自 90% 样品的 DNA 和 RNA图3D尽管尸体解剖组织中的核酸得率低于手术组织,但代表性结果表明,该方案在来源于不同部位的癌症组织中均能产生相似的得率。
RNA 和 DNA 完整性的评估及其在下游分析中的代表性表现
采用一种专为FFPET样本优化的商业化多指标基因表达分析平台,对8个选定的FFPET前列腺癌样本以及一个新鲜的PC-3前列腺癌细胞系样本(作为阳性对照)中47个基因的RNA表达进行了分析。PC3样本中的mRNA计数通常高于FFPET样本(图4A)。然而,在比较所有基因的相对表达水平时,FFPET前列腺癌样本显示出与PC-3 RNA相似的表达谱,表明这两种RNA来源均适用于RNA表达谱分析。
为验证采用本方案提取的基因组DNA的质量,对来自FFPET样本的经亚硫酸氢盐转化的DNA提取物进行了甲基化特异性PCR(MSP)扩增。24 ALU重复元件的MSP分析,ALU是人类基因组中数百万拷贝的高度甲基化区域25 用作基因组甲基化的对照,预期在不同样本间表现出极小的变异。如图4B所示,不同样本间的ALU MSP甲基化水平几乎没有变化。此外,基于GSTP1的MSP检测显示,该基因在前列腺癌中已知呈高甲基化,而在良性样本中则不然。26 在良性样本的DNA中未检测到明显的扩增信号。正如预期,癌症组织DNA的qPCR循环阈值(cycle threshold)较低,表明甲基化的GSTP1拷贝富集。本方案回收的核酸在典型下游实验中进一步验证了其适用性,所用核酸来自良性肝组织、脑组织(死后)以及两例手术切除的乳腺癌样本。基于RT-qPCR的表达分析和MSP检测在乳腺癌和肝组织FFPET样本中均表现良好,但RT-PCR检测未能扩增出死后脑肿瘤样本中高表达的mRNA图4C),表明RNA可能已降解,原因可能是组织固定延迟。

图1:FFPET样本提取流程概览。 该图展示了如何根据显微镜切片的组织病理学选择,在组织块中定位感兴趣区域。随后使用活检穿孔器从每个组织区域获取三个0.6 mm的组织芯,合并后进行匀浆处理,接着同时进行RNA和DNA的提取。请点击此处查看该图的放大版本。

图2:两种蛋白酶K(耐温型与高活性酶)在不同孵育时间下,FFPET组织中核酸(DNA和RNA)的提取产量(ng/mm3)。(A)不同供应商来源的蛋白酶K性能比较。使用试剂盒配套的耐温型酶与另一厂家的高活性酶,对同一FFPET样本进行DNA提取。(B)确定最佳蛋白酶K孵育时间以最大化DNA产量。采用高浓度蛋白酶K,在三个FFPET样本中分别测试三种不同孵育时长的消化效果。误差线表示均值标准误(SEM)。请点击此处查看该图的高清版本。
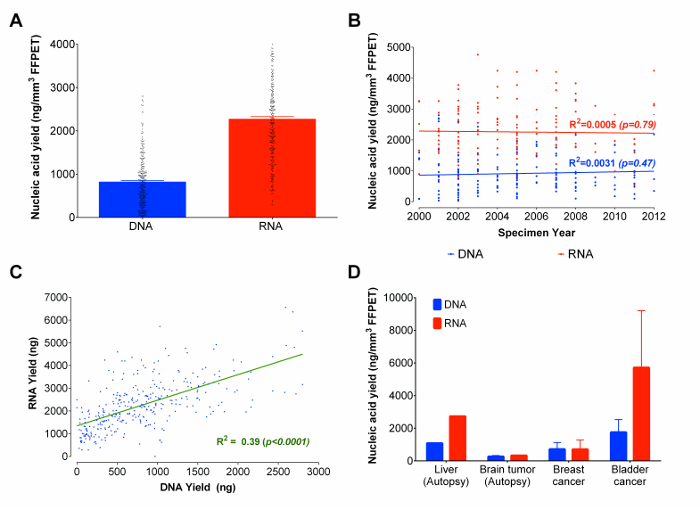
图3:不同年份及代表性组织类型中,每 mm3 甲醛固定石蜡包埋组织(FFPET)的总核酸(DNA 和 RNA)得率(ng)。(A)从甲醛固定石蜡包埋组织中回收的总核酸。所示核酸量基于采用优化方案提取的 333 个 FFPET 样本的结果。(B)回收的总 DNA 和 RNA 得率与 FFPET 样本保存年限之间的相关性分析。所用提取样本的采集年份为 2000 年至 2012 年。(C)从 333 个前列腺样本中同步提取的 DNA 和 RNA 得率之间的相关性。DNA 与 RNA 得率之间存在正相关关系。(D)使用其他存档组织类型验证本方案的效果。采用优化方案从 14 个癌症(乳腺、膀胱和脑)及正常(肝脏)组织样本中提取核酸。误差线表示标准误(SEM)。请点击此处查看该图的高清版本。

图 4: 从组织芯中共同提取的 RNA 和 DNA 在下游应用中的表现。(A)FFPE 前列腺癌组织和新鲜 PC-3 细胞系对照的 mRNA 计数。每个数据点代表三次独立技术重复提取的平均值。新鲜 PC-3 细胞系的 RNA 值以黄色柱状图表示,FFPET 组织的值以彩色圆点表示。(B)FFPET 前列腺癌样本 DNA 的甲基化特异性 PCR 检测。使用 50 ng/反应的亚硫酸氢盐转化 DNA,对 10 个样本进行检测,结果符合预期。所有 FFPET 样本的 ALU MSP 检测显示出相似的扩增循环阈值(p >0.67)。GSTP1 MSP 检测显示,前列腺癌组织中的甲基化水平(更低的扩增循环阈值)高于良性前列腺组织。(C)对其他组织类型中提取的 DNA 和 RNA 质量的评估。对从正常肝脏(尸检)、脑组织(尸检)和乳腺癌组织(均为 FFPET)中提取的核酸(分别为 RNA 和 DNA)进行了 HPRT1 基因表达和 Alu 基因甲基化检测。前列腺组织的结果作为对照显示。注意:除一个尸检样本的 mRNA 扩增失败外,其余各类组织均观察到类似结果。每个数据点或柱状图代表一个样本,误差线表示标准误(SEM)。请点击此处查看该图的放大版本。
| 组织芯 | |||||||||||
| 组织投入量 (mm³) | 提取的核酸 | 验证 | 质量检测:DNA | 质量检测:RNA | |||||||
| (样本数) | 样本年龄(年) | 总得率 (ng) | 片段大小 (bp) | PCR | 总得率 (ng) | 片段大小 (bp) | PCR | NanoString | |||
| Pikor et al. | 43 - 129 | DNA | 无数据 | 无数据 | 无数据 | 无数据 | |||||
| Montaser-Kouhsari et al. | 18 - 29.5 | RNA | 763 | 0-25 | 843 | 无数据 | |||||
| 本文 | 1.71 | DNA 和 RNA | >350 | 3-12 | 820 | 100 - 500 |  | 2270 | 100-500 | | |
| 组织切片 | |||||||||||
| 组织投入量 | 提取的核酸 | 验证 | 质量检测:DNA | 质量检测:RNA | |||||||
| (样本数) | 样本年龄(年) | 总得率 (ng) | 片段大小 (bp) | PCR | 总得率 (ng) | 片段大小 (bp) | PCR | NanoString | |||
| Heikal et al. | 5 x 5 µm | DNA | 12 | 7-22 | 88-300 | 103-351 | | ||||
| Chung et al. | 1 x 20 µm | RNA | 9 | >5 | 16,000- 23,000 | 100-200 | | ||||
| Antica et al. | 2 x 4 µm | RNA | 18 | 无数据 | 未知 (621 ng/µl) | 80-202 + | | ||||
| Ghatak et al. | 5 x 5 µm | DNA 和 RNA | 5 | 1 | 14 256 | <1030 | | 16 000 | 109-400 + | | |
| Hennig et al. | 1 x 10 µm | DNA 和 RNA | 210 | 1-25 | 无数据 | 无数据 | | 无数据 | 无数据 | | |
| 激光捕获显微切割 | |||||||||||
| 组织投入量 (mm²) | 提取的核酸 | 验证 | 质量检测:DNA | 质量检测:RNA | |||||||
| (样本数) | 样本年龄(年) | 总得率 (ng) | 片段大小 (bp) | PCR | 总得率 (ng) | 片段大小 (bp) | PCR | NanoString | |||
| Snow et al. | 1-2 | DNA | 110 | 0-2 | 430 | 无数据 | | ||||
表1: 已发表的组织芯、组织切片和激光捕获显微切割样本的DNA和RNA提取方案比较。此外还列出了采用PCR和Nanostring检测方法对这些提取方案进行的若干分子终点评估结果。
讨论
为了成功从目标组织区域提取 DNA 和 RNA,精确的取芯至关重要。本方案描述了使用组织打孔器分离直径为 0.6 mm 的组织芯,并概述了将显微镜玻片上的标记准确转移到相应 FFPET 块的流程。由于原厂商方案旨在用于切片厚度远小于组织芯的微米切片(组织芯厚度约为其 50 倍),因此需对该方案进行修改,以高效地从组织芯中提取核酸。由于组织芯中可能含有相对于常规组织切片更多的石蜡,因此需要通过重复的二甲苯和乙醇处理步骤实现有效的脱蜡。脱蜡后的步骤成功与否,取决于充分的机械组织芯均质化以及高效的蛋白酶 K 消化。可进一步优化蛋白酶 K 的消化条件。
值得指出的是,该方法可识别组织块表面与相应组织病理学切片中所确定的兴趣区域。由于穿刺获取的组织可能深达3或4 mm,本方案的使用者可能会关注组织块表面下方存在哪些细胞或组织。尽管这一担忧是合理的,但多项研究(详见参考文献27)已证实,组织芯能够真实地代表病理组织块的组织学和分子特征,尤其是在从兴趣区域采集双份或三份复本组织芯的情况下。
由于本方案采用的改良型商用提取试剂盒能够从同一样本组织中同时提取DNA和RNA,因此该方法节省了宝贵的生物材料,并允许对同一样本中获得的两种核酸进行直接比较。同时提取RNA和DNA可使实验工作量和组织消耗减少一半,并实现对基因表达以及DNA中存在的表观遗传和遗传特征进行精确的整合分析。由于从这些代表性组织核心样本中提取的RNA和DNA产量通常分别超过600 ng和300 ng,而目前大多数PCR和高通量测序应用通常仅需10–100 ng,因此本方案纯化的大多数样本应足以支持多项下游检测。该方案已在不同独立实验室中验证具有良好的可重复性(Selvarajah et al.,正在准备中)。本方案获得的RNA质量足以用于RT-PCR或常用的多指标分析平台进行基因表达分析,而提取的DNA在甲基化特异性PCR检测中也表现良好。未来有必要进一步研究该方法回收的核酸在高通量测序中的应用价值。
因此,对一种 commercially available 的方案进行了多项改进,该方案原本针对薄层 FFPET 切片设计,现已被优化为适用于从 0.6 mm 的 FFPET 组织芯中同时提取 RNA 和 DNA。该方案在大量前列腺癌样本以及部分乳腺癌、脑癌和膀胱癌样本中均表现出稳定且较高的提取得率。总体而言,该方案可使研究人员对大规模、注释完善的人类组织样本库开展靶向基因分析。尤为重要的是,该方案支持对 FFPET 样本中感兴趣区域进行高效、精准的取样,操作耗时短,且提取得率足以满足大多数下游应用的需求。
披露
作者声明不存在竞争性财务利益。
致谢
本研究得到了 Movember/加拿大前列腺癌基金会向 JMSB、DMB、PCP 和 JL 提供的团队资助,以及安大略癌症研究所(JMSB、DMB 和 PCP)和 Kingston 父亲摩托车骑行活动/University Hospitals Kingston 基金会/Kingston 总医院(DMB、PCP)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 塑料石蜡膜,"Parafilm 'M'" | Bemis | RK-06720-40 | 任何通用石蜡膜均可作为替代品 |
| 次氯酸钠,"Ultra Bleach" | Likewise | 53-2879-2 | 任何通用漂白剂均可作为替代品。该物质为危险品,接触后可能引起灼伤。 |
| 分子生物学级无水乙醇 | Fisher BioReagents | BP2818-500 | Sigma-Aldrich E7023 可作为替代品 |
| 分子级 H2O | G-Biosciences | 786-293 | Sigma W4502 可作为替代品,其他品牌的分子级 H2O 亦可使用 |
| 0.6 mm 打孔器套装(适用于 Beecher Instruments ) | Estigen | MPO6[黄色] | 请确保使用该套装中的红色接收打孔针 |
| 细尖永久性记号笔 | Sharpie | 10365796S | 在 FFPE 组织上使用该记号笔会使其迅速干燥,因此可能需要准备多支 |
| FFPE 组织块 | |||
| 与 FFPE 组织块对应的染色组织切片 | |||
| 1.5 ml 微型离心管 | Fisher BioReagents | 05-408-137 | |
| 2.0 ml 低吸附管(LoBind 微型离心管) | Eppendorf | 22431048 | |
| 1.5 ml 低吸附管(LoBind 微型离心管) | Eppendorf | 22431021 | |
| 组织学级二甲苯 | VWR | CA 95057-822 | Fisher Scientific X5-500 可作为替代品 |
| 分子生物学级 2-丙醇 | Sigma | I9516 | |
| AllPrep FFPE DNA/RNA 试剂盒 | Qiagen | 80234 | 根据 AllPrep DNA/RNA FFPE 手册21 准备缓冲液 |
| 缓冲液:RLT、FRN、RPE、ATL、AL、AW1、AW2、DNaseI 溶液 | Qiagen | 80234 | 根据 AllPrep DNA/RNA FFPE 手册21 准备缓冲液 |
| 耐高温蛋白酶 K | Qiagen | 80234 | |
| 高活性蛋白酶 K | Invitrogen | 25530-049 | Invitrogen 25530-015 可作为替代品 |
| RNase 中和溶液(Rnase AWAY) | Molecular BioProducts | 7003 | |
| RNaseA 100 mg/ml | Qiagen | 19101 | |
| BD Integra 注射器 3 ml 21G × 1/2 | BD | 305274 | |
| 电动组织匀浆器(TissueRuptor) | Qiagen | 9001271 | Fisher Scientific 14-261-29 可作为替代品 |
| -20 °C 和 -80 °C 实验室冷冻柜 | |||
| 配有 2 ml 管转子的微型离心机 | |||
| 数字涡旋混合器 | |||
| 移液器及滤芯吸头 | |||
| 加热块或水浴锅 | |||
| 三羟甲基氨基甲烷盐酸盐 | Amresco | 0234 | |
| 氯化钠 | Amresco | 0241 | |
| 无水氯化镁 | Sigma | M8266 | |
| 十二烷基硫酸钠 | Sigma | L4509 | |
| Acrodisc 25 mm 注射式滤器,带 0.45 µm Supor 膜 | Pall | PN 4614 | |
| 带可回缩 BD PrecisionGlide 针头的 3 ml 注射器 | BD Integra | 305274 | |
| 盐酸 | BDH | 3026 | |
| 多靶点基因表达检测平台(nCounter ® CAE 探针组和 Nanostring nCounter 平台) | Nanostring nCounter 平台,Nanostring | ||
| 荧光法定量核酸(Qubit dsDNA HS 检测试剂盒和 Qubit® RNA BR 检测试剂盒) | Invitrogen |
参考文献
- Kern, S. E. Why your new cancer biomarker may never work: recurrent patterns and remarkable diversity in biomarker failures. Cancer Res. 72 (23), 6097-6101 (2012).
- Klopfleisch, R., Weiss, A. T. A., Gruber, A. D. Excavation of a buried treasure--DNA, mRNA, miRNA and protein analysis in formalin fixed, paraffin embedded tissues. Histol. Histopathol. 26 (6), 797-810 (2011).
- Beltran, H., et al. Targeted Next-generation Sequencing of Advanced Prostate Cancer Identifies Potential Therapeutic Targets and Disease Heterogeneity. Eur. Urol. 63 (5), 920-926 (2013).
- Hoppin, J. A., Tolbert, P. E., Taylor, J. A., Schroeder, J. C., Holly, E. A. Potential for selection bias with tumor tissue retrieval in molecular epidemiology studies. Ann. Epidemiol. 12 (1), 1-6 (2002).
- von Ahlfen, S., Missel, A., Bendrat, K., Schlumpberger, M. Determinants of RNA quality from FFPE samples. PLOS ONE. 2 (12), e1261(2007).
- Masuda, N., Ohnishi, T., Kawamoto, S., Monden, M., Okubo, K. Analysis of chemical modification of RNA from formalin-fixed samples and optimization of molecular biology applications for such samples. Nucleic Acids Res. 27 (22), 4436-4443 (1999).
- Pikor, L. A., Enfield, K. S. S., Cameron, H., Lam, W. L. DNA extraction from paraffin embedded material for genetic and epigenetic analyses. J. Vis. Exp. (49), (2011).
- Turashvili, G., et al. Nucleic acid quantity and quality from paraffin blocks: defining optimal fixation, processing and DNA/RNA extraction techniques. Exp. Mol. Pathol. 92 (1), 33-43 (2012).
- Espina, V., et al. Laser-capture microdissection. Nat. Protoc. 1 (2), 586-603 (2006).
- Hackler, L., Masuda, T., Oliver, V. F., Merbs, S. L., Zack, D. J. Use of laser capture microdissection for analysis of retinal mRNA/miRNA expression and DNA methylation. Methods Mol. Biol. 884, 289-304 (2012).
- Bonin, S., Stanta, G. Nucleic acid extraction methods from fixed and paraffin-embedded tissues in cancer diagnostics. Expert Rev. Mol. Diagn. 13 (3), 271-282 (2013).
- Bonin, S., et al. Multicentre validation study of nucleic acids extraction from FFPE tissues. Virchows Archiv. 457 (3), 309-317 (2010).
- Montaser-Kouhsari, L., et al. Image-guided Coring for Large-scale Studies in Molecular Pathology. Appl. Immunohistochem. Mol. Morphol. , (2015).
- van Eijk, R., Stevens, L., Morreau, H., van Wezel, T. Assessment of a fully automated high-throughput DNA extraction method from formalin-fixed, paraffin-embedded tissue for KRAS, and BRAF somatic mutation analysis. Exp. Mol. Pathol. 94 (1), 121-125 (2013).
- Ghatak, S., Sanga, Z., Pautu, J. L., Kumar, N. S. Coextraction and PCR Based Analysis of Nucleic Acids From Formalin-Fixed Paraffin-Embedded Specimens. J. Clin. Lab. Anal. , (2014).
- Hennig, G., et al. Automated extraction of DNA and RNA from a single formalin-fixed paraffin-embedded tissue section for analysis of both single-nucleotide polymorphisms and mRNA expression. Clin. Chem. 56 (12), 1845-1853 (2010).
- Snow, A. N., Stence, A. A., Pruessner, J. A., Bossler, A. D., Ma, D. A simple and cost-effective method of DNA extraction from small formalin-fixed paraffin-embedded tissue for molecular oncologic testing. BMC Clin. Pathol. 14 (1), 30(2014).
- Torrente, M. C., et al. DNA extraction from formalin-fixed laryngeal biopsies: Comparison of techniques. Acta Otolaryngol. 131 (3), 330-333 (2011).
- Okello, J. B. A., et al. Comparison of methods in the recovery of nucleic acids from archival formalin-fixed paraffin-embedded autopsy tissues. Anal. Bochem. 400 (1), 110-117 (2010).
- Abramovitz, M., et al. Optimization of RNA extraction from FFPE tissues for expression profiling in the DASL assay. BioTechniques. 44 (3), 417-423 (2008).
- AllPrep DNA/RNA FFPE Handbook. , (2012).
- Laurent, L. C., et al. Meeting report: discussions and preliminary findings on extracellular RNA measurement methods from laboratories in the NIH Extracellular RNA Communication Consortium. Journal of Extracell. Vesicles. 4, (2015).
- Wieczorek, D., Delauriere, L., Schagat, T. Methods of RNA Quality Assessment. , Available from: https://www.promega.ca/resources/pubhub/methods-of-rna-quality-assessment (2012).
- Herman, J. G., Graff, J. R., Myohanen, S., Nelkin, B. D., Baylin, S. B. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc. Natl. Acad. Sci. U.S.A. 93 (18), 9821-9826 (1996).
- Weisenberger, D. J., Campan, M., et al. Analysis of repetitive element DNA methylation by MethyLight. Nucleic acids research. 33 (21), 6823-6836 (2005).
- Yegnasubramanian, S. Hypermethylation of CpG Islands in Primary and Metastatic Human Prostate Cancer. Cancer Res. 64 (6), 1975-1986 (2004).
- Parsons, M., Grabsch, H. How to make tissue microarrays. Diagn. Histopathol. 15 (3), 142-150 (2009).
重印与许可
