磷脂脂肪酸可提供有关土壤微生物群落结构的信息。本文介绍了从土壤样品中提取磷脂的单相氯仿混合物提取方法、利用固相萃取柱对提取的脂质进行分离纯化的方法,以及通过甲醇解反应生成脂肪酸甲酯,随后采用毛细管气相色谱法对脂肪酸甲酯进行分析。
本文内容
摘要
摘要
磷脂脂肪酸(PLFAs)是微生物细胞膜的关键组分。对从土壤中提取的磷脂脂肪酸进行分析,可提供有关陆地微生物群落整体结构的信息。磷脂脂肪酸谱分析已在多种生态系统中广泛应用,作为评估土壤总体质量的生物学指标,以及反映土壤对土地管理和其他环境胁迫响应的定量指标。
本文介绍的标准方法包含四个关键步骤:1. 使用单相氯仿混合液从土壤样品中提取脂质;2. 利用固相萃取柱进行组分分离,以将磷脂与其他提取出的脂质分离开;3. 对磷脂进行甲醇解反应,生成脂肪酸甲酯(FAME);4. 采用配备火焰离子化检测器的毛细管气相色谱(GC-FID)分析FAME。实验中使用两种标准品,包括1,2-二十九酰基-sn-甘油-3-磷胆碱(PC(19:0/19:0)),用于评估提取方法的整体回收率,以及癸酸甲酯(MeC10:0),作为气相色谱分析的内标物(ISTD)。
引言
磷脂脂肪酸(PLFA)是细菌(Bacteria)和真核生物(Eukarya)域微生物细胞膜的组成部分。微生物通过合成不同链长和组成的磷脂脂肪酸,以维持细胞膜完整性和细胞功能,从而适应其周围环境条件;因此可以认为,尽管地理上相隔但处于相似土壤条件下的微生物群落将表现出相似的磷脂脂肪酸谱型。链长在14至20个碳原子之间的土壤磷脂脂肪酸通常被认为主要来源于细菌和真菌1。在混合培养物中,磷脂脂肪酸分析不能用于鉴定特定的微生物种类,但可提供土壤中微生物群落的整体指纹图谱。此外,由于磷脂脂肪酸在细胞死亡后会迅速降解,因此可将其视为存活土壤微生物群落的代表性指标2。该技术已被广泛用于表征多种环境中微生物群落的结构组成,包括森林3-4、草原5-6和农田7。它也成功应用于表征土壤对土地管理变化的响应,如森林皆伐8、施用石灰9、土地复垦10-12,以及火灾13、金属污染14、烃类污染15和昆虫暴发16等干扰因素的影响。
过去六十年中,磷脂脂肪酸(PLFA)分析方法经历了多个研究团队的关键性改进而逐步发展。1958年,通过调整提取液中氯仿:甲醇:水的比例,使体系由单相系统转变为双相系统,这一改进显著提升了提取效率17。该优化后的脂质提取方法及其修订的分离流程被称为Bligh和Dyer法。在随后的几十年中,许多实验室广泛采用了该方案;在此期间,White及其同事对该方法做出了重要贡献;例如,他们通过用磷酸盐缓冲液替代水改进了提取步骤,并通过提高色谱峰的识别与定量能力优化了气相色谱(GC)分析过程。或许对土壤科学更具意义的是,他们在1979年研究海洋沉积物的微生物生物量时发现,所提取的脂质可作为微生物群落结构的一个指标18。
20世纪80年代,该方法在土壤科学中得到更广泛应用,特别是在根际研究方面19,推动了进一步的发展。当时,该方法已包括十九烷酸甲酯(MeC19:0)作为内标物19,并采用硅酸柱进行脂质组分分离21。在与White合作研究后19,21,Tunlid返回瑞典,开始与Bååth和Frostegård开展合作研究。该团队通过比较不同提取缓冲液对一系列有机质含量各异的土壤的提取效率,发现与磷酸盐缓冲液相比,柠檬酸盐缓冲液可提高脂质磷酸的提取量22。此外,他们于1993年发表的关于石灰施用对土壤微生物群落影响的研究23,后来成为《土壤生物学与生物化学》(Soil Biology & Biochemistry)期刊中的高被引经典文献24。研究人员在数据处理中采用了主成分分析方法。如今被称为磷脂脂肪酸(PLFA)分析的方法会产生大量数据,而当时采用多元统计方法处理这些数据具有高度创新性,并对许多研究者产生了启发作用。与此同时,在瑞典开展研究的同时,德国的Zelles及其同事也在探索PLFA方法的改进25-26。他们的方法显著特点是采用固相萃取(SPE)柱替代硅酸柱,但总体上实验操作更为繁琐。
Frostegård 的论文23,以及 White & Ringelberg27 提供的详细方法学,为磷脂脂肪酸(PLFA)技术在土壤科学基础问题研究中的广泛应用奠定了基础。此后,Firestone 及其同事对该方法进行了进一步优化,包括添加内标气相色谱标准物质(C10:0)和以 C19:0 作为替代标准物以提高定量准确性28,并用圆底小瓶取代分液漏斗以简化提取过程29。最近,Chowdhury 和 Dick30 对甲基化步骤进行了研究,报道指出,在土壤科学文献所采用的两种甲基化方法中,KOH/MeOH 法能够鉴定出更广泛的脂肪酸种类。
本方法主要基于Bligh和Dyer开发的原始方法,并结合了上述改进措施,例如在甲基化步骤中使用甲醇氢氧化钾(methanolic KOH)。每个样品使用两种标准品:一种是内标标准品1,2-二十九烷酰基-sn-甘油-3-磷脂酰胆碱(PC(19:0/19:0)),在第一次提取前加入土壤样品中,用于评估整个实验流程的效率和回收率;另一种是仪器标准品癸酸甲酯(MeC10:0),在气相色谱定性和定量分析前加入。
我们承认,磷脂脂肪酸(PLFA)方法已被全球众多微生物生态学实验室广泛使用,并被多次记录,其中包括国际标准化组织2。本文的目的是提供一种易于遵循且可靠的实验方案,以帮助正在学习PLFA技术的土壤科学家。
方案
注意:在整个实验过程中,务必始终佩戴适当的个人防护装备(PPE)。切勿用手直接接触玻璃器皿。手指、头发、油脂、油类和碳氢化合物中的脂质均可能成为污染物。操作洁净玻璃器皿时,务必佩戴腈手套,并用70%乙醇冲洗手套。
1. 分析用玻璃器皿的准备
- 一次性玻璃器皿(例如,离心管)
- 用铝箔包裹,在马弗炉中于 450 ºC 加热四小时三十分钟。
- 聚四氟乙烯(PTFE)衬垫瓶盖
- 将瓶盖在磷酸盐洗涤剂中浸泡一小时,然后用刷子在热水和磷酸盐洗涤剂中刷洗,再用自来水冲洗掉肥皂残留。
- 仅在酸浴(5% HCl)中浸泡一小时(切勿超过时间,否则衬垫可能从瓶盖中脱落)。用自来水冲洗三次,再用蒸馏水冲洗三次,最后在 40 ºC 烘箱中干燥。
- 可重复使用玻璃器皿(例如,10 ml、15 ml、45 ml 小瓶/广口瓶)
- 用刷子在热水和磷酸盐洗涤剂中刷洗,用自来水冲洗掉肥皂残留,然后在酸浴(5% HCl)中过夜浸泡。用自来水冲洗三次,再用蒸馏水冲洗三次,最后在 40 ºC 烘箱中干燥。
- 用洁净铝箔包裹(50 ml 广口瓶单独包裹,其他玻璃器皿按样品批次包裹, 例如,20 个为一批),在马弗炉中于 450 ºC 加热四小时三十分钟。
- 容量玻璃器皿(例如,容量瓶)
- 用刷子在热水和磷酸盐洗涤剂中刷洗,用自来水冲洗掉肥皂残留,然后在酸浴(5% HCl)中过夜浸泡。用自来水冲洗三次,再用蒸馏水冲洗三次,最后在 40 ºC 烘箱中干燥。
- 使用前用少量溶剂(例如,甲醇)冲洗三次——切勿将容量玻璃器皿放入马弗炉中。
2. PLFA分析前土壤样品的采集与处理
- 将土壤样品采集到无菌袋中,除非能够立即进行分析,否则应尽快冷冻。将样品储存于超低温冰箱(-80 ºC)中,直至准备进行样品的冷冻干燥。按照冷冻干燥机的操作说明对样品批次进行冷冻干燥。
- 将每个冷冻干燥后的样品转移至新标记的无菌袋中。从袋中称取冻干样品,加入预先标记的经马弗炉处理的离心管中,用于PLFA提取。
注意:一般建议,对于有机质材料(碳含量 > 17% wt)使用0.5 g,矿物土壤样品最多可使用3.0 g。记录每个样品的称样重量。 - 每10个样品中,额外称取一个重复样品用于分析;每20个样品中,加入一个空白对照(i.e.,不含任何样品的离心管——用于在PLFA提取过程中检测潜在污染)。同时处理一批样品管。
注意:一组20个样品对应23个样品管批次(样品1至10,样品10的一个重复,样品12至22,样品22的一个重复,以及一个空白对照 = 23个样品管批次)。
注意:在将样品制备用于气相色谱分析并统一进样前,应分批进行提取、分离和甲酯化操作。这有助于在出现问题时定位错误发生环节,并可能减少必要的重复提取次数。
3. PLFA 技术(步骤针对单个样品,但需一次完成整批样品)
注意:以下第1-3步中所述的PLFA技术的所有操作步骤均应在通风橱中进行,并使用适当的个人防护装备,遵循实验室安全规范。
- 提取(步骤1):
- 通过将14 g KOH溶解于50 ml去离子蒸馏水(dH2O)中,配制5.0 M KOH溶液。
- 通过将31.52 g一水柠檬酸溶解于400 ml dH2O中,配制0.15 M柠檬酸缓冲液。用5.0 M KOH调节pH至4.00 ± 0.02;调节pH约需45–50 ml 5.0 M KOH。pH调节完成后,用容量瓶将柠檬酸缓冲液定容至1,000 ml。不使用时将缓冲液储存于冰箱中(可保存一个月)。
- 每日现配PC(19:0/19:0)十九烷酸替代标准品:将250 μl储备液(10 mg/ml)稀释至25 ml氯仿中(此量可供23个样品批次使用)。向样品离心管中加入0.5 ml PC(19:0/19:0)替代标准品溶液。
- 按以下顺序向土壤样品中加入Bligh和Dyer提取剂:i)2.0 ml柠檬酸缓冲液,ii)2.5 ml氯仿,iii)5.0 ml甲醇。用聚四氟乙烯(PTFE)衬垫盖密封样品,涡旋振荡30秒;然后置于翻转摇床中振荡2小时。
- 在226 × g条件下离心15分钟(保持盖紧)。用巴斯德移液管吸取上清液,并转移至已标记的45 ml玻璃小瓶中。
- 向每个样品中再次加入一轮Bligh和Dyer提取剂,并重复上述步骤4和5。用巴斯德移液管吸取上清液,并转移至同一已标记的45 ml玻璃小瓶中。
- 向含有上清液的已标记45 ml玻璃小瓶中加入:i)5.0 ml氯仿,ii)5.0 ml柠檬酸缓冲液。用白色PTFE衬垫盖密封玻璃小瓶,涡旋振荡30秒。于室温避光条件下静置过夜(避免氧化)。
- 小心用真空装置抽除45 ml小瓶中的上层水相(若无真空装置,应将移液管小心穿过水相,避免吸取水相时污染有机相)。用移液管将下层有机相转移至已标记的15 ml小瓶中。
- 将一批15 ml小瓶置于压缩N2气流下(避免氧化),于室温缓慢蒸发氯仿,调节N2流速使液体表面轻微扰动但不沿瓶壁上升。
- 拧紧PTFE衬垫盖,用铝箔包裹样品(以批次为单位包裹,而非单独包裹),于-20 ºC冰箱中保存,直至进行步骤2。
- 脂质分级(步骤2)
- 将带活塞的固相萃取(SPE)柱架置于玻璃槽上。插入新的SPE柱(硅胶柱,500 mg,6 ml)至活塞中。根据需要标记SPE柱(建议标记以避免样品混淆)。
- 通过向每根柱中加入5 ml丙酮并让其流穿,对柱进行预处理;随后分两次加入共10 ml氯仿(每次5 ml)。让第二次氯仿洗涤液流至筛板上方约1 mm处,然后关闭活塞。
- 通过向小瓶(步骤1结束时储存于15 ml小瓶中的样品)中加入0.5 ml氯仿并轻轻涡旋,重新溶解样品。使用巴斯德移液管将重溶样品转移至SPE柱中;重复操作共两次(每份样品总转移体积为1 ml氯仿)。
- 将脂质样品直接加至柱中心,让溶剂完全流入收集槽中。
- 通过向每根柱中加入5 ml氯仿洗脱中性脂质。让溶剂完全流入收集槽中。
- 通过向每根柱中加入5 ml丙酮洗脱糖脂。让溶剂完全流入收集槽中。
- 将柱架从槽中取出,用真空装置排空收集槽。将装有洁净且已标记离心管的支架插入槽中。将柱架重新放回槽上,确保标记的SPE柱与下方标记的离心管对齐。
- 通过向每根柱中加入5 ml甲醇,将磷脂洗脱至离心管中。待SPE柱在通风橱中完全干燥后丢弃。在压缩N2气流下于室温干燥磷脂组分。
- 用N2吹扫小管。拧紧PTFE衬垫盖,用铝箔包裹样品(以批次为单位包裹,而非单独包裹),于-20 ºC冰箱中保存,直至进行步骤3。
- 脂质甲基化(步骤3)
- 开启设定为37 ºC的恒温水浴。若尚未配制,使用1,000 ml容量瓶将57.1 ml冰乙酸溶解于1,000 ml dH2O中,配制1 M乙酸溶液。该溶液可在室温下保存三个月。
- 配制一批甲醇-KOH溶液。通过将0.45 g KOH溶解于40 ml甲醇中,配制0.2 M KOH溶液。根据步骤3预计的样品批次大小调整KOH和甲醇的用量。该溶液需每日新鲜配制,不可长期储存。
- 从冰箱中取出样品(步骤2后储存于离心管中的样品),使其恢复至室温。向每份样品中依次加入0.5 ml氯仿、0.5 ml甲醇,再加入1.0 ml甲醇-KOH溶液。用PTFE衬垫盖紧密封管口,轻轻摇匀。
- 将密封的样品置于37 ºC水浴中30分钟。确保水位至少高于样品液面1–2 mm。取出后让样品冷却。在样品水浴期间,用样品编号标记小玻璃小瓶(10 ml带PTFE衬垫盖的玻璃小瓶)。
- 向每份样品中加入2.0 ml正己烷并轻轻摇动。然后向每份样品中加入0.2 ml 1.0 M乙酸并再次摇匀;此时应出现明显的相分离。
- 向每份样品中加入2.0 ml dH2O以促进相分离。涡旋振荡30秒,然后在226 × g条件下离心2分钟。
- 使用短巴斯德移液管,将上层相转移至洁净的已标记10 ml小瓶中。注意避免转移下层(水相)。
- 向每份样品离心管中加入2.0 ml正己烷并轻轻摇动。涡旋振荡30秒,然后在226 × g条件下离心2分钟。
- 再次使用短巴斯德移液管,将上层相转移至已标记的10 ml玻璃小瓶中。
- 在N2气流下于室温蒸发已标记10 ml玻璃小瓶中的溶剂。拧紧PTFE衬垫盖,用铝箔包裹样品(以批次为单位包裹,而非单独包裹),于-20 ºC冰箱中保存,直至进行气相色谱(GC)分析。务必标记所有样品。
- 气相色谱(GC)分析
注意:单个磷脂脂肪酸(PLFA)的鉴定与定量通过连接火焰离子化检测器(FID)或质谱检测器(MS)的气相色谱仪完成。尽管以下说明针对GC-FID,但样品制备方法同样适用于GC-MS。GC-FID系统的示例配置包括一根25 m × 0.2 mm × 0.33 μm(5%苯基)甲基聚硅氧烷柱,温度程序如下:初始温度190 ºC,以10 ºC/min升至285 ºC,保持9.5分钟,再以60 ºC/min升至310 ºC,保持0.42分钟31。- 通过向100 ml正己烷中加入一滴MeC10:0(癸酸甲酯)配制GC内标(ISTD)溶液(记录加入质量至0.1 mg)。开启GC气体,然后启动GC。确保H2、N2和空气钢瓶已打开,并有足够的气体完成分析(H2压力不得低于500 psi)。
- 运行含混合脂肪酸的标准品及正己烷空白样,检查校准条件是否良好。单个脂肪酸的鉴定可通过与标准品保留时间比对进行人工指认,或使用商业软件自动指认31。在所有情况下,使用质谱检测器可实现明确鉴定2。
注意:良好的校准还表现为基线平坦,且正己烷冲洗中无污染。 - 将每份PLFA样品残渣(来自脂质甲基化步骤3的10 ml玻璃小瓶)溶解于150 µl ISTD溶液中,并转移至GC进样瓶(若预计样品响应较弱,如在砂质极高的土壤中,可改用50至75 μl)。
- 设定进样体积为2 µl。设定FID温度为300 ºC。使用250 ºC的进样口温度,H2作为载气(流速1.3 ml/min),分流比为30:1,运行样品。
结果
脂肪酸的命名格式为 X:YωZ,其中 X 代表碳原子数目,Y 代表双键数目,Z 代表从分子脂肪链(ω)末端开始的第一个双键的位置。后缀“c”和“t”分别表示顺式和反式几何异构体。前缀和后缀“a”和“i”分别指代前支链(anteiso)和异支链(iso)结构,Me 和 OH 分别表示甲基和羟基。
运行GC后,通过检查10:0峰来确认样品是否加入了足量的内标物。同时检查GC标准品的响应情况。 即,含有正己烷并添加了内标溶液的样品瓶;这些样品中不应出现其他色谱峰。内标响应在整个运行过程中应保持一致。
图1 展示了典型样品运行结果。正己烷溶剂峰通常在保留时间(RT)约1.8 min处出现;内标标准品峰(C10:0)出现在3.4 min,而C19:0的保留时间为16.2 min。气相色谱分析根据磷脂脂肪酸(PLFA)的碳链长度进行分离,碳链越长,洗脱越慢;例如,C18:0在14.4 min洗脱,而C16:0在10.8 min洗脱。此外,该分析方法还可根据不饱和度及双键位置对PLFA进行分离;例如,C18:0在14.4 min洗脱,而C18:1 9c和C18:1 7c分别在14.0 min和14.1 min洗脱。图1最后,具有相似链长和饱和度但分支构型不同的磷脂脂肪酸(anteiso) 与 iso)可以被分离;例如,C15:0i 和 C15:0a 的洗脱时间分别为 8.6 和 8.7 分钟(图1).
可将不同气相色谱峰的峰面积导入电子表格,以进一步处理气相色谱图信息。每种鉴定出的磷脂脂肪酸(PLFA)均使用以下公式进行定量(单位:nmol g-1 干土):
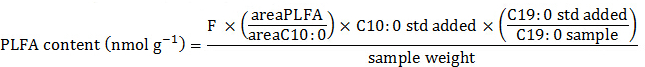
其中,F 是一个校正因子,用于考虑 FID 选择性以及脂肪酸之间的摩尔浓度差异32,areaPLFA 为每种已鉴定的 PLFA 的峰面积,areaC10:0 为内标物(MeC10:0)的峰面积,C10:0 std added 为每次 GC 分析前添加至每个样品中的内标物(nmol)量,比值(C19:0 std added / C19:0 sample)表示磷脂类(PC,C19:0/C19:O)替代标准品的回收率,sample weight 为加入原始样品离心管中用于提取 PLFA 的烘箱干燥土壤(g)的质量。
注意:不同峰下的面积根据气相色谱系统的不同,可表示为峰面积、响应值或百分比响应值。在与土壤磷脂脂肪酸(PLFA)表征相关的范围内,峰面积可视为与脂肪酸的重量呈线性正比关系;或者,也可应用较小的校正因子以校正火焰离子化检测器(FID)的选择性32。此外,由于结果最初以重量百分比形式表示,因此需要进行归一化处理以获得摩尔量。通过考虑各脂肪酸的分子量来调整摩尔数差异;此外,已有发表的表格32和商业软件31可用于辅助摩尔数的归一化计算。
可进一步计算出加入到每个样品中的内标物(ISTD)的量(nmol):
加入的C10:0标准品 = [ISTD] × V(STD added)
其中 [内标物] 是浓度(nmol l-1) 溶于己烷的癸酸甲酯(MeC10:0)(见步骤 3.4.1),以及 V(已添加 STD) 是每次进样前添加到各样品中的内标溶液的体积(L)即, 150 µl 根据步骤 3.4.4)。
在气相色谱分析过程中,每个样品中存在的十九烷酸(C19:0)含量(nmol)对应于:
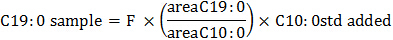
其中,areaC19:0 为 C19:0 的峰面积,而在线性脂肪酸(PLFA)提取方法开始时(参见步骤 3.1.3)向每个样品中添加的相应 C19:0 量(nmol)为:
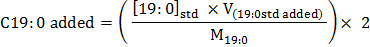
其中 [19:0]Std(mg L-1)为溶解于氯仿中的C19:0十九烷酸替代标准品的浓度(参见步骤3.1.3),V(19:0 std added) 为在PLFA提取方法开始时加入每个样品的已配制替代标准品的体积(参见步骤3.1.3),M19:0 为1,2-二十九烷酰基-sn-甘油-3-磷脂酰胆碱(PC(19:0/19:0))的分子量。
注意:1摩尔C19:0十九烷酸替代标准品在甲基化步骤后生成2摩尔C19:0,而C10:0标准品是在甲基化后加入的。
以下磷脂脂肪酸通常在土壤微生物群落分析中被排除:i) 属于 <14 C 和 >长度为20个碳,以及 ii) 峰面积占总量不足0.5%的PLFA。在排除这些PLFA后,可将剩余所有PLFA的响应值加总,以获得总PLFA生物量(nmol g⁻¹)-1 干土)。PLFA 数据的单变量分析(例如,ANOVA(根据所执行检验的前提假设,对数据进行适当的转换后)可用于比较不同样本组/处理间的总PLFA生物量和/或选定类群的PLFA生物量。例如, 图2 展示了不同PLFA类群的相对分布结果,例如直链饱和PLFA、在链中(10-甲基)或链端具有分支的饱和PLFA,以及单不饱和或多不饱和PLFA,以及总PLFA的总和(nmol g⁻¹)-1 (干土质量)。在此特定示例中,树木年龄(从样地1到样地3递减)被发现对总磷脂脂肪酸(PLFA)含量及不同PLFA类群的相对分布均产生影响。
为评估样品间PLFA组成的总体模式,可对所有PLFA进行多变量分析33。在进行所选的多变量分析之前,需根据统计检验的假设以及所研究的科学问题对PLFA数据进行必要的转换,例如,常采用赫林格(Hellinger)转换对数据进行相对化处理。图3展示了使用与图2相同数据进行的非度量多维尺度分析(NMDS)排序结果;NMDS是一种非参数的多变量分析方法,其基于样品间排序得分的相似性,将数据点投影至二维或三维空间中。
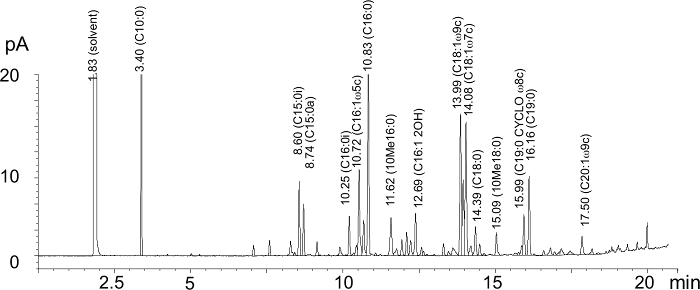
图 1. 典型的 GC-FID 色谱图。 本分析所用样品取自人工培育的褐色黑钙土。图中标注了代表性峰的保留时间及对应的PLFA(括号内)和峰面积(pA)。为清晰起见,图中未标出所有峰,但该样品共鉴定出33种PLFA。 请点击此处查看该图的放大版本。
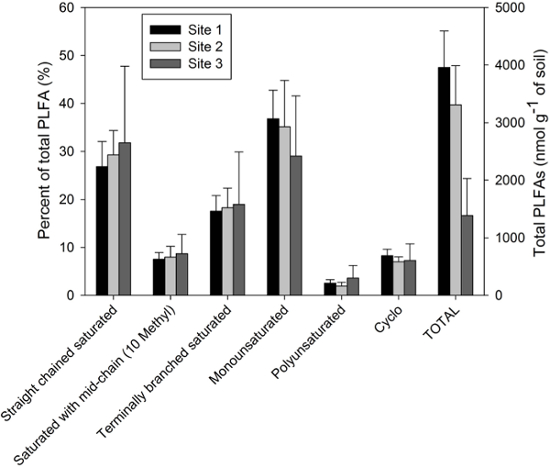
图2. 六类不同磷脂脂肪酸(PLFA)的相对丰度(占总PLFA的百分比)以及总PLFA生物量(nmol g-1 干土)。 本分析采用森林覆盖的淋溶土土壤样品。结果表明,采样点1的土壤总PLFA含量最高,该点位于树龄较老(> 50年)的树木下方,其次为中等树龄(25年)树木下的采样点2,最低的是位于最年轻树木(10年)下方的采样点3。相对而言,最年轻林地的饱和PLFA比例较高,而最老林地则含有更多的不饱和PLFA。误差线表示标准差。请点击此处查看该图的高清版本。
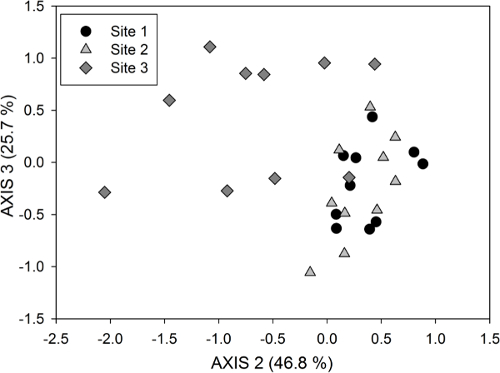
图3. 基于磷脂脂肪酸(PLFA)数据(采用总PLFA百分比)的非度量多维尺度分析(NMDS)排序图,展示三维解中第2轴和第3轴的结果。 该排序分析所用数据与图2相同。最年轻的样地(样地3)与另外两个较老的样地(样地2和样地3)明显分离,而后两者在PLFA微生物群落组成上存在重叠。括号内标明了每条轴所解释的PLFA群落数据变异比例;在三维NMDS解中,这两条轴共解释了72.5%的变异。请点击此处查看该图的放大版本。
讨论
为了尽量减少并避免对PLFA数据的误读,必须仔细筛选数据,因为土壤微生物群落中发现的一些PLFA也存在于单细胞和多细胞真核生物中,例如植物根系、藻类和土壤动物。此外,Archaea不含PLFA;相反,古菌的细胞膜由磷脂醚脂(PLELs)构成。因此,PLFA方法不能用于表征土壤中的古菌群落。
将特定的磷脂脂肪酸(PLFA)与具体的微生物类群关联时应谨慎行事(参见 Frostegård 及同事于 2011 年发表的文献)34 有关PLFA方法某些局限性的出色讨论,请参见)。相反,可能更合适的做法是,如之前所采用的那样, 图2根据其化学结构对磷脂脂肪酸(PLFAs)进行分类, 例如i)直链饱和磷脂脂肪酸,ii)中链(10-甲基)支链饱和磷脂脂肪酸,iii)末端支链饱和脂肪酸,iv)单不饱和磷脂脂肪酸,v)多不饱和磷脂脂肪酸,以及 vi)羟基脂肪酸。
样品重量可能需要根据特定土壤样品中可提取的磷脂脂肪酸(PLFA)含量进行调整。若在微生物活性较低的土壤中未调整提取所用土壤量,可能导致获得的PLFA响应信号(峰)数量不足,从而无法准确反映整体微生物群落结构。而在微生物活性较高的土壤中,若PLFA浓度较高,使用过多土壤样品则可能导致气相色谱柱超载,进而影响PLFA的准确定量。上述两种情况均需重新进行PLFA分析。一个合理的起始建议是:有机质土壤样品(如森林地表层)使用0.5 g,矿质土壤样品使用约3 g。由于可提取PLFA的量通常与土壤中有机碳含量呈正相关,因此可根据土壤碳含量对样品称样量进行调整。 例如,当碳含量为10-15%时,1克矿物土壤样品可能已足以获得良好的磷脂脂肪酸(PLFA)定量结果,而 >如果碳含量≤0.5%,可能需要使用5 g样品。在处理整批样品之前,最好先用少量样本进行预实验,以优化样品称重。
PLFA 实验方案和气相色谱分析的常见故障排除策略如下:如果气相色谱图基线过高,说明氢2 应更换气体钢瓶。如果色谱图中缺少溶剂或内标物峰,可能是样品进样存在问题(例如,堵塞的注射器,自动进样器故障,样品瓶为空或缺失,样品瓶定位错误)。如果在方法/样品空白中检测到超过三个峰,则表明空白受到污染,且该污染物极有可能同样出现在样品的气相色谱图中。应查找污染源(通常为水相介质),或至少确保从样品色谱图中去除与污染物对应的峰,并在磷脂脂肪酸(PLFA)数据的任何统计分析中排除这些峰。此外,当怀疑存在交叉污染时,建议在样品之间运行正己烷冲洗。若在正己烷冲洗中出现额外峰,则表明存在交叉污染即较重的组分从上一次运行中洗脱出来。
脂质特别容易发生氧化,在整个实验过程中需要特别注意保护样品免受空气和光照的影响,例如将样品避光保存并置于氮气环境中。所有样品和空白对照都必须含有足量的C19:0替代标准品。若在样品或空白对照中未检测到C19:0峰,则表明分析物回收率低或完全丢失。若样品中C19:0的响应信号明显低于方法/样品空白,则说明在磷脂脂肪酸(PLFA)分析流程中的某个环节发生了分析物损失。当出现C19:0回收率不佳的情况时,必须仔细审查和评估实验的各个环节,包括初始提取、样品转移的各个步骤、固相萃取(SPE)、脂肪酸甲基化、干燥、储存以及样品操作,以确定分析物损失的具体步骤。另一方面,某些土壤样品的提取过程本身可能产生C19:0,这种情况下替代标准品的回收率可能会被高估。虽然同时使用两种标准品(PC(19:0/19:0)和MeC10:0)并非绝对必要,但我们发现这在需要排查问题时非常有用。只要MeC10:0的响应信号足够,问题排查便可集中于气相色谱(GC)分析之前的步骤。
如前所述,在仅基于PLFA数据获得的生物标志物来解释生态学意义和生态系统关系时,必须谨慎,因为纯培养研究表明,分离的细菌菌株所含的PLFA类别各不相同。因此,生物标志物PLFA应被视为在进行更广泛的生态推断时,作为一系列证据中有用的补充。在文献中,个别PLFA已被提出并用作不同微生物类群的生物标志物。饱和PLFA通常用于代表革兰氏阳性细菌,单不饱和PLFA则用于代表革兰氏阴性细菌。公认的革兰氏阴性细菌生物标志物包括在ω5或ω7位置具有不饱和键的单不饱和脂肪酸,例如C16:1ω7、C18:1ω7和C18:1ω5。此外,环丙烷脂肪酸也可能代表革兰氏阴性细菌35。因此,革兰氏阴性细菌的PLFA可计算为A:1ω5 + A:1ω7 + A:0cyclo之和。公认的革兰氏阳性细菌生物标志物为末端分支的饱和脂肪酸,包括异分支型如C15:0i、C16:0i、C17:0i,或前异分支型如C15:0a和C17:0a。具有中链(10-甲基)分支的饱和PLFA,如10Me16:0和10Me18:0,是放线菌的典型特征36。因此,革兰氏阳性细菌的PLFA可计算为A:0(ISO、ANTEISO、10-甲基)之和。
许多与真菌PLFA相关的生物标志物通常是多不饱和的,但某些真菌生物标志物为单不饱和。例如,在真菌单不饱和生物标志物中,C16:1ω5已被确认为丛枝菌根真菌(AMF)的指示物37,C18:1ω9常见于腐生真菌,而外生菌根真菌通常含有C16:1ω9。二不饱和的C18:2ω6,9常与C18:1ω9同时出现,并且与真菌甾醇麦角固醇具有良好的相关性,表明C18:2ω6,9能够充分代表外生菌根真菌和腐生真菌38。三不饱和的C18:3ω6,9,12也已被用作真菌的生物标志物10;然而,C18:3ω6c也可存在于其他真核生物中,包括植物和藻类,尽管其通常不在细菌中发现。关于土壤原生生物,C20:4ω6c已被认定为原生生物的生物标志物39,但也有研究在通过光学显微镜确认存在活性原生生物种群的情况下,仍未能检测到C20:4ω6c40。
许多研究利用磷脂脂肪酸(PLFA)数据分析工具中的多变量排序技术,来回答与整个土壤微生物群落相关的生态学问题。采用这种方法时,一些作者选择从数据集中剔除稀有PLFA,即去除在少于5%样品中出现的PLFA4。正构饱和脂肪酸C16:0和C18:0在所有土壤微生物(包括原核生物和真核生物)中均含量丰富。因此,一些研究人员在进行统计分析前选择去除这些PLFA,理由是它们可能对土壤微生物群落结构的变化不够敏感——尽管在计算微生物生物量指数时仍需将C16:0和C18:0计入总PLFA含量。在统计分析方面,许多研究者倾向于采用非度量多维尺度分析(NMDS)进行排序,因为该方法特别适用于非正态分布的数据33。针对分类变量的其他分析方法还包括指示物种分析,该方法可将特定PLFA的出现与分类群组相关联;以及多响应置换过程(MRPP),可用于判断分配到不同分类群组中的微生物群落之间的相似性或差异性。此外,当需要评估多个实验变量或处理措施作为潜在解释变量的影响时,多变量回归树(MRT)尤为有用5(例如,土壤质地、湿度、复垦年限)。
一旦建立,PLFA 方法便是一种相对简单的分析方法,在量化土壤微生物对环境变化和人为干扰的响应时非常有用。尽管遗传指纹图谱等分子技术更适合对微生物群落进行详细表征,但 PLFA 方法的优势在于能够提供有关总微生物生物量的定量信息34。在我们的研究实验室中,一个人可以在 4 天内轻松处理 20 个样品,我们发现本文所介绍的方案是一种评估土壤生物学质量的可靠且可重复的技术。
通过将磷脂脂肪酸(PLFA)方法与稳定同位素分析相结合,其应用能力可得到显著扩展41, 42。具体而言,向土壤中添加13C标记的底物,可通过对单个PLFA进行同位素分析,定量测定底物在土壤微生物中的掺入情况41。此外,该方法在揭示土壤食物网中营养关系方面也显示出极大的应用前景42。
披露
作者无任何利益冲突需要披露。
致谢
本工作部分由加拿大自然科学与工程研究理事会资助。作者感谢Jela Burkus、Donna Macey和Jennifer Lloyd在技术方面的专业支持以及对本方法优化所做出的贡献。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Pierce Reacti-Vap III-蒸发器气体歧管,带27个端口 | 用于步骤1-3 | ||
| 压缩氮气 | Praxair | Ni-T | 危险:仅在培训后使用,尽量减少接触和使用;用于步骤1-3 |
| 一次性离心管及带聚四氟乙烯衬垫的盖子 | Fisher Scientific | 05-569-3 | 用于步骤1(每个样品1个)和步骤2(每个样品1个) |
| 一次性玻璃长颈巴斯德吸管 | Fisher Scientific | 13-678-20D | 用于步骤1(每个样品2个) |
| 一次性玻璃短颈巴斯德吸管 | Fisher Scientific | 13-678-4 | 用于步骤2(每个样品1个)、步骤3(每个样品1个)、气相色谱分析(每个样品1个),以及PLFA方法中每种溶液分配时各使用1个(每批样品约10个) |
| 弹性绑带 | Grand & Toy | 42199 | 每个样品冻干时使用1个 |
| 冻干机 - Labconco 7806002 和 7753000 | 用于PLFA分析样品的制备——使用实验室现有的任意型号 | ||
| 冷冻柜(-20 °C,-80 °C) | Revco | ULT2586-5-A36 | -80 °C用于冷冻新采集的土壤样品,-20 °C用于PLFA分析三个步骤结束后的样品储存 |
| 气相色谱仪 - Agilent 6890 Series 毛细管气相色谱仪(GC;Wilmington, DE),配备50 m Ultra 2(5%-苯基)-甲基聚硅氧烷色谱柱 | Agilent Technologies | 用于气相色谱分析,也可使用其他型号的气相色谱仪(需1台) | |
| 分析柱 | Agilent Technologies | 19091B-105 | |
| 气相色谱仪进样衬管 | Agilent Technologies | 5183-4692 | 用于气相色谱分析(每个样品1个) |
| 气相色谱仪样品瓶及瓶盖 | Agilent Technologies | 5188-6592 | 用于气相色谱分析(每个样品1个) |
| 己烷 | Fisher Scientific | H292-4 | 危险:仅在通风橱中使用,阅读材料安全数据表(MSDS),尽量减少使用并穿戴适当的个人防护装备(PPE);每个样品总用量 = 4 ml(2.0 ml + 2.0 ml(步骤3)) |
| 热水浴 - Isotemp 220 | Fisher Scientific | 用于步骤3(每批样品1台) | |
| Kimwipe 擦拭纸 | Fisher Scientific | 06-666-2 | 用于冻干样品 |
| KOH,ACS级 | Fisher Scientific | P250-500 | 危险:仅在通风橱中使用,阅读材料安全数据表(MSDS),尽量减少使用并穿戴适当的个人防护装备(PPE);用于制备柠檬酸缓冲液(用于步骤1)和甲醇-KOH溶液(步骤3) |
| 用于离心管的Lab quake翻转式振荡器 | Barnstead/Thermolyne | 3,625,485 | 用于步骤1(每批样品1台,需具备适当容纳容量) |
| MeC10:0 癸酸甲酯内标物 | Sigma-Aldrich | 299030-2.5G | 用于气相色谱分析 |
| 甲醇 | Fisher Scientific | A454-4 | 危险:仅在通风橱中使用,阅读材料安全数据表(MSDS),尽量减少使用并穿戴适当的个人防护装备(PPE);每个样品总用量 = 15.5 ml(5 ml + 5 ml(步骤1)+ 5 ml(步骤2)+ 0.5 ml(步骤3)) |
| MIDI峰识别软件 | MIDI, Inc., Newark, DE | 用于解析气相色谱分析结果 | |
| MIDI微生物鉴定系统校准标准混合物 | Lab Sphere Inc | 1200-A | 用作TSBA 40的校准混合物 |
| 腈类手套 | Fisher Scientific | 27-058-52 | 进行PLFA实验操作时必须始终佩戴 |
| pH计 - Accumet XL200 | Fisher Scientific | 用于制备柠檬酸缓冲液 | |
| 移液器(0.2 - 2 ml)- Socorex - Calibra Digital 832 Macropipette | Socorex | 832.02 | 在所有步骤中使用(每个样品1个) |
| 250 µl 气密式注射器 | Hamilton | 1725 | 用于气相色谱分析(每个样品1个) |
| 银盾手套 | Sigma-Aldrich | Z529575 | 处理氯仿时使用 |
| 固相萃取(SPE)柱 | Agilent Technologies | 5982-2265 | 用于步骤2(每个样品1个) |
| 带旋塞的SPE玻璃柱支架并连接真空装置 | Sigma-Aldrich | 用于步骤2(每批样品1套) | |
| 涡旋振荡器 - Barnstead International Maxi Mix II- M37615 | Barnstead International | M37615 | 用于步骤1-3 |
| 水 - 超纯水和Chromosolv HPLC级 | Sigma-Aldrich | 270733-4L | 整个分析过程中使用 |
| Whirl-Pak® 袋 | Fisher Scientific | 01-812-120 | 用于样品采集——每份采集的样品需2个袋子 |
参考文献
- Zelles, L. Fatty acid patterns of phospholipids and lipopolysaccharides in the characterisation of microbial communities in soil: a review. Biol. Fert. Soils. 29, 111-129 (1999).
- ISO/TS 29843-1: 2010-Soil quality-determination of soil microbial diversity. , ISO/TC. Geneva, Switzerland. Available from: http://www.iso.org/iso/home.htm (2010).
- Swallow, M. J. B., Quideau, S. A. Moisture effects on microbial communities in boreal forest floors are stand-dependent. Appl. Soil Ecol. 63, 120-126 (2012).
- McIntosh, A. C. S., Macdonald, S. E., Quideau, S. A. Linkages between the forest floor microbial community and resource heterogeneity within mature lodgepole pine forests. Soil Biol. Biochem. 63, 61-72 (2013).
- Card, S. M., Quideau, S. A. Microbial community structure in restored riparian soils of the Canadian prairie pothole region. Soil Biol. Biochem. 42, 1463-1471 (2010).
- McKinley, V. L., Peacock, A. D., White, D. C. Microbial community PLFA and PHB responses to ecosystem restoration in tallgrass prairie soils. Soil Biol. Biochem. 37, 1946-1958 (2005).
- Bossio, D. A., Scow, K. M., Gunapala, N., Graham, K. J. Determinants of soil microbial communities: effects of agricultural management, season, and soil type on phospholipid fatty acid profiles. Microbial Ecol. 36, 1-12 (1998).
- Hannam, K. D., Quideau, S. A., Kishchuk, B. E. Forest floor microbial communities in relation to stand composition and timber harvesting in northern Alberta. Soil Biol. Biochem. 38, 2565-2575 (2006).
- Pettersson, M., Bååth, E. The rate of change of a soil bacterial community after liming as a function of temperature. Microbial Ecol. 46, 177-186 (2003).
- Degrood, S. H., Claassen, V. P., Scow, K. M. Microbial community composition on native and drastically disturbed serpentine soils. Soil Bio.l Biochem. 37, 1427-1435 (2005).
- Quideau, S. A., Swallow, M. J. B., Prescott, C. E., Grayston, S. J., Oh, S. -W. Comparing soil biogeochemical processes in novel and natural boreal forest ecosystems. Biogeosciences. 10, 5651-5661 (2013).
- Hahn, A. S., Quideau, S. A. Long-term effects of organic amendments on the recovery of plant and soil microbial communities following disturbance in the Canadian boreal forest. Plant Soil. 363, 331-334 (2013).
- Swallow, M., Quideau, S. A., MacKenzie, M. D., Kishchuk, B. E. Microbial community structure and function: The effect of silvicultural burning and topographic variability in northern Alberta. Soil Biol. Biochem. 41, 770-777 (2009).
- Pennanen, T. Microbial communities in boreal coniferous forest humus exposed to heavy metals and changes in soil pH-a summary of the use of phospholipid fatty acids. Biolog (R) and H-3-thymidine incorporation methods in field studies. Geoderma. 100, 91-126 (2001).
- Margasin, R., Hämmerle, M., Tscherko, D. Microbial activity and community composition during bioremediation of diesel-oil-contaminated soil: effects of hydrocarbon concentration, fertilizers, and incubation time. Microbial Ecol. 53, 259-269 (2007).
- Štursová, M., Šnajdr, J., Cajthaml, T., Bárta, J., Šantrůčková, H., Baldrian, P. When the forest dies: the response of forest soil fungi to a bark beetle-induced tree dieback. ISME J. 8, 1920-1931 (2014).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can. J. Biochem. Phys. 37, 911-917 (1959).
- White, D. C., Davis, W. M., Nickels, J. S., King, J. D., Bobbie, R. J. Determination of the sedimentary microbial biomass by extractible lipid phosphate. Oecologia. 40, 51-62 (1979).
- Tunlid, A., Hoitink, H. A. J., Low, C., White, D. C. Characterization of bacteria that suppress Rhizoctonia damping-off in bark compost media by analysis of fatty acid biomarkers. Appl. Environ. Microb. 55, 1368-1374 (1989).
- Bobbier, J., White, D. C. Characterization of benthic microbial community structure by high resolution gas chromatography of fatty acid methyl esters. Appl. Environ. Microb. 39, 1212-1222 (1980).
- Tunlid, A., et al. Determination of phospholipid ester-linked fatty acids and poly P-hydroxybutyrate for the estimation of bacterial biomass and activity in the rhizosphere of the rape plant Brassica napus (L.). Can. J. Microbiol. 31, 1113-1119 (1985).
- Frostegård, A., Tunlid, A., Bååth, E. Microbial biomass measured as total lipid phosphate in soils of different organic content. J. Microbiol. Meth. 14, 151-163 (1991).
- Frostegård, Å, Bååth, E., Tunlid, A. Shifts in the structure of soil microbial communities in limed forests as revealed by phospholipid fatty acid analysis. Soil Biol. Biochem. 25, 723-730 (1993).
- Burns, R. G. Soil Biology and Biology Citation Classic X. Soil Biol. Biochem. 43, 1619-1620 (2011).
- Zelles, L., Bai, Q. Y., Beck, T., Beese, F. Signature fatty acids in phospholipid and lipopolysaccharides as indicators of microbial biomass and community structure in agricultural soils. Soil Biol. Biochem. 24, 317-323 (1992).
- Zelles, L., Bai, Q. Y. Fractionation of fatty acids derived from soil lipids by solid phase extraction and their quantitative analysis by GC-MS. Soil Biol. Biochem. 25, 495-507 (1993).
- White, D. C., Ringelberg, D. B. Signature lipid biomarker analysis. Techniques in Microbial Ecology. Burlage, R. S., Atlas, R., Stahl, D., Geesey, G., Sayler, G. , Oxford University Press. New York. 255-272 (1998).
- Bird, J. A., Herman, D. J., Firestone, M. K. Rhizosphere priming of soil organic matter by bacterial groups in a grassland soil. Soil Biol. Biochem. 43, 718-725 (2011).
- Waldrop, M. P., Firestone, M. K. Microbial community utilization of recalcitrant and simple carbon compounds: impact of oak-woodland plant communities. Oecologia. 138, 275-284 (2004).
- Chowdhury, T. R., Dick, R. P. Standardizing methylation method during phospholipid fatty acid analysis to profile soil microbial communities. J. Microbiol. Meth. 88, 285-291 (2012).
- Buyer, J. S., Sasser, M. High throughput phospholipid fatty acid analysis of soils. Appl. Soil Ecol. 61, 127-130 (2012).
- Christie, W. W., Han, X. Gas chromatographic analysis of fatty acid derivatives. Lipid analysis, isolation, separation, identification, and lipidomic analysis. , Woodhead Publishing Ltd. Cambridge, UK. 159-180 (2010).
- McCune, B., Grace, J. B. Analysis of ecological communities. , MjM Software Design. Oregon. 300(2002).
- Frostegård, A., Tunlid, A., Bååth, E. Use and misuse of PLFA measurements in soils. Soil Biol. Biochem. 43, 1621-1625 (2011).
- Högberg, M. N., Högberg, P., Myrold, D. D. Is microbial community composition in boreal forest soils determined by pH, C-to-N ratio, the trees, or all three. Oecologia. 150, 590-601 (2007).
- Brennan, P. Mycobacterium and other actinomycetes. Microbial Lipids. Ratledge, C., Wilkinson, S. , Academic Press. London. 203-298 (1988).
- Olsson, P. A. Signature fatty acids provide tools for determination of the distribution and interactions of mycorrhizal fungi in soil. FEMS Microbiol. Ecol. 29, 303-310 (1999).
- Frostegård, Å, Bååth, E. The use of phospholipid fatty acid analysis to estimate bacterial and fungal biomass in soil. Biol. Fert. Soils. 22, 59-65 (1996).
- Myers, R. T., Zak, D. R., White, D. C., Peacock, A. Landscape-level patterns of microbial community composition and substrate use in upland forest ecosystems. Soil Sci. Soc. Am. J. 65, 359-367 (2001).
- Swallow, M. J. B., Quideau, S. A., Norris, C. E. Ciliate dependent production of microbial anthranilic acid occurring within aspen litter. Soil Biol. Biochem. 60, 113-121 (2013).
- Norris, C. E., Quideau, S. A., Macey, D. E. Processing of 13C glucose in mineral soil from aspen, spruce, and novel ecosystems in the Athabasca Oil Sands Region. Appl. Soil Ecol. 71, 24-32 (2013).
- Ruess, L., Chamberlain, P. M. The fat that matters: Soil food web analysis using fatty acids and their carbon stable isotope signature. Soil Biol. Biochem. 42, 1898-1910 (2010).
重印与许可
