斑马鱼是研究肌肉功能和疾病的理想模型。在早期胚胎发育过程中,斑马鱼开始出现规律的肌肉收缩,产生节律性游泳行为,当肌肉功能受到干扰时,该行为会发生改变。本文描述了一种触碰诱发反应和运动能力检测方法,通过评估游泳表现来反映肌肉功能。
方法文章
利用触觉诱发反应和运动能力检测评估斑马鱼肌肉功能与性能
* These authors contributed equally
本文内容
摘要
摘要
斑马鱼的肌肉发育与哺乳动物系统高度保守,使其成为研究肌肉功能和疾病的理想模型。许多影响骨骼肌功能的肌病可在斑马鱼胚胎发育的最初几天内快速、简便地进行评估。受精后24小时(hpf),野生型斑马鱼会自发收缩尾部肌肉;到48 hpf时,斑马鱼表现出受控的游泳行为。这些运动频率的降低或其他改变可能提示存在骨骼肌功能障碍。为了分析游泳行为并评估斑马鱼早期发育阶段的肌肉功能,我们采用触碰诱发的逃避反应和运动能力检测两种方法。
触诱发逃反应实验可用于评估由快肌纤维收缩引起的短时爆发性运动中的肌肉功能。在外界刺激(本实验中为轻敲头部)作用下,受精后2天(dpf)的野生型斑马鱼通常表现出强烈的爆发式游泳行为,并伴随急剧转向。本方法通过测量爆发游泳过程中的最大加速度来量化骨骼肌功能,该加速度与肌肉收缩产生的力成正比。
相比之下,斑马鱼幼体早期发育过程中的运动行为检测可用于评估肌肉在持续活动期间的功能表现。通过使用追踪系统监测其游泳行为,我们能够自动计算6日龄斑马鱼的活动频率和游动距离,这些指标反映了其骨骼肌功能。游泳能力的测量对于骨骼肌功能相关疾病模型的表型评估,以及影响骨骼肌功能的突变体或化学处理的高通量筛选具有重要价值。
引言
在过去的十年中,斑马鱼被越来越多地用于研究肌肉细胞生物学和疾病。斑马鱼胚胎发育迅速且为体外发育,加之其组织透明的特性,使得肌肉的形成、生长和功能能够被直接观察。斑马鱼的肌肉发育过程在进化上高度保守,因此成功建立了多种肌肉疾病的模型,包括肌营养不良症和先天性肌病1-8。对斑马鱼模型的深入研究不仅为这些疾病的病理生物学提供了新的见解,也为有效疗法的筛选提供了平台6,9-13。
对肌肉疾病斑马鱼模型的分析依赖于可靠且可重复的检测方法来测量肌肉功能。先前的研究已成功通过电刺激固定在力传导系统上的斑马鱼,测量了3至7天龄(dpf)斑马鱼躯干肌肉的产力能力14。这种方法可提供详细的力值测量数据,但不太适用于高通量实验;而在游泳过程中评估肌肉功能则具有优势。在2天龄时,斑马鱼的肌肉已完全具备功能,能够对外界刺激产生爆发式游泳运动。触觉诱发逃逸反应实验用于测量爆发式游泳过程中的加速度,该加速度可作为收缩力的评估指标。
在肌病患者中,最常用的肌肉功能评估方法之一是6分钟步行试验,该试验记录患者在坚硬平坦地面上行走的总距离15,16。我们已将类似的方法应用于测量6日龄斑马鱼幼鱼的肌肉功能,即在10分钟内监测每条幼鱼的总游泳距离及其完成的总运动次数。该过程采用自动化追踪系统进行,可对肌肉功能提供可靠且高通量的测量结果。这两种肌肉功能检测方法均具有高度可重复性,并已被用于量化斑马鱼肌病模型中肌肉功能的差异8。
方案
1. 触发反应检测实验
- 2 dpf 胚胎触诱发应实验的制备
- 确保实验在每天相同的时间段进行,因为活动水平在一天中可能有显著变化17,18。
注意:实验应采用盲法进行,并对测试顺序进行随机化,以尽量减少实验偏差。 - 为不同品系的鱼分配编号,编号对执行实验的人员保密。随后,使用可免费获取的在线工具生成一个随机列表,用于确定测试顺序。
- 在测试前至少一小时,用精细镊子在卵膜上撕开一个小孔,轻轻将卵膜剥离以完成去膜操作。清除培养皿中的任何残留物后,将其放回 28 °C 培养箱中。
- 确保实验在每天相同的时间段进行,因为活动水平在一天中可能有显著变化17,18。
- 执行触诱发应实验
- 在开始测试前至少 15 分钟,将载物台加热至 28 °C。
注意:该载物台具有温度控制功能,在整个测试过程中将保持在 28 °C。温度会影响胚胎活动,因此维持恒定温度至关重要。若无加热载物台,则应监测水温,并确保所有实验在相同温度下进行。 - 将盛有胚胎培养液(5 mM NaCl、0.17 mM KCl、0.33 mM CaCl2、0.33 mM MgSO4 溶于水)的培养皿置于照明载物台上,并将高速摄像机安装在培养皿上方。
- 启动摄像软件(例如本文所述的 Stream Pix 5),在 "workspace" 选项卡下选择每秒 1,000 帧(1,000 fps)作为采集速度,以确保能够记录鱼类快速游泳的动作。
- 每次处理一个胚胎,将其放置在培养皿中央,确保斑马鱼在视野中清晰可见。
注意:若胚胎在实验开始前游走,应更换另一个胚胎,因为重新捕捉和定位可能导致其对刺激脱敏,且重复的爆发式反应可能在某些疾病模型中诱发肌肉无力。 - 点击 "record" 按钮开始录像,并用钝针轻轻触碰胚胎头部顶部以施加机械感觉刺激。
- 当胚胎游出视野或恢复静止后停止录像。
注意:机械刺激引发的逃逸爆发反应中,加速度在最初 0.2 秒内即达到峰值。因此,必须确保在逃逸反应的前 0.2 秒内,鱼类始终处于视野范围内。使用步骤 1.2.3 中描述的软件,数据将自动保存为 .avi 视频文件。也可使用其他免费视频采集软件,如 Free Video Capture 或 Softonic,均可免费下载。 - 将胚胎移回新的培养皿中,并选择下一个胚胎进行测试。每组至少测试 15 条鱼。
- 在开始测试前至少 15 分钟,将载物台加热至 28 °C。
- 游泳行为的量化分析
- 为量化游泳行为,启动软件并选择 "Single Larvae Locomotion without background subtraction" 模块,以打开已保存的 .avi 视频文件。
- 从菜单栏中使用 "freehand" 或 "polygon" 工具,选择视频中用于分析的区域。确保所选区域包含鱼的初始位置及其将要游动的范围,同时排除探针所在区域。软件将自动追踪目标区域内鱼类的运动轨迹。
- 为执行分析,点击菜单栏中的 "experiment" 并选择 "execute"。当提示时,将原始数据分析文件(.phr 格式)保存至指定位置。保存后,点击 "start" 开始分析。分析完成后,点击 "stop"(位于 "experiment" 下拉菜单下)结束分析。结果窗口将自动显示。
- 向右滚动以获取 "maximum acceleration" 值。如需导出数据,可关闭结果窗口,然后点击 "export instantaneous results" 按钮(位于 "results" 下拉菜单下),选择相应的原始数据分析文件并点击打开。系统将在目标文件夹中生成一个可用电子表格程序打开的文本文件。
- 对每条鱼重复上述过程,并计算各品系的平均最大加速度(见 图 1)。
注意:除本文所述软件外,也可使用其他类似软件(如免费的 ImageJ 软件)提取相关运动数据。可使用 3D Particle Tracker 插件来追踪游泳轨迹。
2. 运动能力检测——10分钟游泳实验
- 6 dpf 胚胎游泳分析的准备
- 如有需要,根据所需基因型对胚胎进行分选,例如通过观察荧光蛋白的表达或表型特征,并将其放入单独的培养皿中(每皿 25–30 个胚胎)。或者,也可在完成运动行为检测后确定基因型。
- 在 3 dpf 时,重新检查培养皿,移除未孵化的胚胎和碎片,并将培养皿放回 28 °C 培养箱,直至 6 dpf。
- 所有品系的测试应在上午 9 点至 12 点之间进行,此时间段内斑马鱼幼鱼活动最为活跃。应随机化野生型和突变型样本的测试顺序及其在孔板中的位置,以尽量减少昼夜节律差异和其他实验偏差的影响。
注意:实验间的测试时间必须保持一致,因为幼鱼活动水平在一天中可能存在显著变化。 - 测试前至少 30 分钟,将幼鱼转移至 48 孔板中,每孔放置一条幼鱼。转移后加水至液面略低于孔口顶部,确保无气泡产生。将孔板放回 28 °C 培养箱中。
- 将孔板从培养箱中取出,在光照条件下适应 5 分钟后再进行测试。
- 进行运动行为检测
- 将 48 孔板放入记录室,记录室配备可每秒捕获最多 60 帧的红外数码相机,以便在黑暗中检测幼鱼。检查所有孔是否位于运动分析软件的圆形网格内,并确认所有幼鱼均能被清晰识别。
- 启动软件并选择“tracking”模块。在“file”菜单下点击“generate new protocol”,编辑实验所用孔的数量。通过点击"parameters"下拉菜单,选择"protocol parameters",然后进入"time"选项卡,将实验持续时间和积分周期均设置为 10 分钟。在同一"protocol parameters"对话框中,点击"options"选项卡,确保勾选"Numeriscope"复选框,随后关闭"protocol parameters"对话框。
- 为设定记录区域,先高亮整个网格,然后双击其中一个孔。点击“draw areas”按钮,围绕左上、右上和左下三个孔绘制区域,然后点击“build”,使软件自动确定每个孔的位置。同时绘制标尺并点击“apply to group”。完成后,再次点击“draw areas”按钮。
- 通过滑动"detection threshold"滑块,目视确定检测阈值,使仅鱼体运动区域被高亮,背景无信号干扰。
注意:不同品系的检测阈值可能不同,因此每次测试新品系时均需重新确定阈值。在本研究展示的代表性数据中,采用的检测阈值为 25 mm/sec。 - 开始测试前,输入用于检测静止、小幅运动和大幅运动的运动阈值。
注意:在本研究展示的代表性数据中,静止阈值设为 6 mm/sec,活动爆发阈值设为 30 mm/sec。这些阈值用于定义被判定为活跃运动的最小运动量,以及被判定为爆发性活动所需的运动水平,从而将活动分为小幅度(活跃但低于爆发阈值)和大幅度(超过爆发活动阈值)运动。阈值可根据所分析鱼品系的具体活动水平进行调整。
注意:尽管该检测可在光照或黑暗条件下进行,但已有研究表明斑马鱼幼鱼在黑暗中更为活跃18。 - 通过点击"parameters"下拉菜单中的"light driving settings"按钮,将记录室内的光照强度设为 0%。在弹出的对话框中,添加所需的光照设置。
注意:在测试过程中,可设定记录室内光照强度的开启与关闭,以刺激幼鱼活动。 - 关闭记录室门,开始视频录制。
- 游泳行为的量化分析
- 实验完成后,点击"experiment"下拉菜单中的"stop"按钮,系统将显示包含所有结果的对话框。
- 如需在 Excel 中查看这些结果,点击"open containing folder",在弹出的文件夹中打开相应的 Excel 文件。关键参数包括"smlct"(小幅运动次数)、"larct"(大幅运动次数)、"smldist"(鱼在小幅运动中移动的总距离)和"lardist"(鱼在大幅运动中移动的总距离)。
注意:记录结束后,软件还会生成另外两个输出文件,分别为一个.avi文件(包含 10 分钟记录的视频)和一个.png图像文件(包含 10 分钟实验期间运动行为的可视化图示;见图 2)。 - 在计算出运动参数后,回放.avi和.png文件,以确认所计算的运动参数是否准确反映了鱼的游泳行为(见图 3)。
注意:除本处所述软件外,也可使用如免费的 ImageJ 软件等其他分析工具来追踪运动行为。
结果
触诱发应实验可用于测定游泳运动的速度和加速度,其为肌肉力量的相对度量指标。在机械刺激作用下,例如对头部进行轻微敲击,2 dpf野生型斑马鱼会表现出快速游泳反应。本研究采集并分析了两种斑马鱼肌病模型的视频数据:Tg(ACTA1D286G-eGFP),一种表现为显著肌无力的杆状体肌病模型,以及杜氏肌营养不良症模型,该模型在5 dpf时已报道存在严重肌肉缺陷19,20。典型触诱发应实验的视频图像见图1A。斑马鱼的加速度在爆发式逃逸游泳反应的前0.2秒内达到峰值(图1B)。该峰值最大加速度可反映骨骼肌产生力量的能力。将各品系的最大加速度值取平均,得到平均最大加速度值(±均值标准误):Tg(ACTA1D286G-eGFP):均值 = 276.0 ± 28.8 m/sec2,n = 3次独立重复实验,共包含15条个体鱼;野生型对照:均值 = 500.8 ± 50.28 m/sec2,n = 3次独立重复实验,共包含15条个体鱼;dmdpc2-/-突变体:均值 = 249.9 ± 19.1 m/sec2,n = 3次独立重复实验,共包含12–19条个体鱼;dmdpc2+/-杂合子:均值 = 235.9 ± 8.7 m/sec2,n = 3次独立重复实验,共包含16–27条个体鱼;dmdpc2+/+野生型纯合子:均值 = 230.9 ± 8.7 m/sec2,n = 3次独立重复实验,共包含8–27条个体鱼 (图1C)。如预期,Tg(ACTA1D286G-eGFP)斑马鱼的最大加速度显著降低,表明肌肉功能减弱,这与小鼠模型及患者数据一致8,21,22。然而,dmdpc2-/-突变体斑马鱼在2 dpf时最大加速度无明显差异,这与肌肉缺陷在3 dpf后才可被检测到的结果一致20(图1D)。
在6 dpf时进行运动能力检测,以确定斑马鱼品系的活动情况及游泳距离,作为肌肉功能的指标。检测完成后,生成了在十分钟检测期间游泳运动的示意图,其中红线和绿线分别代表缓慢运动和快速运动时段,黑线代表静止时段(图2)。单个野生型斑马鱼表现出较高的活动性,几乎无静止时段,而Tg(ACTA1D286G-eGFP)斑马鱼在检测期间活动较少(图2B)。
通过计算每条鱼的运动次数和游泳距离的个体数值的平均值,对游泳行为进行量化(图3)。与各自的对照组相比,Tg(ACTA1D286G-eGFP) 鱼(图3A 和 3B)和 dmdpc2-/- 突变体鱼(图3C 和 3D)的平均运动次数和游泳距离均显著降低:Tg(ACTA1D286G-eGFP) 鱼:平均运动次数 = 94.3 ± 13.6,平均游泳距离 = 112.9 ± 18.4 mm,n = 3 次独立重复实验,共包含 45 条鱼;野生型对照:平均运动次数 = 177.4 ± 14.0,平均游泳距离 = 300.2 ± 22.8 mm,n = 3 次独立重复实验,共包含 45 条鱼;dmdpc2-/- 突变体:平均运动次数 = 163.3 ± 30.0,平均游泳距离 = 298.4 ± 60.37 mm,n = 3 次独立重复实验,共包含 12–20 条鱼;dmdpc2+/- 杂合子:平均运动次数 = 362.3 ± 38.8,平均游泳距离 = 660.3 ± 86.1 mm,n = 3 次独立重复实验,共包含 17–27 条鱼;dmdpc2+/+ 野生型纯合子:平均运动次数 = 341.9 ± 91.6,平均游泳距离 = 574.3 ± 170.9 mm,n = 3 次独立重复实验,共包含 8–25 条鱼。
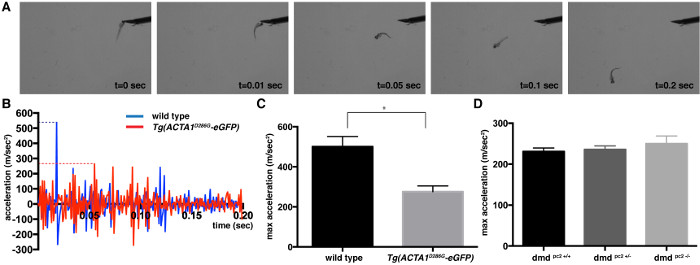
图1:2天龄斑马鱼胚胎触碰诱发反应检测的定量分析 (A) 2 dpf 时期对照组斑马鱼在触碰诱发实验中的快照图像。 (B单次动作前0.2秒的加速度曲线 Tg(ACTA1D286G-eGFP (红色)和单个对照组(蓝色)斑马鱼在施加触觉刺激后的反应。最大加速度由虚线表示。C, D最大加速度的量化(m/sec)2) 记录自触觉诱发反应实验的(C) Tg(ACTA1D286G-eGFP 斑马鱼和 (Ddmdpc2-/- 突变型鱼与对照组斑马鱼在2 dpf时的比较。误差线表示 ± 3 次重复实验的标准误,*p <0.05. 请点击此处以查看此图的放大版本。
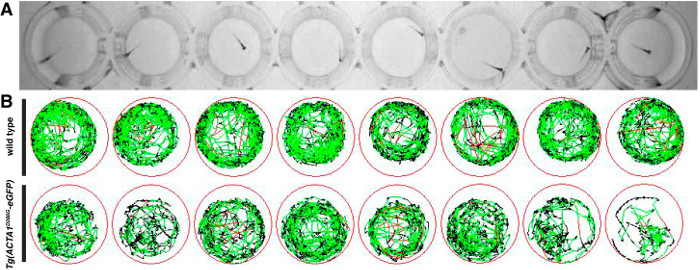
图2: 斑马鱼胚胎运动行为检测示意图。 (A)将斑马鱼胚胎置于48孔板中,并使用红外数码相机从上方记录其运动情况。 (B)测试期间斑马鱼运动的示意图,其中红线表示快速运动,绿线表示慢速运动,黑线表示无活动状态(由软件中设定的检测阈值确定)。 请点击此处查看该图的放大版本。

图3:6日龄斑马鱼幼鱼运动分析的定量结果。 在6 dpf时,Tg(ACTA1D286G-eGFP) 斑马鱼与对照组斑马鱼相比,其(A)运动次数和(B)移动距离的定量分析结果。在6 dpf时,dmdpc2-/- 突变型斑马鱼与对照组斑马鱼相比,其(C)运动次数和(D)移动距离的定量分析结果。误差线表示3次重复实验的±SEM,*p <0.05,**p <0.01。请点击此处查看该图的放大版本。
讨论
多种不同的动物模型,包括小鼠、狗、斑马鱼、果蝇和线虫,已帮助我们深入了解肌肉疾病的遗传与分子基础,并推动了相关治疗策略的开发。斑马鱼在肌肉疾病研究中具有多项优势。斑马鱼提供了一个可在适宜生理环境中评估复杂肌肉模式的可遗传操控系统,而这一点在其他模型中难以实现。 体外 培养系统。与其他脊椎动物模型不同,该鱼类繁殖数量多,且具有良好的光学通透性,有利于实现快速、高通量的 体内 化学筛选与遗传筛选
本文描述了斑马鱼运动检测方法的开发,旨在提供一种高通量且自动化的手段,用于评估斑马鱼胚胎发育过程中的肌肉功能。对于这两种检测方法,必须认识到昼夜节律和外部环境刺激会显著影响斑马鱼的游泳行为17,18。对同一条斑马鱼进行重复测试还会导致习惯化,从而降低其对触觉刺激的反应性23。因此,为了在不同实验之间获得可重复的结果,每条斑马鱼胚胎应仅测试一次,测试时间、光照条件应保持一致,且水温必须严格控制。
通过在2 dpf时进行触碰诱发分析,我们可以直接测量爆发式游泳动作的最大加速度,该加速度与肌肉力量成正比。此前在斑马鱼中使用的技术是将胚胎两端固定于实验装置上,随后通过电场刺激肌肉收缩,并测量肌肉的产力能力14。尽管该方法可测量幼体肌肉的产力潜力,但它无法测量幼体肌肉在游泳过程中实际产生的力量。因此,我们开发了一种方法,用于间接评估幼体在正常游泳运动中所产生的力量,以提供对肌肉整体健康状况的综合评价。该高速视频系统能够以每秒1,000帧的帧率记录单条斑马鱼的运动,可用于识别肌肉功能中微小但具有显著意义的差异,而这些差异仅凭肉眼无法直接分辨。值得关注的是,此前报道的电刺激下肌肉产力能力的变化,是否与游泳表现的变化具有相关性。
此外,触觉诱发反应实验还可用于评估游泳运动学参数,例如游泳过程中身体波动的形态和速度24,从而对运动行为进行定量测量。
由于斑马鱼幼鱼在受精后3天(3 dpf)开始出现自发运动,我们无法进行触碰诱发实验来评估肌肉功能。相反,我们通过测定斑马鱼幼鱼在6 dpf时的游泳距离,来长期评估其肌肉表现。尽管该检测方法是对肌肉功能的间接评估,但仍可用于识别表现出肌肉功能受损的个体。8 或神经退行性变25,26该测试不仅提供了类似于6分钟步行试验的测量结果,还适用于自动化高通量分析 体内 药物或诱变筛选
披露
作者无任何利益冲突需要披露。
致谢
感谢 Viewpoint 对本手稿的慷慨赞助。本研究由澳大利亚国家健康与医学研究委员会(NHMRC)项目资助(APP1010110)提供资金支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 21 G x 1' 钝针 | Terumo/Admiral Medical Supplies | TE2125 | |
| 48 孔板 | Sigma | M8937 | |
| 90 mm 培养皿 | Pacific Laboratory Products PT | S90001 | |
| 高速摄像机 | Baumer | HXC20 | |
| http://www.randomization.com | 不适用 | 步骤 1.1.2、2.1.3 | |
| 培养箱 | Thermoline Scientific | TEI-43L | |
| 塑料移液管 | VWR | 16001-188 | |
| StreamPix5 | NorPix | 步骤 1.2.3 | |
| 温度控制单元 | Viewpoint | ||
| 镊子,型号 8 | ProSciTech | T04-821 | |
| Zebrabox 系统 | Viewpoint | ||
| Zebralab | Viewpoint | 步骤 1.3.1、2.2.1 |
参考文献
- Bassett, D. I., Bryson-Richardson, R. J., Daggett, D. F., Gautier, P., Keenan, D. G., Currie, P. D. Dystrophin is required for the formation of stable muscle attachments in the zebrafish embryo. Development. 130 (23), 5851-5860 (2003).
- Gupta, V. A., Kawahara, G., et al. A splice site mutation in laminin-α2 results in a severe muscular dystrophy and growth abnormalities in zebrafish. PLoS ONE. 7 (8), e43794(2012).
- Gupta, V., Kawahara, G., et al. The zebrafish dag1 mutant: a novel genetic model for dystroglycanopathies. Hum Mol Genet. 20 (9), 1712-1725 (2011).
- Kawahara, G., Karpf, J. A., Myers, J. A., Alexander, M. S., Guyon, J. R., Kunkel, L. M. Drug screening in a zebrafish model of Duchenne muscular dystrophy. Proc Natl Acad Sci. 108 (13), 5331-5336 (2011).
- Telfer, W. R., Nelson, D. D., Waugh, T., Brooks, S. V., Dowling, J. J. neb: a zebrafish model of nemaline myopathy due to nebulin mutation. Dis Model & Mech. 5 (3), 389-396 (2012).
- Ruparelia, A. A., Oorschot, V., Vaz, R., Ramm, G., Bryson-Richardson, R. J. Zebrafish models of BAG3 myofibrillar myopathy suggest a toxic gain of function leading to BAG3 insufficiency. Acta Neuropathol. 128 (6), 821-833 (2014).
- Sztal, T. E., Sonntag, C., Hall, T. E., Currie, P. D. Epistatic dissection of laminin-receptor interactions in dystrophic zebrafish muscle. Hum Mol Genet. 21 (21), 4718-4731 (2012).
- Sztal, T. E., Zhao, M., et al. Zebrafish models for nemaline myopathy reveal a spectrum of nemaline bodies contributing to reduced muscle function. Acta Neuropathol. 130 (3), 389-406 (2015).
- Pichler, F. B., Laurenson, S., Williams, L. C., Dodd, A., Copp, B. R., Love, D. R. Chemical discovery and global gene expression analysis in zebrafish. Nat Biotechnol. 21 (8), 879-883 (2003).
- Peterson, R. T., Shaw, S. Y., et al. Chemical suppression of a genetic mutation in a zebrafish model of aortic coarctation. Nat Biotechnol. 22 (5), 595-599 (2004).
- Kawahara, G., Serafini, P. R., Myers, J. A., Alexander, M. S., Kunkel, L. M. Characterization of zebrafish dysferlin by morpholino knockdown. Biochem Bioph Res Co. 413 (2), 358-363 (2011).
- Zon, L. I., Peterson, R. T. In vivo drug discovery in the zebrafish. Nat Rev Drug Discov. , (2005).
- Smith, L. L., Beggs, A. H., Gupta, V. A. Analysis of skeletal muscle defects in larval zebrafish by birefringence and touch-evoke escape response assays. J Vis Exp. (82), e50925(2013).
- Sloboda, D. D., Claflin, D. R., Dowling, J. J., Brooks, S. V. Force measurement during contraction to assess muscle function in zebrafish larvae. J Vis Exp. (77), (2013).
- McDonald, C. M., Henricson, E. K., et al. The 6-minute walk test as a new outcome measure in Duchenne muscular dystrophy. Muscle Nerve. 41 (4), 500-510 (2010).
- McDonald, C. M., Henricson, E. K., et al. The 6-minute walk test and other clinical endpoints in duchenne muscular dystrophy: reliability, concurrent validity, and minimal clinically important differences from a multicenter study. Muscle Nerve. 48 (3), 357-368 (2013).
- Hurd, M. W., Debruyne, J., Straume, M., Cahill, G. M. Circadian rhythms of locomotor activity in zebrafish. Physiol Behav. 65 (3), 465-472 (1998).
- MacPhail, R. C., Brooks, J., Hunter, D. L., Padnos, B., Irons, T. D., Padilla, S. Locomotion in larval zebrafish: Influence of time of day, lighting and ethanol. Neurotoxicology. 30 (1), 52-58 (2009).
- Berger, J., Berger, S., Jacoby, A. S., Wilton, S. D., Currie, P. D. Evaluation of exon-skipping strategies for Duchenne muscular dystrophy utilizing dystrophin-deficient zebrafish. J Cell Mol Med. 15 (12), 2643-2651 (2011).
- Berger, J., Sztal, T., Currie, P. D. Quantification of birefringence readily measures the level of muscle damage in zebrafish. Biochem Bioph Res Co. 423 (4), 785-788 (2012).
- Ravenscroft, G., Jackaman, C., et al. Mouse models of dominant ACTA1 disease recapitulate human disease and provide insight into therapies. Brain. 134 (4), 1101-1115 (2011).
- Ravenscroft, G., Wilmshurst, J. M., et al. A novel ACTA1 mutation resulting in a severe congenital myopathy with nemaline bodies, intranuclear rods and type I fibre predominance. Neuromuscular Disord. 21 (1), 31-36 (2011).
- Wolman, M. A., Jain, R. A., Liss, L., Granato, M. Chemical modulation of memory formation in larval zebrafish. Proc Natl Acad Sci. 108 (37), 15468-15473 (2011).
- Müller, U. K., van Leeuwen, J. L. Swimming of larval zebrafish: ontogeny of body waves and implications for locomotory development. J Exp Biol. 207 (Pt 5), 853-868 (2004).
- Cheng, W., Tian, J., Burgunder, J. M., Hunziker, W., Eng, H. L. Myotonia congenita-associated mutations in chloride channel-1 affect zebrafish body wave swimming kinematics. PLoS ONE. 9 (8), e103445(2014).
- Moggio, M., Colombo, I., et al. Mitochondrial disease heterogeneity: a prognostic challenge. Acta Myol. 33 (2), 86-93 (2014).
重印与许可
