果蝇 卵子发生过程在研究线粒体增殖与遗传方面仍然具有极高的应用价值。本文描述了一种用于标记正在复制的线粒体DNA(mtDNA)的详细实验方案。 果蝇 利用5-乙炔基-2´-脱氧尿苷(EdU)标记成年卵巢,有助于揭示先前存在争议的线粒体遗传相关机制。
本文内容
摘要
摘要
线粒体基因组仅通过母系遗传。了解线粒体及其基因组如何通过雌性卵母细胞在世代间增殖和传递,具有重要的基础意义。由于果蝇遗传操作简便,且卵母细胞发育过程具有优美而有序的简洁性,因此Drosophila(黑腹果蝇)的卵子发生已成为研究线粒体的宝贵体系。本研究采用EdU(5-乙炔基-2´-脱氧尿苷)标记法检测Drosophila卵巢中线粒体DNA(mtDNA)的复制。该方法优于BrdU(5-溴-2'-脱氧尿苷)标记法,因其可实现良好的结构保存,并促进荧光染料高效穿透整体组织。
本文介绍了一种标记正在复制的线粒体DNA的详细实验方案 果蝇 用EdU标记成年卵巢。本文提供了一些技术方案,以提高卵巢的存活率,维持其在制备过程中的健康状态,并确保高质量的成像效果。卵巢中新生mtDNA的可视化不仅揭示了mtDNA复制在卵子发生过程中显著的时间和空间模式,还可在不同遗传和药物干预条件下对mtDNA复制进行简便的定量分析。
引言
除了细胞核基因组外,每个真核细胞的线粒体基质中还含有数千个小型环状DNA拷贝。尽管线粒体DNA(mtDNA)编码了电子传递链中的关键亚基,但线粒体蛋白质组的大部分成分,包括所有参与mtDNA复制和转录的因子,均由细胞核基因组编码。与遵循孟德尔遗传规律的核基因组不同,动物的线粒体基因组仅通过母系遗传。因此,理解mtDNA如何在雌性卵母细胞中增殖并传递给下一代具有重要的基础意义。然而,关于mtDNA复制在雌性生殖系中如何调控的问题,目前仍存在持续争议。此外,被广泛接受的mtDNA遗传瓶颈理论认为,在原始生殖细胞发育过程中,mtDNA群体被抽样缩减至相对较少的数量 12这也意味着线粒体DNA的复制在卵子发生过程中受到时间和空间上的调控。因此, 原位 在生殖系发育过程中检测线粒体DNA复制将有助于理解线粒体DNA遗传机制。
Drosophila 卵子发生为研究线粒体DNA(mtDNA)的复制与传递提供了一个具有遗传可操作性的系统。在每只 Drosophila 的两个卵巢中,存在16至20个独立的卵室串状结构,称为卵管(ovarioles)3,它们是卵子生成的功能单位(见图1A)。每个卵管包含一个渐进的线性卵子发生序列,其前端由一种称为生殖囊(germarium)的结构组成。生殖囊进一步分为四个区域,各区域含有处于不同发育阶段的生殖细胞。在第1区,生殖干细胞通过不对称分裂产生被称为囊母细胞(cystoblasts)的子细胞。第2a区包含已完成最后一次分裂的囊母细胞。囊母细胞经历四轮分裂,形成由16个细胞组成的细胞群。这16个细胞通过称为环管(ring canals)的细胞质桥相互连接。其中仅有一个细胞决定分化为卵母细胞,其余15个细胞则发育为多倍体的滋养细胞(nurse cells)。一种重要的细胞质结构——融合体(fusome)——被认为有助于环管的形成,决定细胞囊的极性以及滋养细胞与卵母细胞之间的相互作用4,5。当细胞囊向第2b区移动时,其结构横跨整个生殖囊,并与滤泡细胞(follicle cells)建立更紧密的联系。生殖囊结构以包含首个出芽卵室的第3区结束。随后,卵室在生殖囊后端组装,并沿卵管经历14个形态上可区分的发育阶段。卵母细胞的生长依赖于滋养细胞,后者通过环管将蛋白质、mRNA和内膜结构(例如,高尔基体)转运至卵母细胞中。在 Drosophila 卵子发生过程中,研究发现每个16细胞囊中的一部分线粒体会与融合体相关联,通过环管迁移并以一种称为巴尔比尼体(Balbiani body)的大团块形式被输送至唯一的卵母细胞中6。该现象被认为有助于通过雌性卵巢实现线粒体遗传的质量控制。
检测线粒体DNA(mtDNA)合成依赖于标记的DNA前体掺入细胞DNA中。传统上,使用胸苷类似物5-溴-2'-脱氧尿苷(BrdU)来标记组织培养细胞中的mtDNA复制7,8。然而,基于抗体的BrdU标记方法存在若干局限性,尤其是在整体组织染色中。BrdU标记的一个主要缺点是需要进行DNA变性以暴露BrdU抗原表位,从而使其能够被抗BrdU抗体识别。样品必须在强烈的变性条件下处理,例如使用化学试剂(如盐酸或甲醇与乙酸的混合物)、加热或DNase消化,这些处理可能破坏样品的结构,并使后续染色步骤复杂化9,10。
此处使用一种替代性胸腺嘧啶类似物5-乙炔基-2′-脱氧尿苷(EdU)标记正在复制的线粒体DNA 果蝇 成年卵巢。该方法速度更快且灵敏度极高。EdU 可在 DNA 复制过程中直接掺入细胞 DNA 中。后续检测基于一种 "点击" 反应,一种铜(I)催化的末端炔基与荧光叠氮化物之间的共价反应 10由于该反应不需要对样本进行变性处理,因此能够很好地保持其结构完整性。此外,染料叠氮化物的大小仅为抗体分子的1/500 10,可实现组织全层的快速高效渗透。我们已采用该方法检测线粒体DNA复制过程 黑腹果蝇 卵子发生,并在卵原区发现了一种显著的空间模式 果蝇 卵巢 11,这促使我们提出了一种依赖于复制的线粒体DNA选择性遗传机制。本文提供了在线粒体DNA复制过程中使用EdU标记的详细实验方案 果蝇 卵巢。为了展示该方案的应用,我们还在一种线粒体DNA突变体中检测了线粒体DNA的复制 果蝇 (mt:CoIT300I) 11以及使用多种线粒体解偶联剂处理,此类试剂可消散线粒体膜电位,并可能干扰线粒体DNA复制。
方案
1. 组织采集与解剖
- 在每个含有干酵母的小瓶中,用10只雌性成虫与10只雄性成虫共同培养2-3天。
注意:保持雌蝇营养充足可提高卵巢产量的整体质量,并有助于解剖操作。 - 在二氧化碳(CO2)麻醉垫上麻醉雌蝇。
- 在体视显微镜下,于解剖板上滴加数滴室温培养基(添加10%胎牛血清(FBS)的Schneider's Drosophila培养基)。所有解剖操作均需在培养基中进行,以维持组织的活性与健康状态。
- 用尖头精细镊子夹住一只腹部饱满的雌蝇的下胸部,用另一把镊子轻轻拉扯其最末端的后腹部,直至暴露腹腔内的组织,随后将两个卵巢与其他组织(例如肠道)分离。
注意:每个卵巢均呈现不透明结构,由16-20根相连的卵管组成。 - 为增强试剂渗透性,可用镊子将卵巢拉开,并将镊尖在各卵管之间来回穿插数次,但应保持同一卵巢内的卵管相互连接,以尽量减少后续操作中的组织损失。
- 立即将卵巢转移至含有500 µl添加10% FBS的Schneider's Drosophila培养基的1.5 ml微量离心管中。
- 重复上述解剖步骤,每管收集10-15对卵巢。
2. EdU 标记
- 吸去每支试管中的培养基,加入含10%胎牛血清(FBS)和7 µM 蚜苔素(aphidicolin)的500 µl Schneider's Drosophila 培养基。
注意:蚜苔素通过抑制DNA聚合酶α来阻断核DNA合成,但不影响线粒体DNA(mtDNA)的复制7,12。可将蚜苔素浓度提高至最高70 µM以获得更强的抑制效果。3–30 mM蚜苔素的DMSO储存液可在-20 °C避光保存最多6周。 - 为保持卵巢健康,在更换培养基时应确保卵巢始终浸没于溶液中。从本步骤至步骤2.6均使用含10% FBS的Schneider's Drosophila 培养基。
- 将卵巢置于室温下,在摇床上以轻柔旋转方式孵育3小时。
- 如需进行药物处理,例如 添加线粒体解偶联剂羰基氰化物-4-三氟甲氧基苯腙(FCCP),可在蚜苔素处理2小时后向培养基中加入适当浓度的药物(例如 10 µM FCCP),继续孵育1小时。
- 移除含蚜苔素(及可能含药物)的培养基,用培养基(无需含蚜苔素)短暂冲洗卵巢两次。
- 加入含10 µM EdU和7 µM aphidicolin的1 ml培养基,继续在室温下孵育2小时。10 mM EdU储存液(溶于DMSO)应保存于-20 °C。
- 移除含EdU和aphidicolin的培养基,用不含aphidicolin的培养基洗涤两次,每次3分钟。
3. 组织固定与通透化
- 在磷酸盐缓冲液(PBS,pH 7.4)中配制4%多聚甲醛溶液。
注意:我们使用的是市售的、保存在预先划痕安瓿瓶中的多聚甲醛。使用前打开新的安瓿瓶,并稀释至4%。
警告:甲醛具有毒性,操作时应在通风橱中进行,并采取皮肤和眼睛防护措施。 - 用4%多聚甲醛在室温下轻轻旋转固定卵巢20分钟。
- 移除固定液,用1 ml含3% BSA的PBS溶液清洗卵巢两次,每次5分钟。
- 为使组织通透,移除洗涤液,加入1 ml含0.5% Triton X-100的PBS溶液,在室温下孵育20分钟。
- 移除通透液,用1 ml含3% BSA的PBS溶液清洗两次。
4. EdU 检测
注意:EdU 检测基于"点击化学",即 Cu(I) 催化的 [3+2] 周环加成反应13,该反应将荧光叠氮化合物添加到 EdU 的末端炔基上,随后可对荧光分子进行检测。由于该反应需要 Cu(I) 作为催化剂,而 Cu(I) 易被氧化为无催化活性的 Cu(II),因此建议在反应体系中将 Cu(II) 硫酸盐原位还原为 Cu(I)。具体而言,是在还原剂(如抗坏血酸,即本文中的"缓冲液添加剂")存在下使用 Cu(II) 硫酸盐,以生成 Cu(I)。
- 实验前,根据制造商说明书配制 Alexa Fluor 叠氮化物工作液(Alexa Fluor 488 叠氮化物、Alexa Fluor 555 叠氮化物或其他根据所选荧光团确定的试剂,下文统称为 "染料叠氮化物")、EdU 反应缓冲液和 EdU 缓冲液添加剂。
- 用 70 µl DMSO 溶解染料叠氮化物。将工作液于 -20 °C 保存,可稳定长达 1 年。
- 将 10x EdU 反应缓冲液用去离子水稀释,配制成新鲜的 1x EdU 反应缓冲液。
注意:使用后,将剩余的 1x 溶液于 4 °C 保存。该 1x 溶液可稳定保存长达 6 个月。 - 将 EdU 缓冲液添加剂粉末完全溶解于 2 ml 去离子水中,配制成 10x 储存液。
注意:该储存液于 -20 °C 可稳定保存长达 1 年。若溶液变为棕色,表明已降解,应弃用。
- 每次均需新鲜配制 EdU 反应混合液,并在配制后 15 分钟内使用。为获得可重复的实验结果,需确保各反应组分保持相同的比例。
- 将步骤 4.1.3 中配制的 10x 储存液按 1:10 的比例用去离子水稀释,配制成新鲜的 1x EdU 缓冲液添加剂溶液。该溶液需当天使用。
- 按以下顺序依次混合各组分,配制 1 ml EdU 反应混合液:860 µl 1x EdU 反应缓冲液、40 µl CuSO4、2.5 µl 染料叠氮化物、100 µl 1x EdU 缓冲液添加剂。
注意:为确保最佳反应效果,各组分必须按指定顺序添加。
- 吸除含 3% BSA 的 PBS,向每管中加入 0.5 ml EdU 反应混合液。室温避光轻柔振荡孵育 30 分钟。
- 吸除 EdU 反应混合液,用 1 ml 含 3% BSA 的 PBS 洗涤一次。
- 用 1 ml PBS 洗涤样品一次。
5. 抗体标记
注意:在EdU染色后进行抗体标记。如果不需要额外染色,可直接进行封片和成像。在后续所有步骤中,必须注意避免样品暴露于光照下。
- 吸去洗涤液。加入1 ml封闭液(含0.2% BSA和0.1% Triton X-100的PBS)于卵巢样本中,4 °C封闭30 min。
- 吸去封闭液,加入用封闭液稀释的一抗(e.g., 小鼠ATP合酶亚基α抗体,1:1,000稀释),4 °C避光孵育过夜(O/N)。
- 用1 ml封闭液洗涤样本3次,每次10 min。为降低背景信号,再额外进行两次30 min的洗涤。吸去封闭液。
- 加入用封闭液稀释的二抗(e.g., 山羊抗小鼠Alexa Fluor 568二抗,1:200稀释),室温避光孵育2 hr。
注意:所用荧光颜色应与EdU标记的荧光颜色不同。 - 重复步骤5.3中的洗涤步骤。
- 用1 ml PBS冲洗一次,以去除去污剂。
6. 封片与成像
- 小心吸除所有 PBS,并立即用 50 µl 封片剂(含或不含 DAPI)覆盖卵巢。
注意:使用不会在分离卵管时变硬的封片剂。卵巢可在封片剂中于 4 °C 保存最多一周。 - 剪去移液器吸头的尖端,用其小心地将卵巢转移至显微镜载玻片上。
- 在体视显微镜下,使用尖头精细镊子将每根卵管完全分离。去除后端的连接组织以及第 14 阶段或成熟的卵室。年轻的卵室位于前端,呈透明状。
- 用镊子调整卵室排列,使其彼此之间不重叠。
- 缓慢地将一张 #1.5 玻璃盖玻片盖在样品上。在室温下静置数小时,使封片剂充分固化,然后用透明指甲油封边。
- 次日进行成像,或在成像前于 4 °C 保存。
- 使用 63X 油浸物镜在共聚焦显微镜下观察。采集三维 z 轴层扫图像。
注意:在较晚阶段的卵室中 EdU 信号较强,上皮鞘中存在背景荧光。在观察特定卵原区的 EdU 标记时,应避免选择与其他组织或较晚阶段卵室重叠或邻近的卵原区。
结果
上述方案可用于观察与线粒体相关的点状结构图1B-C),表明线粒体DNA在期间进行复制 果蝇 卵子发生。EdU 焦点定位于经ATP合酶α亚基染色标记的线粒体上(图2)。在用溴化乙锭处理的卵巢中,未观察到上述信号 11,一种线粒体DNA复制抑制剂 14,验证了这些点状结构确实标记了正在复制的线粒体DNA。使用阿糖胞苷抑制核DNA染色,同时不影响线粒体DNA复制(图2)。未用蚜苔菌素处理时,强烈的EdU信号标记细胞核,而mtDNA点状信号几乎无法检测到(图3然而,在存在阿糖胞苷的情况下,细胞核内的掺入显著减少,而许多与线粒体相关的点状结构被观察到。
在生殖囊后部的卵室中,mtDNA复制水平较高(图1B)。然而值得注意的是,mtDNA复制在生殖囊中呈现出空间分布模式。根据EdU斑点数量显示,生殖囊1区的mtDNA复制水平中等,而在2A区几乎未检测到EdU掺入(图1C)。当囊泡向生殖囊2B区移动时,mtDNA复制重新启动,2B区后部囊泡中的EdU斑点数量明显高于2A区(图1C)。具体而言,强烈的EdU掺入主要集中于环状通道和由hu li tai shao(Hts)蛋白染色标记的合胞体结构周围。在生殖囊3区,mtDNA仍保持高水平的复制(图1C)
为了验证特定基因或处理与线粒体DNA(mtDNA)增殖之间的关联,可对Drosophila卵巢进行基因操作或药物处理。我们使用不同浓度的FCCP(一种经典的线粒体质子载体,可破坏线粒体膜电位)处理卵巢。作为对照,DMSO对mtDNA复制无明显影响(图4A)。高浓度FCCP(10 µM)几乎完全抑制了整个生殖囊中mtDNA的复制(图4D)。然而,较低浓度的FCCP(2 或 5 µM)在第1区对mtDNA复制影响较小,但在第2B区和第3区则显著抑制了复制(图4B-C),提示第2B区和第3区对线粒体功能障碍更为敏感,或其本身维持相对缓慢的复制动力学。上述结果表明,mtDNA复制与线粒体活性相关,尤其在生殖囊的不同区域,其对线粒体损伤的响应存在差异。
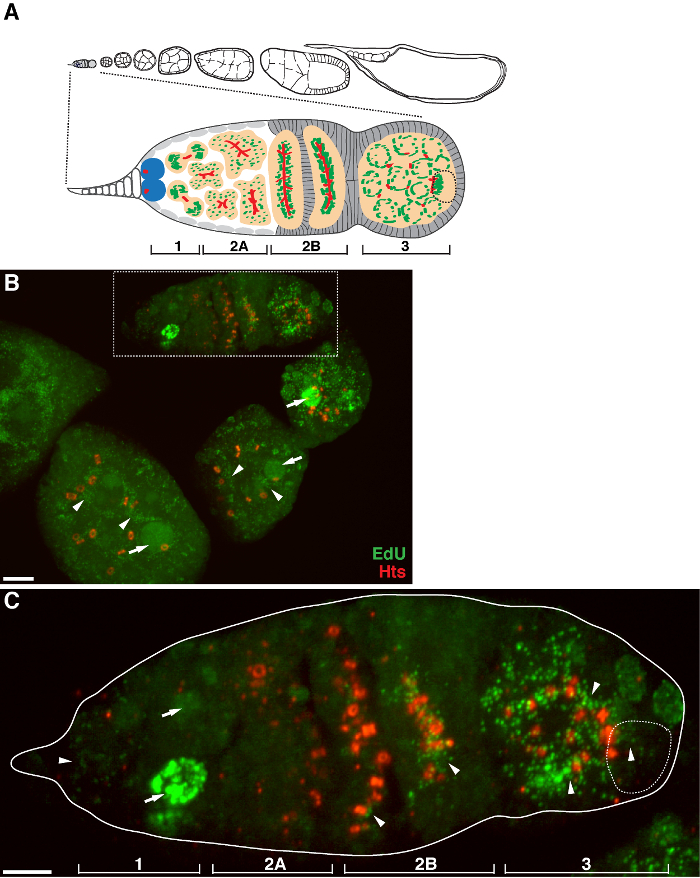
图1. mtDNA 复制期间 果蝇 卵子发生 (A) 示意图 果蝇 卵小管及生殖囊的放大视图。从左至右(从前至后),卵小管展示了卵室连续的发育阶段。在生殖囊中,显示了丝状体(红色)、生殖系干细胞(蓝色)、线粒体(绿色)、未来的卵母细胞(虚线标示,依据其位置、丝状体结构及线粒体簇判断)、发育中的囊细胞(桃色)以及四个发育区域。B) 野生型卵管的代表性z轴层叠投影图像,经EdU及抗Hts-RC抗体标记,后者为环状管和合丝体的标志物。在存在阿糖胞苷(aphidicolin)的情况下,EdU被掺入线粒体DNA(箭头所示)和细胞核(箭头所示)。比例尺, 10 µm. (C) 框选区域中囊卵巢的放大视图 B四个发育区域已标出。比例尺, 5 µm 11 . 请点击此处以查看此图的放大版本。
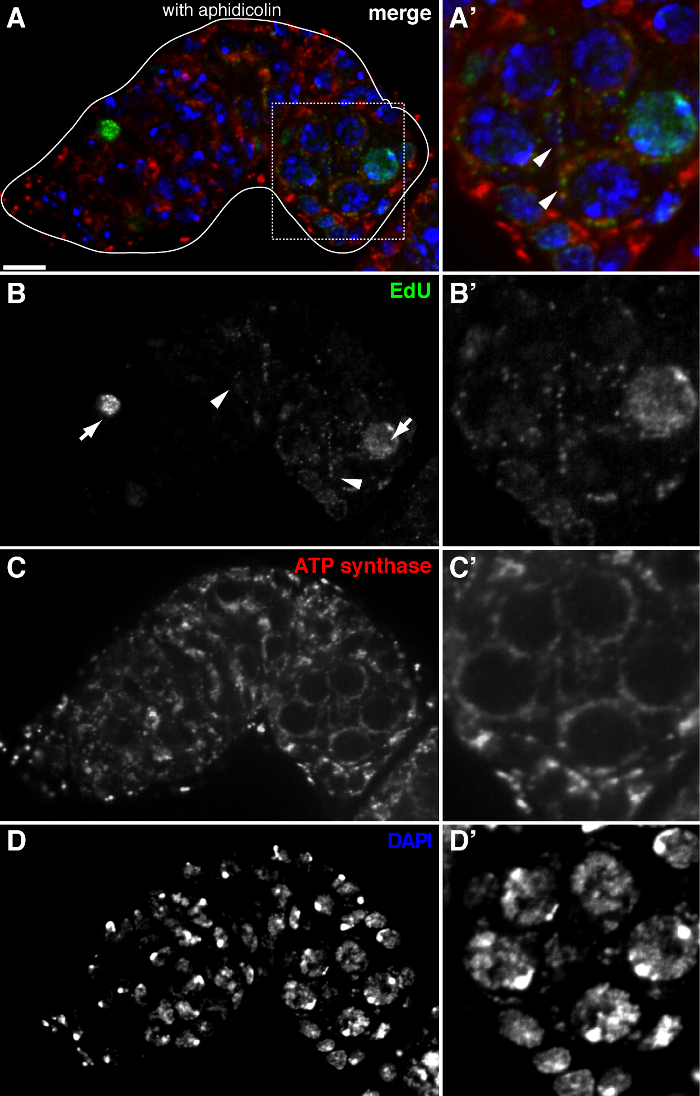
图2. 通过EdU掺入结合aphidicolin处理在果蝇(Drosophila)卵原区中可视化线粒体DNA复制。(A)-(D)野生型卵原区的代表性共聚焦切片图像,显示EdU掺入(绿色,B)、由ATP合酶α亚基染色标记的线粒体(红色,C)以及DAPI染色的细胞核(蓝色,D),样品经DNA聚合酶-α抑制剂aphidicolin预孵育处理。(A'–D')图(A)中方框区域的放大图像,分别显示EdU掺入(B')、线粒体(C')和细胞核(D')。在aphidicolin存在条件下,细胞核内的掺入信号(箭头)减少,而许多点状信号定位于线粒体内(箭头指示)。比例尺:10 µm。本图改编自11。请点击此处查看该图的高清版本。
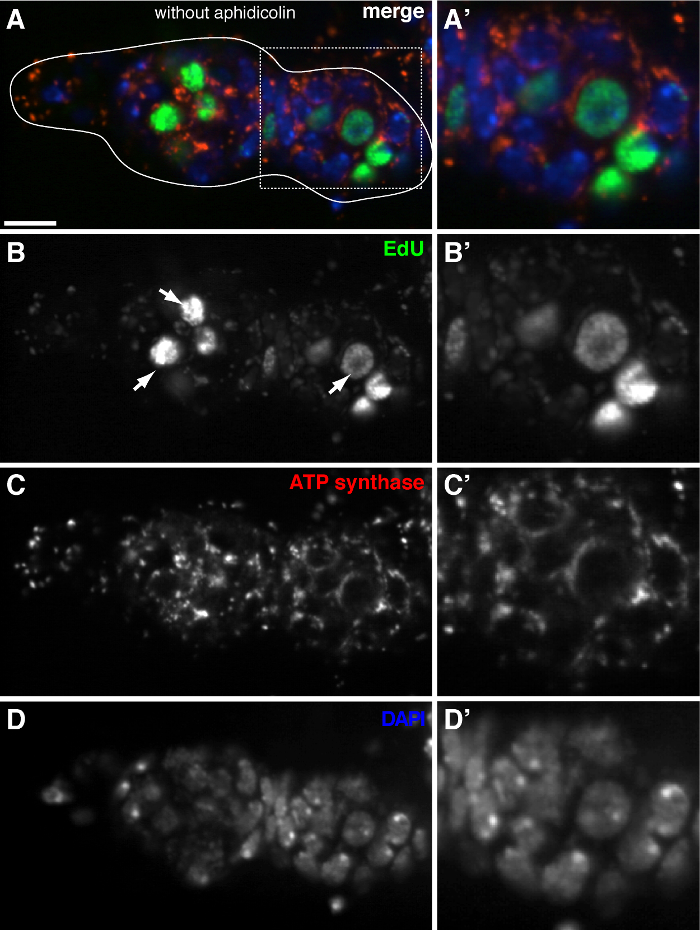
图3. 在未使用阿糖胞苷处理的 Drosophila 生殖囊中,mtDNA复制几乎无法检测到。 (A)-(D)代表性共聚焦切片图像显示野生型生殖囊中EdU掺入(绿色)、由ATP合酶α亚基染色标记的线粒体(红色)以及DAPI染色标记的细胞核(蓝色),未使用DNA聚合酶-α抑制剂阿糖胞苷处理。 (A'-D')为(A)中框选区域的放大图像,分别显示EdU掺入(B')、线粒体(C')和细胞核(D')。在未使用阿糖胞苷的情况下,强烈的EdU信号标记细胞核(箭头所示),而mtDNA斑点几乎无法检测到。比例尺:10 µm。该图改编自11。 请点击此处查看此图的放大版本。
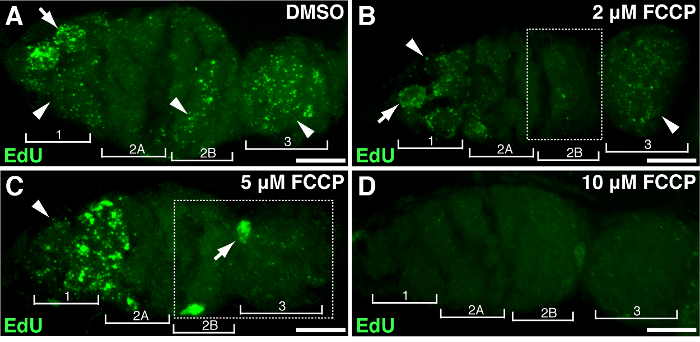
图4. 线粒体解偶联剂损害线粒体DNA复制。 代表性z轴层叠投影图像显示野生型生殖囊在EdU掺入过程中经DMSO处理(A)或线粒体解偶联剂FCCP在2 µM(B)、5 µM(C)、10 µM(D)浓度下的处理结果。注意在2 µM FCCP处理组中,区域2B的EdU标记受损(B);而在5 µM FCCP处理组中,区域2B和区域3均出现EdU标记减弱(以方框标出)。图中显示了四个发育区域。箭头:核DNA;箭头末端加短横线:线粒体DNA。比例尺:10 µm。本图经修改自11。请点击此处查看该图的放大版本。
讨论
EdU 标记是一种用于检测增殖细胞中 DNA 合成的新型高效方法,其原理基于核苷类似物掺入新合成的 DNA 并进行染色。该方法相较于 BrdU 标记具有更快的检测速度和更高的灵敏度。更重要的是,它能够实现良好的结构保存,并促进染料在整体组织中的高效渗透9, 10。历史上,作为 BrdU 标记的更优替代方法,EdU 标记被用于研究细胞周期 S 期期间的核 DNA 复制。Aphidicolin 是 DNA 聚合酶 α 的抑制剂,而 DNA 聚合酶 α 是 S 期核 DNA 复制的主要聚合酶1215。线粒体 DNA(mtDNA)的复制由 DNA 聚合酶 γ 介导,该酶对 aphidicolin 处理不敏感。因此,在 EdU 孵育前及孵育期间使用 aphidicolin 处理,可显著抑制 EdU 掺入核 DNA。需要注意的是,若储存得当,aphidicolin 可保持数周稳定性,但在本实验条件下,其抑制核 DNA 复制的效果存在差异。对于表现出强烈核 DNA 标记的卵管或卵室,应在后续数据分析中予以排除。
线粒体DNA复制可轻易地在细胞质中以点状信号的形式被观察到,这为通过计数EdU点状信号的数量(相对于细胞质总体积进行归一化)来定量分析线粒体DNA复制水平提供了简便的方法。可使用成像软件自动识别显微图像中的EdU点状信号,这对于大规模数据集的计算分析尤为有用。然而需谨慎操作,因为细胞核DNA复制若抑制不完全,可能导致EdU掺入染色体的不同位点,并在细胞核内呈现为点状信号。此外,在某些情况下,EdU掺入正在复制的线粒体DNA的信号强度可能较弱,而背景噪声可能较高。因此,应仔细设定自动图像分析的各项参数。同时建议由经过训练的专业人员对图像进行人工核查,以确保正确识别出真正的EdU点状信号。
可视化新合成的mtDNA期间 果蝇 卵子发生为研究线粒体DNA(mtDNA)复制在生理或病理条件下的调控机制提供了机会,可通过在经历多种药物或遗传干扰的果蝇中开展实验来实现。在之前的一项研究中,对一种mtDNA突变体进行了EdU掺入实验 果蝇线粒体细胞色素c氧化酶亚基I(Drosophila mt:CoI)T300I11此外,为了破坏线粒体膜电位,在EdU掺入前,卵巢经不同浓度的线粒体解偶联剂FCCP或2,4-二硝基苯酚(DNP)处理。根据实验目的和药物特性,可采用不同的给药方法以实现有效递送。对于成年果蝇,药物可以蒸气形式提供(例如乙醇和可卡因) 16,17 或可将药物注射至腹部,药物会迅速扩散至全身 18最常见的做法是将药物添加到果蝇食物中,或使用蔗糖/药物饱和的滤纸喂食。例如,在卵巢解剖前 2–3 天,将微管组装抑制剂秋水仙素(colchicine)饲喂果蝇 19因此,评估药物递送方法并选择合适的浓度至关重要。
为确保在黑腹果蝇(Drosophila)卵巢中成功成像线粒体DNA复制,必须仔细执行若干关键步骤。首先,在解剖和EdU掺入过程中保持卵巢的活性与健康状态至关重要(步骤1和2)。含胎牛血清(FBS)的Schneider's Drosophila培养基在使用前需预热至室温(RT)。操作时应尽量减少卵室与解剖工具或移液器吸头的直接接触。卵巢在操作过程中应始终浸没于溶液中,以防脱水。组织处理不当极易导致荧光信号微弱或完全缺失。在组织封片步骤中,应将卵巢小管彼此分离,并在显微镜载玻片上充分铺展,确保卵室之间不重叠。我们注意到,发育阶段超过14期的卵室几乎无EdU掺入信号。此外,由于体积较大,晚期卵室常导致邻近的较年轻卵室失焦。因此,建议弃除晚期卵室。
本文提供了在Drosophila成虫卵巢中对正在复制的线粒体DNA(mtDNA)进行标记的详细实验方案。该方法可简便地定量分析不同遗传和药物干预条件下mtDNA的复制情况,有助于解析发育过程中线粒体生物发生及mtDNA遗传的分子机制。
披露
作者无任何利益冲突需要披露。
致谢
感谢 K. Delaney 对手稿的评论。本工作由国家心肺血液研究所(NHLBI)院内项目资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Schneider’s Drosophila 培养基 | Invitrogen | 21720-024 | |
| FBS | Invitrogen | 10100-147 | |
| Dumont #5 镊子 | Fine Science Tools | 11252-20 | |
| 阿糖胞苷(Aphidicolin) | Sigma | A0781 | 溶于 DMSO 后分装保存。避免反复冻融。避光保存。溶解后可在6周内使用。 |
| FCCP | Sigma | C2920 | |
| DMSO | Sigma | D2650 | |
| 16% 电镜级多聚甲醛 | Electron Microscopy Sciences | 15710 | 甲醛具有毒性,操作时应在通风橱中进行,并做好皮肤和眼睛防护。 |
| PBS | KD Medical | RGF-3190 | |
| BSA | Sigma | A7030 | |
| Triton X-100 | Sigma | T9284 | |
| Click-iT EdU Alexa Fluor 488 成像试剂盒 | Invitrogen | C10337 | 包含 EdU、CuSO4、Alexa Fluor 488 叠氮化物、EdU 反应缓冲液和 EdU 缓冲液添加剂 |
| 小鼠 ATP 合酶亚基 α 抗体(15H4C4) | MitoSciences | Ab14748 | 按 1:1,000 稀释 |
| 小鼠 Hts 抗体(克隆 RC) | 发育研究杂交瘤库(DSHB) | hts RC | 按 1:1,000 稀释 |
| 山羊抗小鼠 Alexa Fluor 568 二抗 | Invitrogen | A-11004 | 按 1:200 稀释 |
| 含 DAPI 的 Vectashield 封片剂 | Vector Laboratories | H-1500 | |
| 玻璃盖玻片,#1.5,22 mm × 22 mm | Fisher Scientific | 12-541-B | |
| 显微镜载玻片 | Fisher Scientific | 22-038-103 | |
| 指甲油 | Elf | 许多指甲油中的色素具有荧光性,并可能渗入样本。应仅使用透明指甲油。 |
参考文献
- Taylor, R. W., Turnbull, D. M. Mitochondrial DNA mutations in human disease. Nat Rev Genet. 6 (5), 389-402 (2005).
- Wallace, D. C., Chalkia, D. Mitochondrial DNA genetics and the heteroplasmy conundrum in evolution and disease. Cold Spring Harb Perspect Biol. 5 (11), a021220(2013).
- Spradling, A. C. The development of Drosophila melanogaster. , Cold Spring Harbor Lab. Press. (1993).
- Riechmann, V., Ephrussi, A. Axis formation during Drosophila oogenesis. Curr Opin Genet Dev. 11 (4), 374-383 (2001).
- Lin, H., Yue, L., Spradling, A. C. The Drosophila fusome, a germline-specific organelle, contains membrane skeletal proteins and functions in cyst formation. Development. 120 (4), 947-956 (1994).
- Cox, R. T., Spradling, A. C. A Balbiani body and the fusome mediate mitochondrial inheritance during Drosophila oogenesis. Development. 130 (8), 1579-1590 (2003).
- Davis, A. F., Clayton, D. A. In situ localization of mitochondrial DNA replication in intact mammalian cells. J Cell Biol. 135 (4), 883-893 (1996).
- Iborra, F. J., Kimura, H., Cook, P. R. The functional organization of mitochondrial genomes in human cells. BMC Biol. 2, (2004).
- Rakic, P. Neurogenesis in adult primate neocortex: an evaluation of the evidence. Nat Rev Neurosci. 3 (1), 65-71 (2002).
- Salic, A., Mitchison, T. J. A chemical method for fast and sensitive detection of DNA synthesis in vivo. Proc Natl Acad Sci U S A. 105 (7), 2415-2420 (2008).
- Hill, J. H., Chen, Z., Xu, H. Selective propagation of functional mitochondrial DNA during oogenesis restricts the transmission of a deleterious mitochondrial variant. Nat Genet. 46 (4), 389-392 (2014).
- Lentz, S. I., et al. Mitochondrial DNA (mtDNA) Biogenesis: Visualization and Duel Incorporation of BrdU and EdU Into Newly Synthesized mtDNA In Vitro. Journal of Histochemistry & Cytochemistry. 58 (2), 207-218 (2010).
- Tornoe, C. W., Christensen, C., Meldal, M. Peptidotriazoles on solid phase: [1,2,3]-triazoles by regiospecific copper(i)-catalyzed 1,3-dipolar cycloadditions of terminal alkynes to azides. J Org Chem. 67 (9), 3057-3064 (2002).
- Horwitz, H. B., Holt, C. E. Specific inhibition by ethidium bromide of mitochondrial DNA synthesis in physarum polycephalum. J. Cell Biol. 49, 546-553 (1971).
- Huberman, J. A. New views of the biochemistry of eucaryotic DNA replication revealed by aphidicolin, an unusual inhibitor of DNA polymerase alpha. Cell. 23 (3), 647-648 (1981).
- McClung, C., Hirsh, J. Stereotypic behavioral responses to free-base cocaine and the development of behavioral sensitization in Drosophila. Curr Biol. 8 (2), 109-112 (1998).
- Moore, M. S., et al. Ethanol intoxication in Drosophila: Genetic and pharmacological evidence for regulation by the cAMP signaling pathway. Cell. 93 (6), 997-1007 (1998).
- Dzitoyeva, S., Dimitrijevic, N., Manev, H. Gamma-aminobutyric acid B receptor 1 mediates behavior-impairing actions of alcohol in Drosophila: adult RNA interference and pharmacological evidence. Proc Natl Acad Sci U S A. 100 (9), 5485-5490 (2003).
- Koch, E. A., Spitzer, R. H. Multiple effects of colchicine on oogenesis in Drosophila: induced sterility and switch of potential oocyte to nurse-cell developmental pathway. Cell Tissue Res. 228 (1), 21-32 (1983).
重印与许可
