诊断胆汁酸吸收不良及测量胆汁酸转运的工具 体内 有限。本文描述了一种在活体动物中应用的创新方法,该方法结合了质子(1H)加氟(F)19F)磁共振成像;这种新方法在临床实践中具有用于筛查胆汁酸吸收不良的转化潜力。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
除了作为促进脂肪吸收的去污剂这一传统作用外,越来越多的研究表明,胆汁酸是影响多个器官的强效信号分子;它们可调节肠道蠕动和激素生成,并改变血管张力、葡萄糖代谢、脂质代谢以及能量利用。粪便中胆汁酸的变化可能改变肠道微生物组,并促进包括胆汁性腹泻和结肠癌在内的结肠病理改变。决定粪便胆汁酸组成的关键调控因子是小肠顶膜钠依赖性胆汁酸转运体(ASBT)和成纤维细胞生长因子-19(FGF19)。ASBT表达和功能降低会减少肠道对胆汁酸的摄取。此外,体外(in vitro)数据表明,一些美国食品药品监督管理局(FDA)批准的药物会抑制ASBT功能。FGF19分泌不足会导致肝脏胆汁酸合成增加并大量释放入肠道,超出ASBT的转运能力。无论是ASBT功能障碍还是FGF19缺乏,都会导致粪便胆汁酸升高,可能引发慢性腹泻并促进结肠肿瘤的发生。遗憾的是,目前可用于在体内(in vivo)测量胆汁酸吸收不良以及药物对胆汁酸转运作用的工具十分有限。为了深入理解胆汁酸复杂的生物学作用,亟需能够同时监测肠道和代谢组织中胆汁酸动态的技术。这促使我们设计出一种创新方法,即结合质子(1H)和氟(19F)磁共振成像(MRI),在活体动物中测量胆汁酸转运。我们研发并测试了适用于氟(19F)磁共振活体成像的新型示踪剂,包括体外(in vitro)和体内(in vivo)实验。该方法的优势在于无需使用电离辐射,且具有向临床研究与实践转化的潜力。
引言
除了作为促进肠道脂肪吸收的表面活性剂这一经典作用外,胆汁酸还被发现是强效的信号分子,可影响多种器官,而不仅限于参与其肠肝循环的器官1,2除了调控自身的代谢外,胆汁酸还调节胃肠道生理学的多个方面(例如,肠道蠕动和肠促胰素激素生成、结肠生理功能以及癌症易感性),并对血管张力、葡萄糖和脂质代谢及能量利用产生全身性影响。这些效应中,部分由肠道局部介导,另一部分则源于餐后全身胆汁酸水平的变化,如在肥胖患者或胃旁路手术后所观察到的情况。为了阐明胆汁酸复杂的代谢作用,需要开发新技术,以实现对胃肠道及代谢组织(肝脏、胰腺、骨骼肌和脂肪组织)中不同解剖区室内的胆汁酸水平进行同步监测。获取此类时空动态信息需要创新的技术手段—— 体内 使用新型胆汁酸示踪剂进行成像是一种如本文所述的全新方法。
解剖区室中胆汁酸的组成和分布受到多种因素调控,这些因素影响胆汁酸的肝脏合成和回肠吸收,包括饮食、手术、抗生素使用以及肠道菌群的变化。肠道胆汁酸吸收以实现肠肝循环3(图1)的一个关键调控因子是回肠顶端钠依赖性胆汁酸转运蛋白(ASBT;SLC10A2)。尽管胆汁酸可在整个肠道中发生被动吸收,但ASBT介导了95%的肠道胆汁酸摄取,因此在正常情况下仅有少量胆汁酸排入粪便。Asbt缺陷型(Slc10a2-/-)小鼠粪便中胆汁酸含量升高,且胆汁酸池减小4。
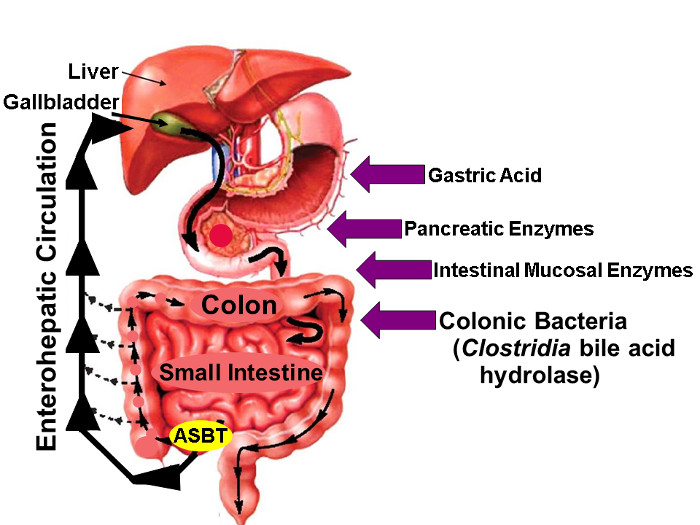
图1:胆汁酸的肠肝循环。
肝肠循环示意图,其中胆汁酸在肝脏中合成,排泄至胆道系统,储存于胆囊,随进食释放至近端小肠,并被主动重吸收 通过 回肠远端的ASBT。尽管少量胆汁酸可在整个肠道中被动吸收,但约95%的肠腔胆汁酸通过ASBT主动转运,从而使得粪便中胆汁酸的损失极小(约5%),该损失量可通过肝脏合成等量的新胆汁酸予以补偿,由此维持胆汁酸池的稳态。右侧箭头标示了可能影响天然及氟标记胆汁酸稳定性的因素,包括胃酸、胰酶和肠黏膜酶,以及最为重要的由肠道菌群释放的水解酶。 梭菌属的 定植于远端小肠和结肠的物种。(经许可修改)16) 请点击此处以查看此图的放大版本。
胆汁酸吸收不良可分为三种类型,每种类型均会增加粪便中二羟基胆汁酸的含量,从而导致间歇性或慢性腹泻。1型由回肠明显病变引起(例如切除术、克罗恩病)5。3型由胆囊切除术、迷走神经切断术、乳糜泻、细菌过度生长以及胰腺功能不全所致。相比之下,患有“原发性”(2型)胆汁酸吸收不良的个体因缺乏上述既往病史,且回肠无病理学证据,因此诊断极具挑战性。因此,原发性胆汁酸吸收不良常被误诊为腹泻型肠易激综合征(IBS-D),而IBS-D可能是胃肠病门诊就诊最常见的原因。据估计,约三分之一的IBS-D患者实际患有原发性胆汁酸吸收不良;在美国,这可能涉及数百万人5。近期研究发现,原发性胆汁酸吸收不良的机制源于肠源性成纤维细胞生长因子-19(FGF19)对肝胆汁酸合成的反馈抑制功能受损,而非ASBT表达或功能降低所致。
在原发性胆汁酸吸收不良中,血浆FGF19水平降低,无法抑制肝脏胆汁酸的合成——导致肠道内胆汁酸增加,从而饱和胆汁酸转运体(包括ASBT),过量的胆汁酸排入粪便,引起腹泻6 (图2)。Fgf15(小鼠FGF19)缺陷小鼠的胆汁酸池扩大,粪便中胆汁酸含量升高7。
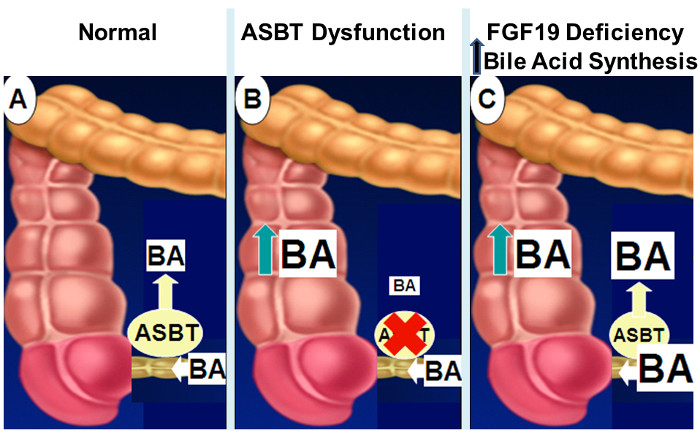
图2:肠道胆汁酸吸收不良的机制。
正常情况下,如图A所示,约95%的肠道胆汁酸通过回肠远端的ASBT介导的主动转运被重吸收。当ASBT的表达或活性降低时(图B),肠道胆汁酸摄取功能受损,导致胆汁酸溢入结肠。当FGF19信号传导受损时(图C),肝脏胆汁酸合成的负反馈抑制作用缺失,导致肠道内胆汁酸浓度升高,超过ASBT的转运能力,从而引起胆汁酸溢入结肠。请点击此处查看该图的放大版本。
粪便胆汁酸长期慢性升高可能促进结肠肿瘤的发生。结肠肿瘤源于与体细胞基因突变相关的黏膜进行性发育异常,但可增加粪便胆汁酸的环境因素可能加速并加剧这一过程。在啮齿类动物中,粪便胆汁酸升高(无论是由于外源性给予还是Asbt缺乏所致)均可促进结肠发育异常和肿瘤形成8-10。
值得注意的是,具有启发性的研究结果表明,一些经美国食品药品监督管理局(FDA)批准的常用药物可强效抑制ASBT介导的胆汁酸转运 体外11如果这些药物减少小肠胆汁酸转运 体内 并增加粪便胆汁酸水平,这可能对结肠病理产生令人担忧的影响。即使因使用此类药物导致结肠病理发生率出现轻微上升,也可能对公共健康造成重大影响。一种能够评估这些假设合理性的工具包 体外 研究结果和流行病学观察将推动进一步的研究,包括上市后安全性研究。
尽管存在临床需求,但目前仍缺乏用于识别胆汁酸吸收不良患者的实用检测方法。多年前,粪便胆汁酸的直接测定因操作繁琐、不切实际且结果不可靠而被弃用5。替代方法包括检测放射性硒标记的胆酸衍生物(75SeHCAT)的滞留率、血浆中7α-羟基-4-胆甾烯-3-酮(C4)的浓度,或进行胆汁酸结合剂的治疗性试验。75SeHCAT检测在欧洲的可用性有限,在美国则未获得FDA批准,也无法使用。此外,诊断过程中即使仅为轻度的辐射暴露(每次75SeHCAT检测0.26 mSv)也令人担忧,且细菌过度生长和晚期肝病可能干扰75SeHCAT的检测结果。C4检测具有潜在吸引力,因其仅需采集血浆样本,但其阳性预测值较低,且检测尚未广泛普及。血清FGF19水平的测定也存在类似的局限性。临床医生常不得不采用胆汁酸螯合剂进行治疗性试验,但该方法无法对胆汁酸吸收不良作出明确诊断5。
由于这些原因,研究人员提出了一种新型 MRI 方法,用于测量胆汁酸的转运和分布 体内 使用创新的多氟化胆汁酸(MFBA-MRI)。含三个氟原子的MFBA(19F),一种天然丰度为100%的稳定同位素,其转运方式与内源性胆汁酸相似12,可结合质子(1氢(H)和氟(19F) 磁共振成像(MRI),一种敏感且安全、无需电离辐射暴露的方法13,14.
访问受限。请登录或开始试用以查看此内容。
方案
以下方案遵循马里兰大学医学院机构动物护理和使用委员会(IACUC)批准的指南(IACUC 方案编号 #0415011,2015年6月18日批准)。
1. 通过灌胃法向小鼠给予19F标记的胆汁酸
- 以每公斤体重150 mg的剂量对小鼠进行灌胃给予19F标记的胆汁酸。用1 ml注射器吸取所需体积的19F标记胆汁酸储备液[牛磺胆酸-三氟乙酰赖氨酸(CA-lys-TFA;溶于1:1的聚乙二醇400与杜氏磷酸盐缓冲液)或胆酰基-肌氨酸-三氟-N-甲基乙酰胺(CA-sar-TFMA;溶于60%聚乙二醇400和40%杜氏磷酸盐缓冲液)],并连接一根20号、1.5英寸长、带球状尖端的弯曲胃灌注针。确保灌胃针足够长,当插入食道至针座处时,可达到小鼠剑突软骨水平
- 用拇指和食指牢牢抓住小鼠颈背部的松弛皮肤,并用其余手指抓住其下背部和尾巴的皮肤
- 将小鼠保持直立,将灌胃针沿口腔侧壁和顶部进入食道,并继续向下插入胃中。若在咽部遇到阻力,应调整针头位置,直至小鼠“吞咽”针头——切勿强行推进
- 若灌胃需要麻醉,将小鼠放入含有5 ml异氟烷的钟形罩内并封闭。当小鼠侧卧时,等待7秒后取出并立即进行灌胃。为保护操作人员免受麻醉蒸气影响,钟形罩仅可在通风橱内使用
- 观察小鼠在数分钟内从异氟烷麻醉中恢复。
注意:由于异氟烷经肝脏代谢,其完整药物或代谢产物经胆道系统和胆囊排泄时可能产生氟信号,从而干扰来自19F标记胆汁酸的氟信号15。可选用氯胺酮联合赛拉嗪作为替代麻醉方案(剂量见第3.1节)
2. 使用液相色谱/质谱法测定胆汁酸:胆囊、肝脏和血液的采集
- 为实现胆囊最大程度充盈,在摘取器官前至少禁食小鼠 6 小时。在磷酸盐缓冲液(PBS)中配制氯胺酮和赛拉嗪(100 µl 氯胺酮,62.5 µl 赛拉嗪,840 µl PBS)。
- 使用 1 ml 无菌注射器,在器官摘取前 1 小时,按 15 µl/g 体重剂量,对小鼠进行皮下注射氯胺酮/赛拉嗪溶液(每千克体重给予 150 mg 氯胺酮和 18 mg 赛拉嗪)。
- 注射氯胺酮/赛拉嗪后 1 小时,通过夹捏脚趾确认麻醉效果充分,然后将麻醉小鼠仰卧位放置。
- 使用 5 或 6 英寸剪刀从耻骨至剑突处沿腹中线剪开皮肤,再用精细剪刀(4 英寸)剪开腹膜层,暴露腹腔器官——注意不要刺破膈肌。
- 用 5 英寸止血钳夹住剑突并向上向胸部后方提起,以暴露上腹部腔隙。使用镊子和钝性器械分离并移开肝脏,暴露胆囊。
注意:避免撕裂肝脏或触碰胆囊,前者可能导致严重出血,后者可能诱发胆囊收缩并排空。 - 将 4 英寸止血钳夹闭于胆总管处(图 3,虚线箭头所示)。剪断连接胆囊上极与膈肌的韧带,并轻柔地将胆囊移至腹腔右侧。
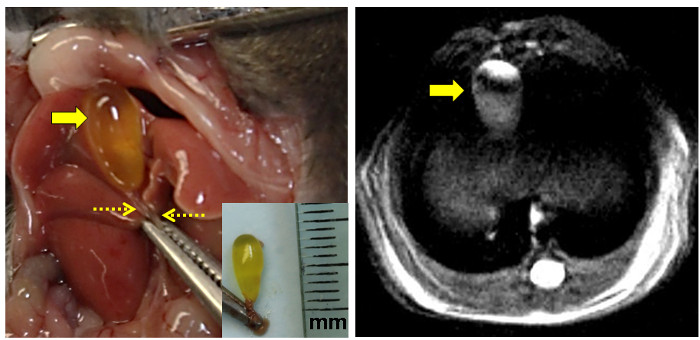
图3:小鼠胆囊的解剖结构与质子磁共振成像图。
左侧面板显示腹部切开后位于中线左侧的暴露小鼠胆囊。止血钳夹住剑突。空腹状态下充满胆汁的胆囊由粗箭头指示,被夹闭的胆总管由虚线箭头指示。[插图:切除的完整胆囊,胆总管已被夹闭。标尺以毫米(mm)为单位。] 右侧面板显示空腹小鼠胆囊的高分辨率质子密度加权磁共振成像图像(箭头所示)。请点击此处查看该图的放大版本。
- 在切除胆囊前,进行心脏穿刺,采集血液,并放血处死动物以确认安乐死效果。
注意:若先切除胆囊,可能损伤肝脏,导致心血管衰竭,无法获得足够的血液样本(≥ 200 µl)。 - 暴露左侧膈肌的腹面,辨认心脏搏动区域。在心搏最明显处,用连接1 ml注射器的23号针头穿刺膈肌和心脏。
- 边缓慢回抽注射器边进行抽吸。当血液开始进入注射器时,停止回抽并持续负压,以收集0.2–0.6 ml血液。若血流停止,可轻轻旋转针头或略微回撤以恢复血流。
- 将血液转移至1.5 ml抗凝管中,在2,000 × g下离心15分钟。加入四倍体积乙腈沉淀血浆,在12,000 × g下离心10分钟。采用液相色谱-串联质谱法(LC/MS/MS)11-1312-1412-1412-1412-14分析上清液。如需保存,可在分析前将血浆置于-80 oC储存。
- 使用钝性分离法将胆囊从肝脏游离。在夹闭下方切断胆总管,取出胆囊并称重,置于1.5 ml微量离心管中。同时采集肝脏组织。
- 在冰上使用21号玻璃匀浆器,将约100 mg肝脏组织和整个胆囊进行匀浆。分别加入75%乙腈和25%水的混合液(肝脏800 µl,胆囊300 µl)进行提取,在12,000 × g下离心10分钟。根据需要稀释提取液,采用LC/MS/MS11-13定量胆汁酸含量。
3. 活体动物质子(1H)和氟-19(19F)磁共振成像
- 为实现胆囊最大程度充盈,成像前至少禁食小鼠 6 小时。使用氯胺酮和赛拉嗪对小鼠进行麻醉,以防止其在磁共振成像(MRI)扫描仪中移动。在磷酸盐缓冲液(PBS)中配制氯胺酮与赛拉嗪的储备液(130 µl 氯胺酮,42.5 µl 赛拉嗪,827 µl PBS)。在 MRI 扫描前 1 小时,使用 1 ml 无菌注射器按每克体重 5 µl 的剂量皮下注射该溶液(相当于每千克体重 65 mg 氯胺酮和 4.25 mg 赛拉嗪)。为防止麻醉期间眼睛干燥,需将兽用眼膏涂抹于动物眼部。
- 按照上述方法使用氯胺酮/赛拉嗪诱导麻醉后,使用 #40 或更细的电动剃毛刀片,在小鼠腹部左下半部剪除约 1.5 cm2 的毛发区域。去除毛发后,用 8–12% 稀释的碘伏外科擦洗液对局部进行消毒,并以 70% 酒精冲洗,上述步骤重复一次。将一根 24 号、0.75 英寸长的针头/导管皮下插入,并穿入腹腔。回抽注射器活塞以确认导管未进入盲肠或其他腹腔器官——导管内不应出现血液或粪便物质。
- 拔出针头,保留腹腔内导管。将小鼠置于 MRI 扫描仪动物舱内的温控加热垫上。
- 准备一支 1 ml 无菌注射器,其中含有氯胺酮和赛拉嗪的磷酸盐缓冲液溶液(1,000 µl 氯胺酮,300 µl 赛拉嗪,6,700 µl PBS),并将该溶液灌注至所需长度的 72 英寸无菌导管中。将腹腔内导管连接至预充液的无菌导管,并将导管引离 MRI 扫描仪。若小鼠生命体征稳定,每 20 分钟注射 50 µl 该溶液以维持麻醉状态。
注意:成像前务必确认 MRI 扫描仪周围无任何金属物品。 - 使用19F/1H 双调谐线性容积 MRI 线圈,在 300.283 MHz 频率下对1H 核、在 282.524 MHz 频率下对19F 核发射和接收射频信号。
- 使用快速小角度激发序列(FLASH)获取三幅定位像(轴向、正中矢状和冠状面),完成系统校准11, 13及动物定位。在软件控制台的“扫描控制”窗口中点击“交通灯”按钮以启动实验。
- 采用快速自旋回波增强(RARE)序列,在样品或动物体的横断面上采集多层1H 磁共振图像,参数设置如下:重复时间 2,200 毫秒,回波时间 8.9 毫秒,RARE 因子 8,视野 4 × 4 cm2,层厚 1.0 mm,矩阵大小 266 × 266,面内分辨率 150 × 150 µm2,平均次数 6。在软件控制台的“扫描控制”窗口中点击“交通灯”按钮以启动实验。
- 在与1H MRI 相同的区域,使用 FLASH 序列采集19F 图像,参数如下:重复时间 220 ms,翻转角 = 30°,回波时间 3.078 ms,矩阵大小 32 × 32,面内分辨率 1.25 × 1.25 mm2,层厚 4.0 mm,平均次数 768。在软件控制台的“光谱仪控制工具”窗口中点击“GOP”(Go-On-Pipeline)按钮以启动实验。
- MRI 扫描完成后,通过腹腔注射 15 µl/g 体重的氯胺酮/赛拉嗪溶液(相当于每千克体重 150 mg 氯胺酮和 18 mg 赛拉嗪)实施安乐死,随后进行心脏穿刺放血。
- 若需使小鼠从麻醉中恢复,应先移除腹腔导管,但在其恢复足够意识以维持胸卧位前,不得无人看护。
- 为测定器官采集中19F 标记胆汁酸的浓度11–13,需按照上述方法使用氯胺酮加赛拉嗪维持麻醉状态。
访问受限。请登录或开始试用以查看此内容。
结果
利用MFBA进行体内 MRI以实时“观察”胆汁酸转运在科研和临床应用中均具有巨大潜力。此外,本文所述通过液相色谱-质谱联用技术对胆囊切除标本及其内容物进行生化分析的方法,可为影像结果提供验证手段。然而,这些方法的有效性依赖于精确的给药剂量、检测时间点的控制,以及胆囊在成像或手术切除过程中的准确定位。对于后者,操作过程中应尽可能减少对小鼠腹腔器官的干扰;即使对胆囊进行轻柔操作,也可能诱发其收缩并排空内容物。因此,为完整保留胆囊内容物,必须尽快在胆总管处放置夹钳。
采用此处建议的手术方法,应在腹部右上象限肝脏右前叶后方清晰辨认胆囊(图3)。将肝脏移开而不触碰胆囊,即可暴露胆总管以便夹闭。一旦夹闭到位,即可顺利进行本方案中所述其他步骤,完整切除胆囊。
数据在 表1
访问受限。请登录或开始试用以查看此内容。
讨论
CA-lys-TFA 和 CA-sar-TFMA 的合成以及 体外 使用稳定转染的表达ASBT的Madin-Darby犬肾细胞和表达钠/牛磺胆酸共转运多肽(NTCP)的人胚胎肾细胞进行其转运分析的实验细节见其他文献13,14此处重点介绍通过灌胃法对活体动物进行 MFBA 的口服给药,随后采集胆囊、肝脏和血液样本,用于分析 MFBA 含量,并特别通过活体动物磁共振成像(MRI)对胆囊内的 MFBA 进行成像。关键步骤包括避免使用含氟麻醉剂,因其可能产生竞争性信号干扰 19避免在夹闭胆总管前操作胆囊,以防胆囊收缩并在切除前排空,同时避免将金属物品放置在磁共振成像(MRI)扫描仪附近。
如本文及其他文献所述13,14,MFBA-MRI 在成功分析胆汁酸转运方面具有巨大潜力 体内 在正常与异常生理条件下均可应用。MFBA-MRI 的主要优势在于不涉及电离辐射(无论是使用天然非放射性氟标记的 MFBA,还是 MRI 本身均不产生电离辐射),且 MFBA 可经口服给药,无需静脉穿刺(与小鼠不同...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由美国国立卫生研究院下属的糖尿病与消化及肾脏疾病研究所(资助号:R21 DK093406 和 T32 DK067872,授予 J-P.R.)以及美国退伍军人事务部杰出研究奖(资助号:1BX002129,授予 J-P.R.)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 双件式21号全玻璃组织研磨器 | Kimble Chase Life Science, Vineland, NJ | 885351-0022 | |
| Bruker BioSpec 70/30USR Avance III 7T水平孔径磁共振成像仪 | Bruker Biospin MRI GmbH, Germany | 需配合Paravision 5.1版本软件使用(见步骤3.5) | |
| Bruker 40 mm 19F/1H双调谐线性体积线圈 | Bruker Biospin MRI GmbH, Germany | 需配合Paravision 5.1版本软件使用(见步骤3.5) | |
| Waters Acquity UPLC系统,配备四极杆检测器 | Waters Corporation, Milford, MA | ||
| Waters Acquity UPLC 乙烯桥杂化C8色谱柱,1.7 μm,2.1 x 50 mm | Waters Corporation, Milford, MA | ||
| 灌胃针 | Braintree Scientific, INC. | N-010 | 20 G-1.5" 弯头,带2.25 mm球头 |
| 2把不锈钢止血钳 | VWR | 10755-018 | 4英寸和5英寸,直头 |
| 氯胺酮 | MWI Veterinary Supply | 501090 | Ketamin zetamine 100 mg/ml |
| 赛拉嗪 | Akorn, Inc. | 20 mg/ml | |
| 腹腔内导管 | Abbott | AbbocathTM-T.I.V. G720-A01 4535-42 | 24-G x 0.75" |
参考文献
- Thomas, C., Pellicciari, R., Pruzanski, M., Auwerx, J., Schoonjans, K. Targeting bile-acid signalling for metabolic diseases. Nat Rev Drug Discov. 7, 678-693 (2008).
- Vallim, T. Q., Edwards, P. A. Bile acids have the gall to function as hormones. Cell Metab. 10, 162-164 (2009).
- Dawson, P. A., Karpen, S. J. Thematic Review Series: Intestinal Lipid Metabolism: New Developments and Current Insights Intestinal transport and metabolism of bile acids. Journal of Lipid Research. 56, 1085-1099 (2015).
- Dawson, P. A., et al. Targeted deletion of the ileal bile acid transporter eliminates enterohepatic cycling of bile acids in mice. J Biol Chem. 278, 33920-33927 (2003).
- Pattni, S., Walters, J. R. Recent advances in the understanding of bile acid malabsorption. Br Med Bull. 92, 79-93 (2009).
- Walters, J. R., et al. A new mechanism for bile acid diarrhea: defective feedback inhibition of bile acid biosynthesis. Clin Gastroenterol Hepatol. 7, 1189-1194 (2009).
- Hofmann, A. F., Mangelsdorf, D. J., Kliewer, S. A. Chronic diarrhea due to excessive bile acid synthesis and not defective ileal transport: a new syndrome of defective fibroblast growth factor 19 release. Clin Gastroenterol Hepatol. 7, 1151-1154 (2009).
- Flynn, C., et al. Deoxycholic acid promotes the growth of colonic aberrant crypt foci. Mol Carcinog. 46, 60-70 (2007).
- Glinghammar, B., Rafter, J. Carcinogenesis in the colon: interaction between luminal factors and genetic factors. Eur J Cancer Prev. 8, S87-S94 (1999).
- Bernstein, C., et al. Carcinogenicity of deoxycholate, a secondary bile acid. Arch Toxicol. 85, 863-871 (2011).
- Zheng, X., Ekins, S., Raufman, J. P., Polli, J. E. Computational models for drug inhibition of the human apical sodium-dependent bile acid transporter. Mol Pharm. 6, 1591-1603 (2009).
- Vivian, D., et al. Design and characterization of a novel fluorinated magnetic resonance imaging agent for functional analysis of bile Acid transporter activity. Pharm Res. 30, 1240-1251 (2013).
- Vivian, D., et al. Design and evaluation of a novel trifluorinated imaging agent for assessment of bile acid transport using fluorine magnetic resonance imaging. J Pharm Sci. 103, 3782-3792 (2014).
- Vivian, D., et al. In vivo performance of a novel fluorinated magnetic resonance imaging agent for functional analysis of bile acid transport. Mol Pharm. 11, 1575-1582 (2014).
- Raufman, J. P., et al. In Vivo Magnetic Resonance Imaging to Detect Biliary Excretion of 19F-Labeled Drug in Mice. Drug Metab Dispos. 39, 736-739 (2011).
- Ridlon, J. M., Kang, D. J., Hylemon, P. B. Bile salt biotransformations by human intestinal bacteria. J Lipid Res. 47, 241-259 (2006).
- Frisch, K., et al. N-methyl-11C]cholylsarcosine, a novel bile acid tracer for PET/CT of hepatic excretory function: radiosynthesis and proof-of-concept studies in pigs. J Nucl Med. 53, 772-778 (2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
