许多预测的(磷酸)脂酶在底物特异性和生理功能方面表征尚不充分。本文提供了一种优化酶活性、寻找天然底物并推断这些酶生理功能的实验方案。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
微生物产生多种多样的(磷)脂酶,这些酶被分泌到胞外,以使外部底物能够被生物体利用。此外,其他一些(磷)脂酶可能与产生它们的生物体在物理上相关联,导致内源性脂质的转化,并常常引发细胞膜的重塑。尽管在已知基因/蛋白质序列的情况下,可通过多种算法预测潜在的(磷)脂酶,但这些酶的活性、底物特异性以及可能的生理功能往往尚未通过实验验证。本文描述了针对底物特异性未知的候选(磷)脂酶优化酶活性检测条件的方法,并介绍了如何利用这些优化后的条件来寻找特定(磷)脂酶的天然底物。使用人工显色底物(如p-硝基苯基衍生物)可能有助于在标准条件下检测预测的(磷)脂酶是否存在微弱的酶活性。一旦发现此类微弱酶活性,便可系统地调整酶反应体系中的各项参数,以提高对人工底物的水解效率。在确定酶高效作用的反应条件后,应检测多种潜在天然底物是否可被降解,该过程可通过不同的色谱方法进行监测。明确新酶的底物特异性通常可为推测其潜在的生理功能提供假说,随后可通过实验加以验证。遵循这些方法,我们成功鉴定出一种磷脂酶C(SMc00171),该酶可在磷缺乏的生长条件下,介导根瘤菌Sinorhizobium meliloti细胞膜重塑过程中的关键步骤,即将磷脂酰胆碱降解为磷酸胆碱和二酰甘油。对于同一种生物体内另外两种预测的类patatin磷脂酶(SMc00930和SMc01003),我们重新定义了它们的底物特异性,并证实SMc01003是一种二酰甘油脂酶。
引言
甘油酯类脂质,如三酰甘油和(甘油)磷脂,是重要且可能是最为人熟知的脂质类别1。三酰甘油(TAGs)是脂肪或油类,通常作为储存型脂质,发挥潜在的能量和碳源作用。TAGs 可被脂肪酶降解,而脂肪酶通常由产生该酶的生物体分泌,用于消化外源性 TAGs,使其可作为碳源利用。此外,由于脂肪酶具有重要的生物技术应用价值,多年来已得到广泛研究2。
由于其两亲性以及近似圆柱形的结构,(甘油)磷脂具有形成膜的特性,通常构成双层膜的主要脂质成分3在简单的微生物中,例如细菌 大肠杆菌,仅存在三种主要的头部基团变体:磷脂酰甘油(PG)、心磷脂(CL)和磷脂酰乙醇胺(PE),尽管需要注意的是,每种头部基团在甘油骨架上均可连接大量不同的脂肪酰链 sn-1 或 sn-2 位产生大量不同的分子种类4其他细菌可能含有其他磷脂,或以其他磷脂替代。例如, Sinorhizobium meliloti一种土壤细菌,能够与豆科植物苜蓿形成固氮根瘤共生关系(Medicago sativa),除PE外还含有第二种两性离子磷脂磷脂酰胆碱(PC)5此外,不含磷或甘油的脂质也可能具有两亲性,并构成细胞膜的一部分。例如,在磷限制的生长条件下, S. meliloti,(甘油)磷脂在很大程度上被不含磷的膜脂所取代, 即, 磺脂、鸟氨酸脂和二酰基甘油三甲基高丝氨酸(DGTS)6在细菌中,DGTS由二酰基甘油(DAG)通过两步途径生成7 但DAG生成的来源尚不明确。脉冲-追踪实验表明,PC可能是DGTS的前体8 根据本文所述方法,我们鉴定出一种在磷限制条件下形成的磷脂酶C(PlcP,SMc00171),该酶可将磷脂酰胆碱(PC)转化为二酰甘油(DAG)和磷酸胆碱8.
在另一项研究中,我们发现当S. meliloti或Escherichia coli的酰基辅酶A合成酶(FadD)缺陷型突变株进入生长稳定期时,会积累游离脂肪酸9。尽管这些脂肪酸似乎来源于膜脂,但游离脂肪酸的确切来源或释放它们的酶尚未明确。再次采用本文所述策略,预测出两种类patatin样10(磷酸)脂酶(SMc00930和SMc01003),它们参与了S. meliloti中游离脂肪酸的生成11。令人意外的是,SMc01003以二酰基甘油(DAG)为底物,将其转化为单酰基甘油,最终生成甘油和游离脂肪酸11。因此,SMc01003是一种二酰基甘油脂酶(DglA)。
尽管目前已存在多种用于预测潜在(磷脂)酶的算法12,13,但这些酶的确切功能及其生理作用通常尚不明确。本文介绍了一种克隆并过表达预测或潜在(磷脂)酶的实验方案。本论文阐述了如何利用人工显色底物,为过表达的(磷脂)酶建立并优化酶活性测定方法。我们提供了若干实例,说明如何通过优化后的酶活性检测方法鉴定出真正的(磷脂)酶底物,并探讨这些发现如何增进我们对微生物生理学的理解。
访问受限。请登录或开始试用以查看此内容。
方案
1. 克隆并过表达预测脂肪酶的结构基因
- 使用聚合酶链式反应(PCR)14 以及特异性寡核苷酸(表1)15,扩增目的基因(smc01003, smc00930,或 smc00171),预计编码一种脂肪酶或磷脂酶,源自该宿主生物体的基因组DNA(即, S. meliloti).
- 引入特定的限制性酶切位点(根据设计的寡核苷酸序列)。用相应的限制性内切酶消化扩增的DNA片段,并将其克隆至表达载体中,例如pET系列质粒。16.
- 在确认克隆基因的正确DNA序列后,将载体转化至表达菌株,例如 大肠杆菌 BL21(DE3) pLysS16.
- 制备表达宿主的过夜预培养物 E. coli BL21(DE3) pLysS,携带含克隆基因的相应pET载体或空载体,在含有20 ml LB液体培养基(Luria Bertani broth)的100 ml培养瓶中17 以及所需的抗生素。将细胞在30℃下培养 °C(或脂肪酶来源细菌的通常生长温度)。
- 使用过夜预培养物,将500 ml预热的LB培养基(含所需抗生素)接种于2 L培养瓶中,使初始620 nm处的光密度(OD620) = 0.05。监测培养物生长,在 OD620 = 0.3,加入异丙基-β-D-硫代半乳糖苷(IPTG)至终浓度为 100 µM,并在30℃下振荡培养 °4 小时
- 孵育结束后,将每份培养物转移至500 ml离心管中,在4 °C下以5,000 x g离心 °C 下孵育 30 分钟。用 5 ml 悬浮缓冲液重悬细菌细胞沉淀(例如,SMc00930 和 SMc01003 表达细胞置于 50 mM Tris-HCl(pH 8.0)中,SMc00171 表达细胞置于 50 mM 二乙醇胺-HCl(pH 9.8)中)。将细胞悬液保存于 -80 ℃ °C 保存至使用。
2. 制备无细胞蛋白质提取物并测定蛋白质浓度
- 解冻细菌细胞悬液并置于冰上保存。将细胞悬液在20,000 lb/in²压力下通过预冷的高压细胞破碎仪三次。2. 在 4℃ 下以 5,000 × g 离心 30 分钟,去除完整细胞和细胞碎片 °C.
- 离心后,准备100和 500 µl 从上清液中取出用于后续分析的样品,并在 -80 保存 °C 保存至使用。
- 使用以下其中之一 100 µl 分装以通过选定方法或所述方法测定不同无细胞提取物的蛋白质浓度18.
3. 使用人工底物优化(磷)脂酶的酶活性
- 为初步检测不同酶的活性,可使用水解后产生有色产物的人工底物,例如 p硝基苯酚(p-NP)
- 对于已使用人工底物优化的酶活性测定 p-硝基苯酯底物(针对磷脂酶C PlcP (SMc00171) 以及预测的patatin样磷脂酶SMc00930和SMc01003),采用所述的移液方案 表2.
- 在探索一种新的潜在(磷)脂酶时,配制一种初始标准酶反应体系,包含 50 mM Tris-HCl(pH 8.5)、100 mM NaCl、0.05% Triton X-100、0.5 mM p含对硝基苯基的化合物p对硝基苯基磷酸酯,双-p-硝基苯基磷酸盐, p对硝基苯基癸酸酯,或 p-硝基苯棕榈酸酯)以及无细胞蛋白提取物(检测1、3、10、30、100、300和 1,000 µg在1 ml塑料比色皿中,总体积为1 ml。
注意:使用碱性 pH(图1) 当遵循时 p-硝基苯酯在连续检测中的水解反应。或者,可采用单时间点检测法,在一系列不同pH值条件下进行,于孵育结束时加入NaOH以终止酶反应,并确保所有反应体系达到相同的碱性条件以显色 p-NP 以酚盐形式存在。 - 在405 nm处监测吸光度随时间的变化,以反映产物生成所导致的吸光度上升 p-NP,在分光光度计中于30 °在5分钟内,量化初始的线性生成过程 p通过测定吸光度随时间变化的初始斜率来确定-NP。
- 计算浓度变化(Δc) p- 采用朗伯-比尔定律(ΔA = ε Δc d)计算-NP1.
注:ΔA 是测定的吸光度线性变化值,ε 是相应波长下的摩尔消光系数(单位为 M⁻¹·cm⁻¹)。-1 厘米-1),d 为光程长度(1 cm),Δc 为待测定的浓度变化(单位为 M)。- 考虑到检测体系体积为 1 ml,计算所需的量 p-NP 形成。
注意:量 = 浓度 × 体积。 - 通过将产物的生成量除以 p-NP 形成所需的时间即为其形成时间。通过将酶活性除以产生该活性所对应的蛋白质含量(以 mg 计),计算出酶的比活性。
- 考虑到检测体系体积为 1 ml,计算所需的量 p-NP 形成。
- 比较候选基因(smc00171, smc00930,或 smc01003) 已使用仅含有空载体的提取物进行表达。
注意:为了继续后续步骤,由表达候选基因的蛋白提取物引起的具体活性,应至少是仅含空载体的蛋白提取物所引起的具体活性的两倍或更高。 - 为进一步实验,选择那些发生水解的条件 p含硝基苯基的化合物在无细胞提取物中反应微弱即, 空载体)以及形成最显著的 p-NP 和 p-硝基苯酚根阴离子(图1当使用表达了候选基因的蛋白质提取物时,可以观察到这一点。
- 在3.1节确定初始酶活性后,通过改变pH值、缓冲液种类、缓冲液浓度、NaCl浓度、去垢剂(如Triton X-100)以及不同二价阳离子的有无,优化相应酶的测定条件。
- 针对每个变量的不同浓度,测定其特定酶活性(见3.1.4.2)(所得最高数值即为酶活性最高的条件)。将各变量所获得的最佳条件组合起来,确定一个优化的酶活性检测体系,使各变量均处于其最适浓度。
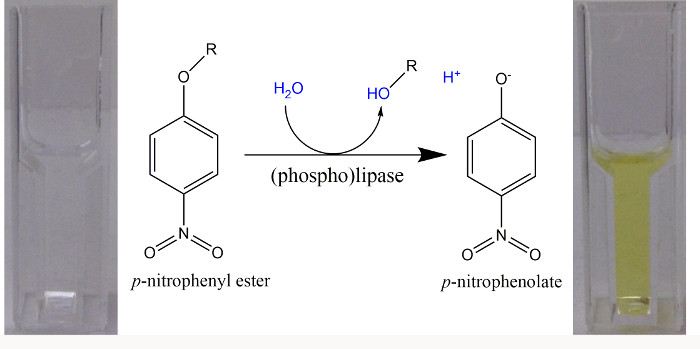
图1. p-硝基苯基酯作为(磷)脂酶在分光光度法测定中的人工底物 水解后 p-硝基苯基酯,一种酸(R-OH)和 p-硝基苯酚(p-NP)的形成。由于pKa = 7.2,用于酚羟基 H 的解离+ 从 p-NP,在 pH > 9.2 超过99%处于亮黄色 p-硝基酚盐形式,摩尔消光系数为18,000 M⁻¹·cm⁻¹-1 厘米-1 可在405 nm波长下用于游离态的定量分析 p-硝基苯酚盐22. 当使用 pH 为 8.5 的缓冲液时,在 400 nm 处测定吸光度,并采用摩尔消光系数 14,500 M⁻¹·cm⁻¹-1 cm-1 被采用23. 请点击此处以查看此图的放大版本。
注意:在确定了目标酶活性的最适条件后,即可开始寻找该脂肪酶的真实/生理底物。原则上,可通过两种通常互补的途径来实现这一目标,即体内(in vivo)方法或体外(in vitro)方法。
4. 体内 脂肪酶生理底物的鉴定
注意:在 体内 方法:在宿主生物中表达目标脂肪酶8,11 以记录脂酶表达是否随时间改变宿主的脂质谱型。在另一项实验中 体内 方法,构建目的基因缺陷型突变体8,11 并研究其脂质谱是否与野生型存在差异6,8,11为了定量评估生物体的脂质谱,一种简单的方法是对接胞化合物进行放射性标记,提取脂质,通过色谱法分离,并对分离后的放射性标记脂质进行定量分析。
- 脂质的放射性标记
- 准备目标生物的过夜预培养物(E. coli 或 S. meliloti在5 ml所需培养基(复杂培养基或限定的最低培养基)中培养,并在 30 °C.
- 从预培养物中接种20 ml相同的新鲜培养基至100 ml培养瓶中,以获得初始OD620 = 0.3 用于培养。
- 在无菌条件下取1 ml培养物,转移至14 ml无菌聚苯乙烯圆底管中。
- 添加 1 µCi [1-14C]乙酸盐(60 mCi 每 mmol)加入 1 ml 培养液中。
- 在振荡条件下孵育液体培养物 30 °C 24 小时
- 孵育结束后,将培养物转移至1.5 ml微量离心管中,在室温下以12,000 × g离心5分钟。
- 将沉淀重悬于 100 µl 水。此时,将细胞悬液置于 -20 °C 或立即继续进行极性脂质的提取(第4.2节)。
- 极性脂质的提取
注意:此处所述方法基本遵循 Bligh 和 Dyer 报道的实验步骤19.- 向 100 µl 加入水性细胞悬液 375 µl 甲醇:氯仿溶液(2:1;体积/体积)
- 涡旋振荡30秒,室温孵育5分钟。
- 室温下以 12,000 x g 离心 5 分钟。
- 将上清液转移至新的1.5 ml微量离心管中。
- 添加 125 µl 氯仿 125 µl 加水,涡旋振荡30秒。
- 室温下以 12,000 × g 离心 1 分钟。
- 将下层氯仿相转移至新离心管中,并用氮气流吹干。
- 将干燥的脂质溶解于 100 µl 氯仿:甲醇溶液(1:1;体积/体积)。
注意:此时,取一份等量样品 5 µl 脂质溶液的含量可通过液体闪烁计数进行定量。 - 对于薄层色谱(TLC)分析,将剩余样品干燥 95 µl 用氮气流吹干并重新溶解干燥的脂质 20 µl 氯仿:甲醇溶液(1:1;体积/体积)。使用 3 µl 用于薄层色谱分析的等分试样。
- 薄层色谱法分离极性脂质
注意:根据待分析的脂质类别,可采用不同的固定相与流动相组合进行分离。本文概述了两种典型分离方法:一种用于带电荷的极性脂质,另一种更适合中性极性脂质,均以高效薄层色谱(HPTLC)硅胶铝板作为固定相。- 二维薄层色谱法分离带电极性脂质
- 应用一种 3 µl 在高效薄层色谱硅胶铝板(10 × 10 cm)的一角,距板边沿2 cm处,点样一份脂质样品。
- 准备并混合用于第一维分离的流动相(140 ml 氯仿、60 ml 甲醇和 10 ml 水)。
- 在薄层色谱展开室内部贴上层析滤纸。
注意:在将第一维流动相加入 chamber 并用玻璃板密封 chamber 后,此举可确保 chamber 的气相在 30 分钟内迅速达到饱和。 - 配制并混合用于第二维分离的流动相(130 ml 氯仿、50 ml 甲醇和 20 ml 冰醋酸),转移至内壁贴有层析滤纸的第二块薄层层析展开槽中,静置使槽内饱和。
- 小心地将带有干燥脂质样品的HPTLC硅胶铝板转移至第一展开槽中并展开(即在密闭室中,沿第一维方向对平板进行60分钟的层析分离5.
- 将培养板从培养室中取出,在通风橱中静置30分钟以使溶剂挥发。
- 将薄层色谱板相对于前一次色谱方向旋转90度后,把已在一个维度上分离脂质的高效薄层色谱硅胶铝板转移至第二展层室中,进行第二维度展层,展层时间为60分钟5.
- 将薄层板从层析室中取出,在通风橱中静置至少2小时,使溶剂完全挥发。
- 中性极性脂质的分离
- 应用 3 µl 在高效薄层色谱硅胶铝板上,从板边缘起始 2 cm 处点样脂质样品的等分试样。若在一维色谱中分析多个样品,不同样品点样点之间的距离应至少保持 1.5 cm。
- 配制并混合流动相(140 ml 己烷、60 ml 乙醚和 8 ml 乙酸),转移至内壁贴附层析滤纸并用玻璃板覆盖的薄层色谱展开槽中,使槽内饱和(30 min)。
- 将点有干燥脂质样品的HPTLC硅胶铝板转移至展开室中,在密闭条件下展开30分钟。
- 从培养室中取出培养板,置于通风橱中晾干溶剂,持续2小时。
- 二维薄层色谱法分离带电极性脂质
- 分离极性脂质的定量与可视化。
- 薄层色谱板显色干燥后,将其与光激发发光(PSL)屏置于密闭暗盒中孵育3天。
- 将孵育后的薄层板暴露于PSL扫描仪下,获取分离的放射性标记脂质的虚拟图像。
- 使用 PSL 软件进行定量分析20.
- 极性脂质类别的可视化与分离
- 在层析缸中加入1 g碘晶体,将显色后的薄层色谱板在其中孵育10 min。
注意:分离出的脂类化合物会溶解碘,呈现为棕褐色斑点。 - 用铅笔圈出条带,将其与相对迁移率(Rf标准化合物的)即, 1,2-二棕榈酰基-sn-甘油、二棕榈酰-L-α-磷脂酰胆碱、DL-α-单棕榈酸甘油酯或棕榈酸),并确定它们可能属于哪类脂质。
- 在通风橱中,让薄层色谱板上的碘挥发。
- 借助刮刀,从薄层板上刮下含有目标化合物的硅胶,并用以下混合溶剂从硅胶中提取该化合物: 100 µl 水 375 µl 甲醇:氯仿溶液(2:1;体积/体积)
- 按照Bligh和Dyer方法继续进行提取,具体步骤如(4.2.2及以后)所述。
- 将纯化的脂质类别储存于 100 µl 氯仿:甲醇溶液(1:1;体积/体积)在 -20 °C 保存至使用。
- 在层析缸中加入1 g碘晶体,将显色后的薄层色谱板在其中孵育10 min。
5. 体外 脂肪酶生理底物的鉴定
注意:在一项 体外 方法:研究目标脂肪酶在3.2节所定义的最优条件下,是否能够将分离的混合脂质或单一纯脂质转化为相应的水解产物。
- 根据酶活性测定的加样方案进行操作 表3 用于PC特异性磷脂酶C SMc00171(见5.2)、磷脂酶A(见5.3)和DAG脂肪酶SMc01003(见5.4)的活性检测。
- PC特异性磷脂酶C活性的测定(表3).
- 向一个1.5 ml微量离心管中加入5,000计数每分钟(cpm)的总放射活性样本 14C标记的PC和Triton X-100溶液。
- 在氮气流下混合并干燥。
- 加入二乙醇胺-HCl(pH 9.8 缓冲液)、NaCl 和 MnCl2 溶液和双蒸水,以获得最终体积 99.5 µl涡旋振荡5秒。
- 添加 0.5 µl 酶5 µg 蛋白) (即, 加入含有过表达SMc00171的无细胞提取物以启动反应,短暂混匀。
- 孵育于 30 °C 4小时
- 通过添加终止反应 250 µl 甲醇 125 µl 氯仿。
- 按照之前所述方法提取脂质(见4.2)。
- 通过一维薄层色谱法(1D-TLC)分离脂质(参见4.3.2和4.4),并采用PSL成像技术进行分析。
- 磷脂酶A活性的测定(表3).
- 向一个1.5 ml的微量离心管中加入5,000 cpm的总 14C标记的磷脂和Triton X-100溶液。
- 在氮气流下混合并干燥。
- 最终 100 µl 检测时,加入 Tris-HCl(pH 8.5)缓冲液、NaCl 溶液和水。涡旋振荡 5 秒。
- 添加 5 µl 酶50 µg 蛋白)(即(一种含有过表达SMc00930或SMc01003的无细胞提取物)
- 孵育于 30 °C 5 小时。
- 通过添加终止反应 250 µl 甲醇 125 µl 氯仿
- 按照之前所述方法提取脂质(见4.2),使用130 ml 氯仿、50 ml 甲醇和20 ml 冰醋酸作为流动相,通过一维薄层色谱(1D-TLC)分离脂质,并通过PSL成像进行分析。
- 二酰基甘油(DAG)脂肪酶活性测定
- 制备 14C标记的DAG。
- 放射性标记 S. meliloti 培养物(见4.1),并按所述提取极性脂质(见4.2)。分离 S. meliloti 使用4.3.1节中所述的第二维分离条件,以氯仿:甲醇:乙酸(130:50:20;体积比)作为展开剂,通过一维薄层色谱(1D-TLC)分离总脂质提取物。
- 用碘染色法显色磷脂酰胆碱(PC),并用铅笔标记其位置。
- 按照4.5节所述分离放射性标记的PC。
- 通过闪烁计数法对提取的PC进行定量。
注意:预计可获得约 320,000 cpm 的 PC。 - 用0.1 U的磷脂酶C处理PC(250,000 cpm) 产气荚膜梭菌 在50 mM Tris-HCl(pH 7.2)、0.5% Triton X-100 和 10 mM CaCl中2 2小时内,总体积为 100 µl 通过添加终止反应 250 µl 甲醇 125 µl 氯仿
- 按先前所述提取脂质,并通过一维薄层色谱(1D-TLC)进行分离(参见4.3.2)。
- 从硅胶板上分离二酰甘油,并通过闪烁计数(如4.2节所述)进行定量
- 二酰基甘油脂肪酶活性检测表3).
- 向一个1.5 ml微量离心管中加入5,000 cpm的 14C标记的DAG和Triton X-100溶液
- 在氮气流中混合并干燥。
- 最终 100 µl 测定,加入 Tris-HCl (pH 9.0) 缓冲液、NaCl 溶液和重蒸水。涡旋振荡 5 秒。
- 通过添加启动反应 5 µl 酶50 µg 无细胞提取物中的蛋白质
- 孵育于 30 °C 4小时。
- 通过添加终止反应 250 µl 甲醇 125 µl 加入氯仿并按先前所述方法提取脂质(见4.2)。
- 通过一维薄层色谱法(1D-TLC,参见4.1.3.2)分析中性极性脂质,随后进行PSL成像。
- 制备 14C标记的DAG。
访问受限。请登录或开始试用以查看此内容。
结果
利用双-p-硝基苯基磷酸盐检测PC特异性磷脂酶C SMc00171的活性
从无细胞提取物中获得 E. coli BL21(DE3) x pLysS,其具有 smc00171 表达的蛋白被研究了其水解双-p硝基苯基磷酸酯,采用分光光度法酶学测定,检测其水解产物 p-NP 形成。在从无细胞提取物中获得的样本中未检测到水解活性 E. coli BL21(DE3) x pLysS 携带空 pET9a 载体(数据未显示)时的 bis-p以对硝基苯磷酸作为底物。
时间过程 p-NP 的形成表明,其产量对...
访问受限。请登录或开始试用以查看此内容。
讨论
在过去的20年中,许多生物体的基因组已被测序,尽管已产生了大量的基因组序列数据,但功能注释却相对滞后,从而阻碍了我们对基因组功能的理解。基因组中基因的功能通常基于与已知功能基因的相似性或保守基序的存在来推断。然而,特定基因的精确功能往往仍不清楚。特别是对于预测为编码酶的结构基因,由于大多数酶催化的反应涉及两种底物和两种产物,因此难以通过组学技术进行有效研究。目前,更可行的方法是研究那些至少有一种底物固定、而另一种底物可变的酶类群的底物特异性。例如,在真核生物中,大多数蛋白质的磷酸化基序已被明确,已将激酶的共识肽段固定在固相载体上以制备肽阵列。利用此类阵列和放射性标记的ATP,可测定某生物体中不同激酶的底物特异性和活性水平,从而建立激酶组谱型并确定其底物特异性24。水解酶是另一大类酶,其一种底物(水)是固定的,但被水解的(另一种)底物的具体性质通常尚不明确。此外,对于一种新酶而言,其最适检测条件往往也未知,这使得新酶活性的检测成为一个多变量问题。因此,若能将被水解的底物固定下来,将有助于确定该酶在何种条件下发挥最佳活性。
在本论文中,我们描述了针对底物特异性未知...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作由墨西哥国家科学技术委员会(CONACyT-Mexico)(基础科学研究项目编号 82614、153998、253549 和 178359 ,以及“科学前沿研究”项目编号 118)和墨西哥国立自治大学学术人事总署(DGAPA-UNAM;项目编号 PAPIIT IN202616、IN203612)的资助项目支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 氯仿 | JT Baker | 9180-03 | 薄层色谱分析 &脂质提取 |
| 甲醇 | JT Baker | 9070-03 | 薄层色谱分析 &和脂质提取 |
| 乙酸 | JT Baker | 9507-05 | 薄层色谱分析 &和脂质提取 |
| 己烷 | JT Baker | 9309-02 | 薄层色谱分析 &和脂质提取 |
| 乙醚 | Sigma | 32203 | 酶学检测 |
| 双蒸水 | 任意 | NA | 酶学测定 |
| Tris碱 | Sigma | T-1503 | 酶学测定 |
| HCl | 贝克 | 9535-02 | 酶学检测 |
| NaCl | 贝克 | 3624-01 | 酶活性测定 |
| Triton X-100 | Sigma | X-100 | 酶学检测 |
| LB肉汤 | 任意 | NA | 细菌生长,每升双蒸水中加入10 g胰蛋白胨 + 5 g酵母提取物 + 10 g NaCl |
| 胰蛋白胨 | 贝克顿·迪金森公司 | 211705 | 细菌生长 |
| 酵母提取物 | 贝克顿·迪金森公司 | 212750 | 细菌生长 |
| TY肉汤 | 任意 | NA | 细菌生长,8 g 胀蛋白胨 + 3 g 酵母提取物 + 66 mg CaCl₂2·2H2每升双蒸水 |
| CaCl2·2H2O | 贝克 | 1332-01 | 酶学检测 |
| 异丙基-β异丙基-β-D-硫代半乳糖苷(IPTG) | Invitrogen | 15529-019 | 细菌生长 |
| 二乙醇胺 | Sigma | D-8885 | 酶学检测 |
| MnCl2 | Sigma | 221279 | 酶学检测 |
| 磷脂酶A2 蛇毒 | Sigma | P0790 | 酶学测定 |
| 磷脂酶C 产气荚膜梭菌 | Sigma | P7633 | 酶学检测 |
| 双-p硝基苯磷酸盐 | Sigma | 07422AH | 酶学检测 |
| p对硝基苯基硬脂酸酯 | Sigma | N3627 | 酶学测定 |
| p对硝基苯十二酸酯 | Sigma | 61716 | 酶学检测 |
| p对硝基苯基癸酸酯 | Sigma | N0252 | 酶学检测 |
| p对硝基苯基棕榈酸酯 | Sigma | N2752 | 酶学检测 |
| p对硝基苯丁酸酯 | Sigma | N9876 | 酶活性测定 |
| p对硝基苯基辛酸酯 | Sigma | 21742 | 酶学检测 |
| 乙酸,[1-标记]钠盐14C] | Perkin Elmer | NEC084 | 细菌生长 |
| 二甲基亚砜(DMSO) | JT Baker | 9224-01 | 酶学测定 |
| 铝箔背衬高效薄层色谱硅胶60板。硅胶高效薄层色谱板,规格20 cm × 20 cm,25片/盒。 | 默克 | 105547 | 薄层色谱分析 &和脂质提取 |
| 紫外/可见分光光度计 Lambda 35 | Perkin Elmer | NA | 酶学检测 |
| Storm 820 磷光成像仪 | 分子动力学 | NA | 光激励发光扫描仪 |
| 多功能闪烁计数器 | 贝克曼库尔特 | NA | 放射性定量 |
| French压滤细胞器 | ThermoSpectronic | NA | 细胞破碎 |
| 3MM Chr 层析纸 | Whatman | 3030917 | 薄层色谱分析 |
| Sinorhizobium meliloti 1021小时 | 参考文献11 | 研究菌株 | |
| 大肠杆菌 BL21 (DE3) pLysS 感受态细胞 | Novagen | 69451 | 蛋白表达菌株 |
| pET9a 载体 | Novagen | 69431 | 蛋白表达载体 |
| pET17b 载体 | Novagen | 69663 | 蛋白表达载体 |
| 无菌聚苯乙烯圆底试管(14 ml)Falcon | Becton Dickinson | 352057 | 细菌培养物的放射性标记 |
| 聚丙烯微量离心管(1.5 ml) | Eppendorf | 30125.15 | 酶学检测 |
| 1,2-二棕榈酰-sn-甘油 | Sigma | D9135 | 脂质标准品 |
| L-α-磷脂酰胆碱,二棕榈酰 | Sigma | P6267 | 脂质标准品 |
| DL-α单棕榈酸甘油酯 | Sigma | M1640 | 脂质标准品 |
| 棕榈酸 | Sigma | P0500 | 脂质标准品 |
参考文献
- Nelson, D. L., Cox, M. M. Lehninger, Principles of Biochemistry. , W. H. Freeman and Company. New York. (2013).
- Jaeger, K. E., Eggert, T. Lipases for biotechnology. Curr. Opin. Biotechnol. 13 (4), 390-397 (2002).
- Dowhan, W., Bogdanov, M., Mileykovskaya, E. Functional roles of lipids in membranes. Biochemistry of Lipids, Lipoproteins and Membranes. , 5th, Elsevier. Amsterdam, The Netherlands. 1-37 (2008).
- Dowhan, W. Molecular basis for membrane phospholipid diversity: why are there so many lipids? Annu. Rev. Biochem. 66, 199-232 (1997).
- De Rudder, K. E. E., Thomas-Oates, J. E., Geiger, O. Rhizobium meliloti mutants deficient in phospholipid N-methyltransferase still contain phosphatidylcholine. J. Bacteriol. 179, 6921-6928 (1997).
- Geiger, O., Röhrs, V., Weissenmayer, B., Finan, T. M., Thomas-Oates, J. E. The regulator gene phoB mediates phosphate stress-controlled synthesis of the membrane lipid diacylglyceryl-N,N,N-trimethylhomoserine in Rhizobium (Sinorhizobium) meliloti. Mol. Microbiol. 32 (1), 63-73 (1999).
- Klug, R. M., Benning, C. Two enzymes of diacylglyceryl-O-4'-(N,N,N,-trimethyl)homoserine biosynthesis are encoded by btaA and btaB in the purple bacterium Rhodobacter sphaeroides. Proc. Natl. Acad. Sci. USA. 98 (10), 5910-5915 (2001).
- Zavaleta-Pastor, M., et al. Sinorhizobium meliloti phospholipase C required for lipid remodeling duringphosphorus limitation. Proc. Natl. Acad. Sci. USA. 107 (1), 302-307 (2010).
- Pech-Canul, A., et al. FadD is required for utilization of endogenous fatty acids released from membrane lipids. J. Bacteriol. 193 (22), 6295-6304 (2011).
- Banerji, S., Flieger, A. Patatin-like proteins: a new family of lipolytic enzymes present in bacteria? Microbiology. 150 (Pt 3), 522-525 (2004).
- Sahonero-Canavesi, D. X., et al. Fatty acid-releasing activities in Sinorhizobium meliloti include unusual diacylglycerol lipase. Environ. Microbiol. 17 (9), 3391-3406 (2015).
- Fischer, M., Pleiss, J. The Lipase Engineering Database: a navigation and analysis tool for protein families. Nucl. Acid. Res. 31 (1), 319-321 (2003).
- Sigrist, C. J. A., et al. New and continuing developments at PROSITE. Nucleic Acids Res. 41 (Database issue), D344-D347 (2013).
- Lorenz, T. C. Polymerase Chain Reaction: Basic Protocol Plus Troubleshooting and Optimization Strategies. J. Vis. Exp. (63), e3998(2012).
- Untergasser, A., et al. Primer3 - new capabilities and interfaces. Nucl. Acids Res. 40 (15), e115(2012).
- Studier, F. W., Rosenberg, A. H., Dunn, J. J., Dubendorff, J. W. Use of T7 RNA polymerase to direct expression of cloned genes. Methods Enzymol. 185, 60-89 (1990).
- Miller, J. H. Experiments in Molecular Genetics. , Cold Spring Harbor Laboratory Press. Plainview, NY, USA. (1972).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), e1610(2009).
- Bligh, E. G., Dyer, W. J. A rapid method for total lipid extraction and purification. Can. J. Biochem. Physiol. 37 (8), 911-917 (1959).
- Molecular Dynamics. Phosphorimager SI User´s Guide. , http://www.camd.lsu.edu/SAXS/Files/PIManual.pdf (1994).
- Dixon, M., Webb, E. Enzymes: Third Edition. , Longman, USA. (1979).
- Rudolph, A. E., et al. Expression, characterization, and mutagenesis of the Yersinia pestis murine toxin, a phospholipase D superfamily member. J. Biol. Chem. 274 (17), 11824-11831 (1999).
- Kato, S., Yoshimura, T., Hemmi, H., Moriyama, R. Biochemical analysis of a novel lipolytic enzyme YvdO from Bacillus subtilis. Biosci. Biotechnol. Biochem. 74 (4), 701-706 (2010).
- Peppelenbosch, M. P. Kinome profiling. Scientifica (Cairo). , Article ID 306798 (2012).
- Manafi, M., Kneifel, W., Bascomb, S. Fluorogenic and chromogenic substrates used in bacterial diagnostics. Microbiol. Rev. 55 (3), 335-348 (1991).
- Kuznetsova, E., et al. Enzyme genomics: Application of general enzymatic screens to discover new enzymes. FEMS Microbiol. Rev. 29 (2), 263-279 (2005).
- Scopes, R. K. Protein Purification, Principles and Practice. , Springer. New York. (2010).
- Geiger, O., Lopez-Lara, I. M., Sohlenkamp, C. Phosphatidylcholine biosynthesis and function in bacteria. Biochim. Biophys. Acta. 1831 (3), 503-513 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
