本文描述了在鸡胚中利用不可渗透屏障阻断主轴体与 flank 组织之间诱导事件的实验方案,该过程对肢体形成至关重要。通过使用浸有候选诱导信号分子的琼脂糖珠来克服屏障放置所产生的效应,并通过基因表达分析证实了这一结果。
本文内容
摘要
摘要
鸡胚是一种卓越的脊椎动物模型,可用于直接解析发育生物学问题。其在手术干预后仍具有良好的可及性和稳定性,是该模型关键的实验优势。云母片是最早用于阻止鸡胚肢芽起始的屏障材料。1. 描述了使用铝箔作为不透性屏障以阻断翅芽或肢芽诱导和/或起始的实验方案。我们将该技术与在屏障侧方放置含有外源因子的琼脂糖珠相结合,以提供被屏障阻断的候选内源性因子。结果通过以下方法进行分析: 原位 后续基因表达的杂交。我们的主要研究重点是视黄酸信号在鸡胚前肢和后肢诱导及后续启动中的作用。我们使用经BMS 493(视黄酸受体(RAR)的反向激动剂)浸泡的琼脂珠,将其植入侧板中胚层(LPM),以模拟在体节(视黄酸(RA)的来源)与肢体芽发育所来源的LPM之间设置屏障的效果。这些实验方案的改良版本也可用于研究其他关于诱导信号来源和作用时间的问题。只要在相应的发育阶段能够接触到鸡胚的特定区域,即可在两种组织之间设置屏障,并研究其对发育过程造成的影响。此类方法的应用实例包括发育中的脑、体轴延伸以及器官发育(如肝或肾的诱导)等研究。
引言
经典的胚胎学家传统上采用物理方法来探究控制胚胎发育的机制。在20世纪60年代和70年代,研究人员开发出一种技术,通过在发育中胚胎的组织之间插入不可渗透的屏障,以证明诱导信号在胚胎发生过程中的重要性。我们的研究兴趣在于脊椎动物肢体的发育,特别是肢体芽隆起之前发生的事件。例如,插入屏障可阻止鸡胚一侧肢体芽的隆起,而对侧未手术的一侧则能正常发育。用于制作这些屏障的材料各不相同,例如云母片1和钽箔2。这些屏障能有效地将肢体芽起源的侧板中胚层(LPM)与源自轴旁中胚层的体节分隔开来。手术移植技术表明,只有当侧板中胚层与体节紧密关联时,肢体芽的启动才能在LPM中发生34。在20世纪80年代和90年代,发育生物学家发现了对控制发育过程至关重要的可扩散信号分子。浸透这些信号分子的微珠可被植入胚胎的特定区域,并引起胚胎发育的改变。例如,通过离子交换微珠吸收的视黄酸(RA)在植入鸡胚后可在24小时内持续释放,并导致趾部出现镜像重复5。含有FGF蛋白的肝素丙烯酸微珠可诱导非肢体区域的侧板中胚层启动肢体芽的隆起6。
近年来,小鼠和鱼类遗传学研究将脊椎动物肢体起始的研究带入了一个新时代(详见文献7的综述)。已有充分证据表明,在肢芽起始之前体节中存在的视黄酸(RA)是侧板中胚层(LPM)启动肢芽形成所必需的可扩散信号。我们希望利用鸡胚易于操作且实验稳定性高的特点,深入解析在肢芽起始时期,屏障植入对侧板中胚层(LPM)基因表达的影响。本方法的一项新颖改进在于:将阻断轴向组织信号的屏障与置于屏障外侧的含有外源因子的琼脂糖珠相结合,从而人为补充那些被屏障阻断的候选内源性因子。以下所述即为用于解析肢芽诱导与起始机制而建立的一系列实验方案。
研究肢芽起始需要使用早期胚胎。许多研究人员通过皮下注射针从气室中抽出部分蛋清来打开鸡胚蛋。位于卵黄上方的胚胎会因此在蛋内位置降低。这对某些技术(如电穿孔)有利,但如果需要对胚胎进行手术操作则可能带来不利影响。我们发现,将胚胎尽可能靠近蛋壳开口处更为有利。
关于控制脊椎动物肢体芽诱导和启动的信号,目前仍存在诸多未解之谜,而以下方案适用于解决这些问题。我们是首个开发出在第12期之前(早于第12期)通过插入屏障以阻止鸡胚肢体芽向外生长的实验方案的研究团队8。这些方案的改良版本也可用于研究其他类似问题,例如当可接近的诱导组织紧邻被诱导的原基时,有关诱导信号来源及其时间窗口的问题。只要在相应的发育阶段能够接触到胚胎的特定区域,即可在两种组织之间放置屏障,并研究其对发育过程所产生的后续变化。此类应用实例可能包括脑发育、体轴延伸,以及可能的器官发育过程,如肝或肾的诱导。
方案
以下方案使用孵化时间不足十天的鸡胚。所有实验均按照英国伦敦国王学院及英国英国内政部动物护理指南进行。
1. 鸡胚操作前的准备工作
- 准备手术操作、采集和固定鸡胚所需的以下手术器械:5号钟表匠镊子两把、强韧镊子一把, 例如,型号AA,刀刃长2.5 cm的弯头剪刀,尖端约0.5 cm长的钝头弯镊,以及两对4号钟表匠镊子,用于制作箔屏障(1.6.3)。
- 使用油石将钢针(直径0.3 mm)磨锐制成微型刀具。在双目显微镜下,将针尖磨成扁平刀刃。将针固定于持针器中,并保护其锋利端免受碰撞和凹陷。
注意:将刀片用 1,000 µl 移液器吸头是此操作的一个简单选择。 - 在塑料洗瓶中配制70%乙醇。使用少量该乙醇喷洒在纸巾上,于使用前后擦拭手术器械和微型刀片,以达到消毒和清洁目的。
- 购买5 cm宽的透明胶带及合适的胶带 dispenser。制作或寻找一个支架,用于将鸡蛋侧放并保持稳定。
- 制备并储存用于浸泡微珠的溶液。
- 配制浓度为 0.35 mg/ml 的成纤维细胞生长因子 4(FGF4)蛋白溶液:将 1 mg/ml 的冷冻储备液用水稀释,分装后储存于 -80°C20 °C 在 30 µl 等分试样
- 配制全反式维甲酸(RA)溶液(浓度为 0.05 或 0.1 mg/ml),用二甲基亚砜(DMSO)将 5 mg/ml 储存液在避光微量离心管中稀释。储存储存液及稀释后的溶液于避光条件下,并 100 µl -80°C 分装保存20 °C.
- 配制 BMS 493(RAR 反向激动剂)溶液(浓度为 2.5 或 5 mg/ml),用 DMSO 将 10 mg/ml 储存液在避光微量离心管中稀释。储存储备液及 100 µl -80°C 分装保存20 °C.
- 使用铝箔制作屏障。
注意:用于制作屏障的铝箔为标准的餐饮用铝箔(用千分尺测得厚度为0.013 mm)。任何家用铝箔均可能适用。- 剪取一块1 cm²的铝箔,用蘸有70%乙醇的纸巾擦拭以灭菌。将其放入一个6 cm的无菌塑料培养皿中。弃去原培养皿盖,另用铝箔制作一个皿盖。
注意:这可以防止切割后的屏障因静电而粘附到培养皿的塑料盖上。 - 将培养皿置于双目显微镜下,物镜放大倍数设为1.6倍,其下方放置一分度值为100格、总长为1 cm的镜台测微尺。使用15号刀片的小型解剖刀,将金属箔切割成精确宽度的条状 例如,0.7 mm 或 1.3 mm。
- 使用两把4号钟表镊将箔条分开。然后在箔片屏障的中心处弯折成直角,使其形成特定宽度的铰链状结构。
注意:此屏障形状取自 9, 10铰链式屏障比直而平的屏障更稳固。4号镊子相对钝头,因此使用它可减少在箔片屏障上造成凹痕或划痕的风险。 - 将屏障在培养皿中央排列整齐,一侧紧贴培养皿底部,另一侧向上伸出皿外,将剩余未切割的铝箔移至一侧。操作日前需预先准备好20个或更多的屏障。将铝箔盖盖在培养皿上,将屏障存放于不受干扰的位置。
注意:即使轻微的触碰也可能导致屏障倾倒,或因静电而粘附在培养皿的侧壁上。
- 剪取一块1 cm²的铝箔,用蘸有70%乙醇的纸巾擦拭以灭菌。将其放入一个6 cm的无菌塑料培养皿中。弃去原培养皿盖,另用铝箔制作一个皿盖。
- 将受精的鸡卵置于纸板蛋托中,侧向孵化 38 °C 在手术日前适当培养一段时间,使胚胎发育至所需阶段 8 阶段
2. 手术当天鸡胚和琼脂糖珠的制备
- 对孵化中的鸡胚进行“开窗”处理。
注意:以下开蛋方法由 Dennis Summerbell 传授(未发表)。- 将鸡蛋侧放,用 AA 型强力镊子刺穿鸡蛋的钝端(气室端),确保刺破内壳膜。操作时需牢固夹紧镊子,用手稳定鸡蛋,以受控的穿刺动作完成。
- 将鸡蛋仍保持侧放,双手各置于鸡蛋一侧,沿水平轴旋转 180°,然后将其放回蛋托中,使原先朝上的侧面紧贴蛋托。
注意:此操作可使胚胎与壳膜松脱,从而在移除胚胎上方蛋壳时降低胚胎被切伤的风险。 - 取一块约 5 cm 见方的透明胶带,紧密贴在鸡蛋最上方的表面,以防止打开鸡蛋时蛋壳碎屑落入胚胎区域。
- 使用弯头剪刀轻轻刺破鸡蛋最上方中央部位的蛋壳及其膜结构,在剪刀单侧刀尖处开一个极小的孔,使空气能够进入胚胎上方的蛋内空间(胚胎位于蛋壳最上方下方不远处)。
注意:仅刺破壳膜而不破坏覆盖胚胎的膜层,进入蛋内的空气会将胚胎与蛋壳分离,使胚胎漂浮至卵黄上方,距离蛋壳约 0.5–1 cm 处。 - 用弯头剪刀将蛋壳上的小孔扩大成直径约 1 cm 的圆形开口。移除切下的蛋壳碎片,并用一块约 5 cm 见方的透明胶带覆盖蛋壳上的开口。为便于后续移除胶带,应仅将胶带粘贴在开口边缘,其余部分保持自由悬垂。之后可通过拉起自由部分的胶带来重新打开蛋壳。
- 确定胚胎发育阶段
- 在 38 °C 条件下孵化(见步骤 1.7)并完成开窗操作(步骤 2.1)后,使用双目显微镜根据文献8对鸡胚进行分期。此操作应在开窗后封蛋前立即完成。将每个胚胎的发育阶段标记在蛋壳上,并将鸡蛋放回孵育箱。
注意:发育阶段在 8 至 15 之间的胚胎适用于屏障和珠子实验。若胚胎在操作前未长时间暴露于孵育箱外,则更有可能存活。
- 在 38 °C 条件下孵化(见步骤 1.7)并完成开窗操作(步骤 2.1)后,使用双目显微镜根据文献8对鸡胚进行分期。此操作应在开窗后封蛋前立即完成。将每个胚胎的发育阶段标记在蛋壳上,并将鸡蛋放回孵育箱。
- 手术前珠子的预处理
- FGF4
- 取适量亲和层析凝胶珠(150–300 µm),使其附着于 1,000 µl 移液器吸头末端,放入微量离心管中,加入 1 ml 磷酸盐缓冲液(PBS)清洗,以去除保存时所含的叠氮化钠。离心 5 秒,弃去 PBS,重复清洗两次。
- 将凝胶珠浸泡于冰上预冷的无菌培养皿中含 0.35 mg/ml FGF4 蛋白的 30 µl 液滴中,持续 30 分钟。使用 5 号显微镊挑选直径约 150 µm 的珠子,用于植入胚胎。
注意:在后续步骤中操作离子交换树脂珠时,应使用 5 号显微镊,并轻柔夹持,因为此类珠子质地脆,若用力过大会导致破碎。此警告适用于 2.3.2–2.3.3 及所有涉及树脂珠的操作。
- RA
- 解冻一份用 DMSO 稀释的 0.05 或 0.1 mg/ml 全反式视黄酸(all-trans-RA),取 100 µl 滴加于已用铝箔包裹避光的无菌培养皿(直径 9 cm)中。使用 10 µl 移液器吸头,取少量氯离子型离子交换树脂珠置于吸头末端,将其浸入避光条件下的 RA 液滴中,室温孵育 20 分钟。
- 在同一个培养皿中,依次将珠子在三个相距至少 1 cm 的 100 µl DMEM 液滴中漂洗。
注意:珠子会吸附 DMEM 中的酚红染料。本方法参考文献5。 - 在培养皿下方放置显微镜载物台测微尺,结合 5 号显微镊挑选直径约 100 µm 的珠子(湿润状态下珠子直径范围为 75–180 µm)用于植入胚胎。从 100 µl DMEM 液滴中拾取珠子时,应先将珠子置于培养皿表面,然后通过推动珠子离开液滴,或在珠子旁放置闭合的镊尖(利用毛细作用将液体从珠子周围吸走),以去除残留的 DMEM。
- BMS 493
- 参照 RA 处理方法(2.3.2),将离子交换树脂珠浸泡于含 2.5 或 5.0 mg/ml BMS 493 的 DMSO 液滴(100 µl)中,室温孵育 20 分钟,随后在 100 µl DMEM 液滴中漂洗。挑选直径约 100 µm 的珠子用于植入胚胎。
- DMSO 对照
- 参照 RA 处理方法(2.3.2),将离子交换树脂珠浸泡于 100 µl DMSO 液滴中,室温孵育 20 分钟,随后在 100 µl DMEM 液滴中漂洗。挑选直径约 100 µm 的珠子用于植入胚胎。
- FGF4
3. 屏障与微珠操作
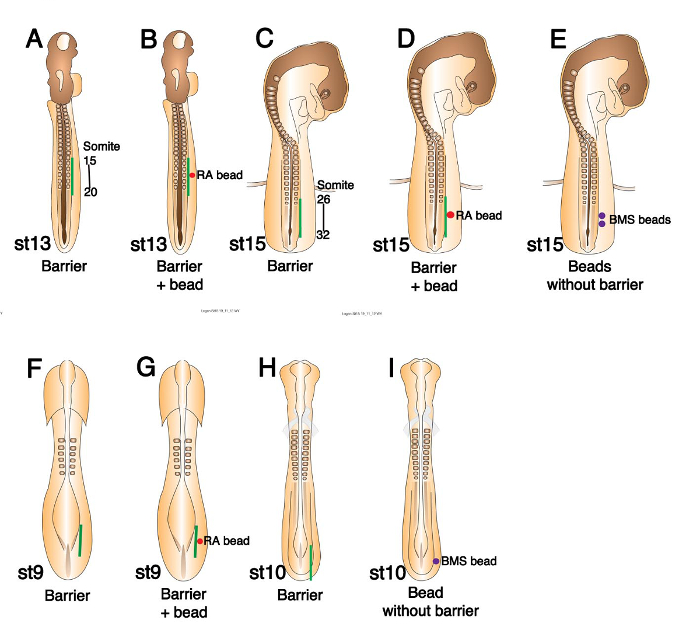
图1. 不同发育阶段鸡胚示意图,显示屏障和/或珠子应放置的位置。(A)13期鸡胚示意图,显示在预定翼水平(体节15–20)体节与侧板中胚层(LPM)之间的屏障位置(绿色线条)。(B)与(A)相同的示意图,指示在插入屏障前视黄酸(RA)珠(红色圆圈)应放置的位置。(C)15期鸡胚示意图,显示在预定腿水平(体节26–32)的屏障位置(绿色线条)。(D)与(C)相同的示意图,指示RA珠(红色圆圈)应放置的位置。(E)示意图显示在15期鸡胚侧板中胚层(LPM)中BMS 493珠(紫色圆圈)应放置的位置。(F)9期鸡胚示意图,显示在预定翼水平体节前中胚层与侧板中胚层(LPM)之间的屏障位置(绿色线条)。(G)9期鸡胚示意图,显示屏障(绿色线条)和RA珠(红色圆圈)的位置。(H)10期鸡胚示意图,显示在预定腿水平的屏障位置(绿色线条)。(I)示意图显示在10期鸡胚腿水平侧板中胚层(LPM)中BMS 493珠(紫色圆圈)的位置。本图经修改自7。请点击此处查看此图的放大版本。
- 在13期插入屏障以阻止翅芽起始。
- 从培养箱中取出一个13期胚胎,将鸡蛋置于解剖显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要)。移除上层透明胶带。
- 使用钢制微刀,在体节15至20附近的卵黄膜和侧板中胚层(LPM)上做切口图1A在胚胎右侧(此阶段体节尚未全部形成)进行切割,紧邻已形成的最后四个体节处下刀,并向尾部方向继续延伸切割两个体节的长度。
- 用5号显微镊夹住从培养皿边缘伸出的屏障(宽0.7–1 mm)末端,扭转手腕,将屏障的游离端插入切口。铰链状屏障平铺于卵黄膜上,位于侧板中胚层(LPM)上方,其中一半从体节远端的切口向下突出。尽快用透明胶带密封蛋壳,并将其放回培养箱中。
注意:微型刀片和镊子在接触卵黄膜后会变得粘滞。在进行下一次操作前,务必用70%乙醇将其擦拭干净。此注意事项适用于后续所有操作步骤及微珠植入实验。 - 如果需要将珠子与屏障联合使用,首先用5号显微镊夹取珠子,将其插入切口远端侧LPM的切面上,然后将屏障插入珠子近端的切口处图1B)。密封鸡蛋并立即放回培养箱中。
- 从培养箱中取出一个13期胚胎,将鸡蛋置于解剖显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要)。移除上层透明胶带。
- 在15期插入屏障以阻止肢芽起始。
注意:本操作结果的一个示例见于 Tbox 4 转录因子 (Tbx4 表达显示在 图 2D 和 2E.- 从孵育箱中取出一个15期胚胎,将蛋置于体视显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要)。移除上层透明胶带。
- 使用钢制微刀在第26至第32体节附近的卵黄膜和侧板中胚层上进行切口图1C在胚胎右侧(此阶段体节尚未全部形成)进行切割,紧邻最后形成的两个体节处下刀,并向尾部方向继续切割五个体节的长度。
- 用5号显微镊夹住屏障(宽1.2-1.3 mm)的一端,扭转屏障以将游离端插入切口。尽快用透明胶带密封蛋壳,并将其放回培养箱中。
注意:铰链状屏障平放在体节远端切口下方的卵黄膜上,覆盖侧板中胚层(LPM),其一半向下突出穿过切口。 - 如果需要将微珠与屏障联合使用,首先用5号显微镊夹取微珠,将其插入切口远端侧LPM的切面内,然后将屏障插入微珠近端的切口处图1D)。密封鸡蛋并立即放回培养箱中。
- 若需在无屏障的情况下插入一个或多个微珠, 例如在15期将BMS 493包埋珠置于腿部区域时,无需进行长切口(3.2.2.1)。仅需通过卵黄膜并在侧板中胚层(LPM)预定放置珠子的位置做一个小切口。用5号显微镊夹取包埋珠,将其插入LPM的切口内,并用镊子闭合的末端轻轻推入更深位置图1E).
- 从孵育箱中取出一个15期胚胎,将蛋置于体视显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要)。移除上层透明胶带。
- 在第9阶段插入屏障以阻止肢芽的诱导与起始。
- 从培养箱中取出一个8或9期的胚胎,将蛋置于双目显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要选择)。
- 使用钢制微型刀片,在胚胎尾端沿体节排列方向、原条的侧方和头侧的卵黄膜及侧板中胚层上做一个切口图1F约5个体节长度。
- 用5号显微镊夹住从培养皿边缘伸出的屏障(宽0.7–1 mm)末端,扭转手腕,将屏障的游离端插入切口。尽快用透明胶带密封蛋体,并放回培养箱中。
注意:铰链状屏障平放在LPM上方的卵黄膜上,其中一半通过切口向下突出。 - 如果需要将珠子与屏障联合使用,首先用5号显微镊夹取珠子,将其插入切口远端侧LPM的切面内,然后将屏障插入珠子近端的切口处图1G)。密封鸡蛋并立即放回培养箱。
- 从培养箱中取出一个8或9期的胚胎,将蛋置于双目显微镜下的蛋托上,显微镜放大倍数调至3.2倍或更高(根据需要选择)。
- 在10期插入屏障以阻止肢芽的诱导与起始。
注意:本操作结果的一个示例见于 Tbx4 表达显示在 图 2G.- 从培养箱中取出一个10期胚胎,将卵置于双目显微镜下的卵托上,显微镜放大倍数调至3.2倍或更高(根据需要选择)。
- 使用钢制微刀,在胚胎尾端沿体节方向,于原条外侧的卵黄膜和侧板中胚层上做一切口图1H约6个体节长度。
- 用5号显微镊夹住从培养皿中伸出的屏障末端(宽1.2 mm),旋转手腕,将屏障的自由端插入切口。尽快用透明胶带密封蛋体,并放回培养箱中。
注意:铰链状屏障平放在LPM上方的卵黄膜上,其中一半通过切口向下突出。 - 若需在无屏障的情况下插入珠子, 例如, 在10期时将BMS 493珠置于腿部区域,通过卵黄膜在侧板中胚层(LPM)目标位置处做一个小切口。用5号显微镊夹取珠子,将其插入LPM的孔中,并用镊子闭合的末端轻轻推入更深处(图1I).
- 从培养箱中取出一个10期胚胎,将卵置于双目显微镜下的卵托上,显微镜放大倍数调至3.2倍或更高(根据需要选择)。
- 操作后24小时或更长时间,检查屏障相对于对侧新出现的肢体芽的位置。若屏障明显未对准左侧肢体芽,则弃用该胚胎;此种情况下,屏障位置放置错误。
4. 胚胎收集、固定及整体染色样本制备 原位 杂交(WISH)
- 术后采集胚胎。
- 在19-23期收获胚胎,确保操作侧与对侧对照侧的肢芽形态均清晰可见。
- 使用弯头剪刀在蛋壳上剪出一个较大的孔。用显微镊子夹住胚胎左侧的大血管,沿胚胎周围剪开。借助对血管的夹持将胚胎取出,并置于盛有磷酸盐缓冲液(PBS,pH 7.3)的培养皿中。
- 在双目显微镜下,使用弯剪和5号显微镊结合分离去除胚外血管和膜组织。用剪刀切除头部。
- 在19-23期收获胚胎,确保操作侧与对侧对照侧的肢芽形态均清晰可见。
- 胚胎收获后的固定
- 使用弯头钝头镊子将胚胎提起,并置于5 ml 4%多聚甲醛(PFA)PBS溶液中,室温下振荡固定2小时,随后置于 4 °C 在带有螺旋盖的20 ml玻璃瓶中过夜。
注意:PFA 对健康有严重危害。它是一种有害、具有腐蚀性的刺激物,其粉末必须避免接触皮肤、眼睛和肺部。配制溶液时应穿戴个人防护装备,并在通风橱中操作。配制成 4% 溶液后,仍须佩戴手套、护目用品并穿上实验服。
注意:为了最大程度地保持 mRNA 的完整性,必须尽快将胚胎放入固定液中。
- 使用弯头钝头镊子将胚胎提起,并置于5 ml 4%多聚甲醛(PFA)PBS溶液中,室温下振荡固定2小时,随后置于 4 °C 在带有螺旋盖的20 ml玻璃瓶中过夜。
- 整体样本前的屏障去除 原位 杂交。
注意:屏障已被移除,因为它们具有锐边,在胚胎通过时可能造成损伤 原位 杂交实验方案,尤其是当多个胚胎同时进行染色时。- 固定后,将胚胎置于盛有PBS的培养皿中,在双目显微镜下观察。
- 使用两把5号显微镊,将左侧镊子置于胚胎手术侧屏障两侧附近。用右侧镊子夹住屏障,并用左侧镊子压住胚胎以固定,同时轻轻将屏障从胚胎上拉出,防止移除过程中任何组织黏附于屏障。
- 按照所述方法进行WISH实验 11.
结果
上述方案详细描述了Nishimoto et al., 2015中所采用的方法。该研究探讨了鸡胚前肢和后肢肢芽的诱导与起始过程。此前已有研究报道了插入不可渗透屏障以阻止前肢芽向外生长的结果1, 2, 9,但描述阻止后肢芽起始的屏障实验仅有一次研究报道1。本文展示了Nishimoto et al., 2015中的后肢数据,作为插入屏障后mRNA表达研究的代表性结果。
LPM 中的 Tbx4 表达不足以启动后肢外突生长:
图 2B 和 C(表 2)显示,在 15 阶段插入屏障(图 2A)(见方案 3.2)导致手术侧右侧肢芽区域(由方括号标示)中 Fgf10 和 Fgf8 的表达均缺失,与未手术的左侧进行比较。然而,在手术侧,Tbx4 的表达在 19 阶段和 23 阶段均可观察到(图 2D 和 E)。我们得出结论:Tbx4 的表达本身不足以从 LPM 启动后肢的外突生长。在鸡中的其他研究表明,Tbx 基因的表达足以启动前肢芽的形成12, 13。
图 2C' 用于展示固定后胚胎腿部区域中屏障的嵌入状态。在大多数情况下,屏障在固定前已被移除。 原位 杂交(方案 4.3)
体节来源的视黄酸(RA)在Fgf10诱导肢芽隆起之前对侧板中胚层(LPM)至关重要:
图3A为在15期插入屏障后,于其远端放置经视黄酸(RA)浸泡过的珠子的示意图(方案3.2.1.3)。操作后,在处理侧右肢可观察到肢芽隆起(以星号表示),且Tbx4、Fgf10和Fgf8在芽体中的表达与对照侧左肢相同(图3B、C和D,表2)。因此,在侧板中胚层中添加视黄酸(RA)可克服屏障的影响,使肢芽启动过程得以进行。我们得出结论:在正常发育过程中,体节来源的视黄酸(RA)在肢芽隆起启动前对侧板中胚层是必需的。所形成的后肢芽通常比对照侧的小,这可能是由于侧板中胚层中的RA剂量与野生型情况不完全相当所致。若RA剂量过高,顶外胚层脊(AER)可能缩短,从而导致肢芽较小14, 15。
为了证实体节来源的视黄酸(RA)在侧板中胚层(LPM)中对正常肢芽起始是必需的,使用了视黄酸受体(RAR)的逆向激动剂 BMS 493。在发育第15期时将含有该化合物的琼脂糖珠植入腿部区域的侧板中胚层(见方案 3.2.1.4)(图3E)。在 LPM 中植入 BMS 493 琼脂糖珠后,Fgf10 的表达下调,导致与对照侧相比后肢芽更小(图3F;表3)。对照组 DMSO 琼脂糖珠则不会引起此类缺陷(图3G 和 图3H;表3)。应用 BMS 493 所引起的缺陷程度较屏障手术所诱导的缺陷更轻微;即 Fgf10 仍有一定表达,且肢芽仍能形成。这可能是因为 BMS 493 的作用局限于琼脂糖珠周围区域,可能无法完全拮抗轴向组织所产生的全部视黄酸。
早期体轴信号决定将来表达Tbx4的侧板中胚层细胞:
我们检测了侧板中胚层(LPM)在预期形成腿部区域获得表达Tbx4能力的时间点。能够插入屏障并随后阻断肢芽外突的最早时期为10期。我们是首个开发出可在早于12期阶段插入屏障方案的研究团队。在10期将屏障插入轴旁中胚层与预期腿部形成的LPM之间(见方案3.4),可阻断肢芽形成以及腿部LPM中Tbx4的表达(图2F和2G,表2),这表明10期时来自轴向组织的信号对于后肢LPM中后续Tbx4的表达是必需的。将此结果与图2D和2E对比,后者在较晚时期插入屏障仍允许Tbx4表达建立。此外,我们通过观察RAR逆向激动剂是否能降低Tbx4的表达,来检验该轴向信号是否可能为视黄酸(RA)。在10期将BMS 493包埋珠置于后肢LPM中(见方案3.4.1.3),可下调Tbx4的表达(图2H和2I),而用DMSO浸泡的对照珠则不影响Tbx4的表达(图2J和2K)。综上,这些结果支持一种模型,即来自轴向组织的RA信号通过正向调控后肢LPM中的Tbx4,从而调节肢体诱导过程7。
术后死亡:
表 1、2 和 3 详细列出了实验结果,包括手术后至收获前死亡的鸡胚数量。此类显微手术后出现部分胚胎死亡属正常现象。通过确保器械清洁、蛋壳开孔尽可能小、胚胎暴露于胶带密封保护之外的时间尽可能短,以及尽可能快速完成手术(与前一点相关),可将死亡数量降至最低。这些操作本身均不耗时,但涉及琼脂糖珠和屏障的操作稍费时间。尽管采取上述措施,在最早期阶段进行的操作以及在翼区进行的操作仍更易导致胚胎死亡。肢体形成区域周围存在较大的血管,这些血管若意外破裂,可能导致失血性死亡。我们发现,在 8 或 9 期打开但未进行手术操作的鸡胚,常在次日死亡。因此,解决这些问题的唯一方法是开展较大量的实验。
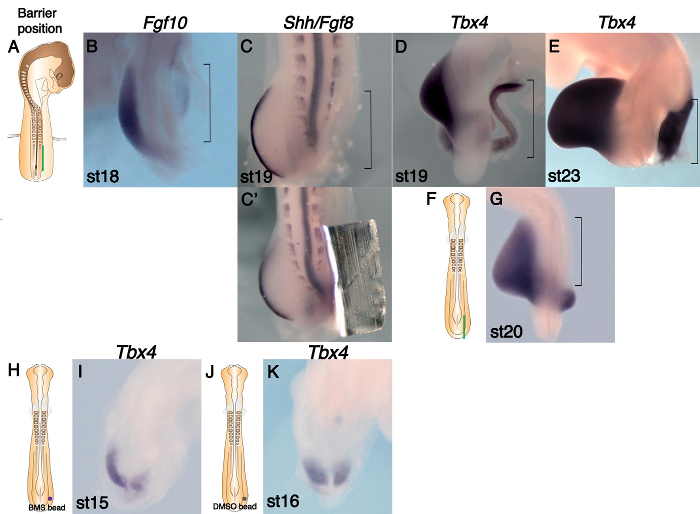
图 2. 在预定肢区水平插入屏障或珠子后标记基因表达的变化。(A)示意图显示在15期胚胎的预定肢区水平(体节26-32)插入屏障的位置(绿色线条)。(B-E 和 G)对操作后胚胎进行WISH分析。肢区以括号标出。(B)操作侧侧板中胚层(LPM)中未检测到 Fgf10 表达,但在左侧肢芽中检测到强表达。(C)操作侧未检测到 Fgf8 表达,提示该侧无外胚层顶脊(AER)。(C')同一胚胎在移除屏障前的状态。(D)Tbx4 在与对照侧肢芽相同头尾水平的侧板中胚层中表达。(E)尽管肢体未生长,Tbx4 在右侧肢区的表达仍得以维持。(F)示意图显示10期鸡胚中屏障插入位置(绿色线条)位于预定肢区水平。(G)操作侧右侧侧板中胚层中未检测到 Tbx4 表达(括号所示)。(H)示意图显示10期鸡胚中BMS 493珠子的位置(紫色圆圈)位于预定肢区水平。(I)经BMS 493处理后,操作侧右侧的 Tbx4 表达下调。(J)示意图显示10期鸡胚中对照DMSO珠子的位置(灰色圆圈)。(K)单独使用DMSO处理后,操作侧右侧的 Tbx4 表达水平与对照侧左侧相似。本图经修改自7。请点击此处查看此图的放大版本。
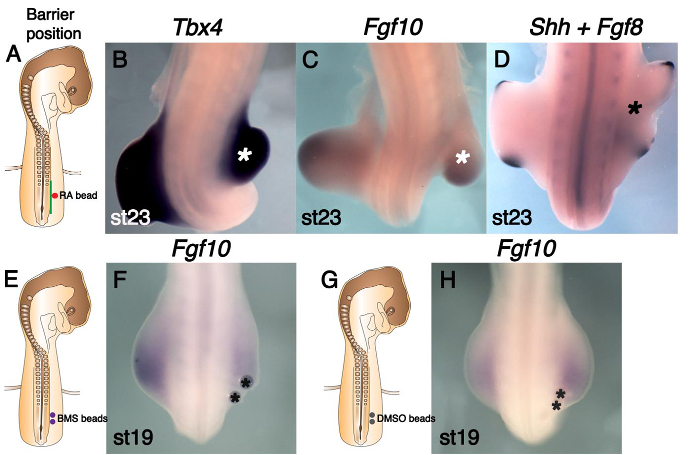
图3. 视黄酸可挽救因屏障插入导致的肢芽缺失,并在腿芽向外生长之前的侧板中胚层中起关键作用。 (A) 示意图显示在预定腿部位置(体节26-32)的屏障(绿线)及维甲酸(RA)浸泡的微珠(红圈)。B-D) RA 可挽救肢芽的外向生长(以星号标示)。B) Tbx4 的表达存在于被挽救的腿芽中,与未手术侧相似。 (C) Fgf10 在挽救的腿芽中,其表达与未手术侧相似。D) Fgf8 在 rescued 右腿芽的 AER 中表达。E) 示意图显示将 BMS 493 微珠(紫色圆圈)置于 15 期胚胎预定腿部侧板中胚层的位置。F) Fgf10 表达在经BMS 493处理后于手术侧右侧下调,且肢芽较小。珠子以星号标注。G) 与 (E) 类似的示意图,显示对照 DMSO 微珠的位置(灰色圆圈)。HDMSO微珠(由星号标示)未产生影响 Fgf10 表达或肢芽大小。该图已由 7. 请点击此处以查看此图的放大版本。
| 发育阶段屏障放置(+珠子)* | 操作数量 | 翅膀缺失 ** | 翅膀存在 ** | 死亡数量 |
| 阶段 12-14 | 40 | 24 | 1 | 15 |
| 阶段 8/9 | 65 | 23 | 0 | 42 |
| 阶段 12-13 (FGF4 珠子) | 41 | 7 (珠子缺失) | 17 | 17 |
| 阶段 12-13 (RA 珠子) | 75 | 9 (珠子缺失) | 32 | 34 |
| 阶段 13 (对照珠子) | 5 | 3 | 0 | 2 |
| * 0.7-1 mm 铝箔屏障置于体节 15-20 与侧板中胚层之间。FGF4 珠子浓度为 0.35 mg/ml。RA 珠子浓度为 0.05-0.1 mg/ml。 | ||||
| DMSO 对照珠子。 | ||||
| ** 鸡胚在发育阶段 21-23 固定 | ||||
表1. 翅片水平屏障与微珠实验结果。
| 发育阶段屏障放置(+珠子)* | 操作数量 | 缺失腿部 ** | 存在腿部 ** | 死亡数量 |
| 阶段 12-15 | 43 | 39 | 0 | 4 |
| 阶段 10/11 | 23 | 16 | 0 | 7 |
| 阶段 15 (FGF4 珠子) | 8 | 0 | 5 | 3 |
| 阶段 15 (RA 珠子) | 18 | 0 | 18 | 0 |
| * 0.7-1.3 mm 铝箔屏障置于体节 26-32 与侧板中胚层之间。FGF4 珠子浓度为 0.35 mg/ml。RA 珠子浓度为 0.05-0.1 mg/ml。 | ||||
| ** 鸡胚在发育阶段 18-24 固定 | ||||
表2. 腿部屏障与微珠实验结果。
| 手术数量 | 肢芽较小 | 肢芽略小 | 肢芽正常大小 | 死亡数量 |
| BMS 493 beads * | ||||
| 15 | 12 | 3 | 0 | 0 |
| DMSO beads ** | ||||
| 12 | 0 | 3 | 9 | 0 |
| * 在腿部水平位置的右侧第14-15期侧板中胚层中植入2-3个经5 mg/ml BMS 493溶液浸泡的珠子。 | ||||
| ** 在腿部水平位置的右侧第15期侧板中胚层中植入2-3个仅经DMSO浸泡的珠子。 | ||||
| 鸡胚在第17-19期固定。 | ||||
表3. 腿部水平BMS 493珠子实验结果。
讨论
我们描述了使用不可渗透屏障来阻止鸡胚肢体芽的形成。该技术包含多个关键步骤。经过初步实验,我们发现与直线形屏障相比,9, 10中使用的铰链形屏障在胚胎中保持原位的效果显著更好。屏障远端的扁平部分可贴附于卵黄膜上,从而固定屏障位置(图2C')。按照方案步骤1.6所述,使用铝箔仔细制备铰链形屏障,对操作成功至关重要。第二个重要步骤是确保在开窗、胚胎分期后,不要将鸡蛋在孵育箱外放置过久,以免影响后续对胚胎的操作。根据我们的经验,若操作时胚胎处于或接近孵育温度,则其存活率更高。因此,操作应尽快完成,并立即重新封合鸡蛋,以确保较高的存活率。许多研究人员在显微手术后、将鸡蛋放回孵育箱前,会向胚胎中加入一滴抗生素。然而,液体的存在会影响屏障的牢固贴附。此外,添加抗生素还可能导致珠子在植入后移位。因此,建议不使用抗生素,操作迅速,并保持器械清洁,以避免感染。每次操作步骤后,用70%乙醇擦拭器械,对于防止器械因接触卵黄膜而变得粘滞至关重要,这种粘滞可能导致屏障或珠子粘附在镊子上(参见方案步骤3.1.2.2)。所使用的两种珠子在操作后均可能发生移位。次日检查屏障位置时,无法透过屏障观察珠子是否仍处于原位。在珠子脱落的情况下,翼芽的再生长未得到挽救(表1)。植入珠子时避免携带液体,有助于珠子更牢固地粘附于侧板中胚层(LPM)的切割面(参见方案步骤2.3.2.3)。最后,确保在收获胚胎后立即进行固定,对于后续良好的基因表达分析至关重要(参见方案步骤4.2)。
本方案改进了先前使用屏障阻止肢芽起始的实验方法,定义了屏障的最佳宽度,并引入了屏障与琼脂糖珠联合放置后进行基因表达分析的技术。我们发现,使用常规铝箔(价格低廉且在所有实验室中均易获得)所获得的结果与先前使用钽箔的效果相当。在进行后续胚胎实验时,可将铝箔保留在胚胎内 原位 杂交图 2C')但若处理多个胚胎,我们通常会将其移除,以防止锡箔的锋利边缘损伤胚胎。预实验表明,腿部区域屏障的宽度尤为关键。最初尝试的屏障过窄,无法有效阻止肢芽的外向生长。1.2–1.3 mm 是完全阻断肢芽外向生长的最佳屏障宽度。在翼芽区域,能够被准确放置并阻止芽体外向生长的最窄屏障可带来最高的存活率,其宽度可窄至 0.5–0.7 mm。然而,稍宽一些的屏障(如 0.7–1 mm)更有可能完全阻断翼芽的外向生长,因其对放置位置的微小误差具有更高的容错性。在制作切口时,必须避免损伤血管,这对翼芽水平的屏障操作尤为关键。此前已有研究使用半透性屏障对鸡胚肢芽进行分割。MacCabe 和 Parker(1976)以及 Summerbell(1979)分别采用了孔径为 0.45 µm 和 0.8 µm 的滤膜 16, 17. 他们报告称,可扩散信号能够穿过滤膜上的孔隙,而使用半透性屏障所获得的结果介于无屏障的肢芽与使用不可渗透的钽箔屏障的肢芽之间。该方案可进一步改进,采用不同孔径的半透性屏障,以根据信号分子的大小对其进行筛选,或调节信号扩散的动力学过程。
该方案存在多种局限性,主要与模式生物本身相关。此类技术可用于进一步探究肢体发育及其他脊椎动物胚胎发生的问题。需要注意的是,所研究的器官或区域必须在鸡胚可进行干预的时期处于发育阶段。若目标区域存在较大的血管,则在第13或14期之后放置屏障在技术上具有挑战性;若在放置屏障过程中切断大血管,可能导致胚胎死亡。我们对转录因子Tbx5和Tbx4在侧板中胚层(LPM)中首次被诱导的时间点的研究,受限于能够成功放置屏障的最早时期——该屏障后续需分别位于翼芽或腿芽的对侧。尝试在更早时期(接近原肠胚形成期)阻断Tbx基因的诱导可能具有启发意义。在翼区预定区域成功放置屏障的最早时期为第8期,在腿区为第10期。该方案可能不适用于肢体芽后期基因表达的研究,因为后续的快速生长会使屏障发生移位,实验结果仅能反映屏障初始位置的影响。
尽管在此背景下存在鸡胚的局限性,但与其他脊椎动物模型生物相比,其优势众多。鸡胚是进行脊椎动物胚胎物理干预研究的非常合适的动物模型。胚胎相对较大,且可通过蛋壳方便地接触。只需移除封口胶带制成的窗口,即可反复返回胚胎进行进一步实验(例如取出琼脂糖珠18或甚至移除屏障),或观察实验进展。该体系具备开展活体成像或延时成像的潜在可能。本文描述了一种特别适用于早期胚胎操作的鸡胚蛋窗技术。在肢体发育研究中,每次实验均存在对侧对照肢体,可作为每个生物学重复的理想内部对照,这一点极为重要且具有帮助性。
使用不可渗透屏障阻止肢体生长与用信号分子浸泡的琼脂珠相结合的方法此前尚未见报道。我们对这些干预措施后mRNA表达的分析也具有新颖性。这些技术使我们能够剖析肢体特异性转录因子发挥作用的时间这一难题 Tbx5 和 Tbx4 在侧板中胚层(LPM)中被诱导产生,并且还表明在肢体芽起始之前的一段较晚时期,这些成分的存在 Tbx LPM 中的基因不足以激活 Fgf10 转录及肢芽开始向外生长。 图2G、图2D 和 2E 很好地说明了这些发现。缺乏 Tbx4 在10期插入屏障后的表达 图 2G 与第15阶段屏障插入并在诱导后在2D和2E中出现的情况形成鲜明对比 Tbx4用视黄酸(RA)浸泡的微珠植入实验表明,在插入屏障后,可通过RA挽救肢芽的起始发育,提示体节来源的RA在侧板中胚层(LPM)中的作用对于启动肢芽外突至关重要。此类技术不仅可用于进一步探究肢体发育中的问题,也可应用于脊椎动物胚胎发生中的其他问题研究,脑部、眼部及躯干部位可能均适合作为研究区域。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作由英国医学研究委员会(MRC)资助项目 MC.PC_13052 支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 杜蒙特5号钟表匠镊子,x2 | Fine Science Tools www.finescience.de | 11251-20 | |
| 杜蒙特4号钟表匠镊子,x2 | Fine Science Tools www.finescience.de | 11241-30 | |
| 杜蒙特AA型强力镊子 | Fine Science Tools www.finescience.de | 11210-10 | |
| 弯曲剪刀,刀刃长2.5 cm | Fine Science Tools www.finescience.de | 14061-11 | |
| 钝头弯镊,尖端长约0.5 cm | Fine Science Tools www.finescience.de | 11065-07 | |
| 钢针,宽0.2 mm | Fine Science Tools www.finescience.de | 26002-20 | |
| 方形磨刀石 | Fine Science Tools www.finescience.de | 29008-01 | |
| 矿物油 | |||
| 持针器 | Fine Science Tools www.finescience.de | 26016-12 | |
| 透明胶带,50 mm × 66 m | www.5staroffice.com | 295985 | |
| FGF4蛋白 | 由Cliff Tabin惠赠。 | ||
| 全反式维甲酸 | Sigma www.sigmaaldrich.com | R2625-50MG | 注意避光保存。 |
| BMS 493 | Sigma www.sigmaaldrich.com | B6688-5MG | |
| 15号手术刀片 | www.swann-morton.com | 货号 0105 | |
| 蓝色亲和层析凝胶(Affi-Gel Blue) | Bio-Rad www.bio-rad.com | 153-7301 | 用于递送蛋白的微珠。 |
| AG1-X2离子交换树脂 | Bio-Rad www.bio-rad.com | 140-1251 | 用于递送维甲酸或BMS 493的微珠。 |
| 孵卵用培养箱 | Memmert www.hce-uk.com | LAB128 | |
| 多聚甲醛(PFA) | Sigma www.sigmaaldrich.com | P6148-1KG | 有害、刺激性、腐蚀性。 操作粉末时应在通风橱内穿戴全套防护服。 |
| 乙醇 | Sigma www.sigmaaldrich.com | 32221-2.5L | |
| DMEM高糖培养基 | Gibco www.thermofisher.com | 41965-039 | 500 ml |
| 二甲基亚砜(DMSO) | Fisher Scientific webshop.fishersci.com | D/4121/PB08 | 500 ml |
| 双目显微镜 | Leica www.leica-microsystems.com | MZ6 | 已被M60替代 |
| 鸡卵 | Henry Stewart & Co Ltd sales@medeggs.com | 棕色卵 |
参考文献
- Murillo-Ferrol, N. L. Causal study of the earliest differentiation of the morphological rudiments of the extremities. Experimental analysis on bird embryos. Acta Anat (Basel). 62 (1), 80-103 (1965).
- Sweeney, R. M., Watterson, R. L. Rib development in chick embryos analyzed by means of tantalum foil blocks). Am J Anat. 126 (2), 127-149 (1969).
- Kieny, M. On the relations between somatic and somatopleural mesoderm before and during primary induction of chick embryo limbs. C R Acad Sci Hebd Seances Acad Sci D. 268 (26), 3183-3186 (1969).
- Pinot, M. The role of the somitic mesoderm in the early morphogenesis of the limbs in the fowl embryo. J Embryol Exp Morphol. 23 (1), 109-151 (1970).
- Eichele, G., Tickle, C., Alberts, B. M. Microcontrolled release of biologically active compounds in chick embryos: beads of 200-microns diameter for the local release of retinoids. Anal Biochem. 142 (2), 542-555 (1984).
- Cohn, M. J., et al. Fibroblast growth factors induce additional limb development from the flank of chick embryos. Cell. 80 (5), 739-746 (1995).
- Nishimoto, S., et al. RA Acts in a Coherent Feed-Forward Mechanism with Tbx5 to Control Limb Bud Induction and Initiation. Cell Rep. 12 (5), 879-891 (2015).
- Hamburger, V., Hamilton, H. L. A series of normal stages in the development of the chick embryo. J Morphol. 88 (1), 49-92 (1951).
- Stephens, T. D., McNulty, T. R. Evidence for a metameric pattern in the development of the chick humerus. J Embryol Exp Morphol. 61, 191-205 (1981).
- Strecker, T. R., Stephens, T. D. Peripheral nerves do not play a trophic role in limb skeletal morphogenesis. Teratology. 27 (2), 159-167 (1983).
- Riddle, R. D., et al. Sonic hedgehog mediates the polarizing activity of the ZPA. Cell. 75 (7), 1401-1416 (1993).
- Ng, J. K., et al. The limb identity gene Tbx5 promotes limb initiation by interacting with Wnt2b and Fgf10. Devel. 129 (22), 5161-5170 (2002).
- Takeuchi, J. K., et al. Tbx5 and Tbx4 trigger limb initiation through activation of the Wnt/Fgf signaling cascade. Devel. 130 (12), 2729-2739 (2003).
- Lee, J., Tickle, C. Retinoic acid and pattern formation in the developing chick wing: SEM and quantitative studies of early effects on the apical ectodermal ridge and bud outgrowth. J Embryol Exp Morphol. 90, 139-169 (1985).
- Tickle, C., Crawley, A., Farrar, J. Retinoic acid application to chick wing buds leads to a dose-dependent reorganization of the apical ectodermal ridge that is mediated by the mesenchyme. Devel. 106 (4), 691-705 (1989).
- MacCabe, J. A., Parker, B. W. Evidence for a gradient of a morphogenetic substance in the developing limb. Dev Biol. 54 (2), 297-303 (1976).
- Summerbell, D. The zone of polarizing activity: evidence for a role in normal chick limb morphogenesis. J Embryol Exp Morphol. 50, 217-233 (1979).
- Wilde, S. M., Wedden, S. E., Tickle, C. Retinoids reprogramme pre-bud mesenchyme to give changes in limb pattern. Devel. 100 (4), 723-733 (1987).
重印与许可
