我们描述了一种基于荧光的检测方法,用于测量重组了视蛋白的大型单层脂质体中的磷脂翻转活性。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
翻转酶以不依赖ATP的方式双向转运磷脂分子穿过膜双层。首个被鉴定并经生物化学验证的翻转酶是视紫红质的脱辅基蛋白——视蛋白。视紫红质是一种G蛋白偶联受体,定位于视网膜视杆细胞盘膜中,负责光信号的感知。视紫红质的翻转酶活性不依赖于其配体11-顺式-视黄醛, 即, 视蛋白(opsin)本身也具有翻转酶(scramblase)活性。尽管组成型和调控型磷脂翻转在细胞生理过程中发挥重要作用,但迄今为止除视蛋白外,仅发现少数几种磷脂翻转酶。本文介绍一种基于荧光的检测方法,用于测定视蛋白的翻转酶活性。将视蛋白重组至由磷脂酰胆碱(phosphatidylcholine)、磷脂酰甘油(phosphatidylglycerol)及微量荧光标记的NBD-PC(1-棕榈酰-2-{6-[7-硝基-2-1,3-苯并噁二唑-4-基)氨基]己酰基}-sn-甘油-3-磷酰胆碱)。通过检测位于囊泡内层的NBD-PC分子转移到外层的程度来测定翻转酶活性,当这些分子暴露于膜外时,其荧光会被不能跨膜的还原剂淬灭。我们所描述的方法具有普遍适用性,可用于鉴定和表征其他膜蛋白的翻转酶活性。
引言
视紫红质(rhodopsin)是一种典型的G蛋白偶联受体(例如参见文献1),也是首个被鉴定并经生物化学验证的磷脂翻转酶(phospholipid scramblase)2,3。翻转酶是一类磷脂转运蛋白,能够以双向、非ATP依赖的方式将跨双分子层磷脂的本征缓慢移动速率提升至生理所需的水平4-6。其功能实例可见于内质网和细菌细胞质膜,在这些膜结构中,组成型的磷脂翻转对于维持膜稳态、细胞生长以及多种糖基化通路至关重要5。受调控的磷脂翻转则在凋亡细胞表面暴露磷脂酰丝氨酸(phosphatidylserine, PS)的过程中发挥关键作用,PS作为“吃我”信号被巨噬细胞识别7,同时在活化的血小板表面形成促凝血界面,催化凝血所需蛋白因子的生成。在视细胞外节盘膜中,视紫红质的翻转活性被认为可抵消由ATP依赖性、单向脂质翻转酶ABCA4所引起的双分子层两叶间磷脂分布失衡4,8,910-12。
尽管翻转酶具有重要的生理功能,但其身份一直未被明确,直到视紫红质被报道为光感受器盘膜中的翻转酶2,TMEM16蛋白家族成员被鉴定为依赖Ca2+的翻转酶,参与质膜上磷脂酰丝氨酸(PS)的外翻(参见文献13的综述),以及细菌蛋白FtsW被提出作为脂质II翻转酶,参与肽聚糖合成14。这些发现均基于将纯化的蛋白质重构于脂质体中,并利用本文所述方法在所形成的蛋白脂质体中验证其翻转酶活性。其他潜在的翻转酶15-21——包括参与肽聚糖生物合成的MurJ和AmJ蛋白、参与O-抗原前体翻转的WzxE及相关蛋白、负责将氨基酰化磷脂酰甘油转运至细菌细胞质膜的MprF蛋白,以及被提出可在凋亡细胞表面暴露PS的Xkr8家族成员——仍有待通过生化方法验证。这凸显了建立一种可靠检测方法以鉴定和表征翻转酶活性的重要性。
本文介绍了将提纯的视紫红质脱辅基蛋白(即视蛋白)重组到大单层囊泡(LUVs)中的方法,并利用基于荧光的检测手段对所获得的蛋白脂质体中的翻转酶活性进行后续分析。目前文献中已有多种关于视蛋白异源表达与提纯的详细方案,因此本实验不对其进行描述;我们采用的是Goren et al. 3 中所述的方法,该方法可获得带有FLAG标签的热稳定视蛋白,浓度约为100 ng/µl,溶于含0.1% (w/v) 十二烷基麦芽糖苷(DDM)的溶液中。
通过使用足量去垢剂处理大单层囊泡(LUVs),使其发生溶胀但不溶解,从而实现膜蛋白的重建。在此条件下,以蛋白-去垢剂胶束形式提供的膜蛋白将整合入脂质体中,并在去除去垢剂后重组至脂质体膜内,形成蛋白脂质体(proteoliposomes)。为重建视蛋白(opsin,以纯化蛋白形式获得,溶于0.1% (w/v) DDM中),需先由POPC(1-棕榈酰-2-油酰-sn-甘油-3-磷脂酰胆碱)和POPG(1-棕榈酰-2-油酰-sn-甘油-3-[磷脂-rac-(1-甘油)])混合物制备LUVs,随后在加入视蛋白和NBD-PC前使体系饱和DDM。然后通过聚苯乙烯珠处理样品以去除去垢剂。
基于荧光的检测方法原理如图1B所示。大单层囊泡(LUVs)被对称地重构,并掺入微量的NBD-PC或其他NBD标记的荧光磷脂探针(图1A)。当加入连二亚硫酸盐(一种不能透过膜的双阴离子)后,LUVs外层叶中的NBD-PC分子因NBD基团的硝基被还原为非荧光性的氨基而失去荧光。由于在实验时间尺度内(<10分钟),NBD-PC分子和连二亚硫酸盐均无法跨膜转运,因此荧光信号减少50%。然而,如果脂质体中重构了翻转酶(scramblase),则内层叶中的NBD-PC分子可快速翻转至外侧并被还原,理想情况下导致荧光完全丧失(图1C)。
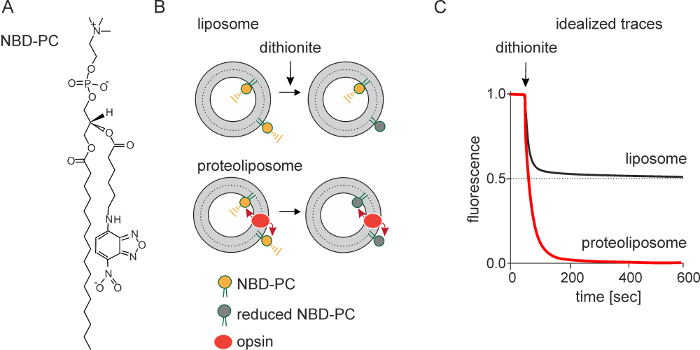
图1:scramblase活性检测的示意图 该检测使用荧光NBD标记的报告脂质;图中显示的是NBD-PC(A)。通过加入痕量的NBD-PC重建大单层囊泡。重建后形成的囊泡具有对称性,NBD-PC均匀分布于外层和内层脂双分子层中。连二亚硫酸盐(S2O42-)可将NBD的硝基化学还原为非荧光的氨基。用连二亚硫酸盐处理不含蛋白质的脂质体(B,上层)会导致荧光强度降低50%,因为只有位于外层脂质双分子层中的NBD-PC分子被还原:连二亚硫酸盐带负电荷,无法穿过膜与内层中的NBD-PC分子反应。对含视蛋白的蛋白脂质体进行连二亚硫酸盐处理(B,底部) 即,翻转酶活性的蛋白脂质体,会导致荧光完全丧失(达100%),因为视蛋白促进了NBD-PC在内层和外层脂质双分子层之间的移动。C) 显示了用连二亚硫酸盐处理不含蛋白质的脂质体和含视蛋白的蛋白脂质体后获得的理想化荧光轨迹。两种情况下的荧光衰减速率相同,表明NBD被连二亚硫酸盐的化学还原反应是限速步骤,且翻转(scrambling)发生的速率等于或大于该化学反应的速率。实际实验中获得的轨迹如图所示 图3. 请点击此处以查看此图的放大版本。
我们所描述的方法可用于重建和检测其他经纯化的蛋白质,以及通过去污剂提取微粒体所获得的膜蛋白混合物22。
访问受限。请登录或开始试用以查看此内容。
方案
1. 脂质体和蛋白脂质体的制备
- 脂质体的制备
- 使用玻璃注射器,向圆底烧瓶中加入 1,435 µl POPC(25 mg/ml,溶于氯仿)和 160 µl POPG(25 mg/ml,溶于氯仿),以获得总脂质为 52.5 µmol、摩尔比为 POPC:POPG = 9:1 的脂质混合物。
- 使用旋转蒸发仪在145 rpm转速下旋转蒸发30分钟以干燥脂质(此溶剂量无需使用水浴),随后将烧瓶转移至真空干燥器中,在室温(RT)下至少干燥3小时,或过夜。
- 用10 ml 50 mM HEPES pH 7.4、100 mM NaCl(下文简称缓冲液A)水合干燥的脂质膜,轻轻旋转烧瓶直至形成均匀的浑浊悬浮液;
注意:此阶段的脂质浓度预计为 5.25 mM,因截至目前不应有任何损失。 - 在室温下,将悬浮液置于水浴中超声处理10分钟,频率为40 kHz。溶液将变得略为澄清。
- 使用挤出器将悬浮液通过孔径为400 nm的膜重复挤出10次,随后进行第二轮挤出,通过孔径为200 nm的膜重复挤出4次。
注意:所得大单层囊泡(LUVs)的平均直径约为175 nm。如有必要,可根据制造商说明书通过动态光散射检测LUVs的粒径和均一性。 - 按照第1.2节所述方法测定LUV悬液中磷脂的浓度。
注意:由于挤出过程中的损失,浓度通常约为 3.6 mM。 - 若不立即使用,可将LUVs在4 °C下保存约2周。
- 磷脂定量
注意:为了测定用于重组的LUV悬浮液以及最终生成的蛋白脂质体中的磷脂浓度,需取样品等分试样,用高氯酸进行氧化处理。该步骤可将磷脂降解,释放无机磷酸盐,随后通过比色法测定其含量,并与标准品进行比较定量。 23.- 制备 40 mM 的磷酸钠(Na2HPO4) 去离子蒸馏水中。
- 用去离子蒸馏水稀释储备液,配制 4 mM 和 0.4 mM 的工作液,作为校准标准品。
- 使用工作液,于13 x 100 mm试管中配制标准品2 含0至80 nmol磷酸钠、终体积为50 µl的玻璃试管。
- 取待定量的LUV和蛋白脂质体样品各10 µl,分别加入40 µl ddH₂O稀释2O型,13 × 100 mm2 玻璃管
注意:由于大单层囊泡(LUVs)和蛋白脂质体的脂质浓度范围为 2.5–5 µM,因此 10 µl 样品应含有 25–50 nmol 脂质磷。 - 向每个标准品和样品中加入 300 µl 高氯酸,在加热块中于 145 °C 加热 1 小时。在试管上放置玻璃珠以防止蒸发。
- 让离心管冷却至室温,然后加入1 ml ddH₂O2O.
- 加入400 µl新配制的12 g/L钼酸铵和400 µl新配制的50 g/L抗坏血酸钠,涡旋混匀。
- 在试管上方放置小玻璃珠,于100 °C加热10分钟。将试管从加热块中取出,冷却至室温。
- 使用分光光度计在797 nm波长下,以空白样(含0 nmol磷酸钠的标准样)为参比,测定各样品的吸光度。
- 根据校准标准曲线测定样品中的磷酸盐含量。
- 视紫红质的重建
注意:必须确定用于重组的最佳溶胀条件,因为这些条件取决于去垢剂的性质以及大单层囊泡(LUVs)的脂质组成和浓度。由于LUVs在溶胀过程中会改变其光散射特性,因此可通过测量吸光度来监测该过程。图2如Rigaud和Levy所综述 24 和 Geertsma 等 25.- 将800 µl的LUVs(来自步骤1.1;由于挤出后脂质回收率为70%,LUVs的预期浓度为3.6 mM磷脂)移入2 ml微量离心管中。
- 加入5.3 µl缓冲液A和34.7 µl溶于缓冲液A的10% (w/v) DDM。
- 室温下颠倒混匀孵育3小时。
- 同时准备聚苯乙烯微球:
- 每份样品使用 400 mg 磁珠,在玻璃烧杯中称量。
- 用甲醇洗涤两次,用水洗涤三次,用缓冲液A洗涤一次。每次洗涤使用5 ml液体,缓慢搅拌10分钟。
注意:建议一次性为多个样品制备聚苯乙烯微球, 例如称取6 g珠子,用75 ml液体洗涤。多余的珠子可于冰箱中保存数天。
- 在囊泡去稳定化的最后30分钟期间,将NBD标记的磷脂在带螺帽的玻璃管(“重组玻璃管”)中干燥:每份样品取9.5 µl NBD-PC(氯仿中1 mg/ml,相当于总磷脂的0.4 mol%),在玻璃管中用氮气流吹干,随后溶于45 µl含0.1% (w/v) DDM的缓冲液A中。
- 孵育3小时后,加入溶解的NBD标记磷脂、DDM增溶的蛋白质和缓冲液A,使终体积为1 ml,其中DDM浓度为0.36%(w/v)。 即,7 mM,DDM
- 因此,制备无蛋白脂质体(用作对照样品)时,加入45 µl NBD-PC(溶于0.1% DDM中)、60 µl 0.1% DDM和55 µl缓冲液A;制备蛋白脂质体时,例如加入40 µl蛋白(来自浓度约为110 ng/µl的典型储备液,溶于0.1% DDM中)、45 µl NBD-PC(溶于0.1% DDM中)、20 µl 0.1% DDM和55 µl缓冲液A。
注意:添加顺序应按照所列顺序进行。
- 因此,制备无蛋白脂质体(用作对照样品)时,加入45 µl NBD-PC(溶于0.1% DDM中)、60 µl 0.1% DDM和55 µl缓冲液A;制备蛋白脂质体时,例如加入40 µl蛋白(来自浓度约为110 ng/µl的典型储备液,溶于0.1% DDM中)、45 µl NBD-PC(溶于0.1% DDM中)、20 µl 0.1% DDM和55 µl缓冲液A。
- 在室温下将样品再颠倒混匀1小时。
- 加入80 mg制备好的聚苯乙烯微球,在室温下以翻转混匀方式孵育样品1小时。
- 接着加入额外的160 mg聚苯乙烯微球,于室温下以翻转混匀方式继续孵育2小时。
- 将样品(弃去用过的聚苯乙烯珠)转移至含有160 mg新鲜聚苯乙烯珠的玻璃螺口管中,4 °C下混合过夜。
注意:转移样品并避免吸起磁珠的最简便方法是使用巴斯德吸管,在施加轻微正压的情况下将其推至玻璃管底部。当吸管尖端牢固抵住管底后,即可轻松吸取样品,且不会受到磁珠干扰。 - 次日早晨,将样品转移至微量离心管中,避免带入磁珠,并置于冰上,以备进行scramblase活性检测。
2. 翻转酶活性检测
注意:在荧光分光光度计中,向缓冲液A稀释的脂质体或蛋白脂质体中加入连二亚硫酸钠后,随时间监测其荧光强度。为获得稳定的初始荧光强度,需在加入连二亚硫酸钠前,对持续搅拌的样品记录至少50秒(或直至信号稳定)的荧光值;加入连二亚硫酸钠后,继续监测至少500秒。
- 向含有微型搅拌子的塑料比色皿中加入 1,950 µl 缓冲液 A。
- 加入50 µl制备好的蛋白(脂质体),在荧光光谱仪中持续搅拌数秒使样品平衡。
- 同时配制 1 M 二硫代亚硫酸钠溶于 0.5 M 未缓冲 Tris 的溶液(例如, 取两个样品,于微量离心管中称取20 mg连二亚硫酸钠,临用前加入114 µl冰上预冷的0.5 M Tris溶解,混匀后立即将样品置于冰上,以备下一个样品使用。
注意:连二亚硫酸盐溶液必须新鲜配制,配制后不得超过20分钟使用;若需进行多次测量,可预先称取连二亚硫酸盐分装 aliquots,临用前溶解。 - 启动荧光监测(激发波长470 nm,发射波长530 nm,狭缝宽度0.5 nm)。
- 在开始荧光记录后50秒,向比色皿中加入40 µl的1 M连二亚硫酸盐溶液(如可能,通过比色皿室盖上的隔膜加入),并继续记录荧光400–600秒。
- 按照第3节所述分析数据。
3. 数据分析
- 翻转酶活性动力学
- 通过定义加入连二亚硫酸盐前的初始荧光值 Fi 和加入后 >400 秒时达到的终点荧光值 F,来表征翻转酶活性实验中获得的各样品的荧光轨迹。Fi 针对每个样品取加入连二亚硫酸盐前 30 秒内的荧光平均值。
- 确定对应于荧光降低程度的终点数据 R = 100•F/Fi。我们使用 RL 表示不含蛋白的脂质体,RP 表示含视蛋白的蛋白脂质体。
- 确定功能重建翻转酶的分子量
- 根据以下公式转换荧光降低数据:
p(≥1 翻转酶) = (RP − RL)/(Rmax − RL) (公式 1)
注:其中 Rmax 是当蛋白充分重建,使得样品中所有囊泡均至少含有一个功能翻转酶时所达到的最大荧光降低值;p 表示重建样品中某一特定囊泡为“具有翻转酶活性”的概率,i.e.,其至少含有一个功能翻转酶。RL 的典型值为 45% 3,而 Rmax 的典型值为 82.5% 3,而非预期的 100%(Rmax 可通过 PPR 大于 >1 mg/mmol 的视蛋白蛋白脂质体实验测定)。由于 Rmax <100%,推测存在一部分囊泡对蛋白重建具有抗性。当 Rmax = 82.5% 时,无法接受蛋白的囊泡比例为 0.35。 - 使用泊松统计描述 p(≥1 翻转酶) 与 PPR(mg 蛋白/mmol 磷脂)之间的关系,如下所示:
p(≥1 翻转酶) = 1 - e-m = 1 - exp(-PPR/α) (公式 2)
注:其中 m = 每个囊泡中的翻转酶数量,α = 以 mg 蛋白/mmol 磷脂为单位的单指数拟合常数。 - 由于在高 PPR 条件下仍有一部分囊泡不参与翻转(见讨论),将公式修改为:
p(≥1 翻转酶) = 1 - exp(-PPR*/α) (公式 3)
注:其中 PPR* = PPR/(1-f),f 为对重建具有抗性的囊泡亚群比例,本例中 PPR* = PPR/0.65(公式 4)。
注:拟合常数 α 通过将 p(≥1 翻转酶) 对 PPR* 作图并拟合单指数函数确定。若视蛋白(分子量 41.7 kDa)以单体形式功能重建于直径为 175 nm 的囊泡中(每个囊泡含 280,000 个磷脂分子 26),则 α = 0.187 mg mmol−1。若视蛋白在重建前发生二聚化 3 并形成具有翻转酶活性的囊泡,则 α = 0.37 mg mmol−1。若分析中使用 PPR 而非 PPR*,则相应的 α 值分别为 0.122 和 0.244 mg mmol−1。这些 α 的预测值假设所有视蛋白分子均具备功能活性。若仅有一部分分子具备翻转脂质的能力,则相应的 α 值将更大。
- 根据以下公式转换荧光降低数据:
访问受限。请登录或开始试用以查看此内容。
结果
我们描述了将视蛋白重构到大单层囊泡(LUVs)中,以利用基于荧光的检测方法表征其翻转酶活性。我们对结果进行分析,以确定视蛋白介导的磷脂翻转速率的下限,并确定视蛋白在囊泡中功能性重构时的寡聚状态。
为了确定最佳的重组条件,有必要通过实验确定用于膨胀大单层囊泡(LUVs)所需的去垢剂用量,以使囊泡能够接受蛋白质的插入。该实验如图2A所示。将POPC:POPG大单层囊泡分别用不同浓度的DDM处理3小时,随后在540 nm处测定样品的吸光度,该值反映浊度,因而可指示囊泡的尺寸变化。540 nm处测得的光密度(OD540)曲线显示,当DDM浓度从4–6 mM逐渐增加时,囊泡发生膨胀,并在约7 mM时达到饱和;继续增加DDM浓度则导致囊泡开始溶解(表现为浊度降低及OD540信号减弱)。去垢剂处理后加入NBD-PC,样品再继续孵育1小时,随后用聚苯乙烯珠去除去垢剂。通过向囊泡中加入连二亚硫...
访问受限。请登录或开始试用以查看此内容。
讨论
最初,我们利用翻转酶活性检测方法确定了视蛋白具有磷脂翻转酶活性2。该检测方法还使我们能够通过测试其特异性(我们使用了多种NBD标记的报告脂质,例如NBD-磷脂酰乙醇胺,其NBD标记位于酰基链上,如图1A中NBD-PC所示,或标记在头部基团上,如NBD-鞘磷脂或NBD-磷脂酰丝氨酸2)、囊泡脂质组成的影响(例如,作为囊泡组分的不同含量的胆固醇),以及视蛋白和视紫红质的不同构象状态是否均表现出翻转酶活性,从而对视蛋白的翻转酶活性进行表征。这些分析表明,视紫红质的翻转酶活性非常迅速(>每秒超过10,000个磷脂分子),对磷脂无特异性,且不依赖于视紫红质的构象状态或其是否含有发色团视黄醛2,3。在此,我们提供了一种制备含视蛋白的蛋白脂质体的详细方法,并展示了如何检测这些样品的磷脂翻转酶活性。
所述的重建方案已针对给定的脂质组成以及使用DDM作为增溶去污剂通过亲和层析纯化后的视蛋白重建进行了优化。脂质组成以及去污剂可根据实验人员的需求进行更改,但针对改变条件后的理想重...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由 Velux 基金会(A.K.M.)、NIH 资助项目 EY024207(A.K.M.)以及奥地利科学基金(FWF)项目 J3686(B.P.)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1-棕榈酰-2-油酰-sn-甘油-3-磷脂酰胆碱 | Avanti Polar Lipids | 850457C | POPC |
| 1-棕榈酰-2-油酰-sn-甘油-3-磷脂酰-rac-(1-甘油)(钠盐) | Avanti Polar Lipids | 840457C | POPG |
| 1-棕榈酰-2-{6-[7-硝基-2-1,3-苯并噁二唑-4-基)氨基]己酰}-sn-甘油-3-磷脂酰胆碱 | Avanti Polar Lipids | 810130C | NBD-PC |
| 4-(2-羟乙基)-1-哌嗪乙磺酸 | VWR Scientific | EM-5330 | HEPES |
| NaCl | Sigma | S7653-1KG | NaCl |
| 十二烷基-β-D-麦芽糖苷 | Anatrace | D310 5 GM | DDM |
| 荧光计比色皿 | sigma | C0918-100EA | 比色皿 |
| 荧光分光光度计 | Photon Technology International, Inc. | fluorimeter | |
| 连二亚硫酸钠技术级,85% | Sigma | 157953-5G | 连二亚硫酸盐 |
| GraphPad Prism 5 软件 | Prism | ||
| Tris 碱 | VWR | JTX171-3 | Tris |
| LIPEX 10 ml 挤出器 | Northern Lipids, Inc. | 挤出器 | |
| Whatman,排水盘,聚乙烯,25 mm | Sigma | 28156-243 | 圆盘支架 |
| Whatman Nuclepore 径迹蚀刻膜,0.4 µm,直径 25 mm | Sigma | WHA110607 | 400 nm 膜 |
| Whatman Nucleopore 径迹蚀刻膜,0.2 µm,直径 25 mm | Sigma | WHA110606 | 200 nm 膜 |
| 磷酸钠 | Sigma | S3264-500G | |
| VWR 培养管,一次性,硼硅酸盐玻璃,13 x 100 mm | VWR Scientific | 47729-572 | 玻璃管 |
| 高氯酸 | Sigma | 30755-500ML | |
| 四水合钼酸铵 | Sigma | A-7302 | 钼酸铵 |
| (+)-L-抗坏血酸钠 | Sigma | A7631-25G | 抗坏血酸钠 |
| Bio-Beads SM2 吸附剂 | Bio Rad | 1523920 | 聚苯乙烯微珠 |
| 2.0 ml 透明微量管 | VWR Scientific | 10011-742 | 复溶管 |
| 复溶玻璃管 | VWR Scientific | 53283-800 | 复溶玻璃管 |
| Zetasizer | Malvern | DLS |
参考文献
- Ernst, O. P., et al. Microbial and animal rhodopsins: structures, functions, and molecular mechanisms. Chem. Rev. 114, 126-163 (2014).
- Menon, I., et al. Opsin is a phospholipid flippase. Curr. Biol. CB. 21, 149-153 (2011).
- Goren, M. A., et al. Constitutive phospholipid scramblase activity of a G protein-coupled receptor. Nat. Commun. 5, 5115(2014).
- Ernst, O. P., Menon, A. K. Phospholipid scrambling by rhodopsin. Photochem. Photobiol. Sci. Off. J. Eur. Photochem. Assoc. Eur. Soc. Photobiol. , (2015).
- Sanyal, S., Menon, A. K. Flipping lipids: why an' what's the reason for? ACS Chem. Biol. 4, 895-909 (2009).
- Bevers, E. M., Williamson, P. L. Phospholipid scramblase: an update. FEBS Lett. 584, 2724-2730 (2010).
- Leventis, P. A., Grinstein, S. The distribution and function of phosphatidylserine in cellular membranes. Annu. Rev. Biophys. 39, 407-427 (2010).
- Quazi, F., Lenevich, S., Molday, R. S. ABCA4 is an N-retinylidene-phosphatidylethanolamine and phosphatidylethanolamine importer. Nat. Commun. 3, 925(2012).
- Quazi, F., Molday, R. S. ATP-binding cassette transporter ABCA4 and chemical isomerization protect photoreceptor cells from the toxic accumulation of excess 11-cis-retinal. Proc. Natl. Acad. Sci. U. S. A. 111, 5024-5029 (2014).
- Ben-Shabat, S., et al. Formation of a nonaoxirane from A2E, a lipofuscin fluorophore related to macular degeneration, and evidence of singlet oxygen involvement. Angew. Chem. Int. Ed Engl. 41, 814-817 (2002).
- Sparrow, J. R., Wu, Y., Kim, C. Y., Zhou, J. Phospholipid meets all-trans-retinal: the making of RPE bisretinoids. J. Lipid Res. 51 (2010), 247-261 (2010).
- Schütt, F., Davies, S., Kopitz, J., Holz, F. G., Boulton, M. E. Photodamage to human RPE cells by A2-E, a retinoid component of lipofuscin. Invest. Ophthalmol. Vis. Sci. 41, 2303-2308 (2000).
- Picollo, A., Malvezzi, M., Accardi, A. TMEM16 proteins: unknown structure and confusing functions. J. Mol. Biol. 427, 94-105 (2015).
- Mohammadi, T., et al. Identification of FtsW as a transporter of lipid-linked cell wall precursors across the membrane. EMBO J. 30, 1425-1432 (2011).
- Meeske, A. J., et al. MurJ and a novel lipid II flippase are required for cell wall biogenesis in Bacillus subtilis. Proc. Natl. Acad. Sci. 112, 6437-6442 (2015).
- Ruiz, N. Lipid Flippases for Bacterial Peptidoglycan Biosynthesis. Lipid Insights. 8, 21-31 (2015).
- Rick, P. D., et al. Evidence that the wzxE gene of Escherichia coli K-12 encodes a protein involved in the transbilayer movement of a trisaccharide-lipid intermediate in the assembly of enterobacterial common antigen. J. Biol. Chem. 278, 16534-16542 (2003).
- Suzuki, J., Imanishi, E., Nagata, S. Exposure of phosphatidylserine by Xk-related protein family members during apoptosis. J. Biol. Chem. 289, 30257-30267 (2014).
- Suzuki, J., Nagata, S. Phospholipid scrambling on the plasma membrane. Methods Enzymol. 544, 381-393 (2014).
- Alaimo, C., et al. Two distinct but interchangeable mechanisms for flipping of lipid-linked oligosaccharides. EMBO J. 25, 967-976 (2006).
- Ernst, C. M., Peschel, A. Broad-spectrum antimicrobial peptide restistance by MprF-mediated aminoacylation and flipping of phospholipids. Mol. Microbial. 80 (2), 290-299 (2011).
- Vehring, S., et al. Flip-flop of fluorescently labeled phospholipids in proteoliposomes reconstituted with Saccharomyces cerevisiae microsomal proteins. Eukaryot. Cell. 6, 1625-1634 (2007).
- Rouser, G., et al. Two dimensional then [sic] layer chromatographic separation of polar lipids and determination of phospholipids by phosphorus analysis of spots. Lipids. 5, 494-496 (1970).
- Rigaud, J. -L., Lévy, D. Reconstitution of membrane proteins into liposomes. Methods Enzymol. 372, 65-86 (2003).
- Geertsma, E. R., Nik Mahmood, N. A. B., Schuurman-Wolters, G. K., Poolman, B. Membrane reconstitution of ABC transporters and assays of translocator function. Nat. Protoc. 3, 256-266 (2008).
- Mimms, L. T., Zampighi, G., Nozaki, Y., Tanford, C., Reynolds, J. A. Phospholipid vesicle formation and transmembrane protein incorporation using octyl glucoside. Biochemistry. 20, 833-840 (1981).
- Malvezzi, M., et al. Ca2+-dependent phospholipid scrambling by a reconstituted TMEM16 ion channel. Nat. Commun. 4, 2367(2013).
- Eckford, P. D. W., Sharom, F. J. The reconstituted P-glycoprotein multidrug transporter is a flippase for glucosylceramide and other simple glycosphingolipids. Biochem. J. 389, 517-526 (2005).
- Marek, M., Günther-Pomorski, T. Assay of Flippase Activity in Proteoliposomes Using Fluorescent Lipid Derivatives. Methods Mol. Biol. 1377, 181-191 (2016).
- Coleman, J. A., Kwok, M. C. M., Molday, R. S. Localization purification, and functional reconstitution of the P4-ATPase Atp8a2, a phosphatidylserine flippase in photoreceptor disc membranes. J. Biol. Chem. 284, 32670-32679 (2009).
- Coleman, J. A., Quazi, F., Molday, R. S. Mammalian P4-ATPases and ABC transporters and their role in phospholipid transport. Biochim. Biophys. Acta. 1831, 555-574 (2013).
- Romsicki, Y., Sharom, F. J. Phospholipid flippase activity of the reconstituted P-glycoprotein multidrug transporter. Biochemistry. 40, 6937-6947 (2001).
- Zhou, X., Graham, T. R. Reconstitution of phospholipid translocase activity with purified Drs2p, a type-IV P-type ATPase from budding yeast. Proc. Natl. Acad. Sci. U. S. A. 106, 16586-16591 (2009).
访问受限。请登录或开始试用以查看此内容。
重印与许可
