斑马鱼正成为研究膳食脂质代谢和代谢性疾病的一个重要模型。本文介绍了富含脂质的幼体饲料制备、膳食荧光脂质类似物的活体成像以及摄食量定量等实验方案。这些技术可广泛应用于多种筛选、成像及基于假设的探究方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
斑马鱼正逐渐成为研究膳食脂质代谢和代谢性疾病的模型。本实验方案描述了如何给斑马鱼幼体喂食富含脂质的食物,该食物由鸡卵黄脂质体乳剂组成,通过在胚胎培养基中对卵黄进行超声处理制备而成。文中提供了详细的步骤,用于筛选摄食卵黄的幼鱼,以确保未摄食的个体不会干扰实验结果。鸡卵黄脂质体可掺入荧光标记的脂质类似物,包括脂肪酸和胆固醇,从而实现对膳食脂质代谢过程的系统性及亚细胞水平的可视化观察。本文还介绍了多种适用于幼鱼的制片方法,便于使用直立式或倒置式显微镜,在高低倍率下进行短期和长期的活体成像。此外,还提供了一种定量检测幼鱼摄食量的实验方法:提取摄食了荧光脂质类似物的幼鱼脂质,将脂质点样于薄层色谱板上,并定量其荧光强度。最后,讨论了实验操作中的关键步骤、重要的对照设置、根据特定科学问题优化方案的可选调整方式以及潜在的局限性。这些技术不仅可用于针对性的假设驱动型研究,还可广泛应用于多种筛选实验和活体成像技术,以研究膳食脂质代谢及摄食行为的调控机制。
引言
肠道如何调控膳食脂质的代谢、肝脏如何控制复杂脂质的合成与脂蛋白代谢,以及这些器官如何与中枢神经系统协同调控食物摄入,目前尚未完全阐明。鉴于当前肥胖、心血管疾病、糖尿病和非酒精性脂肪性肝病的流行状况,阐明这些生物学机制具有重要的生物医学意义。目前对膳食脂质与疾病之间机制关系的理解,主要来源于细胞培养和小鼠研究,而斑马鱼(Danio rerio)正逐渐成为补充这些研究的理想模型。
斑马鱼具有与高等脊椎动物相似的胃肠道器官、脂质代谢和脂蛋白转运系统 1,2,发育迅速,且具有良好的遗传可操作性。幼年斑马鱼的光学通透性便于 体内 研究,这对于消化道系统的研究具有特殊优势,因为其细胞外环境(即胆汁、微生物群、内分泌信号)几乎无法进行建模 离体 因此,大量研究将斑马鱼幼鱼在遗传操作和活体成像方面的优势与多种饮食干预手段相结合 (高脂肪3,4, -胆固醇5,以及低碳水化合物饮食6,7,以及心血管疾病模型8糖尿病9,10肝脂肪变性11-13,以及肥胖14-16正在出现以提供多种代谢见解。
将幼年斑马鱼引入代谢研究的一个关键方面,是将其他模式动物中已建立的技术优化应用于斑马鱼,并开发能够利用斑马鱼独特优势的新检测方法。本实验方案介绍并优化了用于给幼年斑马鱼喂食富含脂质的食物、在从整体到亚细胞水平上可视化饮食脂质的代谢过程,以及测量摄食量的技术。选择鸡卵黄作为富含脂质的食物,因其含有高水平的脂肪和胆固醇(脂质约占鸡卵黄成分的58%,其中约5%为胆固醇,60%为甘油三酯,35%为磷脂)。鸡卵黄提供的脂肪含量高于常规商用斑马鱼微颗粒饲料(约含15%脂质),并且其优势在于是一种成分标准化的饲料,含有已知比例的特定脂肪酸种类,而目前各实验室在斑马鱼饮食和喂养方案上尚未实现标准化17。此外,通过卵黄提供的荧光脂质类似物可用于可视化饮食脂质的转运与积累过程18,既可作为活体染料3,也可共价整合入复杂脂质中以标记细胞结构(包括脂滴),还可通过薄层色谱法(TLC)19 和高效液相色谱法(HPLC)(S.A.F. 未发表数据)研究脂质代谢,并为总摄食量提供定量检测方法20。
访问受限。请登录或开始试用以查看此内容。
方案
这些方案已获得卡内基科学研究所机构动物护理和使用委员会的批准(方案编号:139)。
1. 动物准备
- 成虫和幼虫在28 °C、14小时光照:10小时黑暗的条件下培养。每日喂食成虫两次,使用无壳 卤虫 (去壳、不孵化、从14 dpf开始)和商用微颗粒饲料。
- 这些方案针对通过AB品系自然交配获得的6-7天龄幼鱼优化。可根据不同年龄和品系的幼鱼对方案进行相应调整。在6天龄之前不要提供外源性食物。
- 在室温下,用含Tricaine的胚胎培养基(EM)麻醉幼虫(每100 ml EM中加入4.2 ml浓度为4 mg/ml的Tricaine)。
2. 富脂蛋黄饲料的制备
- 准备并储存鸡蛋蛋黄。分离12个鸡蛋的蛋黄和蛋清。将蛋黄汇集后,每1.5 ml离心管分装1 ml,于-80 °C保存,最长可保存1年(12个蛋黄可制备约80份分装)。将蛋清汇集后储存,用作低脂、高蛋白饲料。
- 如需,准备待添加至蛋黄饲料中的荧光脂质类似物。
- 将购买的粉末状荧光脂质类似物用100%乙醇或100%氯仿配制成0.1 µg/µl的悬浮液(参见下文关于溶剂的说明),分装至不透光玻璃管中,用封口膜密封,并根据生产商说明储存。由于有机溶剂易挥发,长期储存时分装体积不应小于约400 µl。
注:若脂质类似物溶于乙醇,因乙醇在N2气流下比氯仿更易干燥,需使用较大体积。若脂质类似物溶于乙醇,则在步骤2.2.4中加入脂质体饲料前无需干燥和重新悬浮,但脂质体饲料中乙醇的终浓度不得超过0.1%,以避免乙醇可能引起的生理干扰。 - 对于荧光脂肪酸类似物:在EM中制备总体积20 ml、含5%蛋黄的乳剂。从中分装5 ml,分别配制成终浓度为6.4 µM的4,4-二氟-4-硼-3a,4a-二氮杂-s-茚并(BODIPY C16)用于活体共聚焦成像和摄食量检测,或1 µg/ml的BODIPY C12用于体视显微镜成像。将所需量的荧光脂质类似物转移至1.5 ml塑料离心管中。在N2气流下干燥脂质,注意避免将脂质吹出管外。
- 立即用移液器沿管壁加入5 µl 100%乙醇重新溶解,再加入95 µl EM,充分混匀。
注:混合液应呈均一状态;若管壁残留有色脂质或液体呈团块状,表明脂质未完全溶解,需添加更多乙醇。避光操作,并将管置于冰上保存。 - 对于荧光胆固醇类似物:在5 ml含0.5–5%蛋黄的乳剂中配制终浓度为2.4 µg/ml的胆固醇,用于活体成像研究。将所需量的胆固醇转移至1.5 ml塑料离心管中。在N2气流下干燥脂质,注意避免将脂质吹出管外。
- 立即用移液器沿管壁加入15 µl室温100%乙醇重新溶解,再与85 µl室温含1%无脂肪酸BSA的纯化H2O混合,充分混匀。避光操作,并将管置于冰上保存。
- 将购买的粉末状荧光脂质类似物用100%乙醇或100%氯仿配制成0.1 µg/µl的悬浮液(参见下文关于溶剂的说明),分装至不透光玻璃管中,用封口膜密封,并根据生产商说明储存。由于有机溶剂易挥发,长期储存时分装体积不应小于约400 µl。
- 制备蛋黄脂质体饲料。
- 将一份解冻的蛋黄分装物加入50 ml锥形管中的EM中。涡旋振荡稀释后的蛋黄混合物1–2分钟;混合物应呈现均一乳剂状态。
- 将混合物通过细网筛过滤,以去除蛋白聚集体,并收集至新的洁净50 ml锥形管中。
- 使用1/4英寸锥形微探头在室温下对蛋黄混合物进行脉冲式超声处理(每次5次,每次1秒开启、1秒关闭,每组之间间隔5–10秒;输出功率:6 W),以形成脂质体。超声仪的功率设置因仪器而异,需根据具体仪器和探头进行优化。
注:脂质体混合物在使用前应持续在室温下轻轻摇动,以保持均一性。
- 如需,向蛋黄脂质体中加入荧光脂质类似物。超声处理后立即用移液器将已准备好的脂质加入脂质体混合物中,高速涡旋振荡30秒以使其掺入脂质体。用铝箔包裹离心管以避光,并继续在室温下轻轻摇动。
3. 喂养范式
- 准备幼虫进行喂食。
- 开始喂食前,筛选幼虫是否存在明显的形态缺陷,这些缺陷可能影响其摄食能力。将幼虫转移至 60 mm × 15 mm 培养皿或 6 孔或 12 孔板中,尽量减少胚胎培养基(EM)的体积,并加入 5 ml 配制好的脂质体溶液。
- 如需设置未喂食对照组,将未喂食的幼虫转移至 5 ml EM 中,和/或转移至含 5% 卵清蛋白的 5 ml EM 中,并平行处理。
- 在整个喂食过程中,将幼虫置于恒温摇床(29–31 °C,30 rpm)中轻轻摇动,以促进摄食;若使用荧光标记的脂质类似物,需持续避光。如必须暴露于光照下,应使用有色玻璃培养箱盖以尽量减少光照暴露。
- 喂食结束后,用胚胎培养基(EM)对自由游动的幼虫清洗 3 次。
注意:幼虫可能在喂食过程中的任意时间点开始摄取脂质体。若要求所有幼虫必须在同一时间开始摄食,则应在喂食 1 小时后检查摄食情况(参见步骤 3.4),仅将已开始摄食的幼虫重新放回卵黄乳液中完成后续喂食。 - 在此时点对幼虫进行摄食情况筛查,因有少量幼虫可能未进食(通常约为 0–5%)。可通过观察经麻醉或在冰上金属块轻微冷却后的幼虫肠道情况,判断其是否已摄食:摄取了脂质体的幼虫肠道会呈现颜色加深(图 1)。
- 立即对幼虫进行成像或摄食分析。或者,可将幼虫转移至新鲜胚胎培养基(EM)中,在 28 °C 下继续培养,以允许代谢过程进行。
4. 活体成像用幼虫的制备
- 准备封片介质。
- 配制3%甲基纤维素:将0.75 g甲基纤维素加入25 ml接近沸腾的胚胎培养液(EM)中,涡旋混匀,在室温下轻轻摇动2–3天至完全溶解,可于4 °C保存数年,或于-20 °C长期保存。通过在4 °C反复冻融数个循环可去除气泡。封片时将3%甲基纤维素置于冰上使用。
- 配制1.2%低熔点琼脂糖:将0.3 g低熔点琼脂糖加入25 mL EM中,加热至沸腾使其完全溶解,分装至2 mL离心管中,并置于26–28 °C金属加热块上保温。未使用的分装样品可于室温或-20 °C保存,使用时再次加热溶解。务必确保琼脂糖冷却至适宜温度后再接触幼鱼,以免造成过热损伤。
- 进行低倍率、中通量活体成像时,将载玻片放置在置于冰上金属块的纸巾上,待载玻片冷却。在载玻片上加入足量已预冷至4 °C的3%甲基纤维素,用鱼线探针(将直径0.41 mm的钓鱼线粘附于玻璃毛细管末端制成)将一条幼鱼转移至甲基纤维素中,并用探针划出沟槽以吸除多余EM液体(防止甲基纤维素被稀释),然后按所需方向摆放幼鱼。
- 进行短期(<20分钟)、使用直立油浸物镜的高倍活体成像时,采用盖玻片斜靠法封片固定幼鱼。
- 使用以氰基丙烯酸酯为基础的胶水(如万能胶)将一块22 mm × 30 mm的盖玻片粘附在载玻片的一端。用探针在盖玻片旁的载玻片上涂一条薄薄的3%甲基纤维素,用宽口巴斯德移液管将幼鱼转移至载玻片上。吸除多余EM液体,以防稀释甲基纤维素。
- 用探针轻轻将幼鱼侧置于甲基纤维素中(左侧朝上可更好地观察肝脏,右侧朝上可观察胆囊),并将头部靠近盖玻片边缘。
- 在另一块盖玻片的四个角点少量万能胶,然后将其一边轻轻搭在已固定的盖玻片上,另一边搭在载玻片上,形成跨越幼鱼的桥式结构。此步骤及后续成像过程中应避免施加过大压力,以免损伤幼鱼。
- 进行长期、使用直立浸没物镜的高倍成像时,将幼鱼包埋于琼脂糖中。取少量1.2%低熔点琼脂糖,加入一条幼鱼,再将含有幼鱼的小体积琼脂糖转移至培养皿中。
- 在琼脂糖凝固前迅速用探针调整幼鱼位置。静置干燥2–3分钟,然后加入新鲜EM完全覆盖琼脂糖,防止其脱水干燥。
- 进行长期、使用倒置物镜的高倍成像时,将幼鱼在玻璃底培养皿中以琼脂糖包埋。
- 将金属块预先在冰上冷却。将培养皿置于金属块上,并用纸巾隔开,以避免过度冷却导致幼鱼冻结。将幼鱼转移至培养皿中,并用纸巾吸除EM液体。
- 在幼鱼上方滴加一滴28 °C的1.2%低熔点琼脂糖,立即用探针调整其位置(左侧朝下最利于观察肝脏,右侧朝下利于观察胆囊)。将培养皿从冷金属块上移开,静置干燥2–3分钟,然后加入足量新鲜EM以完全覆盖琼脂糖(约2–5 ml)。
5. 食物摄入量检测
- 在含有 6.4 µM BODIPY C16 的卵黄脂质体饲喂结束后,将至少 10 条经洗涤的幼虫收集至一个塑料 1.5 或 2 ml 离心管中,去除 EM,并迅速冷冻。样品可在避光条件下于 -80 °C 保存数月。
注意:如有可能,应收集多个重复样本。此步骤中必须收集未饲喂的幼虫,以校正背景脂质荧光(理想情况下应使用同一批次的幼虫)。 - 进行改良的 Bligh-Dyer 脂质提取3,21。
- 在冰上向样品中加入 100 µl 匀浆缓冲液(20 mM Tris-Cl,1 mM EDTA)(也可使用纯化 H2O)。在冰上使用微头超声波破碎仪进行匀浆(总共 5 秒:开 1 秒,关 1 秒)。检查幼虫是否完全匀浆;若未完全匀浆,则重复操作。将匀浆液转移至一个 13 ml 一次性玻璃培养管中(也可使用其他玻璃管)。
注意:氯仿具有危害性;后续所有脂质提取步骤均需在室温下于化学通风橱中进行。 - 每使用 100 µl 匀浆缓冲液,加入 375 µl 的 1:2(氯仿:甲醇)溶液。涡旋 30–60 秒,孵育 10 分钟,再按每 100 µl 匀浆缓冲液加入 125 µl 氯仿,涡旋 30 秒。
- 每使用 100 µl 匀浆缓冲液,加入 125 µl 的 200 mM Tris(pH 7.5),涡旋 30 秒,然后离心(2,000 x g,5 分钟,室温,避光)。小心从离心机中取出样品。此时样品将分为两相:上层为水相,中间为幼虫残渣界面,下层为有机相(含脂质)。
- 使用洁净的玻璃移液管收集下层有机相,并转移至洁净的 13 ml 玻璃管中。
注意:注意避免接触水相及界面处的幼虫残渣;若发生污染,需重复离心并重新收集。弃去上层水相;在收集有机相前先移除并丢弃水相可能更为方便。样品可在 -80 °C 保存最多 1 个月。 - 在避光条件下,于真空(0.12 atm)中干燥有机相。液体蒸发后不得继续干燥,以免降低脂质溶解性。将脂质重悬于 2:1(氯仿:甲醇)溶液中,并置于冰上保存。氯仿:甲醇溶液的最佳体积取决于所用检测方法;建议起始体积较低,根据需要逐步稀释。一般建议每 10 条 pooled 幼虫使用 10 µl 溶液。
- 在冰上向样品中加入 100 µl 匀浆缓冲液(20 mM Tris-Cl,1 mM EDTA)(也可使用纯化 H2O)。在冰上使用微头超声波破碎仪进行匀浆(总共 5 秒:开 1 秒,关 1 秒)。检查幼虫是否完全匀浆;若未完全匀浆,则重复操作。将匀浆液转移至一个 13 ml 一次性玻璃培养管中(也可使用其他玻璃管)。
- 将全部样品体积均匀点样于带通道的薄层层析(TLC)板上,使用常用于生物分子成像的激光扫描仪(例如,荧光板读数仪)扫描薄层板。对于材料列表中所列的荧光脂质类似物(其激发波长最大值为 500–650 nm,发射波长最大值为 510–665 nm),使用 488 nm 激光激发,并在 520 nm 处收集发射信号。
- 使用成像软件对每个斑点的总荧光强度进行定量。
注意:通过减去配对的未饲喂幼虫样本的荧光值,校正天然存在的背景脂质荧光。
- 使用成像软件对每个斑点的总荧光强度进行定量。
访问受限。请登录或开始试用以查看此内容。
结果
在29-31 °C条件下于摇床上培养时,大多数健康幼虫(≥95%)会在1小时内开始摄食。摄取卵黄乳剂后,幼虫肠道颜色会变深。在2小时时可观察到肠道颜色非常深(图1)。若幼虫未进食或摄食失败,肠道则保持透明。摄食蛋清的幼虫肠道腔扩张,但颜色不会变深。
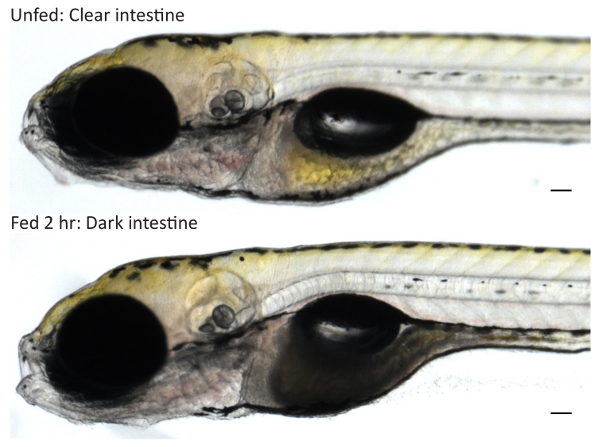
图 1:筛选摄食幼鱼。 将野生型6天龄幼鱼在胚胎培养基(EM)中用5%蛋黄喂养2小时,或平行地仅置于EM中作为未喂食对照组。在体视显微镜下以10倍放大倍数成像时,未喂食幼鱼的肠道透明,而摄取了蛋黄的喂食幼鱼肠道呈深色。比例尺表示0.1 mm。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述技术可使研究人员对幼年斑马鱼进行高脂饲料喂养,观察活体幼鱼对膳食脂质的代谢过程,并定量分析幼鱼的摄食量。为确保实验成功,需特别关注若干关键步骤。市售鸡卵存在差异;为尽量减少潜在的变异性,我们均采用非笼养、未经ω-3脂肪酸强化的有机鸡蛋进行所有检测。在6 dpf之前仍存有内源性卵黄能量储备的幼鱼、健康状况不佳的幼鱼,或存在影响摄食能力的发育突变的幼鱼中,可能观察到较低的摄食率。即下颌或肠道畸形、无法正常游动)。Farber 实验室通常在受精后 6–7 天(dpf)进行喂养实验,因为斑马鱼幼体在内源性卵黄储备耗尽之前不需要外源食物,而卵黄耗尽后更有利于消化系统的观察。在室温(RT)下喂养可显著减少摄食幼体的数量。若未对幼体的摄食情况进行筛选,导致未摄食幼体被无意纳入后续实验,可能干扰实验结果。此外,应尽可能避免荧光脂质类似物及摄食了该类似物的幼体样本暴露于光照下,以维持最大荧光强度,从而保证检测的灵敏度。最后,若需测量食物摄入量,喂养与追踪(即摄食后的代谢期)的总时长不应超过 4 小时,因为食物此时已开始被排出体外。目前,食物及相关的荧光脂质类似物的排泄速率尚不明确,但荧光信号可在幼体全身持续至少 2 天(J.P....
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢孟介·沈提供图片,詹妮弗·安德森对稿件提出的有益意见,以及法伯实验室成员在开发这些技术过程中所做出的贡献。本研究由美国国立卫生研究院国家糖尿病、消化与肾脏疾病研究所(NIDDK-NIH)资助项目 RO1DK093399(S.A.F.)、RO1GM63904(斑马鱼功能基因组联盟:首席研究员 Stephen Ekker,合作首席研究员 S.A.F.)以及 F32DK096786(J.P.O.)提供经费支持。本内容仅由作者负责,不一定代表 NIH 的官方观点。S.A.F. 实验室还获得了 G. Harold 和 Leila Y. Mathers 慈善基金会以及卡内基科学研究所捐赠基金的额外支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 三卡因(氨基苯甲酸乙酯甲磺酸盐) | Sigma-Aldrich | A5040-25G | 幼年斑马鱼麻醉剂 |
| 鸡蛋 | N/A | N/A | 有机、散养鸡蛋,未强化ω-3脂肪酸 |
| 超声处理器3000超声仪 | Misonix, Inc. | S-3000 | 制备蛋黄脂质体 |
| 声学屏蔽箱(Sonabox) | Misonix, Inc. | 432B | 制备蛋黄脂质体 |
| 1/8” 锥形微头 | Misonix, Inc. | 419 | 制备蛋黄脂质体 |
| 棕色小瓶(4 ml,玻璃) | National Scientific | 13-425 | 脂质储存;包含小瓶、开口盖和隔垫 |
| Incu-Shaker Mini | Benchmark | 1222U12 | 用于饲料孵育振荡 |
| BODIPY FL C16 | Thermo Fisher Scientific | D3821 | 荧光脂质类似物;(4,4-二氟-5,7-二甲基-4-硼-3a,4a-二氮杂-s-茚并-3-十六烷酸) |
| BODIPY FL C12 | Thermo Fisher Scientific | D3822 | 荧光脂质类似物;(4,4-二氟-5,7-二甲基-4-硼-3a,4a-二氮杂-s-茚并-3-十二烷酸) |
| BODIPY FL C5 | Thermo Fisher Scientific | D3834 | 荧光脂质类似物;(4,4-二氟-5,7-二甲基-4-硼-3a,4a-二氮杂-s-茚并-3-戊酸) |
| BODIPY FL C5 | Thermo Fisher Scientific | D2183 | 荧光脂质类似物;(4,4-二氟-5,7-二甲基-4-硼-3a,4a-二氮杂-s-茚并-3-丙酸) |
| TopFluor 胆固醇 | Avanti Polar Lipids Inc. | 810255 | 荧光脂质类似物;23-(二吡咯亚甲基硼二氟化物)-24-去甲胆固醇 |
| 无脂肪酸BSA | Sigma-Aldrich | A0281-1G | 用于TopFluor胆固醇的溶解 |
| 甲基纤维素 | Sigma-Aldrich | M0387 | 活体幼体成像封片介质;75 × 25 × 1 mm |
| 低熔点琼脂糖 | Thermo Fisher Scientific | BP165-25 | 活体幼体成像封片介质;22 × 30 |
| VWR 显微镜载玻片 | VWR | 16004-422 | 用于活体成像时幼体的固定 |
| 盖玻片 | Cover Glass | 12-544A | 用于活体成像时幼体的固定 |
| 超级胶水 | Loctite | LOC01-30379 | 用于活体成像时幼体的固定 |
| FluoroDish(玻璃底培养皿) | World Precision Instruments, Inc. | FD35-100 | 用于活体成像时幼体的固定;35 mm培养皿,23 mm玻璃,0.17 mm玻璃厚度 |
| 共聚焦显微镜 | Leica Microsytems | SP-2, SP-5 | 用于高倍率活体成像的显微镜 |
| 体视显微镜 | Nikon | SM21500 | 用于低倍率活体成像的显微镜 |
| 玻璃培养管 | Kimble | 73500-13100 | 脂质提取;(13 × 100 mm;13 ml) |
| Savant SpeedVac Plus | ThermoQuest | SC210A | 脂质提取 |
| 带通道TLC板 | Whatman Scientific | WC4855-821 | 摄食实验;LK5D硅胶150 A,20 × 20 cm,250 μm厚;已停产 |
| 带通道TLC板 | Analtech, Inc. | 66911 | 摄食实验;可直接替代Whatman Scientific的TLC板 |
| Typhoon 9410 多功能成像仪 | GE Healthcare | 9410 | 用于摄食实验的荧光板读取 |
| ImageQuant 软件 | GE Healthcare | 29000605 | 摄食实验数据分析 |
| 5 3/4’ 宽口硼硅酸盐一次性移液管 | Kimble | 63A53WT | 转移幼体 |
参考文献
- Carten, J. D., Farber, S. A. A new model system swims into focus: using the zebrafish to visualize intestinal metabolism in vivo. Clin Lipidol. 4 (4), 501(2009).
- Babin, P. J., Vernier, J. M. Plasma lipoproteins in fish. J Lipid Res. 30 (4), 467-489 (1989).
- Carten, J. D., Bradford, M. K., Farber, S. A. Visualizing digestive organ morphology and function using differential fatty acid metabolism in live zebrafish. Dev Biol. 360 (2), 276-285 (2011).
- Marza, E., et al. Developmental expression and nutritional regulation of a zebrafish gene homologous to mammalian microsomal triglyceride transfer protein large subunit. Dev Dyn. 232 (2), 506-518 (2005).
- Stoletov, K., et al. Vascular lipid accumulation, lipoprotein oxidation, and macrophage lipid uptake in hypercholesterolemic zebrafish. Circ Res. 104 (8), 952-960 (2009).
- Fang, L., et al. Programming effects of high-carbohydrate feeding of larvae on adult glucose metabolism in zebrafish, Danio rerio. Br J Nutr. 111 (5), 808-818 (2014).
- Wang, Z., Mao, Y., Cui, T., Tang, D., Wang, X. L. Impact of a combined high cholesterol diet and high glucose environment on vasculature. PLoS One. 8 (12), 81485(2013).
- Fang, L., et al. In vivo visualization and attenuation of oxidized lipid accumulation in hypercholesterolemic zebrafish. J Clin Invest. 121 (12), 4861-4869 (2011).
- Curado, S., et al. Conditional targeted cell ablation in zebrafish: a new tool for regeneration studies. Dev Dyn. 236 (4), 1025-1035 (2007).
- Pisharath, H., Rhee, J. M., Swanson, M. A., Leach, S. D., Parsons, M. J. Targeted ablation of beta cells in the embryonic zebrafish pancreas using E. coli nitroreductase. Mech Dev. 124 (3), 218-229 (2007).
- Passeri, M. J., Cinaroglu, A., Gao, C., Sadler, K. C. Hepatic steatosis in response to acute alcohol exposure in zebrafish requires sterol regulatory element binding protein activation. Hepatology. 49 (2), 443-452 (2009).
- Sadler, K. C., Amsterdam, A., Soroka, C., Boyer, J., Hopkins, N. A genetic screen in zebrafish identifies the mutants vps18, nf2 and foie gras as models of liver disease. Development. 132 (15), 3561-3572 (2005).
- Matthews, R. P., et al. TNFalpha-dependent hepatic steatosis and liver degeneration caused by mutation of zebrafish S-adenosylhomocysteine hydrolase. Development. 136 (5), 865-875 (2009).
- Oka, T., et al. Diet-induced obesity in zebrafish shares common pathophysiological pathways with mammalian obesity. BMC Physiol. 10, 21(2010).
- Chu, C. Y., et al. Overexpression of Akt1 enhances adipogenesis and leads to lipoma formation in zebrafish. PLoS One. 7 (5), 36474(2012).
- Song, Y., Cone, R. D. Creation of a genetic model of obesity in a teleost. FASEB J. 21 (9), 2042-2049 (2007).
- Watts, S. A., Powell, M., D'Abramo, L. R. Fundamental approaches to the study of zebrafish nutrition. ILAR J. 53 (2), 144-160 (2012).
- Farber, S. A., et al. Genetic analysis of digestive physiology using fluorescent phospholipid reporters. Science. 292 (5520), 1385-1388 (2001).
- Miyares, R. L., de Rezende, V. B., Farber, S. A. Zebrafish yolk lipid processing: a tractable tool for the study of vertebrate lipid transport and metabolism. Dis Model Mech. 7 (7), 915-927 (2014).
- Otis, J. P., et al. Zebrafish as a model for apolipoprotein biology: comprehensive expression analysis and a role for ApoA-IV in regulating food intake. Dis Model Mech. 8 (3), 295-309 (2015).
- Bligh, E., Dyer, W. A rapid method of total lipid extraction and purification. Can. J. Biochem. Physiol. 37, 911-918 (1959).
- Otis, J. P., Farber, S. A. Imaging vertebrate digestive function and lipid metabolism. Drug Discov Today Dis Models. 10 (1), (2013).
- Andre, M., et al. Intestinal fatty acid binding protein gene expression reveals the cephalocaudal patterning during zebrafish gut morphogenesis. Int J Dev Biol. 44 (2), 249-252 (2000).
- Shimada, Y., Hirano, M., Nishimura, Y., Tanaka, T. A high-throughput fluorescence-based assay system for appetite-regulating gene and drug screening. PLoS One. 7 (12), 52549(2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
