本文描述了如何筛选热稳定突变体、纯化人源5-羟色胺转运蛋白、制备高亲和力抗体,以及对结合抗抑郁药物 S-西酞普兰的5-羟色胺转运蛋白-抗体复合物进行结晶。该方案可适用于其他难以研究的膜转运蛋白、受体和通道蛋白的研究。
本文内容
摘要
摘要
5-羟色胺转运蛋白是一种依赖钠离子和氯离子的转运蛋白 "泵" 细胞外5-羟色胺进入细胞。 S西酞普兰是一种通过高亲和力结合5-羟色胺转运体并阻断5-羟色胺重摄取来治疗抑郁和焦虑的药物。本文报道了一种高效的方法及一系列工具,用于稳定、表达、纯化以及结晶与5-羟色胺转运体-抗体复合物结合的西酞普兰 S-西酞普兰及其他抗抑郁药物。通过使用一种稳定5-羟色胺转运蛋白的突变体鉴定方法,鉴定了可稳定5-羟色胺转运蛋白的突变位点 S-citalopram 结合实验。在杆状病毒转导的 HEK293S GnTI 细胞中表达的5-羟色胺转运蛋白- 细胞被重建为蛋白脂质体,并用于制备高亲和力抗体。我们已开发出一种策略,用于发现适用于结构研究的抗体。同时建立了一种在Sf9细胞中表达抗体片段的简便方法。通过该流程纯化的转运蛋白-抗体复合物性质良好,易于结晶,可形成结构明确的复合物 S-西酞普兰,其晶体可将X射线衍射至3–4 Å分辨率。本研究中开发的策略可用于解析其他难以处理的膜蛋白的结构。
引言
5-羟色胺转运蛋白(SERT)是一种整合膜蛋白,可介导5-羟色胺跨细胞膜的转运1。SERT属于神经递质钠共转运蛋白(NSS)家族,该家族还包括多巴胺和去甲肾上腺素转运蛋白2。SERT是广泛使用的抗抑郁药和抗焦虑药物的分子靶点,这些药物通过竞争性抑制5-羟色胺的转运发挥作用3。SERT利用钠离子协同转运所提供的能量优势,将神经递质从突触间隙清除。对5-羟色胺系统的广泛研究表明,5-羟色胺代谢的改变几乎影响所有神经系统过程,包括情绪、睡眠、疼痛、认知以及攻击性行为4。SERT的功能可通过抗抑郁药和选择性5-羟色胺再摄取抑制剂(SSRIs)如S-西酞普兰进行调节,也可通过精神兴奋剂和成瘾性药物如苯丙胺以及3,4-亚甲二氧基-N-甲基苯丙胺(即"摇头丸")来改变1,2。
选择性5-羟色胺再摄取抑制剂(SSRIs)在治疗情绪障碍方面具有极其重要的作用,然而其作用的精确结构基础尚不明确。野生型SERT在去垢剂胶束中不稳定,因而阻碍了SERT三维(3D)结构研究的进展5,6最近,我们开发了SERT的多种变异体,这些变异体在多种去垢剂中均表现出高度稳定性,并保持了对SSRI的结合活性。6这些耐热型SERT变体是使用基于闪烁接近法的热稳定性检测技术筛选获得的。本文描述了一种制备可结合SERT的高亲和力抗体的方法,以及耐热型SERT与抗体形成复合物后的纯化与结晶过程。 S-西酞普兰
本实验方案假设SERT和8B6基因已分别成功克隆至BacMam7和昆虫表达载体中。为制备抗体,将编码野生型SERT第73-616位氨基酸的cDNA克隆至BacMam载体,并在C末端添加Strep II标签(SERTIC)。在热稳定性筛选实验中,使用了在C末端带有GFP、Strep II和10-His标签的SERT第73-616位氨基酸(SERTTC)。所有单点突变均在SERTTC背景下引入。在结晶实验方案中,使用了SERT-GFP融合蛋白,其带有Twin-Strep标签[TrpSerHisProGlnPheGluLys(GlyGlyGlySer)2GlyGlySerAlaTrpSerHisProGlnPheGluLys]和10-His标签,并包含以下热稳定性突变:Y110A、I291A和T439S,以及表面半胱氨酸突变C554A、C580A和C622A(SERTCC)。此外,在SERTCC的Q76和T618之后插入了凝血酶切割序列(LVPRGS),以便去除N端和C端。编码8B6 Fab的质粒经改造后可在两个独立的多角体启动子控制下,分别表达抗体的重链和轻链,并带有GP67分泌信号序列。8B6抗体重链的C末端带有8-His标签,并在重链与标签之间插入了凝血酶切割位点。
方案
1. 用于热稳定性筛选的贴壁型 HEK293S GnTI- 细胞转染
- 准备多聚-D-赖氨酸(PDL)包被的96孔板。所有操作均需在无菌超净工作台中进行。
- 使用0.2 µm无菌滤器过滤浓度为25 µg/mL的PDL溶液(分子量70,000–150,000 Da)。向96孔组织培养(TC)板的每孔中加入50 µL PDL溶液,确保孔底均匀包被,并在室温 孵育30分钟。
- 吸除PDL溶液,并用200 µL无菌水洗涤各孔。
- 将板在空气中干燥2小时,随后于4 °C保存。PDL包被的板可在4 °C保存数周。
- 贴壁HEK293S细胞的胰酶消化。
- 在37 °C、8% CO2条件下,将HEK293S细胞培养至10 cm培养皿中汇合度达80%。一个10 cm培养皿中约含有1000万个HEK293S细胞。细胞传代次数不得超过30代!
- 吸除培养基,用5 mL磷酸盐缓冲液(PBS)洗涤。向细胞中加入1 mL胰酶-EDTA溶液(0.25%胰酶,0.02% EDTA),在37 °C孵育2分钟 。
- 加入10 mL含10%胎牛血清(FBS)的杜氏改良伊格尔培养基(DMEM),并用移液管反复吹打使细胞重悬。
- 取10 µL细胞悬液与10 µL台盼蓝溶液(0.4%)混合。使用血细胞计数板和光学显微镜测定细胞密度。被染成蓝色的细胞为死细胞,不应计入。确保细胞活力高于90%。
- 将胰酶消化后的HEK293S GnTI- 细胞充分重悬于含10% FBS的DMEM中,调整细胞密度至0.5 × 10⁶ 个/mL,并置于一次性移液管储液槽中。每块板约需500万个HEK293S细胞。按照本方案,每块板可转染24个不同构建体。
- 使用多通道移液器向PDL包被板的每孔中加入100 µL细胞悬液。每加完一块板后,需在储液槽中重新吹打混匀细胞,以确保细胞分布均匀。将细胞放回37 °C、8% CO2的培养箱中孵育。24小时后,细胞汇合度应达到约80%。
- 转染前1小时 更换培养基。准备DNA-转染试剂复合物用于转染。
- 针对SERTTC背景中每一个待筛选的构建体,将450 ng DNA与45 µL无血清DMEM混合。另取1.6 µL转染试剂加入45 µL无血清DMEM中并混匀。
- 立即将稀释后的转染试剂溶液加入DNA溶液中并混匀。切勿颠倒混合顺序。室温静置10–15分钟,然后将20 µL转染试剂/DNA混合物加入4个孔中。
- 完成所有孔的转染后,轻轻前后摇动培养板混匀,随后放回37 °C培养箱。
- 转染后16–24小时 ,更换为含血清和10 mM丁酸钠的DMEM培养基。
- 转染约48小时后,吸除培养基,可立即进行热稳定性筛选,或在-80 °C冷冻保存以备后续使用。细胞可在-80 °C保存数周。
2. 基于闪烁接近法的艾司西酞普兰(S-citalopram)热稳定性筛选
- 将细胞与 200 nM 孵育 S在室温下,用25 µL TBS(Tris缓冲盐水 — 20 mM Tris,pH 8,100 mM NaCl)溶解-citalopram,孵育5分钟。
- 加入25 µL溶于TBS中的8 mM 正十二烷基-β-D-麦芽糖吡喃苷(C12M)、1 mM 胆固醇半琥珀酸酯(CHS)以及蛋白酶抑制剂混合物(2 mM 苯甲基磺酰氟(PMSF)、0.1 mg/mL 抑肽酶、4 g/mL 胃蛋白酶抑制剂A和4 µg/mL 亮抑酶肽),通过孵育1小时(室温)使细胞溶解。
- 加入50 µL含20 nM [3H]citalopram(81.7 Ci/mmol)、0.1% 牛血清白蛋白和 2 mg/mL His标签亲和闪烁 proximity assay(SPA)珠,每种构建物加入三个孔。最后一孔加入上述相同溶液,并补充 100 µM 舍曲林以测定非特异性结合。向 96 孔板中加入 His标签亲和 SPA 珠时,应确保充分混匀。
- 测量[3使用96孔闪烁计数器在室温下对[H]西酞普兰结合进行检测,每孔计数时间为1分钟。持续对酶标板进行计数,直至总计数达到平台期(约36小时后)。
- 加热板15分钟 在33 °C的加热块中,使用加热盖进行孵育。测量[3H]citalopram 结合实验在加热后重复进行,步骤同 2.4 所述。
- 重复步骤 2.4 - 2.5,并将加热步骤分别改为 36 °C、39 °C、45 °C、48 °C 和 51 °C。根据观察到的熔解温度调整加热温度(Tm目标蛋白的表达量以及最稳定构建体的热稳定性。持续加热平板,直至所有构建体的特异性计数均降至较低水平。
- 分析数据以确定 Tm 值。
- 确定每分钟的平均总计数 通过取不含舍曲林孔的3个复孔的平均值,计算每种构建体的每分钟计数(CPM)。通过取单个培养板中含舍曲林各孔的CPM的平均值,确定非特异性CPM。
- 通过从总 CPM 中减去非特异性 CPM 来计算特异性 CPM。
- 计算 Tm 通过非线性拟合至Boltzmann S形函数。在室温下具有较低特异性CPM的构建体(<10% 的野生型)通常不具有准确的 Tm 数值。可将最耐热结构中的突变进行组合,并筛选其耐热性是否具有叠加提升效果。
3. 在HEK293S GnTI- 细胞中表达人源5-羟色胺转运蛋白
- 将1 ng质粒转化至感受态DH10Bac细胞中。
- 将质粒加入50 µL DH10Bac细胞中,冰上孵育30 min。
- 42 °C热激DH10Bac细胞30 sec,加入200 µL SOC培养基,37 °C振荡培养4 h 。
- 将全部菌液涂布于含有50 µg/mL卡那霉素、7 µg/mL庆大霉素、10 µg/mL四环素、100 µg/mL 5-溴-3-吲哚基-β-D-半乳糖吡喃苷以及40 µg/mL异丙基-β-D-硫代半乳糖苷(IPTG)的Luria Broth(LB)平板上。
- 挑选在LB琼脂平板上37 °C培养2 d 后生长的lacZ-菌落(白色菌落)。
- 挑取数个菌落,在含抗生素的5 mL LB培养基中37 °C过夜培养,并提取杆状病毒DNA(bacmid DNA)。
- 将菌液在离心机中以1,000 x g离心5 min,弃上清。用200 µL质粒小提重悬缓冲液重悬菌体。
- 加入200 µL质粒小提裂解缓冲液,轻轻颠倒离心管10次以裂解菌体。随后加入200 µL中和缓冲液。
- 在离心机中以14,000 x g离心10 min,去除不溶性组分。向上清中加入1 mL异丙醇,-20 °C静置20 min以沉淀DNA。
- 在离心机中以14,000 x g离心15 min,弃上清。
- 用70%乙醇洗涤DNA沉淀,再次以14,000 x g离心15 min,弃上清。将DNA沉淀在空气中干燥至乙醇完全挥发,然后溶于50 µL水中。
注:为获得最佳效果,应立即转染bacmid DNA至Sf9细胞,但也可在-20 °C保存数周。
- 将bacmid DNA转染至在27 °C、湿润培养箱中贴壁生长于6孔板中的1×10⁶个Sf9细胞中。所有细胞培养操作均应在无菌超净工作台中进行。
- 移除细胞培养基,加入2 mL新鲜Sf9培养基。将5 µg bacmid DNA加入100 µL Sf9培养基中(溶液A)。
- 将8 µL阳离子脂质Sf9转染试剂加入100 µL Sf9培养基中(溶液B),将装有溶液B的离心管室温孵育5 min。
- 将溶液A与溶液B混合,室温孵育30 min,然后将全部混合液加入Sf9细胞中。
- 96 h后,将上清液通过0.2 µm滤膜收集(P1代病毒)。P1代病毒可在避光条件下4 °C保存数月,并可根据需要重复使用以制备P2代病毒。
- 在1 L Sf9培养基中,向密度为1×10⁶ 个细胞/mL的Sf9细胞中加入100 µL P1代病毒。在27 °C、100 rpm振荡条件下感染细胞96 h。
- 将细胞在离心机中以4,000 x g离心15 min,将含有病毒颗粒的上清液通过0.2 µm滤膜过滤,弃去细胞沉淀。使用病毒斑块实验或病毒计数器测定病毒滴度。病毒滴度应>1×10⁸ 个病毒颗粒/mL。P2代病毒可在避光条件下4 °C保存数月并持续使用。
- 在37 °C、8% CO2、85%湿度及130 rpm振荡条件下,向悬浮培养的10 L HEK293S GnTI-细胞7中加入P2代病毒进行感染,感染复数(MOI)为2,细胞密度为3×10⁶ 个细胞/mL,通常每800 mL细胞加入30–50 mL P2代病毒,使用2 L带挡板的摇瓶培养。
注:不建议使用超过80 mL的P2代病毒,因为HEK293S GnTI-细胞生长缓慢,且由于pH变化可能导致细胞活力下降。Sf9培养基的酸性高于293表达培养基。 - 感染后12–16 h,从1 M母液中加入丁酸钠至终浓度10 mM。感染后48–60 h,以4,000 x g离心15 min收集细胞,弃去上清。
- 将细胞重悬于150 mL TBS缓冲液中,含2 µM S-西酞普兰或其他SERT抑制剂,-80 °C保存直至进行纯化。
4. 用于免疫和结晶的5-羟色胺转运蛋白亲和纯化
- 将10 L培养物的细胞在温水(约30 °C)中解冻,并通过10 mL移液器快速吹打至均匀悬浮。
- 制备用于溶解的去垢剂溶液(150 mL):含40 mM C12M、5 mM CHS和蛋白酶抑制剂混合物的80 mM Tris(pH 8)、150 mM NaCl溶液。
- 将所有细胞加入含有搅拌子的烧杯中,边搅拌边加入全部去垢剂溶液。在4 °C下搅拌溶解1小时。
- 在 4 °C 条件下,以 8,000 x g 离心裂解液 15 分钟。弃去沉淀,将上清液转移至洁净的超速离心管中。在超速离心机中以 100,000 x g 离心 1 小时。弃去沉淀,将上清液通过 0.2 µm 滤膜过滤。
- 将裂解液使用蠕动泵通过已装填10 mL Strep亲和树脂的层析柱,树脂预先用洗涤缓冲液平衡:1 mM C12M,0.2 mM CHS,5% 甘油,25 µM 脂质(1-棕榈酰-2-油酰-sn-甘油-3-磷酰胆碱,1-棕榈酰-2-油酰-sn-甘油-3-磷酸乙醇胺,以及1-棕榈酰-2-油酰-sn-甘油-3-磷酸甘油,摩尔比为1:1:1),以及1 µM S西酞普兰或选择性5-羟色胺再摄取抑制剂在TBS中的应用
- 将Strep亲和柱连接至快速蛋白液相色谱(FPLC)系统,用66 mL(6.6个柱体积)洗涤缓冲液以2 mL/min流速洗涤柱子。随后,使用含5 mM 脱硫生物素的相同缓冲液以0.5 mL/min流速洗脱纯化蛋白,共使用33 mL(3.3个柱体积)缓冲液。收集1 mL组分,主峰组分约为10 mL。纯化后的蛋白可在4 °C保存2–3天。 如需要。
注意:SERT 的总产量为 3–4 mgCC 和1 mg的SERTIC280 nm 处的吸光度为 2 AU 等于 1 mg/mL SERT。
5. 将转运蛋白重构至脂质体用于免疫
- 制备含有卵磷脂:胆固醇:脂质A:脑极性脂质(摩尔比60:17:3:20)的脂质体。将脂质溶解于1 mL氯仿中,并将总脂质40 mg加入100 mL 指定摩尔比的玻璃圆底烧瓶
- 在约30 °C温水中旋转圆底烧瓶,于减压条件下蒸发氯仿至少1小时。
- 通过加入10 mL TBS重悬脂质。在缓冲液中孵育10分钟。
- 将烧瓶置于液氮中冷冻脂质2.
- 解冻。将烧瓶的球形底部浸入盛有约30 °C温水的烧杯中。在水浴超声仪中超声处理5分钟。
- 涡旋并重复步骤 5.1.3 - 5.1.4 共 10 次,或直至脂质完全从底部重新悬浮并形成浑浊的悬液。
- 将全部脂质混合物通过200 nm滤膜挤出两次。挤出前脂质呈乳白色悬浊液,挤出后变为半透明。切勿一次性将全部脂质混合物加入挤出器,以免堵塞造成样品损失。
- 以 100,000 × g 离心脂质 20 分钟 用 TBS 重悬,终体积为 0.5–1 mL,浓度为 40 mg/mL。
- 浓缩纯化的SERTIC 使用100 kDa截留分子量的离心式蛋白浓缩器将体积浓缩至250–500 µL,蛋白浓度调整为2–4 mg/mL,并用5 mM C12M饱和脂质体。将纯化的SERT加入去污剂-脂质混合物中,终体积为1 mL。
- 通过分三次加入80 mg/mL疏水吸附树脂去除C12M。前两次加入树脂后,在4 °C下旋转孵育2 h,然后通过玻璃棉过滤去除树脂。最后一次加入树脂后过夜孵育。
- 以100,000 × g离心20分钟浓缩蛋白脂质体。弃上清,将沉淀重悬于250–500 µL TBS中。
- 加入终浓度为 10 µM 的 S-citalopram 加入至树脂完全去除后的重组蛋白中。
- 将2.5 µL蛋白脂质体溶于SDS-PAGE上样缓冲液(62.5 mM Tris,pH 6.8,10%甘油,2% SDS,0.01%溴酚蓝,100 mM DTT)中,在200 V电压下电泳1小时,通过SDS-PAGE凝胶分析以确认SERT已成功重组。蛋白脂质体可分装后于-80 °C长期保存,每次免疫前置于冰上解冻。
6. 筛选识别三维表位的抗体
- 通过蛋白质印迹法筛选杂交瘤细胞系。能通过蛋白质印迹法识别SERT的抗体可能结合线性表位,因此可能不适用于结构研究。
- 取1 µg纯化的SERTIC或SERTCC,在4 - 15% SDS-PAGE凝胶中以200 V电泳1小时。
- 使用Towbin缓冲液(25 mM Tris,192 mM甘氨酸,20% (v/v) 甲醇,0.1% SDS),在200 mA条件下将蛋白转移至硝酸纤维素膜30分钟。膜可干燥后在室温下长期保存。
- 用10%甲醇重新润湿膜,并用PBS(10 mM磷酸盐,pH 7.4,137 mM NaCl,2.7 mM KCl)洗涤。
- 用含5%脱脂奶粉的PBS在室温下封闭30分钟。
- 用PBS洗涤后,在含0.1%脱脂奶粉的PBS中加入1 µg/mL抗体进行孵育。
- 用含0.1% Tween-20的PBS充分洗涤。
- 在含0.1% Tween-20和0.1%脱脂奶粉的PBS中,按1:10,000稀释与IR荧光染料偶联的山羊抗小鼠二抗,进行孵育。
- 充分洗涤后,使用成像系统扫描。
- 将含有蛋白质印迹阴性抗体的杂交瘤上清液与100 nM SERTCC蛋白混合,摩尔比为1:2(SERT:mAb),溶于200 µL TBS缓冲液中,其中含1 mM C12M、0.2 mM CHS和1 µM S-西酞普兰。在100,000 × g条件下离心20分钟。收集上清液(含SERT-抗体复合物),通过荧光检测尺寸排阻色谱法(FSEC)8进行分析。弃去沉淀。
- 取100 µL上清液,使用配备荧光检测器(激发波长:480 nm,发射波长:510 nm)的高效液相色谱系统(HPLC),以0.5 mL/min流速在尺寸排阻柱上进行分析,流动相为含TBS、0.4 mM月桂基麦芽糖新戊二醇和1 µM S-西酞普兰的缓冲液。能够形成复合物的抗体将导致GFP融合蛋白在尺寸排阻柱上的洗脱早于游离转运蛋白。
- 将复合物用含1 mM C12M、0.2 mM CHS和1 µM S-西酞普兰的TBS缓冲液稀释至10、1、0.1 nM,总体积200 µL,重复进行FSEC分析。在低纳摩尔浓度下仍能引起转运蛋白峰位移的抗体为高亲和力结合剂,是结构研究的良好候选。
- 在含1 mM 5-羟色胺的条件下重复FSEC结合实验。特异性识别SSRI结合构象的抗体在底物存在时将不发生结合;而识别不随构象变化的三维 表位的抗体则无论配体是否存在均能结合。
- 将不同抗体两两组合混合,通过FSEC检测结合情况。识别不同表位的抗体联合使用时,相比单个抗体结合,会导致SERT在尺寸排阻柱上更早洗脱。
- 对于初步结构研究,应选择识别三维表位且亲和力最高的抗体。
7. 在Sf9细胞中表达抗体片段
- 通过PCR将Fab的可变区和恒定区克隆到昆虫表达系统中,使用标准方案在Sf9细胞中进行表达。
- 用5 µg编码带有8-His标签的8B6 Fab轻链和重链的Bacmid DNA(参照第3.4节),转染1 × 10⁶个Sf9细胞。
- 转染后96小时收集P1病毒,并将500 µL P1病毒加入含1 L Sf9细胞(细胞密度为1 × 10⁶ 个细胞/mL)的2 L摇瓶中,制备P2病毒。在27 °C下感染细胞96小时。
- 收集P2病毒(参照第3.6节)。
- 用MOI为2的P2病毒感染6 L Sf9细胞(细胞密度为2 - 3 × 10⁶ 个细胞/mL),通常每个2 L摇瓶(含1 L Sf9细胞)加入40 - 50 mL病毒液。
- 感染后约96小时收集细胞。向细胞中加入50 mL磷酸盐缓冲液 ,pH 8,使其终浓度为50 mM,于4,000 × g离心20分钟。弃去细胞沉淀,将上清液通过0.2 µm切向流过滤装置过滤。收集上清液,如需可于4 °C保存2 - 3天。
8. 从Sf9上清液中纯化抗体片段
- 使用30 kDa分子量截断(MWCO)切向流过滤装置将Sf9上清液浓缩至约400–800 mL。
- 加入pH 8的咪唑,终浓度为10 mM,并加入10 mL His标签亲和树脂。在4 °C下搅拌1小时。
- 在2,000 × g条件下离心5分钟,收集His标签亲和树脂,弃去上清液。
- 将His标签亲和树脂装入层析柱,并连接至FPLC系统。
- 用50 mM磷酸盐 pH 8、150 mM NaCl、25 mM咪唑缓冲液以2 mL/min流速洗涤His标签亲和树脂,共66 mL(6.6个柱体积)。
- 用50 mM磷酸盐pH 8、150 mM NaCl、250 mM咪唑缓冲液洗脱8B6 Fab,收集33 mL洗脱液,每管1 mL分装收集。
- 用10倍体积的冰冻20 mM乙酸盐缓冲液(pH 5)稀释亲和纯化的Fab。
- 使用蠕动泵以1 mL/min流速将Fab结合至1 mL阳离子交换柱。
- 在FPLC系统中,使用20 mM乙酸盐缓冲液(pH 5.5)中的NaCl线性梯度(0–500 mM,共30 mL)分离Fab。Fab将在约300 mM NaCl处以单一峰洗脱。
- 使用含100 mM DTT的上样缓冲液在12.5% SDS-PAGE凝胶上进行分析。在还原性SDS-PAGE凝胶上,8B6 Fab的重链和轻链分别迁移至27 kDa和25 kDa处。
- 合并含Fab的组分,并使用30 kDa MWCO蛋白浓缩器在3,000 × g转速下离心,浓缩至浓度至少为10–15 mg/mL。
- 加入1 M Tris(pH 8)调节pH至8,终浓度为50 mM,将纯化的Fab长期储存于4 °C。总产量为25–30 mg。在280 nm处吸光度为1.4 AU相当于1 mg/mL的8B6 Fab。
9. 转运蛋白-抗体复合物的形成及通过尺寸排阻色谱进行分离
- 进行结晶时,按照前述方法(第4节)在C12M中通过Strep亲和层析纯化SERTCC。
- 加入凝血酶(1:100 w/w)和EndoH(1:10 w/w)在室温下消化过夜,以去除标签。使用100 kDa截留分子量的离心式蛋白浓缩器将样品浓缩至250–300 µL,蛋白浓度达到10 mg/mL。
- 将浓缩后的SERT与Fab按1:1.2的摩尔比混合,总体积小于500 µL。在4 °C下以100,000 × g离心20分钟。收集含有SERT-Fab复合物的上清液,弃去沉淀。
- 使用FPLC系统在尺寸排阻柱上进行尺寸排阻色谱(SEC)分离,流动相为TBS缓冲液,其中添加40 mM正辛基-β-D-麦芽糖苷(C8M)、0.5 mM CHS、5%甘油、25 µM脂质(与步骤4.5中相同)和1 µM S-西酞普兰,流速为0.5 mL/min。
- 收集每管0.5 mL的洗脱组分,通过4–15% SDS-PAGE凝胶电泳以及色氨酸荧光SEC分析各组分。GFP标记的SERT在SDS-PAGE凝胶上的迁移分子量约为80 kDa;去除末端序列和N-连接糖链后,其迁移分子量为45 kDa。
- 根据色氨酸荧光SEC分析结果(激发波长:280 nm,发射波长:335 nm),仅合并单分散性良好的组分。
- 将纯化的SERT-8B6复合物在4 °C保存,可稳定存放长达1周。
10. 通过悬滴法结晶转运蛋白-抗体复合物
- 在结晶之前,使用截留分子量为100 kDa的离心式蛋白浓缩器,将SERT-8B6复合物SEC分离所得的峰组分浓缩至2 mg/mL。280 nm处吸光度为2 AU相当于1 mg/mL。
- 以1:0.05的复合物:游离Fab比例加入额外的Fab。加入10 µM游离Fab S西酞普兰
- 在 4 °C 条件下以 100,000 x g 离心 20 分钟。收集含有 SERT-Fab 复合物的上清液,弃去沉淀。
- 在 4 °C 下按照以下步骤设置悬滴法 24 孔板筛选 表1在含有100 mM Tris-NaOH(pH 8.5)、25–125 mM KCl、32.5–34% PEG 400和0.5% 6-氨基己酸的储液中培养可用于衍射的晶体。
注意:使用 NaOH 将 Tris 缓冲液调至 pH 8.5。切勿使用 HCl 调节 Tris 碱。该筛选体系可在 2 mL 离心管中配制,并可连续使用至耗尽。由于 PEG 400 极其黏稠,务必使用正向置换移液器准确移取。- 在已向每孔添加密封剂的低剖面24孔板中,用移液器加入500 µL每种储液溶液。用移液器将1.5、1.75和2 µL的SERT-8B6复合物分别滴加到18 mm硅化玻璃盖玻片上。在蛋白质样品上方再滴加1 µL储液溶液。
注意:该板在购买时,密封剂已预先涂覆于孔的边缘。 - 将盖玻片盖在24孔板上,使液滴朝向储液槽溶液,并立即按压盖玻片,使其与预先加在每孔中的密封剂紧密贴合以完成密封。
- 继续操作,直至所有24孔均设置完毕。
- 将完成的平板置于温度为4 °C且保温良好的房间内。至少3天内不要移动或干扰平板。
注意:单晶将在约3天内出现,并在14天后生长至100–175 µm。
- 在已向每孔添加密封剂的低剖面24孔板中,用移液器加入500 µL每种储液溶液。用移液器将1.5、1.75和2 µL的SERT-8B6复合物分别滴加到18 mm硅化玻璃盖玻片上。在蛋白质样品上方再滴加1 µL储液溶液。
- 用冷冻环收集晶体,并立即在液氮中快速冷却2 在进行X射线衍射数据收集之前。
- 必要时,可通过悬滴法进行广泛的条件筛选,以寻找额外的结晶条件。使用三种蛋白质与沉淀剂比例:2:1、1.5:1 和 1:1。若有机器人系统可用,则在96孔板中设置100–150 nL的悬滴,悬于70 µL储液上方。较大尺寸的三维晶体可在24孔板中培养。
- 根据液滴外观评分:0,澄清;1,尘状;2,颗粒状沉淀;3,相分离;4,微晶;5,针状晶体;6,片状晶体;7,三维晶体。
- 在24孔板中采用悬滴法进行结晶实验,设置条件如上所述,围绕新确定的条件进行。
结果
在SERTTC背景下构建了单点突变体文库,用于筛选具有热稳定性的突变。各个突变体通过标准的定点突变方法获得。筛选流程采用瞬时转染的HEK293S细胞,并结合基于闪烁 proximity 的热稳定性检测方法,快速鉴定适用于晶体生长的有益突变,如图1A所示。将Tm值与室温下结合的[3H]西酞普兰量作图,可识别出具有高热稳定性且表达水平适合蛋白纯化的构建体(图1B)。将三个突变(Y110A、I291A和T439S)组合,获得一个高度稳定的构建体(图1C)。热稳定性还与在短链去垢剂中稳定性的提高相关,而短链去垢剂对于SERT-Fab复合物的结晶至关重要。
利用杆状病毒转导的HEK293S GnTI细胞大规模表达人源SERT- 细胞培养可能耗时不到两周,并可产生毫克级的产物,如图所示。 图2A. GFP 标记的 SERT 的使用CC 蛋白使得SERT在表达和纯化过程中可通过荧光方便地进行追踪图2B)。我们的纯化策略包括 1)溶解与 SERT 结合的 S-citalopram 来自 HEK293S GnTI- 在CHS作为稳定脂质存在的情况下,于C12M中制备细胞;2)SERT与Strep亲和基质结合;3)通过充分洗涤去除污染蛋白;4)用含有脱硫生物素的缓冲液洗脱具有功能活性的SERT图2C). 经考马斯亮蓝染色检测,洗脱的蛋白质几乎不含其他可检测的蛋白质,并通过FSEC判断为单分散状态图2D,E).
采用类似策略纯化带有Strep II标签的SERT,并将其用于重组及免疫(图3A,B)。将SERT整合入蛋白脂质体可延长其血清半衰期和稳定性,并提高获得高亲和力抗体的可能性。此外,加入细菌细胞壁组分脂质A可作为强效佐剂9。通过向玻璃管中干燥的脂质混合物加入缓冲液并重悬,制备多层脂质体。将脂质体经200 nm孔径滤膜挤出,得到单分散的单层脂质体悬液。随后用去垢剂饱和脂质体,再加入溶于去垢剂中的纯化SERT。最后,通过向脂质-去垢剂混合物中加入疏水性吸附树脂以去除去垢剂。应在重组样品中添加额外配体,以便筛选识别抗抑郁药结合构象的抗体。应通过SDS-PAGE上样染料或C12M溶解少量样品,并进行SDS-PAGE和FSEC分析,以确认蛋白脂质体中存在SERT(图3C,D)。
可筛选表达SERT抗体的杂交瘤细胞系,以获得能够识别三维表位的高亲和力结合抗体。这些特性对于最终成功结晶至关重要,因为抗体必须牢固结合在结构化区域,以促进均一且有序结构域的晶体堆积。第一步是鉴定识别非结构化区域的抗体。将SERT变性后转印至硝酸纤维素膜上;能够结合变性SERT的抗体在Western印迹中呈阳性,且很可能识别线性表位。在图4A中,我们展示了两种Western印迹阳性抗体示例,这类抗体可能不利于促进结晶。在图4B中,将剩余的Western印迹阴性抗体与100 nM SERT-GFP共同孵育,并通过FSEC进行分离。能够结合SERT的抗体将使GFP阳性峰向更早的洗脱位置偏移。SERT-抗体复合物可在去垢剂中进一步稀释,以确定其是否仍能以纳摩尔亲和力结合,随后通过FSEC进行分析。加入5-羟色胺后会引起转运蛋白的构象变化,因此可重新筛选抗体,以判断其是否能特异性识别SSRI结合状态下的构象。在图4C中,结果显示这些抗体在存在5-羟色胺的情况下仍能结合SERT,表明其表位在SSRI结合态与底物结合态之间未发生改变。最后,在图4D中测试抗体组合是否能够结合不同的表位,从而产生进一步的左移峰。结果显示,15B8或8A11抗体所识别的表位不同于8B6抗体所识别的表位。
根据使用木瓜蛋白酶处理的Fab片段进行的初步晶体筛选,选择8B6抗体进行进一步的结构分析。将8B6 Fab的基因克隆至昆虫细胞表达载体中。Fab可在悬浮培养的Sf9细胞中表达并分泌。通过His标签亲和层析(图5A,B)和阳离子交换层析(图5C,D)可从Sf9细胞上清液中纯化8B6 Fab,所得蛋白在SDS-PAGE凝胶上显示无污染物。在图5E中,显示重组8B6 Fab能够结合SERT,并被用于后续的生物化学与生物物理实验。
在 S-西酞普兰存在下,将亲和纯化的 SERTCC 与凝血酶和内切糖苷酶 H(EndoH)进行消化,并加入 8B6 Fab 片段以形成复合物。转运蛋白-抗体复合物随后在 C8M 条件下通过尺寸排阻色谱法(SEC)进行分离(图 6A),其洗脱峰组分中均含有 SERT 和 Fab,SDS-PAGE 结果如(图 6B)所示。使用 C8M 对晶体形成至关重要,可能是因为短链去垢剂有助于分子在晶格中更紧密地排列。采用荧光尺寸排阻色谱法(FSEC)确定可用于结晶的组分(图 6C);不应合并那些非单分散的组分,或含有大量游离 SERT 或 Fab 的组分。
使用该方案通过悬滴气相扩散法,在存在 S-西酞普兰的条件下可生长出棱柱形的SERT-抗体晶体(图7A)。所得晶体的X射线衍射分辨率可达3.15 Å10(图7B)。
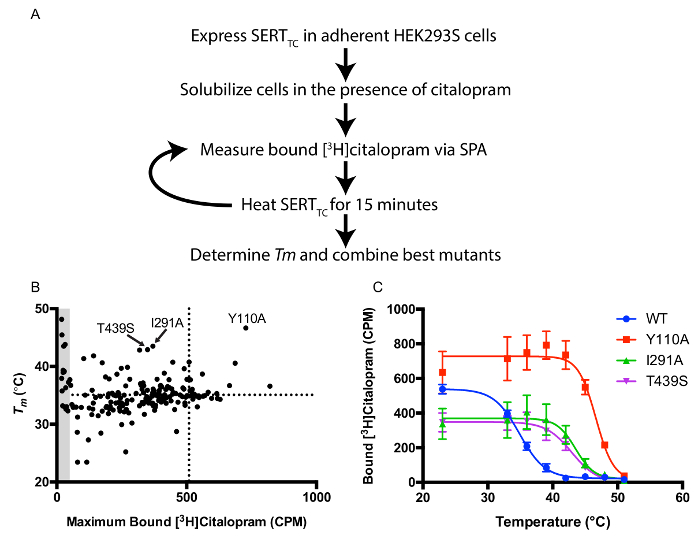
图1:基于闪烁接近法的热稳定性检测。A.在存在[3H]西酞普兰的条件下,筛选热稳定性的实验流程概述。B.最大结合的[3H]西酞普兰量与表观熔解温度(Tm)的关系。虚线表示野生型(WT)转运蛋白的数值。最稳定的3种突变体已标注。灰色区域代表相对于野生型,[3H]西酞普兰结合率低于10%的突变体,由于信噪比较低,其Tm值不准确。C.野生型SERTTC及最稳定的3种突变体的热稳定性曲线。误差棒表示标准差(S.D.)。请点击此处查看该图的放大版本。

图2:哺乳动物异源蛋白表达概述。A. 杆状病毒(BacMam)系统生成及SERT在HEK293S GnTI-细胞中表达的示意图。B. 表达SERTCC的HEK293S GnTI-细胞(GFP荧光)。C. SERTCC在Strep亲和树脂上的洗脱曲线。绿色曲线表示去硫生物素的浓度,0 - 100%(0 - 5 mM)。D. 亲和纯化的SERTCC在4 - 15% SDS-PAGE凝胶中的分析结果。E. 通过GFP荧光检测的亲和纯化SERTCC的FSEC分析(激发波长:480 nm;发射波长:510 nm)。在15 mL处洗脱的峰为SERT(#),18 mL处为游离GFP(*)。请点击此处查看该图的放大版本。
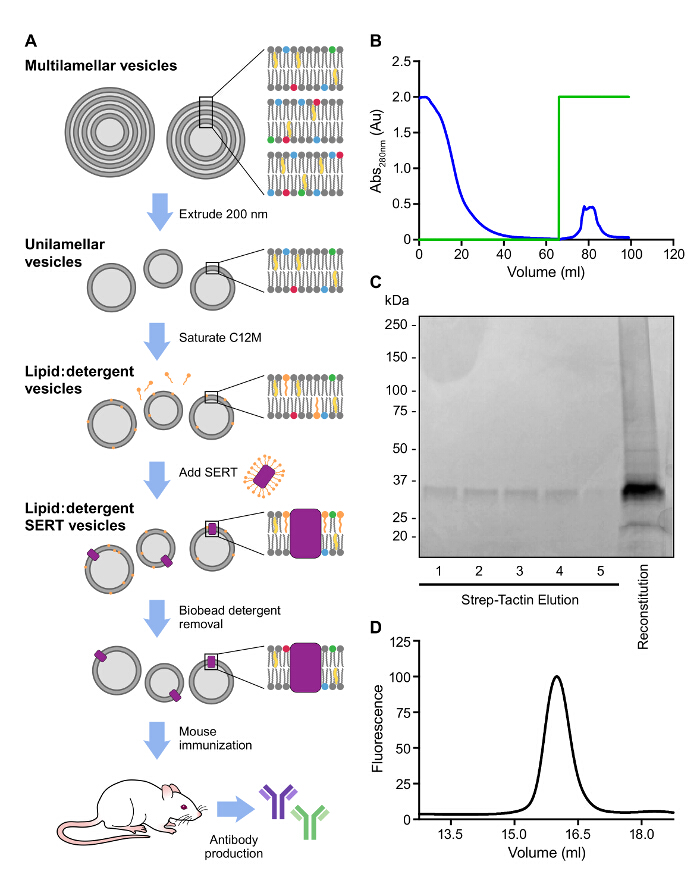
图3:SERTIC 的代表性亲和纯化与重组结果。A. 抗体生成的示意图。B. SERTIC 在Strep亲和树脂上进行亲和纯化时在280 nm处观察到的洗脱曲线。绿色曲线表示脱硫生物素的浓度,0 - 100%(0 - 5 mM)。C. 对亲和纯化并重组后的SERT进行4 - 15% SDS-PAGE凝胶分析。D. 重组后溶解态SERT的荧光尺寸排阻色谱(FSEC)结果。使用色氨酸残基的荧光检测SERT(激发波长:280 nm;发射波长:335 nm)。请点击此处查看该图的放大版本。
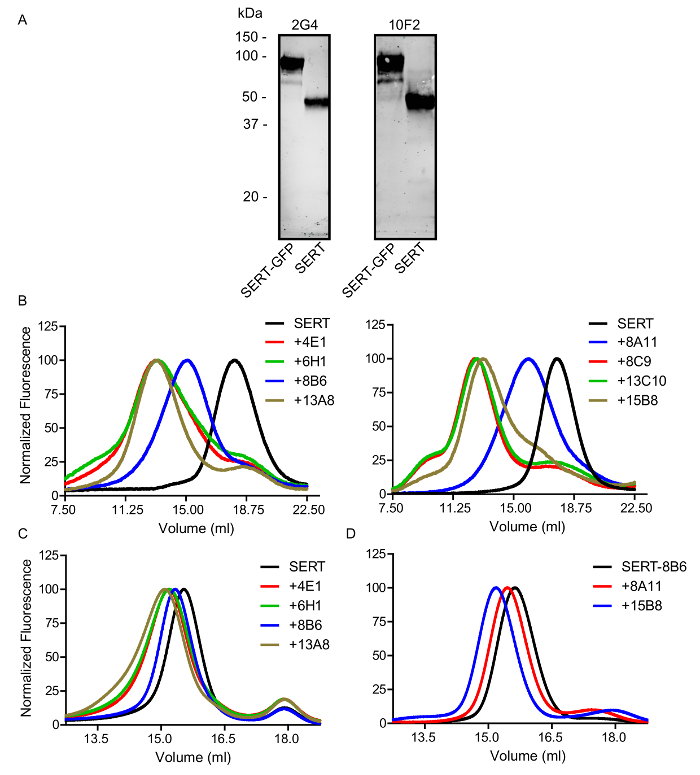
图 4:代表性 SERT 抗体的分析。A. 通过 Western blot 筛选抗体。将约 1 µg 带或不带 GFP 的 SERTCC 蛋白上样至 4 - 15% SDS-PAGE 凝胶,电泳后转至硝酸纤维素膜。使用与 IR Dye 偶联的山羊抗小鼠抗体检测结合信号。2G4 和 10F2 在 Western blot 中呈阳性。 B. 抗体与 100 nM GFP 标记的 SERT 结合,通过 GFP 荧光检测的 FSEC 分析结果。 C. 所选 Fab 片段在 1 mM 5-羟色胺存在下与 100 nM GFP 标记的 SERT 的结合情况。 D. 8A11 或 15B8 Fab 与 SERT-8B6 Fab 的结合。在 18 mL 处洗脱的小峰为游离的 GFP。 请点击此处查看该图的放大版本。
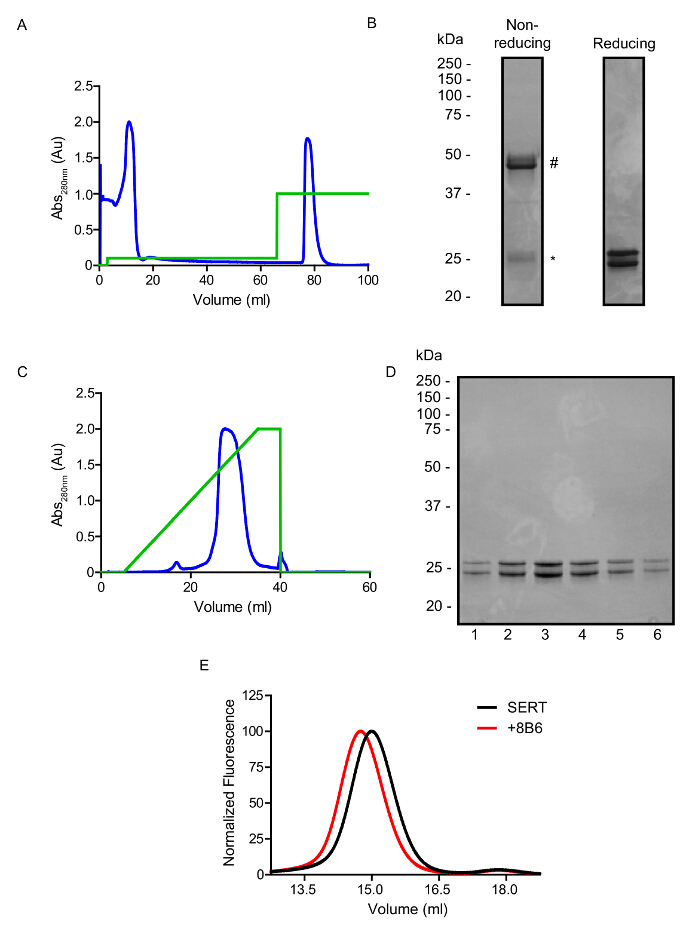
图5:Sf9细胞中8B6 Fab的代表性纯化结果。A. 通过His标签亲和层析纯化8B6 Fab时在280 nm处测得的洗脱曲线。绿色曲线表示咪唑浓度,0 - 50%(0 - 250 mM)。B. His标签亲和纯化后的非还原性和还原性SDS-PAGE凝胶。在约50 kDa处迁移的蛋白为非还原型Fab(#),在25 kDa处的次要条带为还原型Fab(*)。C. 通过阳离子交换层析纯化8B6 Fab时在280 nm处测得的洗脱曲线,显示在线性氯化钠梯度下洗脱出单一的对称峰。绿色曲线表示NaCl浓度,0 - 100%(0 - 500 mM)。D. 经阳离子交换层析纯化后,8B6 Fab在12.5% SDS-PAGE凝胶中的分析结果。E. 使用GFP荧光检测8B6 Fab与10 nM GFP标记的SERT的结合情况。请点击此处查看该图的放大版本。
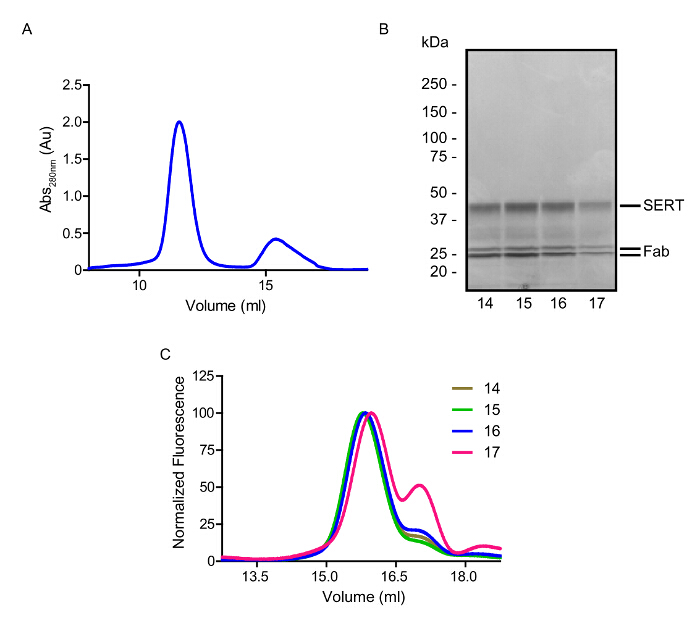
图6:在 S-西酞普兰存在下SERT-8B6复合物的代表性凝胶过滤色谱结果。A.纯化的SERT-8B6复合物的凝胶过滤洗脱曲线。在11.5 mL处洗脱的主峰为SERT-8B6复合物。15–17 mL处的峰含有GFP和Fab片段。B.在4–15% SDS-PAGE凝胶上对纯化的SERT-8B6复合物进行分析。SERT以及Fab的重链和轻链位置以短划线标示。C.尺寸分离各组分的荧光检测色谱(FSEC)。使用色氨酸荧光检测SERT-8B6复合物。第17组分中含有较多未与Fab形成复合物的SERT。 请点击此处查看该图的放大版本。
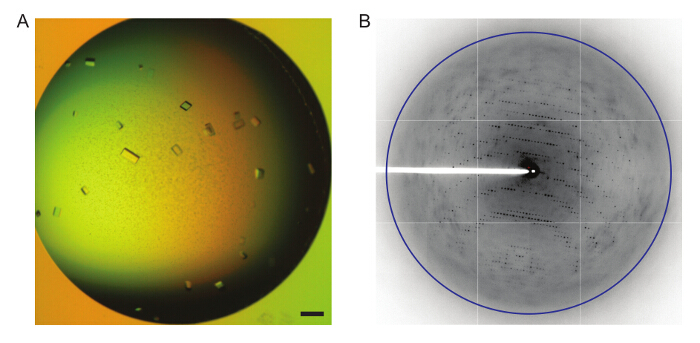
图7:与SERT-8B6复合物结合的结晶 S西酞普兰 A. 生长两周后SERT-8B6复合物的平行六面体晶体的光学显微镜图像。比例尺等于 200 µm. BSERT-8B6 晶体可将X射线衍射至3.15 Å。蓝色环代表3.15 Å。 请点击此处以查看此图的放大版本。
表1:SERT-8B6复合物与S-西酞普兰结合状态的结晶筛选条件。 请点击此处下载该表格。
讨论
通过生物物理技术确定膜蛋白结构对于许多具有重要医学意义的转运蛋白、受体和通道而言,仍是一项艰巨的任务11. 本文分享了用于解析人源五羟色胺转运蛋白与配体结合状态下结构的详细专业技术 S-西酞普兰。我们预计这些方法将有助于确定SERT在其他构象状态下的结构,以及其他难以处理的膜蛋白的结构。此外,本文所述的生化技术也可用于研究在去垢剂和接近天然脂质环境中纯化的SERT的功能。
SERT 的结晶依赖于多种工具和技术的开发。首先,转运蛋白热稳定性的提升获得了在从膜中提取后于各种去垢剂胶束中表现良好的 SERT 突变体6。其次,高亲和力配体的使用 S-西酞普兰在整个纯化和结晶过程中进一步提高了稳定性并减少了构象异质性。第三,BacMam表达系统的开发7 可在短短两周内大量生产SERT,从而促进免疫和结晶。最后,通过开发筛选高亲和力抗体的策略,这些抗体可识别三维表位,进而发现了8B6抗体,该抗体可促进SERT-抗体复合物有序堆积形成晶体。
在本实验方案的实施过程中,存在若干关键步骤、试剂以及常见问题。首先,高滴度 SERT P2 病毒的制备可能存在问题。按照本方案所述,使用低浓度的 P1 病毒来制备 P2 病毒通常可缓解该问题;若 P2 病毒滴度仍然较低,可使用 MOI 为 0.0001 的病毒制备 P3 病毒。病毒滴度低于 1 × 10⁸ 病毒颗粒/mL 的样品不应使用,因其几乎总会导致蛋白产量低下。在蛋白表达方面,选择 HEK293S GnTI- 细胞的原因在于其缺乏 N-乙酰氨基葡萄糖转移酶 I 活性,因而无法合成复杂的 N-聚糖,仅能产生高甘露糖型 N-聚糖。EndoH 可在细胞外环 2(EL2)的两个位点切割高甘露糖型 N-连接聚糖,使 N-乙酰氨基葡萄糖残基仍连接在天冬酰胺上。N-连接糖链的消化可降低 EL2 表面的构象熵,这可能对结晶至关重要。在抗体生成过程中,应使用 SERTIC 进行免疫。GFP 具有强免疫原性12,不应作为融合标签用于抗体生产,因其难以通过尺寸排阻色谱(SEC)完全去除。此外,SERT 的柔性 N 端和 C 端未包含在构建体中,以避免产生针对这些区域的抗体。可使用 30 µg 重组蛋白对小鼠进行免疫,并持续免疫直至血清中检测到高浓度抗体,随后按文献所述方法制备杂交瘤细胞13。通常,热稳定化构建体是免疫的最佳选择;若转运蛋白在纯化后行为良好并保持生物学活性,则通常足以诱导产生抗体。8B6 抗体是针对野生型 SERT(WT SERT)产生的。在结晶过程中,仅应合并并浓缩 SEC 洗脱峰中经荧光尺寸排阻色谱(FSEC)判断为单一分散复合物的组分。SERT-8B6 晶体的生长条件范围较窄,针对 SERT 晶体生长相关问题需采取若干排查措施。在储液(reservoir solution)中不应使用 HCl 调节 pH 的 Tris 碱,因为该缓冲体系不支持晶体生长;因此,必须改用 NaOH 调节 pH 的 Tris 缓冲液。SERT 晶体对 PEG 400 的浓度范围要求较窄,若未观察到晶体或仅出现大量微小晶体,建议微调 PEG 400 浓度(略微升高或降低)。此外,在优化筛选中还使用了添加剂 6-氨基己酸以促进成核。蛋白溶液与孔板溶液的液滴比例也是决定晶体生长的关键因素,推荐使用 1.5–2:1 的比例,其中接近 2:1 的比例通常更有利于生长较大的三维晶体。最后,使用低剖面(low profile)24 孔板对晶体生长也至关重要,推测其原因是影响了气相扩散的速率。
已开发出一种替代SPA方法的策略,用于筛选能够稳定大鼠5-羟色胺转运体在可卡因结合构象下的突变体,该方法采用滤膜结合实验5。相比之下,基于SPA的检测方法可在一系列逐步升温步骤后,测定仍与配体结合的SERT所占比例,从而能够利用少量样品快速确定其熔解温度。SPA方法依赖于高亲和力放射性标记配体的可获得性;若尚无已知亲和力达到亚微摩尔级别的配体,则必须采用替代方法。目前常用于测量蛋白质稳定性的其他多种方法,如荧光染料结合法和量热法14,通常通量较低,且要么无法直接测量功能,要么需要大量蛋白质。如果无法使用SPA方法,一种可行的高通量替代方案是基于荧光检测尺寸排阻色谱的热稳定性分析法15(FSEC-TS),该方法先对样品加热,再分离仍保留的转运体组分。FSEC-TS是一种可用于评估色谱行为和寡聚状态的有效方法,是一种强大的互补工具,可与SPA方法联合使用。
对多种常见蛋白质表达系统的比较也发现,哺乳动物细胞更适用于SERT的表达16,这并不令人意外,对于许多来源于哺乳动物的蛋白质而言,情况可能同样如此。我们所采用的表达方法虽针对SERT进行了优化,但很可能易于调整并适用于其他蛋白。应通过改变表达时间、温度、病毒浓度以及组蛋白去乙酰化酶抑制剂(如丁酸钠)的存在与否,仔细确定有利于高水平表达的条件。
我们通常倾向于在重组之前,使用温和的长链去垢剂(如 C12M)并联合 CHS 进行亲和纯化,以保持高亲和力配体的结合能力。利用疏水吸附进行重组是一种温和的技术,我们发现其对多种其他转运蛋白和受体均有效。如果该方法不成功,只要抗原在这些去垢剂中具有足够的稳定性,即可通过透析、稀释或尺寸排阻色谱(SEC)去除具有高临界胶束浓度的去垢剂17。在未能找到合适抗体的情况下,我们几乎总是发现问题是由于抗原功能丧失或发生变性所致;对此类情况,我们通过重新免疫并特别关注蛋白质生化特性而成功获得抗体。最后,应基于高亲和力结合的配体和抗体合理设计结晶实验,并通过利用热稳定突变体,通过调节不同去垢剂的性质来筛选更广泛的结晶条件。此外,应始终将脂质介相中的结晶18或使用双亲颗粒(bicelles)的结晶19作为胶束中结晶的替代方案予以考虑。
这些原理和方法经过适当修改后,可适用于许多其他难以从其他表达宿主中表达和纯化的跨膜蛋白,对于高亲和力药物靶点的结构解析将特别有用。
披露
作者无任何利益冲突需要披露。
致谢
感谢 D. Cawley 制备单克隆抗体。感谢 A. Penmatsa 和 K. Wang 分享他们在多巴胺转运蛋白研究中积累的思路与专业知识。感谢 L. Vaskalis 在图示绘制方面的协助,H. Owen 在稿件准备中的帮助,以及 Gouaux 实验室其他成员提供的有益讨论。J.A.C. 获得加拿大卫生研究院颁发的班廷博士后奖学金资助。E.M.G. 获得美国国家科学基金会研究生研究奖学金支持。我们特别感谢 Bernie 和 Jennifer LaCroute 的慷慨资助,同时也感谢美国国立卫生研究院(NIH,项目编号:5R37MH070039)提供的经费支持。E.G. 是霍华德·休斯医学研究所的研究员。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| DH10Bac | Invitrogen | 10361-012 | |
| 卡那霉素 | Fisher | BP906-5 | |
| 庆大霉素 | Fisher | BP918-1 | |
| 四环素 | Sigma | T-7660 | |
| Bluo-gal | Invitrogen | 15519-028 | 5-溴-3-吲哚基 β-D-半乳吡喃糖苷 |
| 异丙基-β-D-硫代半乳糖吡喃糖苷 | Anatrace | I1003 | IPTG |
| 质粒小提试剂盒 | Qiagen | 27106 | |
| Cellfectin II | Invitrogen | 10362-100 | Sf9 转染试剂 |
| Sf9 | ATCC | CRL-1711 | |
| Sf-900 III 无血清培养基 | Life Technologies | 12658-027 | |
| HEK-293S GnTI- | ATCC | CRL-3022 | |
| Freestyle 293 培养基 | Life Technologies | 12338-018 | 293 表达培养基 |
| 胎牛血清(FBS) | Life Technologies | 0984018DJ | |
| 丁酸钠 | Sigma | 303410 | |
| S西酞普兰 | Sigma | E4786 | Anagrade |
| 正十二烷基-β-D-麦芽糖吡喃糖苷 | Anatrace | D310 | |
| 胆固醇半琥珀酸酯 | Sigma | C6013 | |
| 1-棕榈酰-2-油酰-sn-甘油-3-磷酸胆碱 | Avanti Polar Lipids | 850457P | |
| 1-棕榈酰-2-油酰-sn-甘油-3-磷酸乙醇胺 | Avanti Polar Lipids | 850757P | |
| 1-棕榈酰-2-油酰-sn甘油-3-磷酸甘油 | Avanti Polar Lipids | 840457P | |
| 亮抑蛋白酶肽 | Sigma | L2884 | |
| Pepstatin A | Sigma | P5318 | |
| 抑肽酶 | Sigma | A1153 | |
| PMSF | Sigma | P7626 | |
| 脱硫生物素 | 艾巴生命科学 | 2-1000-05 | |
| Asolectin | Sigma | 11145 | |
| 胆固醇 | Sigma | C-8667 | |
| 脂质A | Sigma | L5399 | |
| 脑极性脂质 | Avanti Polar Lipids | 141101C | |
| Biobeads | 伯乐(Bio-Rad) | 152-3920 | 疏水性吸附树脂 |
| IRDye 680RD 标记的山羊抗小鼠抗体 | 奥德赛 | 926-68070 | 用作蛋白质印迹的二抗 |
| 月桂基麦芽糖新戊二醇 | Anatrace | NG310 | Anagrade |
| 血清素 | Sigma | H9523 | |
| pFastBac 8B6 | 作者提供 | ||
| pEG Bacmam SERT Strep II | SERTIC,可向作者索取 | ||
| pEG Bacmam SERT GFP twin Strep His | SERTTC,可向作者索取 | ||
| pEG Bacmam SERT ts3 GFP twin Strep His | SERTCC,可向作者索取 | ||
| 咪唑 | Sigma | 56749 | |
| 正辛基 β-D-麦芽糖苷 | Anatrace | O310 | Anagrade |
| 凝血酶 | 血液学技术 | HCT-0020 | |
| EndoH | New England Biolabs | P0702 | |
| Trizma-HCl | Sigma | T5941 | Tris 用于配制结晶储液 |
| PEG 400 | Sigma | 91893 | |
| 6-氨基己酸 | Sigma | 7260 | |
| 胰蛋白酶-EDTA | Fisher | MT25052CV | |
| Isoplate-96 TC | PerkinElmer | 6005070 | |
| PolyJet | SignaGen | SL100688 | 用于哺乳动物细胞的聚合物转染试剂 |
| 铜组氨酸标签YSI SPA珠 | PerkinElmer | RPNQ0096 | His标签亲和SPA珠 |
| 西酞普兰,[N-甲基-3H] | PerkinElmer | NET1039250UC | |
| ThermoMixer C | Eppendorf | 5382000023 | 用于热稳定性检测的加热块 |
| ThermoTop | Eppendorf | 5308000003 | |
| SmartBlock PCR 96,用于PCR板的热循环模块 | Eppendorf | 5306000006 | |
| 0.2 µm 注射器滤器 | 奥林巴斯塑料公司 | 25-243 | |
| 1 L 滤器系统 | 康宁 | 430517 | |
| 2 L 平底组织培养瓶 | Genemate | F-5909-2000 | |
| 2 L 带挡板的组织培养瓶 | Genemate | F-5909-2000B | |
| CO2 培养箱 | 赛默飞世尔科技 | 3950 | |
| Forma 轨道摇床 | 赛默飞世尔科技 | 416 | |
| Strep-Tactin 树脂 | 艾巴生命科学 | 2-1208-025 | Strep亲和树脂 |
| 挤出机 | 北方脂质 | ||
| Li-Cor 成像系统 | 奥德赛 | western blot 成像系统 | |
| XK16 柱 | GE Healthcare | 28-9889-37 | 用于 Strep-Tactin 和 Talon 纯化的柱子 |
| 100 kDa 分子量截留值蛋白浓缩管 | Millipore | UFC910096 | |
| 30 kDa 分子量截留值蛋白浓缩管 | Millipore | UFC903024 | |
| Äkta FPLC | GE Healthcare | UPC-900 | |
| 高效液相色谱 | 岛津 | 51476 | |
| Superose 6 (10/300) 柱 | GE Healthcare | 17-5172-01 | 用于FSEC |
| 切向流装置 | Pall Filtron | ||
| 0.2 µm滤器切向流过滤装置 | Pall Filtron | PSM20C11 | |
| 30 kDa 分子量截留值切向流浓缩器 | Pall Filtron | OS030T12 | |
| Talon 树脂 | Clonetech | 635504 | 用于Fab纯化的His标签亲和树脂 |
| 1 mL HiTrap SP 柱 | GE Healthcare | 17115101 | 用于Fab纯化的阳离子交换剂 |
| Superdex 200 10/300 GL 柱 | GE Healthcare | 17-5175-01 | 用于SERT-8B6的SEC分离 |
| 24孔VDXm板 | Hampton Research | HR3-306 | |
| 18 mm 盖玻片 | Hampton Research | HR3-239 | |
| Virocyt 病毒计数器 | Virocyt | 2100 | |
| MicroBeta Trilux | PerkinElmer | 1450 | 96孔闪烁计数器 |
| HiTrap SP 柱 | GE Healthcare | 17115101 | |
| 舍曲林 | Sigma | S6319 |
参考文献
- Kristensen, A. S., et al. SLC6 neurotransmitter transporters: structure, function, and regulation. Pharmacol Rev. 63 (3), 585-640 (2011).
- Broer, S., Gether, U. The solute carrier 6 family of transporters. Br J Pharmacol. 167 (2), 256-278 (2012).
- Andersen, J., Kristensen, A. S., Bang-Andersen, B., Stromgaard, K. Recent advances in the understanding of the interaction of antidepressant drugs with serotonin and norepinephrine transporters. Chem Commun (Camb). 25 (25), 3677-3692 (2009).
- Hahn, M. K., Blakely, R. D. The functional impact of SLC6 transporter genetic variation. Annu Rev Pharmacol Toxicol. 47, 401-441 (2007).
- Abdul-Hussein, S., Andrell, J., Tate, C. G. Thermostabilisation of the serotonin transporter in a cocaine-bound conformation. J Mol Biol. 425 (12), 2198-2207 (2013).
- Green, E. M., Coleman, J. A., Gouaux, E. Thermostabilization of the human serotonin transporter in an antidepressant-Bound Conformation. Plos One. 10 (12), e0145688(2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- De Becker, G., et al. The adjuvant monophosphoryl lipid A increases the function of antigen-presenting cells. Int Immunol. 12 (6), 807-815 (2000).
- Coleman, J. A., Green, E. M., Gouaux, E. X-ray structures and mechanism of the human serotonin transporter. Nature. , (2016).
- White, S. H. The progress of membrane protein structure determination. Protein Sci. 13 (7), 1948-1949 (2004).
- Gambotto, A., et al. Immunogenicity of enhanced green fluorescent protein (EGFP) in BALB/c mice: identification of an H2-Kd-restricted CTL epitope. Gene Ther. 7 (23), 2036-2040 (2000).
- Galfre, G., Howe, S. C., Milstein, C., Butcher, G. W., Howard, J. C. Antibodies to major histocompatibility antigens produced by hybrid cell lines. Nature. 266 (5602), 550-552 (1977).
- Deller, M. C., Kong, L., Rupp, B. Protein stability: a crystallographer's perspective. Acta Crystallogr F Struct Biol Commun. 72, 72-95 (2016).
- Hattori, M., Hibbs, R. E., Gouaux, E. A fluorescence-detection size-exclusion chromatography-based thermostability assay for membrane protein precrystallization screening. Structure. 20 (8), 1293-1299 (2012).
- Tate, C. G., et al. Comparison of seven different heterologous protein expression systems for the production of the serotonin transporter. Biochim Biophys Acta. 1610 (1), 141-153 (2003).
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Methods Enzymol. 372, 65-86 (2003).
- Caffrey, M., Cherezov, V. Crystallizing membrane proteins using lipidic mesophases. Nat Protoc. 4 (5), 706-731 (2009).
- Faham, S., Bowie, J. U. Bicelle crystallization: a new method for crystallizing membrane proteins yields a monomeric bacteriorhodopsin structure. J Mol Biol. 316 (1), 1-6 (2002).
重印与许可
