我们介绍一种利用标准免疫染色方法结合光学透明化和共聚焦显微镜技术,对发育至E15.5阶段的完整胚胎小鼠心脏中冠状血管进行分析的实验方案。该技术可实现对整个心脏内血管系统的可视化观察,无需耗时的连续切片分析。
本文内容
摘要
摘要
由于胚胎冠状血管丛位于发育中心脏壁的深层,标准显微技术在对将形成毛细血管和动脉网络的胚胎冠状血管丛进行整体-mount可视化时存在困难,其成像光线会被较厚的心脏组织散射。已有研究表明,使用有机溶剂(如BABB,即1份苯甲醇与2份苯甲酸苄酯的混合液)对组织进行光学透明化处理,可显著提高成像的光学穿透深度。因此,我们将完整的心脏经PECAM1免疫染色后进行BABB透明化处理,并结合激光扫描共聚焦显微镜成像,从而获得贯穿整个心脏的高分辨率血管图像。胚胎心脏的BABB透明化过程迅速,且可数周内有效保存荧光信号;此外,样品可多次成像而无信号损失。这一简便的方法也可适用于对完整胚胎中其他类型血管的成像。
引言
建立功能性冠状动脉网络对心脏功能和胚胎发育至关重要,而分析基因工程小鼠突变体可为揭示这一发育过程背后的分子信号通路提供重要见解。能够以整体形式可视化胚胎冠状血管丛,而非以一系列组织学切片的形式呈现,对于分析基因突变体中的血管模式至关重要,并可避免因机械切片导致的信息丢失。注定发育为动脉和毛细血管的血管位于心室壁和主动脉壁的深层1-3。然而,尽管细胞的荧光标记结合激光扫描共聚焦显微镜可对整体标记的表层静脉/淋巴管提供高分辨率图像4,5,其成像深度仍受限于光学穿透能力。因此,若无某种形式的组织透明化处理,无法实现对整个心脏深度范围内毛细血管和动脉的高分辨率成像。
光学穿透性差是由细胞和细胞外成分的高折射率所致例如, 厚组织中的胶原蛋白和弹性纤维等成分会散射成像光线,导致图像模糊和对比度降低。透明化试剂通常具有与这类组织相近的高折射率,从而使光线能够无阻碍地穿过样品并深入组织内部。在透明化处理之前,组织通常需要进行脱水,因为水的折射率相对较低。近年来已开发出多种新的透明化方法,但根据所采用的技术不同,透明化过程可能需要数天至数周,并可能需要使用成本较高的试剂。6-9BABB(苯甲醇与苯甲酸苄酯的1:2混合物)是一种价格低廉且常用的透明剂,具有使样本快速透明的优点。基于BABB的透明化与成像技术此前已有报道,适用于神经组织样本及多种器官10-13本文介绍了一种稳定且简便的方法,用于对免疫染色样本进行BABB透明化处理,随后进行共聚焦显微镜观察,特别针对小鼠胚胎第11.5至15.5天(E11.5–E15.5)心脏中血管系统的观察。然而,如已有研究所示,只要针对目标标记物的高质量抗体可用,该技术同样适用于完整胚胎及其他细胞类型的分析。
方案
所有动物实验均根据英国政府内政部颁发的许可证,依照机构指南进行。
1. 胚胎心脏的解剖与固定
- 在预定日期采用符合伦理规范的安乐死方法处死妊娠小鼠, 例如, 一氧化碳2 麻醉后行颈椎脱位,取出胚胎囊14,将其置于盛有磷酸盐缓冲液(PBS)的10 cm培养皿中。
- 使用解剖显微镜和镊子,小心打开子宫囊,取出每个胚胎,切断脐带并移除卵黄囊。
- 为进行基因分型,取下胚胎尾部并置于1.5 ml微量离心管中,以备后续裂解/DNA提取。
- 为取出心脏,将每个胚胎背侧朝上固定于盛有PBS的35 mm硅胶弹性体包被培养皿中,使用不锈钢显微钉针固定。用精细镊子小心打开胸腔,并在心脏前方切断大血管。然后用镊子伸至心脏后方,夹住心脏后方的血管,轻柔牵拉以取出心脏;肺组织可能同时被一并取出。
- 将心脏转移至含有 PBS 的新鲜 35 mm 培养皿中,必要时使用精细镊子去除肺组织。随后将心脏转移至盛有冷 PBS 的 48 孔板的一个孔中。
- 在48孔板中收集所有心脏组织后,使用细尖塑料巴斯德吸管吸除PBS,加入0.5 ml 4%多聚甲醛(PFA)替代。
警告: PFA 已知具有致敏性、致癌性和毒性。- E11.5 - 12.5 胚胎心脏在室温下用 4% PFA 固定 15 分钟,E13.5 胚胎心脏固定 20 分钟,E14.5 - 15.5 胚胎心脏固定 30 分钟。
- 用细尖的塑料巴斯德移液管吸除PFA,用冷的PBS冲洗心脏2次。
警告: PFA 具有危害性,必须根据机构规定进行处置。 - 如果不立即用于整体免疫染色(见第2节),则依次用下列溶液各洗涤5分钟进行心脏组织脱水:25%甲醇/75% PBS、50%甲醇/50% PBS、75%甲醇/25% PBS。
警告: 甲醇有毒,需佩戴手套操作。将心脏组织置于含100%甲醇的-20 °C环境中保存。
2. 使用抗PECAM1抗体对胚胎心脏进行全组织免疫染色
注意:抗 PECAM1 抗体适用于冠状血管染色(参见步骤 2.4),但任何能够产生强信号的泛内皮细胞标记物均适用。
- 若使用保存在100%甲醇中的心脏组织,将其转移至1.5 ml微量离心管中,并依次用以下溶液进行5分钟的洗涤以重新水化:75%甲醇/25% PBS、50%甲醇/50% PBS和25%甲醇/75% PBS。
- 在0.5–1.0 ml PBST(PBS/0.1% Tween-20)中,于室温下旋转孵育3次,每次10分钟,以对心脏组织进行通透处理。
- 在1.0 ml含10%山羊血清的PBST中,于室温下旋转孵育1小时,对心脏组织进行封闭。
- 用细尖塑料巴斯德吸管或1,000 μl移液器吸头移除封闭液,并替换为400–500 μl新鲜封闭液,其中加入1:50稀释的抗PECAM1一抗。于4 °C下旋转孵育过夜。
- 次日,用细尖塑料巴斯德吸管或1,000 μl移液器吸头吸除封闭液和一抗,加入1.0 ml PBST,于室温下旋转孵育,每次1小时,至少洗涤6次。
- 最后一次洗涤后,更换为含有1:500稀释的荧光标记二抗的新鲜封闭液,于4 °C下避光旋转孵育过夜。用铝箔包裹管子以避光。
- 次日,用细尖塑料巴斯德吸管吸除封闭液和二抗,加入1.0 ml PBST,于室温下旋转孵育,每次1小时,至少洗涤6次。
- 将心脏组织储存于4 °C(避光),待后续使用。
3. 透明溶液和显微镜培养皿的制备
注意:使用 BABB 成像心脏时,必须确保 BABB 溶液不与显微镜的任何组件接触。为此,以下方案包含制备适用于荧光显微镜的硅胶弹性体密封培养皿的说明,该培养皿可提前充分准备。硅胶弹性体可形成屏障,以容纳 BABB,防止其从玻璃底与聚碳酸酯侧壁之间的缝隙渗漏。
- 准备硅酮弹性体包被的培养皿时,取光学玻璃底培养皿,并在每个培养皿中央放置一个4 ml螺口小瓶的瓶盖(直径约1.5 cm)。
注意:当弹性体涂布于培养皿上时,这将形成用于样品的凹槽。 - 使用点胶筒,按照制造商说明在涂布过程中混合两种组分,将硅酮弹性体填充至培养皿中,深度约为0.5 cm。静置固化至少24小时,确保小瓶盖始终保持在每个培养皿的中央位置。
注意:请佩戴护目镜,以避免硅酮弹性体意外接触眼睛。 - 弹性体固化后,从每个培养皿中移除小瓶盖。这将在中央留下一个凹槽,待成像的样品可直接放置于此处并与培养皿的玻璃底部接触。
注意:固化后的弹性体应手感坚实且干燥。 - 配制BABB溶液(1份苯甲醇与2份苯甲酸苄酯)。该溶液应储存于玻璃瓶中,并避光保存。
警告:BABB为有毒且具腐蚀性的溶液。操作时应在通风橱内进行,并穿戴适当的防护服。 - 将BABB与甲醇混合,于玻璃小瓶中配制成50:50的溶液(1–5 ml)。避光保存,例如用铝箔包裹小瓶。
4. 心脏的脱水、透明及共聚焦显微镜封片
注意:较大的样本可以在 4 ml 玻璃小瓶中进行透明化处理,但对于较小的样本(例如,E13.5 之前的胚胎心脏),最好直接在显微镜培养皿中进行透明化处理。这样有助于防止样本丢失,因为心脏在透明化后会变得非常透明。对于这些小样本,透明化过程非常迅速,可在数分钟内完成。
注意:在后续所有步骤中,需用铝箔包裹或覆盖管子和培养皿,以保护样本免受光照。
- 透明处理前,将免疫染色后的心脏通过甲醇系列进行脱水:在1.5 ml离心管中,室温下依次更换以下溶液并旋转孵育——25%甲醇/75% PBS、50%甲醇/50% PBS 和 75%甲醇/25% PBS(每种溶液5分钟)。最后,在100%甲醇中旋转孵育3次,每次5分钟。
- 对于E13.5及以下阶段的心脏,将其置于显微镜培养皿中央;在显微镜下确认心脏背侧朝上。用细尖塑料巴斯德吸管吸除心脏周围的甲醇。
- 使用一支洁净的细尖塑料巴斯德吸管,加入足量的BABB:甲醇(50:50)溶液以完全浸没心脏(约300–400 μl)。由于心脏在溶液中有时会发生翻转,请在心脏仍不透明时再次检查其方向。静置5分钟。
- 将50:50溶液移至通风橱内的玻璃废液瓶中,并用细尖塑料巴斯德吸管更换为纯BABB溶液。
注意:无需大量溶液,加入足够使心脏位于液滴中的体积即可。心脏应在5分钟内变得透明。 - 对于较大的心脏,应在玻璃小瓶中进行透明处理。
注意:E15.5阶段的心脏通常在30分钟至1小时内透明,必要时可过夜放置。 - 样本完全透明后,移除溶液并替换为少量BABB。可选择加盖盖玻片以固定样本位置,但并非必需。随后即可用于成像。
5. 通过共聚焦显微镜成像透明化心脏
注意:图像使用倒置共聚焦显微镜配合10X或20X干镜采集。尽管可将培养皿用于 upright 共聚焦显微镜,但必须格外小心,避免物镜与BABB溶液接触。
- 对心脏进行z轴扫描15。根据心脏的大小,可能需要进行拼图扫描以成像整个心脏16。
注意:BABB是一种腐蚀性溶液,操作时应佩戴洁净手套,并确保显微镜培养皿外表面无BABB残留。请小心操作培养皿,并保持皿盖闭合,以尽量减少意外溢出至显微镜上的风险。 - 若物镜的工作距离允许,可使用更高倍率以获得更高分辨率的兴趣区域图像。
6. 使用 Fiji 软件进行数据分析
- 在 Fiji17 中打开图像的 z 轴序列。
- 要对整个图像序列或其部分进行 z 轴投影,请点击 Image,选择 Stack,然后选择 Z project。输入起始和终止切片编号,并选择 z 投影类型,例如 平均强度、最大强度。
- 要在图像切片序列中突出显示单个血管,请使用 Blow 工具(从 Plugins 菜单中选择 Segmentation,然后选择 Blow/Lasso tool),并在每张切片中点击需要填充的区域。使用 Fill 命令(点击 Edit,然后选择 Fill),以选定的前景色填充所选区域(点击 Edit,然后选择 Options,接着选择 Colors 和 Foreground)。
- 按之前方法对图像序列进行 z 轴投影。
7. 使用 Imaris 生成的冠状动脉三维表面体积渲染
- 点击屏幕顶部的 Surpass 视图图标,然后将图像文件拖放到数据窗口中。点击屏幕顶部的 3D 视图图标。
- 选择表面图标(蓝色图标),然后点击“创建”选项卡。点击“跳过自动创建,手动编辑”对话框,再点击绘制图标(细铅笔图标)。
- 选择“轮廓”选项卡,然后选择“模式”选项卡。在“模式”中,点击魔棒或等值线图标。在屏幕右侧的指针选择中,点击“选择”旁边的区域以选择指针模式,然后点击屏幕左下角的“绘制”框。
- 使用等值线或魔棒工具,在连续的切片中选择动脉的轮廓。通过使用“切片位置”滑块在各切片间进行导航。
- 当所有轮廓选择完成后,点击“创建表面”框。周围体积可通过“混合模式”设置为不可见或调整透明度:点击“体积”以高亮显示,然后选择“设置”选项卡,再选择“模式”选项卡。选择“混合”模式,并使用滑块调节透明度。
- 使用“快照”功能捕获图像。
结果
在心脏发育过程中,来自不同来源的内皮细胞(ECs)侵入心室心肌,形成血管丛。在心室心肌内发育的血管将进而形成毛细血管和动脉网络,向心肌组织输送含氧血液18与此同时(约E11.5时期),冠状动脉主干开始从围绕主动脉管腔的独立毛细血管网络(称为动脉干周围丛)独立发育。14,19,20在主动脉瓣窦水平,动脉干周围神经丛的内皮细胞最初与主动脉管腔形成多个连接,但最终仅在主动脉每侧保留一条血管,进而发育形成左、右冠状动脉的根部21从约E13.5开始,动脉干周围心肌和心室心肌的血管连接形成相互连通的网络,使血液能够从主动脉流入冠状血管14,22利用抗PECAM-1抗体对内皮细胞进行染色,结合BABB试剂对完整心脏进行透明化处理,可实现对发育早期冠状血管网络的分析。在后续发育阶段,亦可观察成熟冠状动脉的形态分布。该方法还可用于对整体胚胎(至少至E11.5阶段)的血管系统进行染色,并可结合不同抗体使用。 例如, 抗α-平滑肌肌动蛋白(Sm22α)和内皮黏蛋白
图1展示了使用Fiji软件生成的E11.5心脏的最大强度z投影图像。通过使用“拼接”(Tile)功能采集心脏的多个局部图像并将其拼接成一幅完整图像,有助于全面观察整个样本的染色情况。在此阶段,PECAM1抗体主要标记心脏和流出道血管的内膜层,但在左心室壁中也可观察到少量内皮细胞(见图1A中的框选区域,其放大图像见1A')。此外,流出道(OT)壁中的周围动脉干血管丛也清晰可见(见图1B中的框选区域)。在后一种情况下,减少用于生成投影的z层切片数量可提高图像清晰度,使血管丛与主动脉管腔之间的连接更加明显(见图1B')。图2显示了E12.5心脏中靠近主动脉区域血管结构的增加。图3展示了E12.5心脏中的周围动脉干血管丛。图3A中的12层z投影显示了整个血管丛,但由于部分血管位于主动脉管腔的腹侧(该区域也被抗PECAM1抗体强烈染色),将z层堆栈拆分为若干子堆栈(见图3B-D)可提供更丰富的视觉信息。例如,图3B所示的子堆栈投影显示了一条连接至主动脉管腔腹侧面的周围动脉干血管,而该结构在完整投影中不可见。图4展示了一部分E15.5心脏;在此阶段,冠状动脉清晰可见(见图4A,30层z投影)。在图4B和C所示的5层z投影中,也可通过PECAM1染色观察到主动脉瓣和肺动脉瓣,且在这些较小的子堆栈投影中,冠状毛细血管网络的分支与连接结构更为清晰。已采用手动分割技术,利用Fiji(图4D)或Imaris(图4D和E)突出显示冠状动脉。使用Imaris生成的冠状动脉/主动脉管腔的三维表面体积渲染图像,可选择性地显示或隐藏周围血管结构(见图4E和F)。
还可通过PECAM1染色结合BABB透明化技术来观察完整胚胎的血管系统。图4A和A'分别显示了从胚胎右侧(z切片11–65)和左侧(z切片66–110)的子堆栈生成的z投影。比较这两幅图像可见,荧光信号强度在组织更深部位的穿透过程中并未显著减弱。图4B中,对E11.5胚胎同时使用PECAM1(红色信号)和Endomucin(绿色信号)抗体,分别标记节间动脉(ISAs)和节间静脉。图4C展示了E11.5胚胎节间动脉中SM22α(红色信号)与PECAM1(绿色信号)的染色结果。在图6中,经PECAM1染色的E11.5胚胎在完成BABB透明化后立即成像(图4A),或在约两个月后再次成像(图4B)。结果表明,样本在BABB中长期储存后,荧光信号仍足够强,可成功进行成像。
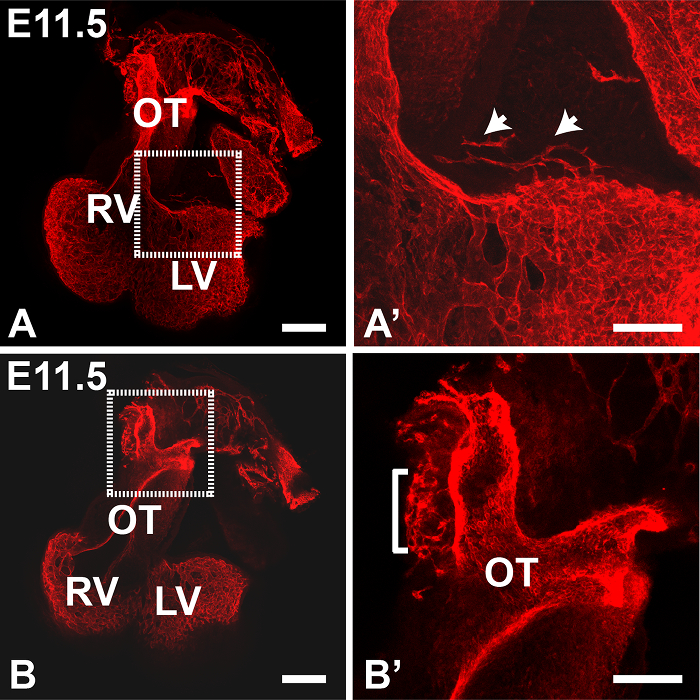
图1. 使用抗PECAM1抗体(通过Alexa 594标记的抗大鼠IgG检测)对E11.5心脏进行免疫染色。 (A、B)使用倒置共聚焦显微镜的10X物镜采集了2×2拼接图像。PECAM1抗体对心内膜和血管内皮细胞(ECs)均有染色。投影图像(最大强度投影)由Fiji软件从22层(A)或5层(B)z轴切片生成,每层厚度为4 μm。A' 和 B' 分别为 A 和 B 中方框区域的放大图。A' 中的箭头指示心室壁中的血管;B' 中的方括号指示流出道周围血管丛。OT,流出道;LV,左心室;RV,右心室。所有图像均为正面视图。A和B中的比例尺 = 200 μm;A'和B'中的比例尺 = 100 μm。图1B'改编自Ivins et al., 2015 19。请点击此处查看该图的放大版本。
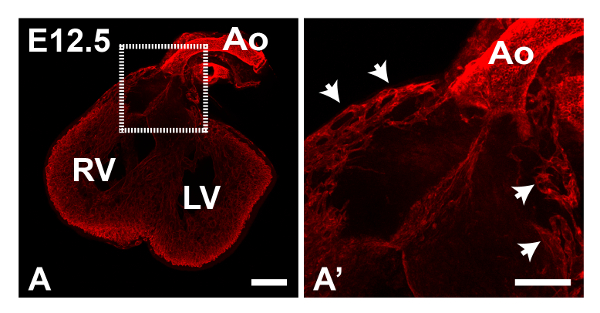
图 2. 使用抗 PECAM1 抗体对 E12.5 胚胎心脏进行免疫染色。 图A显示了2×2拼接扫描的z轴投影(最大强度投影)。A图中标注框选区域在A'图中放大显示;箭头指示靠近主动脉(Ao)的多条血管。LV,左心室;RV,右心室。所有图像均为正面视图。A图中的比例尺 = 200 μm;A'图中的比例尺 = 100 μm。 请点击此处查看该图的高清版本。
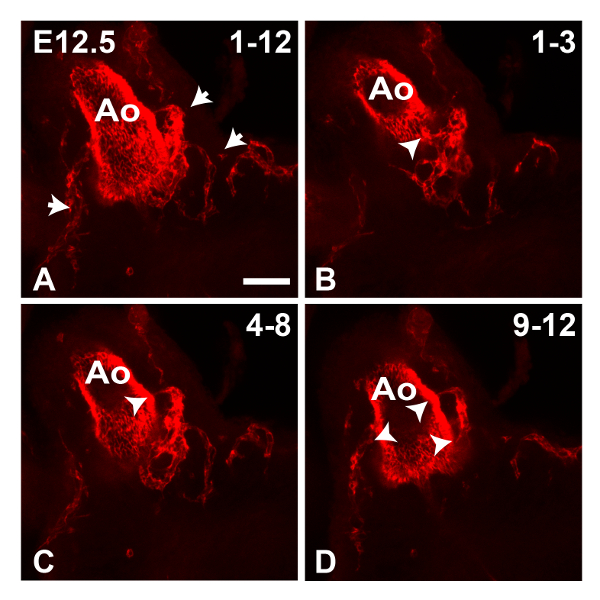
图3. E12.5 胚胎心脏中动脉干周围血管丛的成像。 使用10倍物镜采集E12.5主动脉(Ao)经抗PECAM1抗体染色后的共聚焦图像。A 中的z轴投影(最大强度投影)由12个z轴切片(厚度为4 μm)生成;箭头指示动脉干周围血管丛的血管。B-D 将12个z轴切片按所示分为三个子堆栈,并分别生成投影;箭头指示动脉干周围血管丛与主动脉管腔之间的连接。位于主动脉管腔腹侧的动脉干周围血管在B和C中可见。所有图像均为正面视图。比例尺= 50 μm。 请点击此处查看该图的放大版本。
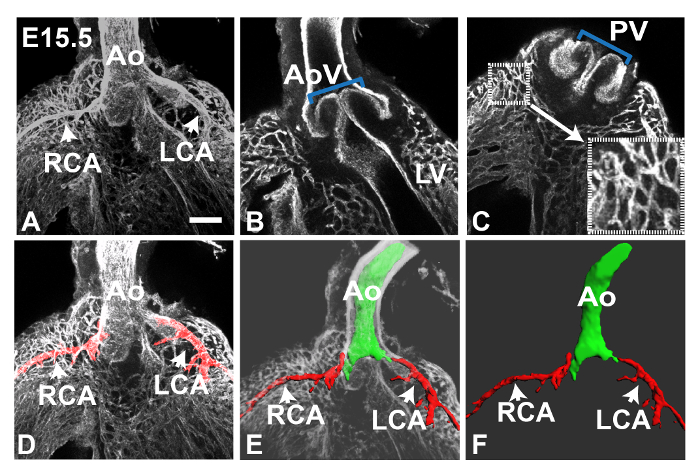
图4. E15.5心脏中的冠状动脉与毛细血管网 使用10倍物镜采集经抗PECAM1抗体染色的E15.5心脏的共聚焦图像。图示 A 显示由30个z层切片生成的最大强度z投影(4 μm 厚度);箭头指示左冠状动脉和右冠状动脉(LCA 和 RCA),可见其连接至主动脉(Ao)。通过不同 5 层 z 切片子堆栈,可观察到主动脉瓣和肺动脉瓣(AoV 和 PV) B 和 C 分别(蓝色括号)。在这些较小的子堆栈投影中,心室毛细血管丛也更为清晰;靠近肺动脉瓣的血管(小方框)在面板右下角被放大显示 C (大盒子)。使用Fiji标记单个血管, 例如,用于面板 D 在进行投影之前,使用Blow/lasso工具在每个z切片中手动将冠状动脉填充为红色。使用Imaris软件创建动脉(红色)和主动脉管腔(绿色)的三维图像 E 和 F;同样通过手动操作,使用魔棒工具在每个z切片中创建对象轮廓。周围体积的不透明度可在混合模式中进行调整,如同 E或者,可以提取三维图像,如图所示 F. LV,左心室. 所有图像均为正面视图。A 中的比例尺 = 100 μm. 请点击此处查看此图的放大版本。
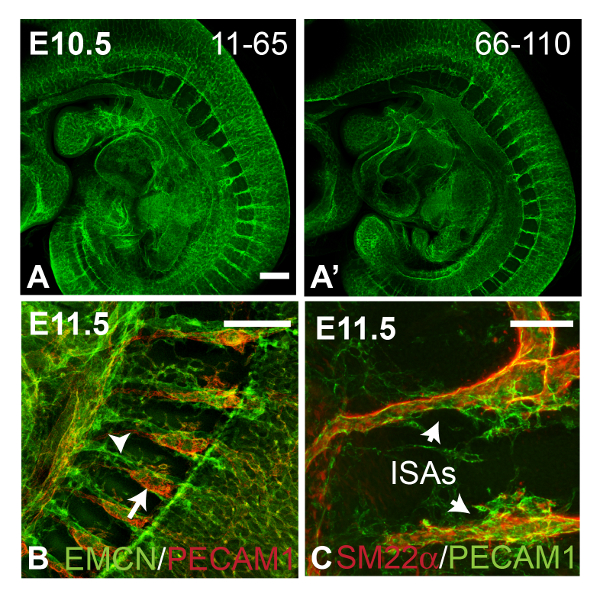
图5. 胚胎血管系统的成像。 图A和A'显示了E10.5野生型胚胎的共聚焦图像,该胚胎使用抗PECAM1抗体染色,并通过10X物镜(拼接扫描)采集。图像来自共120个z轴切片(厚度为4 μm)中的第11–65层(A)和第66–110层(A')的平均强度z投影,显示胚胎厚度方向上的荧光强度仅有轻微衰减。图B显示E11.5胚胎的体节间血管,使用抗PECAM1抗体(来自594偶联二抗的红色信号)和抗Endomucin抗体(EMCN,来自488偶联二抗的绿色信号)进行染色,分别标记体节间动脉(箭头)和静脉(空心箭头)(来自拼接扫描的平均强度z投影)。图C显示E11.5野生型胚胎的体节间动脉(ISAs),使用抗PECAM1抗体(来自488偶联二抗的绿色信号)和抗SM22α抗体(来自594偶联二抗的红色信号)染色。共聚焦图像使用20X干式物镜采集,并生成最大强度z投影。所有图像均为矢状面视图。A和B中的比例尺 = 250 μm,C中的比例尺 = 100 μm。 请点击此处查看该图的放大版本。
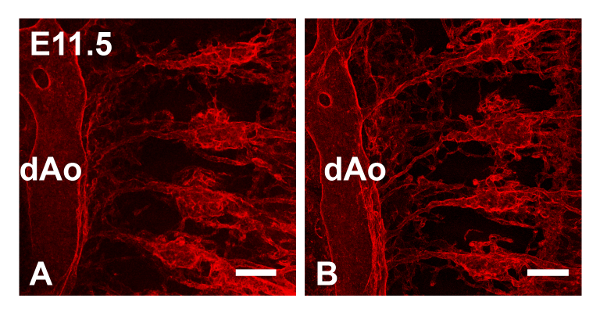
图 6. 经 BABB 透明化处理的免疫染色样品至少可保留荧光信号两个月。 E11.5 胚胎使用 PECAM1 抗体染色后经 BABB 透明化处理;同一批次的胚胎分别在处理后立即成像或间隔两个月后再行成像。图中 A 显示的是立即成像的胚胎体节间动脉,B 显示的是两个月后成像的胚胎。共聚焦图像采用 10X 干镜物镜采集,并生成最大强度 z 投影图。dAO,背主动脉。图像显示为矢状面视图。A 和 B 中的比例尺 = 100 μm。 请点击此处查看该图的放大版本。
讨论
通过使用抗PECAM1抗体对完整胚胎心脏进行全组织免疫染色,随后进行光学透明化处理和共聚焦显微镜成像,实现了对冠状血管的可视化。本文所述的利用BABB试剂对胚胎小鼠心脏进行透明化处理的方法简便快捷,可提高光学穿透深度,从而获得主动脉及心室壁内局部血管的高分辨率图像。尽管基于甘油的封片试剂(如Vectashield,折射率为1.45)也曾用于冠状血管系统的成像22,但BABB具有更高的折射率(1.56),能进一步减少光散射,实现更深的组织穿透。组织透明化技术避免了研究人员必须依赖更为复杂且昂贵的显微技术(如多光子显微镜或光片显微镜),而这些技术可能不易获得。与其他透明化方法相比6-9,该方法处理速度极快,对于小型样本,甚至可直接在显微镜培养皿中使用少量试剂完成。为获得高质量图像,必须实现血管系统的强效稳定染色;选择抗PECAM1抗体是因为其可标记所有类型的冠状内皮细胞(ECs),且多种商业化的抗体均能提供足够强度的染色信号。此外,荧光染色在BABB中表现出极高的稳定性;样本在BABB中室温避光保存数月后仍能保留荧光信号。然而,PECAM1抗体不仅标记血管系统,还能有效标记冠状静脉内膜,这一特性在成像主动脉周围丛(peritruncal plexus)时偶尔会造成干扰。由于主动脉腔内的染色强度高于主动脉周围内皮细胞,部分区域图像存在过饱和风险,因此需要仔细调整成像参数。理想情况下,应使用仅特异性标记血管内皮细胞的抗体;但在实际操作中,寻找能够满足全组织染色需求的合适抗体仍具挑战性。近期研究表明,脂肪酸结合蛋白4(FABP4)可作为冠状血管内皮细胞的标志物23,因此可能成为PECAM1的替代选择。
为了保持主动脉和心腔的三维形态,样本未采用平铺装片,而是置于玻璃底培养皿中进行成像。由于样本成像深度较大,而高倍物镜的工作距离较短,因此无法使用高倍物镜。然而,通过增加像素驻留时间并采用至少1,024 × 1,024的像素阵列尺寸进行图像采集,仍可使用10X物镜获得高分辨率图像。该分辨率足以用于冠状血管结构与分布的分析,但若需对细胞结构进行更精细的分析,则可能需要将样本进行平铺装片。为装片而分离心脏各部分, 例如, 心室壁或主动脉的采样也可能是必要的。或者,可通过图像的过采样结合去卷积处理来提高分辨率和灵敏度;然而,这种方法需要显著更长的扫描时间,并产生极为庞大的图像文件,需大量计算资源进行处理。
使用该方法可成功成像至E15.5阶段的心脏,同样采用此方案也可分析整个胚胎(至少至E11.5阶段)的血管系统。其他细胞类型,例如平滑肌细胞,本实验室也已利用该技术实现成像。对于较厚的组织,例如超过E15.5阶段的心脏,抗体渗透可能成为限制因素;可能需要延长孵育时间及/或增加去垢剂浓度。此外,在采集较大的z轴层扫图像时,随着激光穿透组织最深层,信号强度可能减弱;但可通过调整共聚焦显微镜的设置,随z轴距离增加而提高激光功率。
该方法可实现对冠状血管形成的最早阶段以及发育后期冠状动脉的构型进行共聚焦显微镜分析。在短时间内即可获得有关血管分布、分支及结构的详细信息,使其成为研究在血管生成通路中具有特定缺陷的遗传性小鼠突变体的有力工具。
披露
作者无任何利益冲突需要披露。
致谢
该项工作由英国心脏基金会资助,并得到大奥蒙德街儿童医院NHS基金会信托和伦敦大学学院国立卫生研究院生物医学研究中心的大力支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| PBS | Life Technologies | 14190-094 | |
| 镊子 | FST | 11251-30 | |
| 10 cm 培养皿 | Falcon | 351029 | |
| 35 mm 培养皿 | Sigma | P5112 | |
| 直径 0.2 mm 的不锈钢细针 | FST | 26002-20 | |
| 细尖巴斯德吸管 | Alpha Laboratories | LW4061 | |
| 1,000 µl 移液器吸头 | Sorenson | 34000 | |
| 48 孔板 | Falcon | 353078 | |
| Kwik-Gard | World Precision Instrument | KWIKGARD | 以筒装形式包装的硅酮弹性体 Sylgard184,用于混合和分注 |
| Kwik-Gard 补充装 | World Precision Instrument | KWIKGLUE | 补充用筒装和分注吸头 |
| 多聚甲醛 | Sigma | P6148 | 用 PBS 配制,于 -20 °C 保存 |
| 100% 甲醇 | VWR | 20847307 | |
| Tween®20 | Sigma | P1379 | |
| 山羊血清 | Sigma | G9023 | |
| 抗 PECAM1 抗体,大鼠抗小鼠 | BD Pharmingen | 553370 | 一抗,1:50 稀释 |
| 抗 CD31 多克隆抗体,兔多克隆 | Abcam | ab28364 | 一抗,1:50 稀释 |
| 抗 CD31/PECAM1 克隆 2H8,叙利亚仓鼠单克隆抗体 | Thermo Fisher Scientific | MA3105 | 一抗,1:400 稀释 |
| 内黏蛋白抗体 (V.7C7),大鼠单克隆 | Santa Cruz Biotechnology | sc-65495 | 一抗,1:50 稀释 |
| 抗 SM22 α 抗体,兔多克隆 | Abcam | ab14106 | 一抗,1:250 稀释 |
| 山羊抗大鼠 IgG (H+L) Alexa Fluor 594 | Thermo Fisher Scientific | A11007 | 二抗,1:500 稀释 |
| 山羊抗兔 IgG (H+L) Alexa Fluor 594 | Thermo Fisher Scientific | 二抗,1:500 稀释 | |
| 山羊抗叙利亚仓鼠 IgG (H+L) Alexa Fluor 488 | Abcam | ab173003 | |
| 山羊抗大鼠 IgG (H+L) Alexa Fluor 488 | Thermo Fisher Scientific | A21208 | 二抗,1:500 稀释 |
| 酚类螺口盖 | Wheaton | 240408 | |
| 苯甲醇 | Sigma | 402834 | |
| 苯甲酸苄酯 | Sigma | B6630 | |
| Imaris | Bitplane Imaging | 图像分析软件 | |
| ImageJ 软件 | NIH | 免费软件 |
参考文献
- Red-Horse, K., Ueno, H., Weissman, I. L., Krasnow, M. A. Coronary arteries form by developmental reprogramming of venous cells. Nature. 464 (7288), 549-553 (2010).
- Tian, X., et al. Subepicardial endothelial cells invade the embryonic ventricle wall to form coronary arteries. Cell Res. 23 (9), 1075-1090 (2013).
- Wu, B., et al. Endocardial cells form the coronary arteries by angiogenesis through myocardial-endocardial VEGF signaling. Cell. 151 (5), 1083-1096 (2012).
- Klotz, L., et al. Cardiac lymphatics are heterogeneous in origin and respond to injury. Nature. 522 (7554), 62-67 (2015).
- Nam, J., et al. Coronary veins determine the pattern of sympathetic innervation in the developing heart. Development. 140 (7), 1475-1485 (2013).
- Zhu, D., Larin, K. V., Luo, Q., Tuchin, V. V. Recent progress in tissue optical clearing. Laser Photon. Rev. 7 (5), 732-757 (2013).
- Chung, K., Deisseroth, K. CLARITY for mapping the nervous system. Nat. Methods. 10 (6), 508-513 (2013).
- Hama, H., et al. Scale: a chemical approach for fluorescence imaging and reconstruction of transparent mouse brain. Nat. Neurosci. 14 (11), 1481-1488 (2011).
- Ke, M. T., Fujimoto, S., Imai, T. SeeDB: a simple and morphology-preserving optical clearing agent for neuronal circuit reconstruction. Nat. Neurosci. 16 (8), 1154-1161 (2013).
- Dodt, H. U., et al. Ultramicroscopy: three-dimensional visualization of neuronal networks in the whole mouse brain. Nat. Methods. 4 (4), 331-336 (2007).
- Zucker, R. M., Hunter, E. S., Rogers, J. M. Confocal laser scanning microscopy of morphology and apoptosis in organogenesis-stage mouse embryos. Methods Mol. Biol. 135, 191-202 (2000).
- Erturk, A., et al. Three-dimensional imaging of solvent-cleared organs using 3DISCO. Nat. Protoc. 7 (11), 1983-1995 (2012).
- Erturk, A., Lafkas, D., Chalouni, C. Imaging cleared intact biological systems at a cellular level by 3DISCO. J. Vis.Exp : JoVE. (89), (2014).
- Dyer, L. A., Wu, Y., Patterson, C. Protein isolation from the developing embryonic mouse heart valve region. J. Vis.Exp s : JoVE. (91), e51911(2014).
- Wilsbacher, L. D., Coughlin, S. R. Analysis of cardiomyocyte development using immunofluorescence in embryonic mouse heart. J. Vis.Exp : JoVE. (97), (2015).
- StitchArt Guide for Zen 2010. , Zeiss. Available from: http://www.google.co.uk/url?sa=t&rct=j&q=&esrc=s&source=web&cd=1&ved=0ahUKEwjC6OPVnO7NAhVD7RQKHQzqALkQFggcMAA&url=ftp%3A%2F%2Fftp.sonic.net%2Fpub%2Fusers%2Flhund%2FMMP%2FBlurWin2012%2FHelpful Docs%2FTiling_and_Stitching in Zen.pdf&usg=AFQjCNH4C6dv8bdmKC651sp_CFz4C1Rq3g (2010).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature methods. 9 (7), 676-682 (2012).
- Tian, X., Pu, W. T., Zhou, B. Cellular origin and developmental program of coronary angiogenesis. Circ. Res. 116 (3), 515-530 (2015).
- Ivins, S., et al. The CXCL12/CXCR4 Axis Plays a Critical Role in Coronary Artery Development. Dev. Cell. 33 (4), 455-468 (2015).
- Theveniau-Ruissy, M., et al. Coronary stem development in wild-type and Tbx1 null mouse hearts. Dev. Dyn : an official publication of the American Association of Anatomists. 245 (4), 445-459 (2016).
- Tomanek, R. J. Formation of the coronary vasculature during development. Angiogenesis. 8 (3), 273-284 (2005).
- Chen, H. I., et al. VEGF-C and aortic cardiomyocytes guide coronary artery stem development. J. Clin.Iinvest. 124 (11), 4899-4914 (2014).
- Tian, X., et al. Vessel formation. De novo formation of a distinct coronary vascular population in neonatal heart. Science. 345 (6192), 90-94 (2014).
重印与许可
