在此,我们介绍一种高灵敏度可视化和定量固定细胞中内质网与线粒体之间内源性相互作用的方法。该方案采用了一种优化的 原位 靶向线粒体相关膜界面处的三磷酸肌醇受体/葡萄糖调节蛋白75/电压依赖性阴离子通道/亲环素D复合物的邻近连接 assay
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
内质网(ER)与线粒体膜之间的结构相互作用,发生在被称为线粒体相关膜(MAM)的特定区域,是细胞信号传导和细胞命运调控的关键枢纽。特别是,这些细胞器间的接触位点可通过电压依赖性阴离子通道(VDAC)/葡萄糖调节蛋白75(GRP75)/肌醇1,4,5-三磷酸受体(IP3R)钙离子通道复合物,介导钙离子从内质网向线粒体的转移。尽管该亚细胞结构在生理与病理条件下均受到广泛关注,目前仍缺乏简单且灵敏的方法用于定量检测细胞中内源性内质网-线粒体接触水平。此外,MAM具有高度动态性,尚无合适方法可在不依赖蛋白过表达的前提下,实时追踪内质网与线粒体相互作用的动态变化。本文报道了一种基于使用 原位 利用邻近连接技术,在固定细胞中通过检测线粒体外膜蛋白(VDAC1)与内质网膜蛋白(IP3R1)在MAM界面的紧密邻近关系,实现对内源性内质网-线粒体相互作用的可视化与定量分析。类似 原位 邻近连接实验也可使用 GRP75/IP3R1 和 cyclophilin D/IP3R1 抗体对进行。该检测方法相较于其他成像技术具有多项优势,具有高度特异性、灵敏性,并适用于多条件检测。因此,该方法的使用可 原位 邻近连接实验有助于更深入地理解内质网-线粒体相互作用的生理调控机制,以及其在病理条件下的作用。
引言
线粒体和内质网(ER)并非细胞中相互独立的细胞器,它们在结构和功能上通过特定的接触位点相互作用,这些位点被称为线粒体相关内质网膜(MAM)。事实上,MAM 是指内质网膜与线粒体膜紧密靠近的区域,允许两侧蛋白质之间的相互作用。然而,这些细胞器的膜在这些区域内并不发生融合,因而保持各自独立的结构。MAM 在钙离子(Ca2+)和磷脂从内质网向线粒体的转移过程中发挥关键作用,影响能量代谢和细胞存活1-3。
内质网与线粒体之间的关联最早在20世纪70年代通过电子显微镜观察到。自那时以来,透射电子显微镜4,5、电子断层扫描6,7或针对内质网和线粒体特异性荧光染料/荧光蛋白的免疫定位技术8被经典地用于研究内质网与线粒体之间的相互作用。另一种用于MAM分析的有用工具基于亚细胞组分分离技术。该方法可通过差速超速离心结合Percoll梯度分离出富含MAM的组分9。然而,最终产物仅含有富集的MAM组分,而非纯化的组分。总体而言,这些策略的灵敏度和/或定量能力有限,且难以适用于大规模筛选。此外,近年来出现了利用药物可诱导的细胞器间荧光连接子的遗传学方法,但这类方法无法在蛋白质内源性表达水平上分析细胞器间的相互作用10。
基于Szabadkai发现的位于MAM处的IP3R/GRP75/VDAC复合物11,我们开发了一种定量分析内质网-线粒体相互作用的方法。我们采用了 原位 邻近连接实验用于检测和定量两种参与Ca²⁺信号传导的细胞器表面蛋白VDAC1与IP3R1之间的相互作用2+在固定细胞中 MAM 界面上的 -通道复合物12简而言之,我们使用小鼠抗VDAC1一抗检测线粒体外膜上的VDAC1,使用兔抗IP3R1一抗检测内质网膜上的IP3R1。 (图1,a图)然后,根据检测要求,加入偶联了互补寡核苷酸延伸链的抗小鼠和抗兔IgG(小鼠和兔邻近连接检测探针)。如果两种目标蛋白之间的距离小于40 nm,则这些寡核苷酸可与随后添加的连接寡核苷酸杂交,从而形成环状DNA模板 (图1,图版b)。 该环状DNA分子被连接并扩增,产生一条单链DNA产物,共价连接于其中一个邻近探针上 (图1,图版c)由于内质网与线粒体在MAM界面之间的距离范围为10 nm至25 nm6,可进行邻位连接与扩增,随后通过Texas red标记的寡核苷酸探针杂交实现检测 (图1,d图)每个荧光点代表VDAC1/IP3R1之间的相互作用,从而实现对其数量的定量分析 原位 单个细胞中的内质网-线粒体相互作用
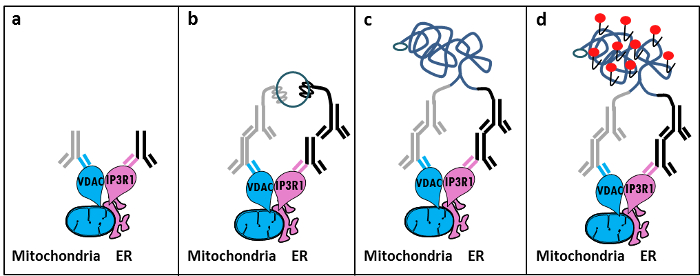
图1:通过内质网-线粒体相互作用检测的示意图 原位 邻近连接实验 a) 一种靶向 VDAC1 的小鼠单克隆抗体和一种靶向 IP3R1 的兔单克隆抗体可结合于 MAM 界面附近各自的表位, b) 添加一对针对小鼠和兔IgG的邻位连接探针。这些探针上连接有DNA链,可作为连接接头寡核苷酸连接反应的模板。 c) 连接后形成的环状DNA链可被扩增并 d) 使用 Texas red 标记的寡核苷酸通过显微镜观察,呈现为荧光点。 请点击此处以查看此图的放大版本。
相似 原位 邻近连接实验可使用 GRP75/IP3R1 抗体对以及亲环素 D(CypD)/IP3R1 抗体进行,因为已有研究显示 CypD 可在 MAM 界面与 IP3R/GRP75/VDAC 复合物相互作用12-14.
访问受限。请登录或开始试用以查看此内容。
方案
1. 溶液的配制
- 通过将 5.5 ml 的 37% 甲醛稀释于 14.5 ml 的 PBS(低盐)中,制备 10% 甲醛溶液。通过将 3.8 g 甘氨酸溶解于 50 ml PBS 中,制备 1 M 甘氨酸溶液(pH 8.0);再将该溶液稀释,获得含 100 mM 甘氨酸的 1×PBS 溶液。
- 制备含 0.1% Triton-X100 的 1×PBS 溶液。使用去离子水缓冲液(25 °C 时 pH 为 7.0)配制含 3.0 M 氯化钠和 0.30 M 枸橼酸三钠的 20×Saline Sodium Citrate(SSC)溶液。用去离子水将该缓冲液稀释为 1× 和 0.01× 浓度。
2. 细胞固定
注意:本研究中使用了HuH7肝癌细胞系,但该方法适用于其他贴壁细胞培养。
- 将HuH7细胞(培养于含1 g/L葡萄糖的DMEM培养基中,添加10%胎牛血清和0.01%青霉素-链霉素储备液)以每孔150,000个细胞的密度接种于未包被的35 mm玻璃底培养皿中。进行原代细胞培养时,应使用胶原蛋白包被的培养皿。
- 次日,移除培养基,加入1 ml PBS洗涤细胞后吸除。加入1 ml 10%甲醛固定细胞,在室温(RT)条件下振荡孵育10分钟。
- 加入1 ml 1 M甘氨酸终止反应,并通过旋转混匀。移除终止液后,加入1 ml 1× PBS洗涤细胞,振荡混匀后吸除。向细胞中加入1 ml 100 mM甘氨酸,在室温下振荡孵育15分钟,然后吸除。
注意:本实验流程可在此处暂停,后续步骤可延至另一日进行。若需暂停,请加入1 ml 100 mM甘氨酸,并在必要时于4 °C保存。
3. 细胞透化
- 加入1 ml含0.1% Triton-X100的1x PBS,室温振荡孵育15分钟,然后吸除。当处理原代细胞培养物(例如,原代小鼠肝细胞)时,此孵育时间可延长至15 - 20分钟。通过加入1 ml 1x PBS洗涤细胞,然后吸除。
4. 封闭
- 向每个样本中加入 40 µl 封闭液(试剂盒提供);可根据需要增加体积以完全覆盖样本。将培养皿置于湿盒中,37 °C 孵育 30 分钟。
- 轻拍去除培养皿中的封闭液。尽量使每张切片残留的液体体积相等,以免影响实验重复性。切勿让样本干燥!
5. 一抗
- 将一抗用1×PBS稀释后加入培养皿中(VDAC1小鼠抗体:1/100,IP3R1兔抗体:1/500)。或者,可使用GRP75或CypD抗体(两种小鼠抗体均按1/500使用)替代VDAC1抗体。
- 在4 °C湿盒中孵育过夜。使用含0.01% Tween的Tris缓冲盐水(TBS-T)洗涤切片两次。
6. 邻近连接实验探针
- 邻近连接杂交探针由试剂盒提供。根据一抗的物种选择相应的探针。
- 用抗体稀释液将两种邻近连接杂交探针按1:5比例稀释。室温静置20分钟。加入稀释后的邻近连接杂交探针溶液。将培养皿置于预热的湿盒中,37 °C孵育1小时。用TBS-T缓冲液洗涤培养皿两次。
7. 连接
- 使用 原位 检测试剂 Texas red 试剂盒
- 将5倍浓度连接反应缓冲液(试剂盒提供)用高纯度水按1:5比例稀释,并充分混匀。将连接酶按1:40比例稀释于1倍浓度连接反应缓冲液(试剂盒提供)中,涡旋混匀。连接酶应在即将加入样品前再添加。
- 将该溶液加入每个样本中(35 mm 玻璃底培养皿加 40 µl),在预热的湿盒中 37 °C 孵育 30 分钟。用 TBS-T 缓冲液洗涤载玻片两次。
8. 扩增
注意:小心操作,该试剂对光敏感。
- 将扩增试剂盒提供的5倍浓度扩增液用高纯水按1:5比例稀释。使用冷冻块(-20 °C)从冷冻箱中取出聚合酶。将试剂盒提供的聚合酶按1:80比例加入1倍浓度扩增溶液中,涡旋混匀。在使用该混合液前立即加入聚合酶。
- 将上述溶液加入每个样本中(35 mm玻底培养皿加40 µl)。将载玻片置于预热的湿盒中,于37 °C孵育100分钟。轻敲载玻片,去除扩增-聚合酶溶液。
9. 最终洗涤
- 用 1x SSC 洗涤缓冲液洗涤载玻片 2 分钟。再用 0.01x SSC 洗涤缓冲液洗涤载玻片 2 分钟。将载玻片置于室温避光处干燥。
10. 成像前准备
- 使用含 DAPI 的封片剂(水性,不凝固)以最小体积封片,确保盖玻片下无气泡产生。可用指甲油封固边缘。封片后约 15 分钟,使用荧光或共聚焦显微镜进行观察(激发波长:594 nm,发射波长:624 nm,放大倍数:63X)。
- 成像后,将载玻片置于 -20 °C 避光保存。
访问受限。请登录或开始试用以查看此内容。
结果
根据我们使用该方案的经验,可安全推荐此方法用于固定细胞中内质网-线粒体相互作用的可视化与定量分析。代表性图像如下所示: 原位 使用多对抗体,通过邻近连接实验可视化人肝癌HuH7细胞系中内质网-线粒体相互作用的结果如图所示。如图所示 图2 通过荧光显微镜观察,每个红色荧光点代表两种靶向蛋白之间的相互作用,细胞核呈蓝色。作为阴性对照,仅使用一种一抗时未检测到信号。 (图2,图版a),验证双重识别需求的必要性 原位 邻近连接 assay 信号生成。传统上,我们使用 VDAC1/IP3R1 抗体对来分析内质网-线粒体相互作用 (图2,b面板). 类似 原位 邻近连接实验也可使用 GRP75/IP3R1 或 CypD/IP3R1 抗体组合进行(图2,c和d面板,因为GRP75是一种在MAM界面上偶联VDAC和IP3R的分子伴侣11 并且CypD被证实可与VDAC/GRP75...
访问受限。请登录或开始试用以查看此内容。
讨论
综上所述,我们的研究表明 原位 邻近连接技术确实是用于在固定细胞中追踪和定量内源性内质网-线粒体相互作用的一种有效策略,无需使用细胞器特异性的荧光染料或荧光蛋白。针对VDAC1/IP3R1抗体的特异性应用已优化用于研究HuH7细胞中的内质网-线粒体相互作用。然而,根据细胞类型的不同,也可选用其他VDAC和IP3R亚型。在此情况下,需在开展邻近连接实验前通过免疫荧光验证所用抗体的特异性,并确定其最佳工作稀释比例。我们还注意到,当使用新的邻近连接试剂盒或新批次抗体时,必须系统性地调整抗体的稀释度。我们选择使用 原位 检测可使用Texas red试剂,但也可选用其他波长的试剂,或使用HRP/Novared试剂盒进行明场检测。我们采用此方法分析了石蜡包埋肝组织样本中的内质网-线粒体相互作用。16,从而将内质网-线粒体相互作用呈现为红褐色斑点,克服了肝脏组织具有显著自发荧光而难以开展工作的难题。
与传统成像方法相比6,7,17,该 原位 邻近连接实验18 避免使用可能引发某...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
感谢我们实验室所有为优化和验证本实验方案作出贡献的人员。本研究由法国国家健康与医学研究院(INSERM)和国家科研署(ANR-09-JCJC-0116 和 ANR-11-BSV1-033-02)资助。E.T. 在攻读博士学位期间获得了法国高等教育与研究部提供的研究奖学金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 甲醛 | Sigma | F-8775 | |
| 甘氨酸 | Sigma | G-8898 | |
| 吐温-100 | Sigma | T8532 | |
| 35 mm 玻璃底培养皿 | MatTeK 公司 | P35G-0-14-C | |
| 封闭液 | Sigma | DUO-92004 或 DUO-92002 | 包含于 Duolink PLA 探针试剂盒中,Sigma |
| VDAC1 抗体 | Abcam | ab14734 | |
| IP3R1-H80 抗体 | Santa Cruz | sc28614 | |
| CypD 抗体 | Abcam | ab110324 | |
| Grp75 抗体 | Santa Cruz | sc13967 | |
| TBS 10x | euromedex | ET220 | 稀释至 1x 使用 |
| 吐温 100x | euromedex | 2001-B | 用 TBS 稀释至 0.01% |
| PLA 探针 小鼠 MINUS | Sigma | DUO-92004 | Duolink,Sigma |
| PLA 探针 兔 PLUS | Sigma | DUO-92002 | Duolink,Sigma |
| Duolink 红色检测试剂 | Sigma | DUO-92008 | Duolink,Sigma |
| 连接溶液 | Sigma | DUO-92008 | Duolink 红色检测试剂的一部分,Sigma |
| 连接酶 | Sigma | DUO-92008 | Duolink 红色检测试剂的一部分,Sigma |
| 扩增溶液 | Sigma | DUO-92008 | Duolink 红色检测试剂的一部分,Sigma |
| 聚合酶 | Sigma | DUO-92008 | Duolink 红色检测试剂的一部分,Sigma |
| Duolink 封片介质 | Sigma | DUO80102 | Duolink,Sigma |
| 软件 | |||
| Blob-finder 软件 | BlobFinder 是一款免费分发的软件,可用于对荧光显微镜图像中的细胞进行定量分析。该软件由乌普萨拉大学图像分析中心开发,开发工作得到了欧盟 FP6 计划 ENLIGHT 项目和 Olink Bioscience 的支持。可从以下网址免费下载:http://www.cb.uu.se/~amin/BlobFinder/index_files/Page430.htm | ||
| ImageJ 软件 | 可从以下网址免费下载:http://rsb.info.nih.gov/ij/download.html |
参考文献
- Bravo-Sagua, R., et al. Organelle communication: signaling crossroads between homeostasis and disease. The international journal of biochemistry & cell biology. 50, 55-59 (2014).
- Giorgi, C., et al. Mitochondria-associated membranes: composition, molecular mechanisms, and physiopathological implications. Antioxidants & redox signaling. 22, 995-1019 (2015).
- Phillips, M. J., Voeltz, G. K. Structure and function of ER membrane contact sites with other organelles. Nature reviews. Molecular cell biology. 17, 69-82 (2016).
- Cosson, P., et al. The RTM resistance to potyviruses in Arabidopsis thaliana: natural variation of the RTM genes and evidence for the implication of additional genes. PLoS One. 7, 39169(2012).
- Mannella, C. A. Structure and dynamics of the mitochondrial inner membrane cristae. Biochim Biophys Acta. 1763, 542-548 (2006).
- Csordas, G., et al. Structural and functional features and significance of the physical linkage between ER and mitochondria. The Journal of cell biology. 174, 915-921 (2006).
- Mannella, C. A., Buttle, K., Rath, B. K., Marko, M. Electron microscopic tomography of rat-liver mitochondria and their interaction with the endoplasmic reticulum. Biofactors. 8, 225-228 (1998).
- Rizzuto, R., et al. Close contacts with the endoplasmic reticulum as determinants of mitochondrial Ca2+ responses. Science. 280, 1763-1766 (1998).
- Wieckowski, M. R., Giorgi, C., Lebiedzinska, M., Duszynski, J., Pinton, P. Isolation of mitochondria-associated membranes and mitochondria from animal tissues and cells. Nat Protoc. 4, 1582-1590 (2009).
- Csordas, G., et al. Imaging interorganelle contacts and local calcium dynamics at the ER-mitochondrial interface. Mol Cell. 39, 121-132 (2010).
- Szabadkai, G., et al. Chaperone-mediated coupling of endoplasmic reticulum and mitochondrial Ca2+ channels. J Cell Biol. 175, 901-911 (2006).
- Tubbs, E., et al. Mitochondria-associated endoplasmic reticulum membrane (MAM) integrity is required for insulin signaling and is implicated in hepatic insulin resistance. Diabetes. 63, 3279-3294 (2014).
- Paillard, M., et al. Depressing Mitochondria-Reticulum Interactions Protects Cardiomyocytes From Lethal Hypoxia-Reoxygenation Injury. Circulation. 128, 1555-1565 (2013).
- Rieusset, J., et al. Disruption of calcium transfer from ER to mitochondria links alterations of mitochondria-associated ER membrane integrity to hepatic insulin resistance. Diabetologia. 59, 614-623 (2016).
- Allalou, A., Wahlby, C. BlobFinder, a tool for fluorescence microscopy image cytometry. Computer methods and programs in biomedicine. 94, 58-65 (2009).
- Theurey, P., et al. Mitochondria-associated endoplasmic reticulum membranes allow adaptation of mitochondrial metabolism to glucose availability in the liver. Journal of molecular cell biology. , (2016).
- de Brito, O. M., Scorrano, L. Mitofusin 2 tethers endoplasmic reticulum to mitochondria. Nature. 456, 605-610 (2008).
- Soderberg, O., et al. Direct observation of individual endogenous protein complexes in situ by proximity ligation. Nature methods. 3, 995-1000 (2006).
- De Pinto, V., Messina, A., Lane, D. J., Lawen, A. Voltage-dependent anion-selective channel (VDAC) in the plasma membrane. FEBS letters. 584, 1793-1799 (2010).
- Kaul, S. C., Taira, K., Pereira-Smith, O. M., Wadhwa, R. Mortalin: present and prospective. Experimental gerontology. 37, 1157-1164 (2002).
访问受限。请登录或开始试用以查看此内容。
重印与许可
