此处描述了制备的实验方案 果蝇 在不同发育阶段进行纵向光学成像 果蝇 使用定制的光学相干显微成像(OCM)系统对心跳进行成像。通过分析OCM图像中的心脏结构和功能参数,可对心脏的形态学和动态变化进行定量表征。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
对小型动物心跳的纵向研究有助于理解心脏发育过程中的结构和功能变化。光学相干显微成像技术(OCM)已被证明能够以高空间分辨率和超高速成像能力对小型动物心脏进行成像。由于其高图像对比度和非侵入性特点,OCM非常适合开展无需组织解剖或染色的纵向研究。Drosophila 因其大量与人类疾病相关的同源基因、与脊椎动物相似的分子机制和遗传通路、较短的生命周期以及低廉的培养成本,已被广泛用作心脏发育研究的模式生物。本文描述了利用自主设计的OCM系统,在整个样本生命周期中对Drosophila进行制备并对其心跳进行光学成像的实验方案。按照本报告提供的步骤,可获取横向M模式和三维OCM图像,用于开展Drosophila心脏形态与功能的纵向研究。同时,还展示了en face 和轴向截面OCM图像,以及心率(HR)和心脏活动期(CAP)直方图,结合由M模式图像构建的视频直观追踪心脏活动,以分析心脏结构变化并量化Drosophila变态过程中的心脏动态。由于Drosophila与脊椎动物之间具有较高的遗传相似性,对果蝇心脏形态和动态的纵向研究有助于揭示人类心脏病的起源。本实验方案将为开展多种研究提供一种有效方法,以深入理解人类心脏疾病的发病机制。
引言
对小型动物心脏的纵向研究有助于理解多种与人类相关的心血管疾病,例如基因相关的先天性心脏缺陷1,2。在过去几十年中,多种动物模型,如小鼠3,4、非洲爪蟾5,6、斑马鱼7,8、鸟类9和Drosophila10-16,已被用于开展与人类心脏发育相关的研究。由于小鼠心脏与人类心脏具有相似性,该模型已被广泛用于研究心脏的正常与异常发育以及心脏缺陷表型3,4。非洲爪蟾胚胎因其易于操作和部分透明的特性,在心脏发育研究中尤为有用5,6。斑马鱼模型的胚胎和早期幼体具有透明性,便于对心脏发育进行光学观察7,8。鸟类模型是心脏发育研究的常用对象,因为去除蛋壳后可直接接触心脏,且鸟类心脏在形态上与人类心脏具有相似性9。Drosophila 模型具有一些独特优势,使其成为开展心脏纵向研究的理想选择。首先,Drosophila 的心脏管位于背侧表面下约 200 µm 处,便于光学观察和访问。此外,Drosophila 与脊椎动物之间在许多分子机制和遗传通路上具有保守性。在 Drosophila 中已发现超过 75% 的人类疾病基因的直系同源基因,这使其在转基因研究中得到广泛应用11,13。此外,其生命周期短、维护成本低,长期以来被普遍用作发育生物学研究的模式生物14-16。
先前的报告描述了用于监测的方案 黑腹果蝇 心脏功能,如心跳。然而,需要进行解剖操作17,18光学成像因其无创性,为观察动物心脏发育提供了有效手段。多种光学成像技术已应用于动物心脏研究,例如双光子显微镜19共聚焦显微镜20,21,光片显微镜22,以及光学相干断层扫描(OCT)16,23-26相比之下,光学相干断层扫描(OCT)能够在不使用对比剂的情况下,对小型动物心脏实现较深的成像深度,同时保持高分辨率和超高速成像,这对于活体动物成像至关重要。此外,OCT系统开发成本较低,使其在生物样本光学成像领域得到广泛应用。OCT已成功用于对活体样本进行纵向研究 果蝇利用OCT技术,已开展心脏形态学和功能成像研究,以探讨心脏结构、基因的功能作用以及在心脏发育过程中突变模型中心血管缺陷的机制。例如,通过血管紧张素转换酶相关(ACER)基因下调的模型,已证实存在随年龄增长而出现的心功能下降现象。 果蝇 使用 OCT 包埋剂27基因相关心肌病的表型分析已得到展示 黑腹果蝇 使用OCT28-33. 采用OCT的研究还揭示了人类SOX5基因在心脏中的功能作用 果蝇34. 与OCT相比,OCM使用数值孔径更高的物镜,以提供更优的横向分辨率。过去,由沉默人类昼夜节律基因同源物所引起的心脏功能障碍 dCry/dClock 已使用定制的OCM系统进行了研究15,16,以及高脂饮食对心肌病的影响 果蝇 以理解肥胖诱导的人类心脏疾病。15
此处总结了用于纵向研究心脏形态和功能变化的实验方案 果蝇 二龄幼虫(L2)、三龄幼虫(L3)、蛹期第1天(PD1)、蛹期第2天(PD2)、蛹期第3天(PD3)、蛹期第4天(PD4)、蛹期第5天(PD5)以及成虫期图1利用光相干层析成像技术(OCM)促进人类相关先天性心脏病的研究。在不同发育阶段对心率(HR)和收缩面积百分比(CAP)等心脏功能参数进行定量分析,以揭示心脏发育特征。
访问受限。请登录或开始试用以查看此内容。
方案
1. 光学成像用OCM系统的准备 果蝇16
- 选择一台光谱仪和一个高速线扫描相机,该相机的帧率至少为 80 帧/秒,以便 OCM 系统能够分辨心跳 果蝇.
- 使用宽带光源以确保轴向分辨率 2 µm 识别心脏结构 果蝇.
- 使用10倍物镜以获得高横向分辨率。
- 使用一个 45° 使用棒状反射镜反射参考臂光束,并生成环形样本臂光束,以扩展样品的焦深。
- 开发一个自定义计算机程序以控制OCM系统并执行测量。
2. Drosophila 培养
- 标准果蝇食物制备
- 加入约 5 ml 瞬时 果蝇 将公式通过纸槽辅助倒入聚苯乙烯小管中。
- 向配方中加入约 8 ml 水,以充分浸润食物。
- 为不同的实验向标准果蝇培养基中添加不同的补充成分。在准备所有实验时转录-retinal(ATR)食物,用于光遗传学起搏实验35使用移液器吸取100 mM ATR,溶于约8 ml水中,使食物中ATR浓度达到1 mM。充分混匀溶液后,将溶液倒入饲料中并充分搅拌。
- 为研究肥胖相关心脏功能障碍制备高脂饮食 果蝇,10,15 在杯中将约10 ml配方与15 ml水混合,放入微波炉加热30秒。在另一杯中加入一些有机特级初榨椰子油,放入微波炉加热90秒。
- 提取7.5 ml椰子油,与制备好的配方充分混合,使椰子油与食物的重量/体积比约为30/100,然后取约2 ml混合食物并置于试管底部。
- 等待1分钟,直至培养基完全浸润。使用平整表面小心压实食物,以优化生物的生存条件 果蝇加入6-8粒酵母到已配制的培养基中,并用一团棉花塞住试管。
- 果蝇杂交与培养
- 取一支装有已配制果蝇培养基的试管,移除封口的棉塞。小心地将成年果蝇(雌雄均有)转移至试管中,并立即用棉塞封口。检查棉塞,确保其与管壁之间无间隙,以防止果蝇逃逸。
- 将果蝇置于培养箱中培养 25 °C 用于杂交育种。大多数基因具有活性,细胞蛋白得以合成。 25 °C36-39.
- 从培养箱中取出试管,8小时后将成虫转移出试管,以获得年龄相近的卵用于实验对照。
- 继续在培养箱中培养卵子 25 °C,这是标准温度 果蝇 8.5天的发育期发育40,41.
注意:温度会影响发育周期(从卵到成虫)以及多种基因的表达水平。
3. 使用光相干层析成像进行光学成像
- 用于光学成像的摇蚊幼虫安装
注意:卵子的 果蝇 22 - 24 小时内孵化 25 °C 至一龄幼虫(L1)。约24小时后蜕皮进入二龄幼虫阶段。三龄幼虫是体型最大的幼虫形态,约24小时后再次蜕皮。幼虫的结构特征可用于区分其不同的发育阶段。一龄与二龄幼虫的口器大小存在差异:一龄幼虫的口钩非常小,呈两对微小的黑点状;而二龄幼虫的口钩较大,结构更清晰。气门常用于区分二龄与三龄幼虫。二龄幼虫具有棒状的前气门,而三龄幼虫的前气门呈分枝状。三龄幼虫的后气门末端开始出现橙褐色环状结构。- 将一片双面胶带贴在干净的显微镜玻璃载片上。挤出胶带下的气泡,以避免成像过程中气泡产生反射。
- 从培养箱中取出一个处于幼虫阶段的果蝇培养管。
- 用软毛刷在培养基中识别幼虫,将其从培养基中取出并置于洁净的纸巾上。用湿润的软毛刷清除幼虫表面附着的食物残渣,并在纸巾上将其吸干。
- 将清理后的果蝇移至物镜下的载物片上。
- 调节显微镜焦距以获得果蝇的清晰视野。利用显微镜观察幼虫的结构特征,确定其正确的发育阶段。
- 使用软毛刷调整果蝇位置,在显微镜下操作,确保其身体伸直,背面向上,以备后续将果蝇背面向上固定于载玻片上。
- 确保幼虫在粘贴到胶带前完全干燥,否则幼虫无法牢固粘附于胶带上。
- 将固定好的果蝇背侧轻轻按压在载玻片的双面胶带上,施加适度压力。注意压力过大可能致死果蝇,而压力不足则会导致成像过程中果蝇移动。
- 光学成像 果蝇 在幼虫阶段(L2 和 L3)使用 OCM
注意:在幼虫期,可在第 A5 至 A8 节段之间观察到心脏管具有较宽的管腔图1在每条幼虫的心管A7节段采集横向OCM M型图像(二维+时间),以方便进行收缩期和舒张期分析。- 将固定好的幼虫置于OCM系统的可调样品台上,沿y轴横向方向摆放,使幼虫背面向上,位于物镜下方。样品台上需留有小孔,以便放置幼虫,避免其与台面直接接触。
- 调整样品台,将果蝇的心管移至成像光束的焦平面。为便于定位A7节段,可在图像采集软件中利用实时横断面OCM图像找到心管的后部区域,随后向前移动样品台,直至A7节段清晰可见。
- 将图像采集软件的参数设置为每帧(B-scan)包含100次A-scan,共采集100帧B-scan,扫描电压设置为在x横向方向覆盖约0.28 mm,y横向方向为0 V。使用遮光布遮挡样品光路,然后点击软件中的“start”按钮,采集背景噪声数据用于背景扣除。
注意:100 帧中的 3 帧可用于背景扣除。 - 将数据采集软件参数设置为:每个B扫描包含128次A扫描,共4096个B扫描,扫描电压设置为在x横向方向覆盖约0.28 mm,y横向方向为0 V。在软件中点击“开始”按钮,以采集果蝇心脏管A7节段横断面M模式图像,成像区域覆盖0.28 × 0.57 mm2 约30秒。
- 在数据保存过程中,使用深色布料遮挡成像光束,以避免果蝇心脏长时间暴露于成像光照下。
- 重复测量5次,以获得可靠的心脏功能数据。
- 将图像采集软件的参数设置为:每个B扫描包含400次A扫描,共800个B扫描,扫描电压范围覆盖x横向方向约1.7 mm,y横向方向约4 mm。在两个方向上移动载物台,确保能够完整成像整个果蝇。在软件中点击“开始”按钮以采集一组数据,获得果蝇的三维图像。注意:可使用Amira 3D软件对果蝇的三维结构进行三维重建。
- 使用湿润的软毛刷润湿已测量的果蝇,并轻轻将其从玻片上移除。将其转移至另一管中以继续发育。标记该管,用于后续发育阶段的纵向研究。
- 图像 果蝇 蛹期阶段
注意:所有果蝇均从 PD1 至 PD5 期间取出进行成像。如幼虫示意图所示 图1b,直到出生后第1天(PD1),心脏管的A5至A8节段仍保持较宽的管腔。从出生后第2天(PD2)开始,在A1至A4节段之间开始发育出一个锥形腔室。为了获得一致的图像并便于心脏分析,出生后第1天(PD1)在A7节段获取横断面M型超声图像,出生后第2天(PD2)起则在A1节段获取,如图中标记所示 图1b.- 图像 果蝇 在PD1时
注意: 果蝇 在PD1期间会有一个短暂的时间窗口(0 - 1小时),此时蛹体呈白色蛹壳。该时间窗口非常适合进行早期蛹体的光学成像,因为其高度透明性可为光相干显微成像(OCM)提供更强的光穿透能力。- 当果蝇在化蛹时附着于管壁上,使用湿润的软毛刷从各管中取出 PD1 时期的蛹用于成像,并用刷子清理附着在蛹体上的食物残渣。
- 用湿润的毛笔将果蝇直接置于小块载玻片上,保持背面向上图1a确保玻璃载玻片足够小,以便在本阶段成像完成后能重新放回管中。
- 去除果蝇体侧多余的水分。
- 将玻璃载玻片置于OCM系统的样品台上,确保果蝇位于上方。采用与幼虫测量中所述相同的方法,获取果蝇心脏A7节段清晰的实时图像。
- 设置数据采集软件的参数,与3.2节中的参数相同,在A7节段对心跳进行成像,以获取横断面M型和三维图像。
- 成像后,用镊子将带有蛹的玻片放回离心管中,继续培养。
- 图像 果蝇 在出生后第2至第5天阶段
注意:由于样本在蛹期阶段会变得越来越不透明,成像系统的穿透深度将逐渐降低。- 使用镊子小心地将固定有果蝇的载玻片从 PD2 期的试管中取出用于成像。在 PD2 期,标本的外壳变为黄褐色,与 PD1 期相比,身体透明度降低。图1).
- 将载玻片放置于OCM系统的样品台上。
- 调整样品台,将果蝇移至光学相干显微成像系统(OCM)的成像光束焦平面。利用实时横断面OCM图像找到心脏管的前端。移动约 50 µm 向后方移动以找到心脏管的A1节段。
注意:在此心脏发育阶段(PD2),心室腔将非常小,可能尚未开始搏动。 - 采用与先前发育阶段相同的方法,从A1节段采集横向M型超声模式数据以及三维数据。
- 小心地将载玻片放回试管中,以进行连续培养。
注意:在PD3阶段,果蝇蛹壳内样本的颜色比PD2阶段更深。在PD4阶段,可在样本的蛹壳内观察到黑色条纹。部分果蝇在次日将从此阶段发育为成虫,而另一些则会进入PD5阶段。在PD5阶段,果蝇体内的黑色条纹更为明显,这些果蝇将在次日羽化为成虫。
- 图像 果蝇 在PD1时
- 图像 果蝇 在成年阶段
注意:在成虫阶段,可通过体形大小和腹部下端颜色区分雌雄果蝇。雌性成虫体型较大,而雄性体型较小,且腹部下端颜色较深。- 从培养箱中取出试管,当果蝇发育为成虫时,将成虫转移至约 45 ml 的空瓶中。
- 将棉签的吸水端(约1 cm长,直径约3 mm)浸入麻醉剂中,然后将棉签放入样品瓶内,并用一团棉花塞住管口,使麻醉剂端位于棉花团下方,对果蝇麻醉3分钟。麻醉时间取决于果蝇的大小,通常在2.5至3.5分钟之间(例如:雄性果蝇2.5分钟,雌性果蝇3或3.5分钟)。
- 准备一张带有双面胶带的载玻片。
- 用软毛刷将麻醉后的果蝇移至载玻片上,使其背面向上。
- 使用镊子将翅膀分开,并在显微镜下将翅膀粘贴到胶带上,以固定果蝇并暴露心脏区域用于成像。
- 从果蝇心脏的A1节段对果蝇进行成像(图1实验结束时,可处死果蝇。
4. 成像分析16
- 编写 Matlab 程序,将图像采集软件获取的 2D 和 3D 二进制文件转换为图像文件。
- 使用 ImageJ 在横断面 M 型图像中识别心管区域,并利用魔棒算法为每幅横断面 M 型图像创建心脏区域的掩膜。对掩膜区域进行分割,并采用峰值检测算法识别收缩期和舒张期的位置。根据横断面 M 型图像计算随时间变化的心脏直径。
- 根据获得的随时间变化的心脏直径,计算心率(HR)、心脏活动期(CAP)、舒张末期直径(EDD)、收缩末期直径(ESD)、舒张末期面积(EDA)和收缩末期面积(ESA)等心脏参数。使用
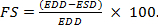 计算缩短分数(FS)。
- 使用 ImageJ 分析 3D OCM 图像,以可视化果蝇心脏的结构发育过程。
访问受限。请登录或开始试用以查看此内容。
结果
使用24B-GAL4/+品系的果蝇在室温下通过光相干显微镜(OCM)进行纵向心脏成像。测量时间点包括L2、L3以及从蛹期第1天(PD1)到第4天(PD4)每隔8小时一次,并持续至成虫第1天(AD1),以追踪变态发育过程(表1)。幼虫、早期蛹、晚期蛹及成虫果蝇均被固定于载玻片上,如图1A所示。幼虫和成虫果蝇心脏的节段特征在图1B的示意图中展示。
在本项发育研究中,使用我们定制的光学相干显微成像系统在32秒内采集了4,096帧图像,以追踪果蝇的心跳。为提高测量精度,对每个发育阶段的每个样本均重复测量五次。还可获取三维数据,以观察果蝇在变态过程中心脏结构的变化。
使用自定义的 Matlab 程序和 ImageJ 生成了横向 M 型和三维图像。 正面 图像和轴向切面也由采集的数据构建而成,以可视化心脏重塑过程 果蝇 变态发育(图2)。为了定量分析果蝇的心脏功能,使用...
访问受限。请登录或开始试用以查看此内容。
讨论
快速的心跳 果蝇,幼虫和成年阶段的最大心率约为400 bpm,因此需要高速成像以分辨心脏的舒张与收缩相(根据经验,帧率不低于80帧/秒)。由于心脏腔室尺寸较小且心壁厚度在微米量级(5–10 µm),需具备高空间分辨率(优于2 µm)才能清晰分辨心管结构。本研究开发了一套高分辨率与超高速的光学相干显微成像(OCM)系统,采用具有600线/毫米透射光栅的光谱仪和2,048像素线阵扫描相机。线阵扫描相机提供20 kHz的A扫描速率,128帧/秒的成像帧率足以捕捉心脏动态 果蝇 在包括L2、L3、PD1、PD2、PD3、PD4、PD5及成虫在内的多个发育阶段记录心跳。光源为宽带超连续谱光源,中心波长约为800 nm,带宽约为220 nm,在组织中的轴向分辨率可达约1.3 µm。样品臂采用10X物镜,实现约3.9 µm的横向分辨率。由于心脏管状结构的 果蝇 位于背侧表面下方约200 µm处,需要数百微米的成像深度。可利用45°柱面镜产生环形照明光束,以扩展样品中的焦深。44灵敏度和3 dB下降距离分别确定为96 dB和600 µm,样品臂功率约为9 mW。使用定制的计算机...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明本研究不存在任何利益冲突。
致谢
本工作得到了理海大学启动基金、美国国立卫生研究院(NIH)(项目编号:R00EB010071 和 R15EB019704 资助 C.Z.,R15EB019704 资助 A.L.,R03AR063271 资助 A.L.,R01AG014713 和 R01MH060009 资助 R.E.T.)、美国国家科学基金会(NSF,项目编号 1455613 资助 C.Z. 和 A.L.)、阿尔茨海默病治愈基金(Cure Alzheimer's Fund,资助 R.E.T.)以及麻省总医院(麻省总医院研究执行委员会奖项资助 A.L.)的支持。M.C. 和 Y.M. 得到了中国国家重点基础研究发展计划(973 计划)(项目编号:2014CB340404)的资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 定制 OCM 成像系统 | 本实验室自主研发 | ||
| my Temp Mini 数字培养箱 | Benchmark | H2200-HC | |
| 盖玻片 | AmScope | 200PCS | |
| 棉球 | RITE AID | ||
| 速效果蝇培养基 | CAROLINA | formula 4-24 | |
| 酵母 | ActiveDry | ||
| 显微镜 | SONY | WILD M420 | |
| 毛刷 | Loew-Cornell | 245B | 用于移动样本 |
| Labview 软件 | National Instruments | ||
| ImageJ | 美国国立卫生研究院 | ||
| Matlab | Mathworks | ||
| 镊子 | Wiha | AA SA | 用于固定果蝇翅膀 |
| FlyNap | Carolina Biological Supply Company | 4,224,898 | |
| Scotch 永久双面胶带,3 M | Scotch | ||
| 移液器 | Fisherbrand | MU18837 | |
| 有机特级椰子油 | Spring Valley | 13183 | |
| 显微镜载玻片 | CapitolBrand | M3504-E | |
| Drosophila 培养管 | SEOH | 8401SS | |
| 全反式视黄醛 | Sigma-Aldrich Co. | R2500 |
参考文献
- Liberatore, C. M., Searcy-Schrick, R. D., Yutzey, K. E. Ventricular expression of tbx5 inhibits normal heart chamber development. Dev. Biol. 223 (1), 169-180 (2000).
- Christoffels, V. M., et al. Chamber formation and morphogenesis in the developing mammalian heart. Dev. Biol. 223 (2), 266-278 (2000).
- Wessels, A., Sedmera, D. Developmental anatomy of the heart: a tale of mice and man. Physiol. Genomics. 15 (3), 165-176 (2003).
- Savolainen, S. M., Foley, J. F., Elmore, S. A. Histology atlas of the developing mouse heart with emphasis on E11.5 to E18.5. Toxicol. Pathol. 37 (4), 395-414 (2009).
- Yang, V. X. D., et al. High speed, wide velocity dynamic range Doppler optical coherence tomography (Part II): Imaging in vivo cardiac dynamics of Xenopus laevis. Opt. Express. 11 (14), 1650-1658 (2003).
- Yelin, R., et al. Multimodality optical imaging of embryonic heart microstructure. J. Biomed. Opt. 12 (6), 064021(2007).
- Bakkers, J. Zebrafish as a model to study cardiac development and human cardiac disease. Cardiovasc. Res. 91 (2), 279-288 (2011).
- Staudt, D., Stainier, D. Uncovering the molecular and cellular mechanisms of heart development using the zebrafish. Annu. Rev. Genet. 46, 397-418 (2012).
- Drake, V. J., Koprowski, S. L., Lough, J. W., Smith, S. M. Gastrulating chick embryo as a model for evaluating teratogenicity: a comparison of three approaches. Birth Defects Res. A. 76 (1), 66-71 (2006).
- Birse, R. T., et al. High-fat-diet-induced obesity and heart dysfunction are regulated by the TOR pathway in Drosophila. Cell Metab. 12 (5), 533-544 (2010).
- Bodmer, R. Heart development in Drosophila and its relationship to vertebrates. Trends in Cardiovas. Med. 5 (1), 21-28 (1995).
- Harvey, R. P. Nk-2homeobox genes and heart development. Dev. Biol. 178 (2), 203-216 (1996).
- Bodmer, R., Venkatesh, T. V. Heart development in Drosophila and vertebrates: conservation of molecular mechanisms. Dev Genet. 22 (3), 181-186 (1998).
- Cripps, R. M., Olson, E. N. Control of cardiac development by an evolutionarily conserved transcriptional network. Dev. Biol. 246 (1), 14-28 (2002).
- Men, J., et al. Optical coherence tomography for brain imaging and developmental biology. J. Sel. Top. Quantum Electron. 22 (4), 6803213(2016).
- Alex, A., et al. A circadian clock gene, Cry, affects heart morphogenesis and function in Drosophila as revealed by optical coherence microscopy. PloS one. 10 (9), e0137236(2015).
- Vogler, G., Ocorr, K. Visualizing the beating heart in Drosophila. J Vis Exp. (31), e1425(2009).
- Cooper, A. S., Rymond, K. E., Ward, M. A., Bocook, E. L., Cooper, R. L. Monitoring heart function in larval Drosophila melanogaster for physiological studies. J Vis Exp. (33), e1425(2009).
- Yalcin, H. C., et al. Two-photon microscopy-guided femtosecond-laser photoablation of avian cardiogenesis: noninvasive creation of localized heart defects. Am. J. Physiol. Heart C. 299 (5), H1728-H1735 (2010).
- Dolber, P. C., Spach, M. S. Conventional and confocal fluorescence microscopy of collagen fibers in the heart. J. Histochem. Cytochem. 41 (3), 465-469 (1993).
- Mao, H., Gribble, M., Pertsov, A. M., Wang, L., Shi, P. Understanding embryonic heart morphogenesis through automatic segmentation and confocal imaging with optical clearing. ISBI. , 1303-1306 (2014).
- Bouchard, M. B., et al. Swept confocally-aligned planar excitation (SCAPE) microscopy for high-speed volumetric imaging of behaving organisms. Nat. Photonics. 9 (2), 113-119 (2015).
- Boppart, S. A., et al. Noninvasive assessment of the developing Xenopus cardiovascular system using optical coherence tomography. Proc. Natl. Acad. Sci. 94 (9), 4256-4261 (1997).
- Kagemann, L., et al. Repeated, noninvasive, high resolution spectral domain optical coherence tomography imaging of zebrafish embryos. Molecular Vision. 14, 2157-2170 (2008).
- Jenkins, M. W., et al. Ultrahigh-speed optical coherence tomography imaging and visualization of the embryonic avian heart using a buffered Fourier Domain Mode Locked laser. Opt. Express. 15 (10), 6251-6267 (2007).
- Larin, K. V., Larina, I. V., Liebling, M., Dickinson, M. E. Live imaging of early developmental processes in mammalian embryos with optical coherence tomography. J. Innov. Opt. Health Sci. 2 (03), 253-259 (2009).
- Liao, F. -T., Chang, C. -Y., Su, M. -T., Kuo, W. -C. Necessity of angiotensin-converting enzyme-related gene for cardiac functions and longevity of Drosophila melanogaster assessed by optical coherence tomography. J. Biomed. Opt. 19 (1), 011014(2014).
- Wolf, M. J., et al. Drosophila as a model for the identification of genes causing adult human heart disease. Proc. Natl. Acad. Sci. 103 (5), 1394-1399 (2006).
- Choma, M. A., Izatt, S. D., Wessells, R. J., Bodmer, R., Izatt, J. A. In vivo imaging of the adult Drosophila melanogaster heart with real-time optical coherence tomography. Circulation. 114 (2), e35-e36 (2006).
- Li, A., et al. Changes in the expression of the Alzheimer's disease-associated presenilin gene in drosophila heart leads to cardiac dysfunction. Curr. Alzheimer Res. 8 (3), 313(2011).
- Choma, M. A., Suter, M. J., Vakoc, B. J., Bouma, B., Tearney, G. J. Heart wall velocimetry and exogenous contrast-based cardiac flow imaging in Drosophila melanogaster using Doppler optical coherence tomography. J. Biomed. Opt. 15 (5), 056020(2010).
- Choma, M. A., Suter, M. J., Vakoc, B. J., Bouma, B. E., Tearney, G. J. Physiological homology between Drosophila melanogaster and vertebrate cardiovascular systems. Dis. Model. Mech. 4 (3), 411-420 (2011).
- Tsai, M. T., et al. Noninvasive imaging of heart chamber in Drosophila with dual-beam optical coherence tomography. J. Biophotonics. 6 (9), 708-717 (2013).
- Li, A., et al. Silencing of the Drosophila ortholog of SOX5 in heart leads to cardiac dysfunction as detected by optical coherence tomography. Hum. Mol. Genet. 22 (18), 3798-3806 (2013).
- Alex, A., Li, A., Tanzi, R. E., Zhou, C. Optogenetic pacing in Drosophila melanogaster. Sci. Adv. 1 (9), e1500639(2015).
- Mirault, M. E., Goldschmidt-Clermont, M., Moran, L., Arrigo, A. P., Tissieres, A. The effect of heat shock on gene expression in Drosophila melanogaster. IEEE T. Med. Imaging. 42, 819-827 (1978).
- Boothroyd, C. E., Wijnen, H., Naef, F., Saez, L., Young, M. W. Integration of Light and Temperature in the Regulation of Circadian Gene Expression in Drosophila. PLoS Genet. 3 (4), (2007).
- McGuire, S. E., Roman, G., Davis, R. L. Gene expression systems in Drosophila: a synthesis of time and space. Trends Genet. 20 (8), 384-391 (2004).
- Ashburner, M., Bonner, J. J. The induction of gene activity in drosophila by heat shock. Cell. 17 (2), 241-254 (1979).
- Ashburner, M., Thompson, J. N. Jr Laboratory culture of Drosophila. 2a, Academic Press. London. 1-109 (1978).
- Ashburner, M. Drosophila: a laboratory handbook. , Cold Spring Harbor Laboratory Press. (1978).
- Molina, M. R., Ostia Cripps, R. M. the inflow tracts of the Drosophila heart, develop from a genetically distinct subset of cardial cells. Mech. Dev. 109 (1), 51-59 (2001).
- Monier, B., Astier, M., Sémériva, M., Perrin, L. Steroid-dependent modification of Hox function drives myocyte reprogramming in the Drosophila heart. Development. 132 (23), 5283-5293 (2005).
- Liu, L., et al. Imaging the subcellular structure of human coronary atherosclerosis using micro-optical coherence tomography. Nat. Med. 17 (8), 1010-1014 (2011).
- Ahsen, O. O., et al. Swept source optical coherence microscopy using a 1310 nm VCSEL light source. Opt. Express. 21 (15), 18021-18033 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
