本方案描述了一种从成人外周血细胞高效生成无整合iPSC的详细方法。通过使用四种基于oriP/EBNA的附加体质粒表达重编程因子KLF4、MYC、BCL-XL以及OCT4和SOX2,可从1 mL外周血中获得数千个iPSC克隆。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
诱导性多能干细胞(iPSCs)在疾病建模和再生治疗方面具有广阔前景。我们此前报道了使用附加体型载体(EV)从外周血单个核细胞(PB MNCs)中生成无整合的iPSCs。所用的附加体型载体是含有Epstein-Barr(EB)病毒oriP和EBNA1元件的DNA质粒, 可在哺乳动物细胞中实现质粒的复制和长期保留, 分别通过进一步优化,可从1 mL外周血中获得数千个iPSC克隆。实现高效重编程的两个关键因素 是:1)使用 2A "自切割" 通过使用连接OCT4和SOX2的肽段,实现这两种因子的等摩尔表达;2)使用两个独立载体分别表达MYC和KLF4。本文详细描述了一种从成人外周血样本中生成无整合诱导多能干细胞(iPSCs)的逐步操作方案。所获得的iPSCs为无整合型,因为在连续传代五次后已无法检测到残留的附加体型质粒。尽管该方法的重编程效率与仙台病毒(SV)载体相当,但附加体(EV)质粒的成本显著低于 commercially available 的SV载体。这种经济高效的EV重编程系统在再生医学的临床应用中具有广阔前景,并为外周血单个核细胞(PB MNCs)直接重编程为无整合型间充质干细胞、神经干细胞提供了可行策略。 等等.
引言
在强制表达多个转录因子后 (即 OCT4、SOX2、MYC 和 KLF4),体细胞可被重编程为诱导性多能干细胞(iPSCs),这类细胞在再生医学和细胞替代治疗中具有广阔的应用前景1-3迄今为止,已开发出多种方法以提高重编程的成功率4-7病毒载体诱导的重编程因病毒整合可实现重编程因子的高效、稳定表达,被广泛用于诱导多能干细胞(iPSCs)的生成。然而,载体DNA在细胞基因组中的永久性整合可能引发插入突变。5此外,重编程因子的不充分失活可能会干扰iPSCs的分化8因此,在细胞治疗应用中,必须使用不整合重编程因子的诱导多能干细胞(iPSCs)。
附加体质粒(EVs)被广泛用于生成无整合的诱导多能干细胞(iPSCs)。最常用的附加体质粒是一种包含两种元件的质粒:来自EB病毒(Epstein-Barr病毒)的病毒复制起点(oriP)和EB病毒核抗原1(EBNA1)9。oriP元件可促进质粒在哺乳动物细胞中的复制,而EBNA1元件则将含有oriP的质粒DNA锚定至染色体DNA上,从而在宿主细胞分裂时实现附加体的分配。与其他无整合方法(如仙台病毒(SV)和RNA转染)相比,附加体质粒具有多种优势5,6,10。作为质粒DNA,附加体质粒可在实验室内方便地制备和修饰,因此成本极低。此外,使用附加体质粒进行重编程的操作更为简便,因为仅需一次转染即可实现iPSC的生成,而RNA转染则需要多次转染才能成功完成重编程。
真皮成纤维细胞已被广泛应用于多种重编程研究中。然而,皮肤活检不仅是一种侵入性且令人疼痛的过程,而且需要耗费较长时间才能将细胞扩增至重编程所需的足够数量。更令人担忧的是,成年供体的皮肤细胞通常长期暴露于紫外光辐射下,可能导致与肿瘤相关的突变,从而限制了由皮肤成纤维细胞衍生的诱导多能干细胞(iPSCs)的应用11,12。最近有报道称,正常人体皮肤细胞会积累体细胞突变以及多个癌基因,其中包括皮肤鳞状细胞癌大多数关键驱动基因,这些基因处于强烈的正向选择压力之下13。
与皮肤成纤维细胞相比,外周血(PB)细胞是重编程 更理想的细胞来源,原因如下:1)血液细胞可通过微创方式轻松获取;2)外周血细胞源自骨髓中的造血干细胞,因而较少受到有害辐射的影响。外周血单个核细胞(PB MNCs)可在Ficoll-Hypaque(1.077 g/mL)密度梯度离心后,从血沉棕黄层在一小时内收集获得。所获得的PB MNCs主要由淋巴细胞、单核细胞以及少量造血祖细胞(HPCs)14组成。尽管人类T淋巴细胞是外周血中的主要细胞类型之一,但成熟的T细胞其T细胞受体(TCR)基因已发生重排,基因组不完整,因而限制了其在某些应用中的潜力15,16。然而,通过诱导多能干细胞(iPSC)技术实现T细胞的 rejuvenation( rejuvenation 指细胞重获年轻状态),可能在嵌合抗原受体(CAR)T细胞治疗中具有潜在应用价值17-19。相比之下,HPCs具有完整的基因组,且易于重编程。尽管外周循环中仅有0.01%–0.1%的细胞为HPCs,但这些细胞可在有利于红系祖细胞增殖的红系培养基中进行 ex vivo 扩增14。
在之前的研究中,我们在Yamanaka因子(OCT4、SOX2、MYC和KLF4)的基础上加入了BCL-XL因子,结果导致 PB重编程效率提高10倍20BCL-XL,也称为BCL2L1,是一种强效的细胞死亡抑制因子,通过抑制caspase的活化发挥作用。21,22但BCL-XL在维持多能性方面也可能发挥重要作用21,22最近,我们通过使用两个载体分别表达MYC和KLF4,进一步优化了我们的EV重编程系统,使重编程效率提高了约100倍。23采用该方法,重编程效率(以转染时起始细胞数与形成的克隆数之比定义)为0.2 - 0.5% 来自健康供体。以下,我们将详细描述从外周血生成无整合iPSC的实验步骤。
访问受限。请登录或开始试用以查看此内容。
方案
所有人外周血样本均来自天津市血液中心的匿名成年捐献者,在当地研究伦理委员会批准下获取,无任何可识别的个人信息。
1. 无内毒素质粒制备
- 根据制造商的说明书,使用商业质粒纯化大提试剂盒从 E. coli 中提取附加体质粒。最后一步中,用无内毒素的无菌水替代TE缓冲液以溶解DNA沉淀。
- 使用商业紫外/可见光分光光度计测定DNA浓度。浓度通常大于1 µg/µL, A260/A280 和 A260/A230 比值分别大于1.8和2.0。
2. 培养基
- 制备红系培养基:在造血干细胞扩增培养基中添加100 ng/mL人干细胞因子(SCF)、10 ng/mL白细胞介素-3(IL3)、2 U/mL促红细胞生成素(EPO)、20 ng/mL胰岛素样生长因子-1(IGF1)、1 µM地塞米松和0.2 mM 1-巯基甘油。使用0.22 µm注射器滤器过滤灭菌。红系培养基可在4 °C下保存最多一个月。
- 制备iPSC培养基:在DMEM/F12培养基(Dulbecco改良Eagle培养基/营养混合物F-12)中添加1x L-谷氨酰胺、1x青霉素/链霉素、1x非必需氨基酸溶液、50 ng/mL成纤维细胞生长因子2(FGF2)、1x胰岛素-转铁蛋白-硒补充剂(ITS)和50 mg/mL抗坏血酸。使用0.22 µm注射器滤器过滤灭菌。iPSC培养基可在4 °C下保存最多一个月。
- 制备MEF培养基:在Dulbecco改良Eagle培养基(DMEM; 高糖) 中添加1x青霉素/链霉素和10%胎牛血清(FBS)。使用0.22 µm注射器滤器过滤灭菌。MEF培养基可在4 °C下保存最多一个月,或在使用前新鲜加入1x L-谷氨酰胺。
- 制备iPSC冻存培养基(2x):将5 g D-海藻糖溶于30 mL无菌水中,置于37 °C水浴中溶解。 将温度降至4 °C,然后加入10 mL FBS和10 mL二甲基亚砜(DMSO)。使用0.22 µm注射器滤器过滤灭菌。可在4 °C下保存最多3个月24。
3. 外周血单个核细胞(PB MNCs)的分离
- 将10 mL新鲜PB混合 将样品和10 mL PBS缓冲液加入50 mL离心管中,充分混匀。使用前将PBS平衡至室温或37 °C。
注意:约 1 - 3 x 10⁶ MNC(新鲜或冻存)可从1 mL PB中获得。培养6天后,预期可获得0.5 - 1 x 10⁶ 由于培养过程中成熟细胞死亡导致的总细胞数减少。约 1 x 10⁷ 细胞可从10 mL中获得 新鲜PB - 使用连接长针头的10 mL注射器,将10 mL Ficoll缓慢加入试管底部。此过程应缓慢进行,以确保Ficoll层不与PB混合。
- 以400 × g离心30分钟,加速度和减速度均设为低速。离心后,外周血单个核细胞(PB MNCs)位于血浆层与Ficoll层之间的白色界面层(即血沉棕黄层,buffy coat)。
- 缓慢吸取约10 mL PB血浆,注意不要扰动白膜层。使用1 mL移液枪头小心收集白色层,并转移至新的50 mL离心管中。所收集的白色层细胞总体积为3–6 mL。
- 加入 PBS 至终体积为 30 mL,并用 10 mL 移液管充分混匀。以 400 × g 离心 10 分钟。
- 去除上清液,将细胞沉淀重悬于 20 mL 培养基中(即 Iscove改良的Dulbecco培养基(IMDM)并充分混匀。以400 × g离心10分钟,以去除大部分血小板。
- 吸除上清液,并将细胞沉淀重悬于 1 - 2 mL 中 IMDM。细胞可用于立即培养,或冻存以备后续使用。进行冻存时,加入等体积的冻存液,将细胞分装至冻存管中(每管0.5–1 mL),并立即转移至-80 °C冰箱。外周血单个核细胞(PB MNCs)可在-80 °C冰箱中保存数周。 或转移至液氮罐中长期保存。
注意:解冻冻存细胞时,尽管本公司的冻存培养基可能维持细胞活性,但在解冻过程中可能因细胞死亡而导致细胞数量减少。建议复苏时使用 1 - 10 x 107 每个小管将冻存细胞。
4. 红系培养基中PB MNC的扩增
- 在15 mL离心管中准备5 mL IMDM培养基。将冻存的外周血单个核细胞(PB MNCs)在37 °C水浴中快速解冻, 然后转移它们 加入含 IMDM 培养基的试管中。
注意:水浴中的时间长短取决于冻存细胞的体积和所使用的冻存管。通常情况下,冻存的细胞在1分钟内即可解冻。 - 在400 × g下离心5–10分钟。弃去上清液,将细胞沉淀重悬于红系培养基中。取10 µL细胞悬液与10 µL台盼蓝溶液混合,充分混匀。台盼蓝可在1–3分钟内对死细胞进行染色。使用血细胞计数板在显微镜下计数细胞。
- 在未经组织培养处理的6孔板中培养外周血单个核细胞 2 mL 培养皿 每孔培养基体积,细胞密度约为 5 × 10⁵6 细胞/mL,于37 °C、5% CO₂条件下培养2 湿润培养箱
- 在第3天,向每个孔中直接加入1 mL新鲜的红系培养基,不更换原有培养基 5.
- 在第6天,收获外周血单个核细胞用于核转染。
5. 外周血单个核细胞的核转染与重编程
- 核转染前一天,预先包被经TC处理的6孔板 用0.1%明胶在37 °C下孵育培养板20分钟。将失活的小鼠胚胎成纤维细胞(MEF)饲养层细胞在37 °C水浴中解冻,并立即转移 加入至含有5 mL MEF培养基的15 mL离心管中。
- 在 400 × g 条件下离心 5 分钟,弃去上清液。从 6 孔板中移除明胶 平板, 将细胞沉淀重悬于MEF培养基中,并转移至经明胶预处理的6孔板 孔板。每孔接种 2 - 4 x 10⁵ 灭活的MEF细胞悬浮于2 mL MEF培养基中。
- 在37 °C、5% CO₂条件下培养MEF饲养层细胞2 湿润培养箱
- 在核转染当天,吸除MEF培养基,并替换为1 mL红系培养基。将培养板置于37 °C、5% CO₂条件下预平衡10 - 30分钟。2 加湿培养箱
- 加入2 µg pEV-OCT4-2A-SOX2、1 µg pEV-MYC、1 µg pEV-KLF4和0.5 µg pEV-BCL-XL至一个1.5 mL无菌Eppendorf管中。将管子在50 °C加热5分钟以防止污染,然后冷却至室温。加入57 µL核转染缓冲液和13 µL补充剂。
- 收获 2 × 10⁶ 通过在200 × g下离心7分钟,将培养的PB MNCs收集至5 mL离心管中。弃去上清液,向细胞沉淀中加入质粒与核转染缓冲液混合物。轻轻弹击离心管使细胞充分混匀 手指
注意:低至 2 x 10⁵ 细胞可用于核转染,但重编程效率可能较低。 - 将DNA和细胞悬液转移至试剂盒提供的比色皿中,并盖紧盖子。在核转染仪上选择程序U-008。将比色皿插入 holder 中,按下 OK 键以启动U-008程序。
- 从支架中取出比色皿,向每个比色皿中加入0.5–1 mL预热的红系培养基,并立即将细胞转移至预先平衡的MEF培养板中。由于重编程效率较高且存在供体差异,接种的细胞数量可根据情况在1–10 × 10范围内调整。5 强烈建议每孔细胞数量。
- 将培养板转移至缺氧舱中,并用由92% N₂、5% CO₂和3% O₂组成的混合气体冲洗舱体。2,5% CO₂2 和 3% O₂2, 以20 L/min的速率持续1-2分钟。密封培养 chamber 后,在37 °C条件下培养细胞。
- 在 D 转染后2小时,直接向每孔加入2 mL iPSC培养基。
- 转染后第4天,移除3 mL培养基,加入2 mL新鲜的iPSC培养基。转染后第4天,大多数活细胞已贴附于饲养层。
- 核转染后第6天起,每2天更换一次培养基 通过保留500 µL旧培养基,并添加2 mL新鲜E8培养基(补充0.25 mM丁酸钠),持续培养至第14至18天。
注意:当观察到饲养层细胞脱落时,可在培养孔中补充额外的饲养层细胞。解冻MEFs后(见5.1和5.2),用少量E8培养基重悬细胞沉淀即 约 0.2 mL 6孔板中的一个孔 培养板),然后将MEFs加入培养孔中。可添加约2% FBS以促进细胞贴壁。 alternatively,也可使用MEF条件培养基,但操作更为繁琐。
6. iPSCs 的扩增
注意:大多数情况下,在核转染后第 8 - 10 天会出现大量 iPSC 克隆。核转染后第 14 天,通常已有较大的 iPSC 克隆可供挑选。
- 在挑取菌落前,向一个饲养层或Matrigel包被的24孔板孔中加入500 µL添加了ROCK抑制剂Y27632(10 µM)的E8培养基 培养皿。使用10或20 µL移液器在下方刮取并挑取菌落 显微镜。将每个菌落的片段转移至含有培养基的孔中。
注意:Matrigel 的浓度因批次不同而有所差异。通常,我们使用 1:100 稀释的 Matrigel。- 为避免交叉污染,应挑选体积较大且与其他菌落分离良好的菌落。将iPSCs在37 °C、5% CO₂的培养箱中培养2 加湿培养箱
注意:由于在6孔板的每个孔中有数十或数百个克隆时可能发生细胞迁移,因此诱导多能干细胞(iPSC)群体可能为多克隆性。
- 为避免交叉污染,应挑选体积较大且与其他菌落分离良好的菌落。将iPSCs在37 °C、5% CO₂的培养箱中培养2 加湿培养箱
- 最初2天不要更换培养基。ROCK抑制剂可促进小克隆的存活25.
- 从第2天开始,每天更换培养基,吸去旧培养基后,每孔加入500 µL新鲜E8培养基。
- 约1周后,当克隆足够大时,移除培养基,加入300 µL细胞解离液(含0.5 mM EDTA的PBS),37 °C孵育1–3 min。移除解离液后,加入含有ROCK抑制剂(10 µM)的E8培养基重悬iPSC。切勿将克隆消化为单细胞,以免导致细胞死亡过多。含有5–50个细胞的细胞团适用于iPSC传代。
- 转移 50 - 将细胞悬液的100%加入至12孔或6孔板的每个孔中 已预先包被饲养层细胞或基质胶的培养板。
- 在基质胶包被的培养板中进行长期培养时(参见6.1中的说明),每天更换培养基。当细胞融合度达到40%–60%时,在37 °C下用1 mL细胞解离液(含0.5 mM EDTA的PBS)处理细胞约3分钟。当细胞集落开始卷起时,移除细胞解离液,并加入含有ROCK抑制剂(10 µM)的E8培养基以重悬iPSC。按4–8的传代比例进行细胞传代。ROCK抑制剂 传代细胞时应加入以提高存活率,并在1天后去除,以防止分化。
- 为冻存诱导多能干细胞(iPSCs),根据生产商说明书,使用细胞解离溶液在 37 °C 处理细胞 3 - 5 分钟。当 iPSC 克隆开始卷曲时,吸除缓冲液,并加入 0.5 - 1 mL E8 培养基。
- 向细胞悬液中加入等体积的冻存液,充分混匀。冻存的iPSCs可在-80 °C冰箱中保存数周,或于液氮中长期保存。
7. 无残留附加体质粒的iPSC筛选
- 传代5次后,收集iPSCs并提取基因组DNA。
注意:通常 经过5次传代培养后,残留的附加体质粒已无法检测到。因此,在第5代以上的iPSC克隆中,几乎所有的克隆均不含附加体质粒。即 第10代细胞缺乏残留的附加体质粒。 - 使用未转染的外周血单个核细胞(PB MNCs)的基因组DNA作为阴性对照。将1.6 pg pEV-OCT4-2A-SOX2质粒加入1 µg阴性对照DNA中,以模拟每个细胞含有一个拷贝pEV质粒的情况。
- 向10 µL高保真PCR预混液中加入含100 ng基因组DNA的9 µL PCR级水和1 µL特异性引物(上下游引物各10 µM)。使用GAPDH对DNA用量进行归一化。PCR所用引物序列如下:EBNA1-F TTTAATACGATTGAGGGCGTCT,EBNA1-R GGTTTTGAAGGATGCGATTAAG,WPRE-F GGTTTAAACGCGTCGACAAT,WPRE-R GTTGCGTCAGCAAACACAGT,GAPDH-F GAGTCCACTGGCGTCTTC,GAPDH-R GACTGTGGTCATGAGTCCTTC。
- 在98 °C孵育反应混合物60秒;随后进行30个循环:98 °C 10秒、60 °C 30秒、72 °C 30秒;循环结束后,在72 °C延伸反应5分钟。
- 在1%琼脂糖凝胶的每个孔中加入5 µL PCR产物。在100 V电压下电泳20 - 30分钟。选择EBNA1和WPRE条带不可见的iPSC克隆进行后续培养和下游分析。
8. 流式细胞术
- 使用Accutase在37 °C下处理iPSCs 3 - 5分钟,以获得单细胞悬液。在5 mL离心管中,向100 µL细胞悬液(1 - 5 × 10⁵个细胞)加入1 µL PE标记的抗TRA-1-60抗体或eFluor 570标记的抗SSEA4抗体或同型对照抗体。将离心管置于室温避光处孵育20分钟。
- 室温染色20分钟后,加入2 mL PBS,于400 × g离心5分钟。将细胞重悬于300 µL PBS中,用于流式细胞仪进行荧光激活细胞分选(FACS)分析。23,26
9. 共聚焦成像
- 将iPSCs接种于Matrigel包被的培养腔载玻片中。
- 培养3–4天后,移除培养基,于室温下用4%多聚甲醛(PFA)固定30分钟,用PBS洗涤细胞两次。
注意:PFA具有毒性且有害。 - 用含0.1% Triton X-100的PBS(PBS-T)于室温处理细胞30分钟,再用PBS洗涤细胞两次。
- 用封闭缓冲液(含5%山羊血清的PBS,体积比)于室温封闭细胞1小时 。
- 封闭期间,用封闭缓冲液按100倍稀释比例稀释一抗。
注意:抗体信息列于材料/设备表中。 - 将细胞与稀释后的一抗于4°C孵育过夜。
- 用PBS-T洗涤两次,每次15分钟,随后用 PBS洗涤两次,每次15分钟。
- 用稀释的荧光标记二抗于室温孵育细胞2小时。
- 用PBS-T洗涤两次,每次15分钟, 随后用PBS洗涤两次,每次15分钟。
- 用含DAPI(1 µg/mL)的PBS于室温染色细胞核10分钟。
- 用PBS洗涤细胞两次,每次15分钟。
- 使用共聚焦显微镜采集图像。23,27
10. 畸胎瘤检测
使用细胞解离液(PBS 中含 0.5 mM EDTA)收集 1 × 10⁶ 个 iPSC 细胞,并将细胞重悬于 200 µL DMEM/F12 稀释的(1:1)Matrigel 中。
- 将细胞皮下注射至NOD/SCID免疫缺陷小鼠的后肢臀部。
- iPSC注射后8–12周,解剖并用10%福尔马林固定畸胎瘤。28
- 经显微切片并用苏木精和伊红(H&E)染色后,分析样本。29
访问受限。请登录或开始试用以查看此内容。
结果
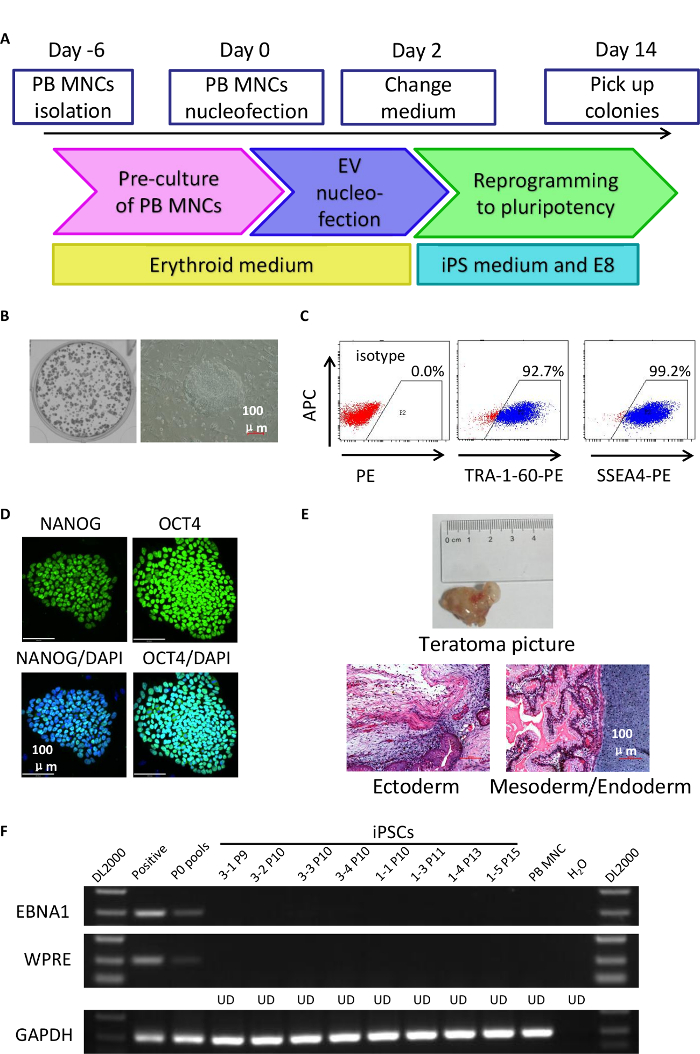
采用本方案,可以从 1 × 10⁵ 个核转染的外周血单个核细胞(PB MNCs)中获得数百个克隆(图 1A 和 1B)。重编程效率约为 0.2 - 0.5%,且克隆表达多能性标志物(图 1C 和 1D)。通过所述方案生成的诱导多能干细胞(iPSCs)无整合,且具有形成包含三个胚层的畸胎瘤的能力(图 1E 和 1F)。
访问受限。请登录或开始试用以查看此内容。
讨论
从健康供体或患者获取血样方便且无创,使其成为基础研究和临床细胞治疗的理想细胞来源。本文介绍了一种从外周血样本高效生成无整合iPSC的方案。这一可重复且经济的方法将有助于iPSC领域的发展。
我们已报道,高效PB重编程有两个关键因素30。其一是通过使用2A连接肽实现OCT4与SOX2的等摩尔表达31。为实现这一点,本方案中采用了质粒pEV-OCT4-2A-SOX2。其二是使用两个质粒pEV-MYC和pEV-KLF4分别表达MYC和KLF4,而非我们先前使用的pEV-MYC-2A-KLF430。这一看似简单的改变使PB重编程效率提高了约100倍,这主要归因于在重编程过程中MYC与KLF4的比例逐渐升高且增幅更大。
为实现从外周血(PB)高效生成诱导多能干细胞(iPSC),需考虑若干要点。外周血单个核细胞(PB MNCs)需在红系培养基中培养约1周,以促进红系祖细胞的增殖与扩增,从而提高重编程效率20。然而,对于某些样本(尤其是白血病患者的血细胞...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无任何竞争性或冲突性利益需要披露。
致谢
本工作得到中国科学技术部(2015CB964902、2013CB966902 和 2012CB966601)、国家自然科学基金委员会(81500148、81570164 和 81421002)、洛马林达大学医学院 GCAT 项目资助(2015 年)以及远程医疗与先进技术创新中心(W81XWH-08-1-0697)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 造血干细胞扩增培养基 | Sigma | S0192 | 4°C 下保存 °C |
| 人干细胞因子(SCF) | Peprotech | 300-07 | 储存于 -20 或 -80 °C |
| 白细胞介素-3(IL-3) | Peprotech | AF-200-03 | 储存于 -20 或 -80 °C |
| 促红细胞生成素(EPO) | Peprotech | 100-64 | 储存于 -20 或 -80 °C |
| 胰岛素样生长因子-1(IGF-1) | Peprotech | 100-11 | 储存于 -20 或 -80 °C |
| 地塞米松 | Sigma | D4902 | 储存于 -20 或 -80 °C |
| 1-硫代甘油(MTG) | Sigma | M6145 | 储存于 -20 或 -80 °C |
| DMEM/F12 培养基 | Gibco | 112660-012 | 4°C 下保存 °C |
| L-谷氨酰胺(100倍) | Gibco | 25030-081 | -20℃保存 °C |
| 青霉素/链霉素(100倍浓缩) | Gibco | 15140-122 | -20℃保存 °C |
| 非必需氨基酸溶液(100倍浓缩) | Gibco | 11140-050 | 4°C 保存 °C |
| 成纤维细胞生长因子2(FGF2) | Peprotech | 100-18B | 储存于 -20 或 -80 °C |
| 胰岛素-转铁蛋白-硒(Insulin-Transferrin-Selenium,ITS,100倍浓缩液) | Gibco | 41400-045 | 4°C 下保存 °C |
| 抗坏血酸 | Sigma | 49752 | -20℃保存 °C |
| DMEM(高糖)培养基 | 赛默飞世尔科技 | SH30243.01B | 4°C 下保存 °C |
| 胎牛血清(FBS) | Hyclone | SV30087.01 | -20℃保存 °C |
| Ficoll | GE Healthcare,SIGMA | 17-5442-02 | 室温保存 |
| 海藻糖 | Sigma | T9531 | 4°C 下保存 °C |
| 二甲基亚砜(DMSO) | Sigma | D2650 | 室温保存,避光 |
| 内毒素去除质粒大提试剂盒(10) | Qiagen | 12362 | 室温保存 |
| IMDM | Gibco | 21056-023 | 4°C 保存 °C |
| 人类CD34+细胞核转染试剂盒 | Lonza | VPA-1003 | 室温保存,核转染缓冲液和补充剂应于4℃保存 °C |
| 丁酸钠 | Sigma | B5887 | 储存于 -20 或 -80 °C |
| ROCK抑制剂 - Y27632 | STEMGENT | 04-0012-10 | -20℃保存 °C |
| Essential 8 基础培养基(E8) | Gibco | A15169-01 | 4°C 下保存 °C,该补充剂应保存在 -20 或 -80 °C |
| Matrigel | BD | 354277 | 储存于 -20 或 -80 °C |
| 2x EasyTaq PCR 超级混合液(含染料) | TransGen Biotech | AS111 | -20℃保存 °C |
| 细胞解离液 | STEMGENT | 01-0006 | -20℃保存 °C,使用Accutase作为细胞解离溶液以获得单细胞悬液 |
| DAPI | Sigma | D9542-1MG | 4 或 -20 保存 °C |
| 抗Nanog AF488 | BD | 560791 | 4°C 下保存 °C,用于免疫荧光的一抗,使用时稀释比例为1/100 |
| 抗OCT4 | abcam | ab19857 | 4°C 下保存 °C,用于免疫荧光的一抗,使用时稀释比例为1/100 |
| AF488 驴抗小鼠 IgG | Invitrogen | A21202 | 4°C 保存 °C,用于免疫荧光的二抗, 使用时按1/500稀释 |
| PE 抗人 TRA-1-60-R 抗体 | Biolegend | 330610 | 4°C 保存 °C,用于流式细胞术的抗体 |
| eFluor 570 标记的抗 SSEA4 抗体 | eBioscience | 41-8843 | 4°C 保存 °C,用于流式细胞术的抗体 |
| 同型抗体 | eBioscience | 11-4011 | 4°C 保存 °C,用于流式细胞术的抗体 |
| 碱性磷酸酶检测试剂盒 | SiDanSai | 1102-100 | 4°C 下保存 °C |
| 基因组DNA提取试剂盒 | TIANGEN | DP304-02 | 室温保存 |
| 台盼蓝溶液 | Sigma | T8154 | 室温保存 |
| 流式细胞仪细胞分析仪 | BD | LSRII | |
| 转盘共聚焦显微镜(SDC) | PerkinElmer | UltraVIEW VOX | 用于共聚焦成像 |
| 核转染装置 | Lonza | Nucleofector 2b | 用于外周血单个核细胞的核转染 |
| ImageQuant LAS-4010 | 通用电气 | 批量拍摄碱性磷酸酶染色照片 |
参考文献
- Takahashi, K., Yamanaka, S. Induction of pluripotent stem cells from mouse embryonic and adult fibroblast cultures by defined factors. Cell. 126, 663-676 (2006).
- Takahashi, K., et al. Induction of pluripotent stem cells from adult human fibroblasts by defined factors. Cell. 131, 861-872 (2007).
- Trounson, A., McDonald, C. Stem Cell Therapies in Clinical Trials: Progress and Challenges. Cell Stem Cell. 17, 11-22 (2015).
- Hayes, M., Zavazava, N. Strategies to generate induced pluripotent stem cells. Methods Mol Biol. 1029, 77-92 (2013).
- Zhang, X. B. Cellular reprogramming of human peripheral blood cells. Genomics Proteomics Bioinformatics. 11, 264-274 (2013).
- Schlaeger, T. M., et al. A comparison of non-integrating reprogramming methods. Nat Biotechnol. 33, 58-63 (2015).
- Okita, K., et al. An efficient nonviral method to generate integration-free human-induced pluripotent stem cells from cord blood and peripheral blood cells. Stem Cells. 31, 458-466 (2013).
- Carey, B. W., et al. Reprogramming factor stoichiometry influences the epigenetic state and biological properties of induced pluripotent stem cells. Cell Stem Cell. 9, 588-598 (2011).
- Dorigo, O., et al. Development of a novel helper-dependent adenovirus-Epstein-Barr virus hybrid system for the stable transformation of mammalian cells. J Virol. 78, 6556-6566 (2004).
- Dowey, S. N., Huang, X., Chou, B. K., Ye, Z., Cheng, L. Generation of integration-free human induced pluripotent stem cells from postnatal blood mononuclear cells by plasmid vector expression. Nat Protoc. 7, 2013-2021 (2012).
- Harms, P. W., et al. Next generation sequencing of Cytokeratin 20-negative Merkel cell carcinoma reveals ultraviolet-signature mutations and recurrent TP53 and RB1 inactivation. Mod Pathol. 29, 240-248 (2016).
- Abyzov, A., et al. Somatic copy number mosaicism in human skin revealed by induced pluripotent stem cells. Nature. 492, 438-442 (2012).
- Martincorena, I., et al. Tumor evolution. High burden and pervasive positive selection of somatic mutations in normal human skin. Science. 348, 880-886 (2015).
- Su, R. J., Neises, A., Zhang, X. B. Generation of iPS Cells from Human Peripheral Blood Mononuclear Cells Using Episomal Vectors. Methods Mol Biol. 1357, 57-69 (2016).
- Seki, T., et al. Generation of induced pluripotent stem cells from human terminally differentiated circulating T cells. Cell Stem Cell. 7, 11-14 (2010).
- Loh, Y. H., et al. Reprogramming of T cells from human peripheral blood. Cell Stem Cell. 7, 15-19 (2010).
- Kishino, Y., Seki, T., Yuasa, S., Fujita, J., Fukuda, K. Generation of Induced Pluripotent Stem Cells from Human Peripheral T Cells Using Sendai Virus in Feeder-free Conditions. J Vis Exp. , (2015).
- Seki, T., Yuasa, S., Fukuda, K. Generation of induced pluripotent stem cells from a small amount of human peripheral blood using a combination of activated T cells and Sendai virus. Nat Protoc. 7, 718-728 (2012).
- Gill, S., June, C. H. Going viral: chimeric antigen receptor T-cell therapy for hematological malignancies. Immunological reviews. 263, 68-89 (2015).
- Su, R. J., et al. Efficient generation of integration-free ips cells from human adult peripheral blood using BCL-XL together with Yamanaka factors. PLoS One. 8, e64496(2013).
- Li, Y., et al. The p53-PUMA axis suppresses iPSC generation. Nat Commun. 4, 2174(2013).
- Hardwick, J. M., Youle, R. J. SnapShot: BCL-2 proteins. Cell. 138, 404(2009).
- Wen, W., et al. Enhanced Generation of Integration-free iPSCs from Human Adult Peripheral Blood Mononuclear Cells with an Optimal Combination of Episomal Vectors. Stem Cell Reports. 6, 873-884 (2016).
- Zhang, X. B., et al. Trehalose ameliorates the cryopreservation of cord blood in a preclinical system and increases the recovery of CFUs, long-term culture-initiating cells, and nonobese diabetic-SCID repopulating cells. Transfusion. 43, 265-272 (2003).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nat Biotechnol. 25, 681-686 (2007).
- Basu, S., Campbell, H. M., Dittel, B. N., Ray, A. Purification of specific cell population by fluorescence activated cell sorting (FACS). J Vis Exp. , (2010).
- Castiel, A., et al. Cell death associated with abnormal mitosis observed by confocal imaging in live cancer cells. J Vis Exp. , e50568(2013).
- Peterson, S. E., et al. Teratoma generation in the testis capsule. J Vis Exp. , e3177(2011).
- Ritner, C., Bernstein, H. S. Fate mapping of human embryonic stem cells by teratoma formation. J Vis Exp. , (2010).
- Wen, W., et al. Enhanced Generation of Integration-free iPSCs from Human Adult Peripheral Blood Mononuclear Cells with an Optimal Combination of Episomal Vectors. Stem Cell Reports. , (2016).
- Lo, C. A., et al. Quantification of Protein Levels in Single Living Cells. Cell Rep. 13, 2634-2644 (2015).
- Liu, S. P., et al. An improved method for generating integration-free human induced pluripotent stem cells. Zhongguo Shi Yan Xue Ye Xue Za Zhi. 22, 580-587 (2014).
- Luni, C., et al. High-efficiency cellular reprogramming with microfluidics. Nat Methods. 13, 446-452 (2016).
- Chou, B. K., et al. A facile method to establish human induced pluripotent stem cells from adult blood cells under feeder-free and xeno-free culture conditions: a clinically compliant approach. Stem Cells Transl Med. 4, 320-332 (2015).
- Nakagawa, M., et al. A novel efficient feeder-free culture system for the derivation of human induced pluripotent stem cells. Sci Rep. 4, 3594(2014).
- Howden, S. E., et al. Simultaneous Reprogramming and Gene Correction of Patient Fibroblasts. Stem Cell Reports. 5, 1109-1118 (2015).
- Meng, X., et al. Rapid and efficient reprogramming of human fetal and adult blood CD34+ cells into mesenchymal stem cells with a single factor. Cell research. 23, 658-672 (2013).
- Liao, W., et al. Direct Conversion of Cord Blood CD34+ Cells Into Neural Stem Cells by OCT4. Stem cells translational medicine. 4, 755-763 (2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
