本文描述了如何实施心理生理交互分析,以揭示所选种子区域与大脑其他区域体素之间功能连接在任务依赖条件下的变化。心理生理交互分析是一种研究任务对脑连接影响的常用方法,不同于传统的单变量激活效应分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在神经影像学中,功能性磁共振成像(fMRI)用于测量大脑中的血氧水平依赖(BOLD)信号。大脑空间上独立区域之间BOLD信号的相关程度定义了这些区域的功能连接性。在认知fMRI任务期间,可通过心理生理交互(PPI)分析来研究由认知任务所定义的特定情境下功能连接性的变化。此类任务的一个示例是激活记忆系统的任务,要求参与者学习成对的无关联词语(编码阶段),并在呈现每对中的第一个词时回忆第二个词(提取阶段)。在本研究中,我们采用这种类型的联想记忆任务和广义PPI(gPPI)分析,比较携带阿尔茨海默病(AD)遗传风险因子载脂蛋白E epsilon-4(APOEε4)的老年人群中海马连接性的变化。具体而言,我们发现海马亚区的功能连接性在联想记忆任务的两个活跃阶段——编码和提取过程中发生了改变。与非携带者相比,APOEε4携带者在海马功能连接性的上下文依赖性变化方面表现出显著差异。PPI分析能够独立于单变量主效应,考察功能连接性的变化,并可在不同组间比较这些变化。因此,PPI分析可能揭示传统单变量方法无法捕捉到的特定群体中的复杂任务效应。然而,PPI分析不能确定功能连接区域之间的方向性或因果关系。尽管如此,PPI分析为生成关于功能关系的具体假设提供了有力手段,这些假设可通过因果模型进行验证。随着大脑越来越多地以连接性和网络的方式被描述,PPI成为一种重要的方法,适用于分析符合当前人类大脑概念的fMRI任务数据。
引言
术语 "连接组" 于2005年提出,标志着神经科学领域的一场范式转变,这一转变至今仍在持续1大脑正越来越多地通过功能网络、大规模脑区间及脑区内部的连接性与相互作用来加以描述。然而,界定脑区的功能特化,以及分析由fMRI测量的脑活动与任务需求之间的关联,仍然是有效且有用的研究方法。鉴于人们对连接组学(connectomics)的兴趣日益增长,基于任务态fMRI的功能连接分析方法也日益受到关注。其中一种用于测量任务需求依赖性功能连接变化的方法,利用了心理生理交互(PPI)的概念。PPI是指某一活跃的任务阶段或特定任务需求与某一脑区的生理活动之间的交互作用。"心理")与功能连接性("生理学"感兴趣区域的 "种子" 在大脑中。PPI 与基于相关性的双变量功能连接分析不同,后者通常仅测量两个脑区活动之间的相关程度,而不考虑与任务需求相关的任何约束条件。
PPI 分析的概念与框架最初由 Friston 及其同事于 1997 年提出2。作者指出,该方法的重要性在于能够使对脑区连接性的研究更具功能特异性,并可推断远端种子区的活动可能调节由任务需求引起的活动。2012 年,McLaren 及其同事在原有框架基础上进一步发展,提出了一种 gPPI 方法,该方法将所有任务阶段及其相互作用纳入单一模型中3。这种方法使得结果对所研究的任务阶段及相互作用更加敏感且更具特异性。本研究采用的正是这一更新后的 gPPI 方法(见 实验方案 中的步骤 6.2.2)。目前,gPPI 方法已在超过 200 项研究中被引用。为明确起见,下文中使用“PPI”描述标准版本与广义版本共有的特征,而“gPPI”则用于讨论与新框架相关的具体进展。
PPI 分析的总体目标是理解认知任务的需求如何影响或调节某一种子区域的功能连接性。PPI 分析需要一个强有力的 先验的 假设。为了使PPI方法有效发挥作用,种子区域的活动必须受到任务的调节。4例如,在本研究中,我们的种子区选择基于强有力的证据,即海马体活动会受到记忆任务认知需求的调节。通过PPI分析,可以识别出在特定任务阶段与海马体功能连接显著增强或减弱的脑区。简而言之,我们提出的问题是, "在情境A中,哪些区域的活动与种子区域的相关性较基线期更强?" 我们也可以提出其逻辑上的反面问题(理解这种差异非常重要): "在情境A中,哪些区域的活动与种子区域的相关性较基线时期降低?" 在解释PPI效应的组间差异时,重要的是要检查数据,以及功能连接性的增加或减少,或两者共同作用,是否是导致组间差异的原因。
PPI 方法已被用于研究健康对照者中的动态任务控制中枢、阿尔茨海默病(AD)患者功能连接性的调节与认知表现之间的关系、自闭症个体的智力、帕金森病患者运动网络的连接性、躯体变形障碍和神经性厌食症患者对面孔的加工、情绪调节、记忆,以及许多其他与连接性相关的具体问题5,6,7,8,9,10,11。在本研究中,我们比较了一组具有较高 AD 遗传风险的个体与一组无此风险因素的个体在记忆编码和提取过程中海马亚区功能连接性的变化12。以下描述了我们所采用的 gPPI 方法的实验方案,以检验任务诱发的功能连接性变化是否与 AD 的遗传风险因素 APOEε4 的存在相关。
访问受限。请登录或开始试用以查看此内容。
方案
本研究遵循加州大学洛杉矶分校机构审查委员会(IRB)的方案,并获得加州大学洛杉矶分校人类受试者保护委员会的批准。所有参与者均签署书面知情同意书,以参加本研究。
1. 受试者选择
- 获得伦理审查委员会批准以开展本研究。
- 使用标准化的神经心理学测验组合对55岁及以上的个体进行认知衰退筛查。包括一般智力(WAIS-III子测验)13、流畅性(水果和蔬菜命名)14、注意力(数字广度顺背和倒背)13、语言能力(波士顿命名测验)15、言语记忆(Buschke-Fuld 选择性提示任务)16、WMS-III 逻辑记忆和言语配对联想学习13,以及视觉记忆(Rey-Osterrieth复杂图形测验)17。
- 让受试者完成情绪评估问卷,如汉密尔顿抑郁量表和焦虑量表18,19,以及简易精神状态检查(MMSE)20。
- 纳入在MMSE中得分达到26分及以上、且在认知测验中表现优于同龄人正常值两个标准差以下的受试者。排除患有临床焦虑、抑郁或其他神经精神或神经系统疾病的受试者。排除不符合磁共振成像(MRI)安全标准或拒绝接受抽血的受试者。
注意:在本研究中,共有93名受试者符合这些标准(平均年龄 = 67.4岁,31名男性/49名女性)。
2. 基因分型
- 由经过培训的采血员或其他医疗专业人员从每位参与者处采集血液。
- 分离 200 µg 按照所述方法从10 mL样本中提取基因组DNA21.
- 采用实时 PCR 对两个位点 rs429358 和 rs7412 进行单核苷酸多态性(SNP)分型,以区分 APOE 等位基因22.
- 将报告染料整合至针对 rs429358 和 rs7412 的 SNP 基因分型检测中。每次 PCR 扩增循环结束后,在图表上绘制报告染料与淬灭染料的荧光信号分布。实验重复进行两次,以验证结果。
- 使用专为实时 PCR 程序输出开发的软件包分析 SNP 分型数据23.
注意:本研究中使用的程序可计算样本对两种报告染料之一的亲和力,而该亲和力相应地代表其中一种 APOE SNP 的另一个等位基因。在本研究中,共纳入34名携带AD风险等位基因的个体, APOEε4(杂合子 ε3/ε4)和46名非携带者(纯合子) ε3/ε3)共招募了80名研究参与者。排除APOE携带者ε2 等位基因,因为有证据表明该等位基因可能与阿尔茨海默病(AD)具有保护作用相关。
3. 功能与结构成像数据采集
- 使用 3 特斯拉 (3T) MRI 系统采集全脑成像数据。
- 对于功能成像,采用回波平面成像 (EPI) 序列采集轴向切片。为便于功能图像的配准,同时采集 T2 加权的共面结构图像的轴向切片。对于高分辨率结构成像,采用 3D T1 加权序列采集轴向切片。
注意:本研究中使用了配备 12 通道头部线圈的 3T 磁体。以下参数是为特定扫描仪和线圈设计的。更多信息请参见材料表。- 采用以下序列参数采集功能成像数据:重复时间 (TR) = 2,500 ms,回波时间 (TE) = 21 ms,视野 (FOV) = 200 mm × 200 mm,翻转角 = 75°,矩阵 = 64 × 64,33 层切片,切片厚度 = 3 mm,层间间隙 = 0.75 mm,体素大小 = 3.125 × 3.125 × 3.75 mm。
- 在功能成像序列的第三个体积数据开始时触发无关词联想记忆任务。为消除稳态平衡前的影响,分析中排除每次功能扫描的前两个体积数据。
注意:无关词联想记忆任务在其他文献中已有描述12,24。简而言之,该任务是一种采用编码与提取区组的区组设计功能任务。受试者被要求学习成对的无关词语。 - 采用以下序列参数采集 T2 加权共面结构成像数据:TR = 5,000 ms,TE = 34 ms,FOV = 200 mm × 200 mm,翻转角 = 90°,矩阵 = 128 × 128,28 层切片,切片厚度 = 3 mm,层间间隙 = 1 mm,体素大小 = 1.56 × 1.56 × 4 mm。
- 采用以下磁化准备快速梯度回波 (MPRAGE) 序列参数采集高分辨率结构(解剖)成像:TR = 1,900 ms,TE = 2.26 ms,TI = 900 ms,FOV = 250 mm × 218 mm,翻转角 = 9°,矩阵 = 256 × 215,176 层切片,切片厚度 = 1 mm,零填充至矩阵 256 × 224,最终体素大小 = 1 × 0.976 × 0.976 mm。
- 对于功能成像,采用回波平面成像 (EPI) 序列采集轴向切片。为便于功能图像的配准,同时采集 T2 加权的共面结构图像的轴向切片。对于高分辨率结构成像,采用 3D T1 加权序列采集轴向切片。
4. fMRI BOLD 数据预处理
- 使用牛津大学功能脑成像中心(FMRIB)软件库(FSL)版本 6.0(http://fsl.fmrib.ox.ac.ul)对功能数据进行预处理,步骤如下:
- 对每位参与者的数据集,使用运动校正FMRIB线性图像配准工具(MCFLIRT)去除数据中的头动伪影25.
- 使用脑提取工具(BET)并配合可选的 -F 标志从图像中去除非脑组织26.
- 使用 FSL Motion Outliers 工具识别功能数据中因体积间帧位移过大而导致运动过度的体积。将运动被判定为离群值(高于第 75 百分位数)的体积标记出来th 百分位数 + 1.5 倍四分位距)与扫描的其余部分相比,并利用该程序的输出在分析中对这些体积进行降权处理。
注意:在进行组间比较之前,需检查由 FSL Motion Outliers 测量的平均运动在两组之间是否存在差异。这有助于确保研究结果不受组间运动差异的影响。
- 使用 FSL fMRI 专家分析工具(FEAT)的图形用户界面(GUI),为第一位受试者设置预处理和第一水平的一般线性模型(GLM)。
注意:对每位研究参与者重复此步骤。为节省时间,在为一位参与者设置完一次运行后,可通过修改脚本以批量运行其余研究参与者数据的预处理 "design.fsf" 为每位参与者提供一个文件(FSL FEAT 输出),以引用该参与者的特定数据。- 在数据标签页中,单击 "添加4D数据" 导航至运动校正并提取脑部的文件。将TR设为2.5 s(对应所采集的功能序列的TR)。使用默认的高通滤波器(设置为100 s)。
注意:高通滤波将去除无关注的低频信号。 - 在“预统计”选项卡中,单击 "无" 在……下方 "运动校正" (如步骤 4.1 中已完成)。取消勾选 "BET 脑提取" (如步骤 4.1 中已完成)。输入 "5" 在框中设置5 mm全宽半高(FWHM)高斯核以进行空间平滑。
注意:平滑核的半高全宽(FWHM)通常应设置为功能扫描体素大小的约两倍。 - 使用 MCFLIRT 的输出结果(6 列,行数等于扫描中时间点的数量)创建 6 个单列文本文件,用于描述数据集中每个体积时相所进行的运动校正。这些文件将在下一步作为回归变量加入模型中。
- 在统计选项卡下方 "完整模型设置",将6个运动参数及其时间导数作为回归因子或解释变量(EVs)加入GLM中。对于每个运动EV,选择 "定制" (每卷一条目)用于基本形态, "无" 用于卷积和验证 "应用时间滤波。"
注意:运动参数无需通过任何函数进行卷积,因为它们参考了在运动校正期间对每个功能像体积所进行的重新对齐,因此无需进一步调整。
- 在统计选项卡下方 "完整模型设置",将6个运动参数及其时间导数作为回归因子或解释变量(EVs)加入GLM中。对于每个运动EV,选择 "定制" (每卷一条目)用于基本形态, "无" 用于卷积和验证 "应用时间滤波。"
- 在统计标签页中,选择步骤 4.1 中 FSL 运动异常值的输出结果 "添加额外的混杂因素EVs".
注意:该输出是一个矩阵,表示因过度运动而被标记的各个体积,通过添加混淆变量文件,这些体积将在一般线性模型(GLM)中被降权处理。 - 在统计标签页中,单击 "完整模型设置". 创建任务时序文本文件,标注不同任务阶段的开始和结束时间,并通过选择单列格式并定位到相应的文本文件,将这些文件作为事件(EVs)添加到一般线性模型(GLM)中(分别为任务的编码阶段和提取阶段各包含一个文件)。对于 "卷积" 选择 "双伽马血流动力学响应函数" 从下拉列表中为两者选择相应选项。在广义线性模型(GLM)中,不要对任务的基线阶段或非激活部分进行建模。
注:HRF 代表血流动力学响应函数。通过将任务时程函数(task EV)与 HRF 进行卷积,可调整任务时程函数的时间进程,使其更符合大脑中预期由任务诱发的 BOLD 信号变化。 - 在注册选项卡中,检查 "扩展功能图像" 和 "主要结构图像" 用于两步注册。
- 选择受试者的共面T2加权结构像扫描数据作为第一步,此步骤中将功能数据配准至共面结构数据。通过点击该步骤下方第二个下拉框并选择6个自由度(DOF)来完成此步 "6 自由度".
- 接下来,将T2加权图像与高分辨率T1加权MPRAGE图像进行配准时,从下拉菜单中选择基于边界的配准(BBR)方法27.
注意:BBR 利用白质与灰质之间的强度差异来配准结构扫描与功能扫描,已被证明比 FLIRT 及其他替代方法表现更优。 - 在最后一步中,将高分辨率结构数据配准至标准MNI152模板时,选择12个自由度和线性变换 "12 自由度".
注意:当第4节中的所有步骤完成后,功能数据将被预处理并可用于进一步分析。
- 在数据标签页中,单击 "添加4D数据" 导航至运动校正并提取脑部的文件。将TR设为2.5 s(对应所采集的功能序列的TR)。使用默认的高通滤波器(设置为100 s)。
5. 海马种子
- 使用 FSL 的 FMRIB 集成配准与分割工具(FIRST)分割算法,在每位参与者的高分辨率结构像空间中生成左侧海马的掩模图像28。
注意:其他区域(包括右侧海马)也可作为进一步分析中有趣且有效的种子区域。 - 使用统计软件平台编写代码,计算该结构在前后方向上前三分之一和后三分之一的长度29。具体而言,利用海马体积掩模在前后平面上的长度,确定划分该平面前、后三分之一的坐标位置。
注意:最近发表的一种沿海马长轴进行分割的方法,可能作为种子区域构建的替代方案30。 - 根据上述坐标,创建前部和后部海马掩模图像。使用 FEAT 输出结果中配准目录下的“example_func2highres”变换矩阵,将前部和后部海马掩模配准至个体原始功能像空间。
注意:采用前、后三分之一的方法可避免在配准至功能空间后,两个海马种子区域之间的信号模糊。已有研究表明,海马沿长轴存在功能特异性31,32,33,34。前部区域主要为输入区域,与信息编码相关;而后部海马则为输出区域,与记忆提取和巩固相关35,36,37。因此,使用这些区域可评估在记忆任务的编码与提取阶段,前部与后部海马的功能参与差异。 - 使用 FSL 的平均时间序列工具(fslmeants),从前部和后部海马种子区域中提取去噪后的平均时间序列信号(图 1)。按照程序说明,将前部或后部海马种子区域作为掩模,将去噪后且已预处理的功能数据作为主图像进行提取。
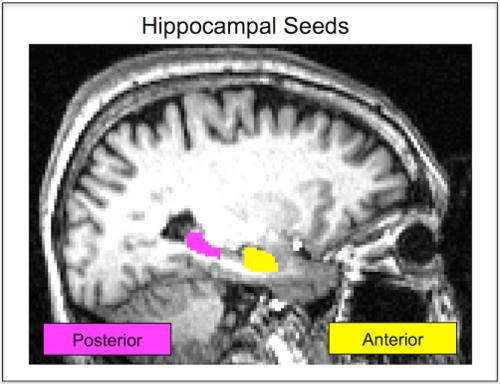
图1:海马种子区域。 在个体原生空间中,单个受试者的前部海马种子区域以黄色显示。同一受试者的后部海马种子区域以粉红色显示。种子区域在每位受试者独特的结构像中定义,随后配准至其功能扫描图像。种子区域始终不在标准化空间中,这有助于提高海马分割的准确性。本图已获许可转载12。 请点击此处查看该图的放大版本。
6. 蛋白质-蛋白质相互作用模型
- 使用 FSL FEAT 的图形用户界面加载预处理后的功能数据。
- 在“数据”选项卡中,选择“filtered_func_data”去噪图像(第4节步骤的输出结果)作为输入文件。在“预统计”选项卡中,将头动校正和脑提取设置为“无”。取消勾选时间滤波和空间平滑的复选框。
- PPI 模型设置(表 1)。
- 在“统计”选项卡中,选择“完整模型设置”。在“EVs”选项卡中,添加一级模型中的所有解释变量(EVs):6个头动校正EVs、来自 FSL Motion Outliers 的混淆EV矩阵,以及任务时序EVs。点击向上箭头添加EVs。通过点击向上箭头,将种子区域的生理时间序列(第5.4步中 fslmeants 输出的文本文件)作为无关协变量加入该模型。
- 创建PPI项。
- 在基本形状菜单中选择“交互”,然后选择种子时间序列EV和一个任务EV。对于“设为零”选项,种子时间序列EV选择“均值”(mean),任务EV选择“中心化”(centre)。对其他任务阶段重复此操作。每个种子区域需运行单独的模型。
注意:这些新的EVs即为所选任务阶段(psycho)与种子区域(physio)的PPI项。在本研究中,每个PPI模型中均包含一个编码阶段的PPI项和一个提取阶段的PPI项。“中心化”选项确保区组设计任务中的“开”和“关”阶段被平等对待。“均值”选项始终应用于种子时间序列,表示从此回归变量中减去其均值。
- 在基本形状菜单中选择“交互”,然后选择种子时间序列EV和一个任务EV。对于“设为零”选项,种子时间序列EV选择“均值”(mean),任务EV选择“中心化”(centre)。对其他任务阶段重复此操作。每个种子区域需运行单独的模型。
- 在“对比与F检验”选项卡中,通过在相应EV单元格中输入“1”来建模以下特定效应:psych_enc(编码任务阶段)、psych_ret(提取任务阶段)、phys(种子时间序列)、PPI_enc(种子与编码的PPI)、PPI_ret(种子与提取的PPI)。最后,输入“-1”以对每个任务阶段建模负向PPI效应。
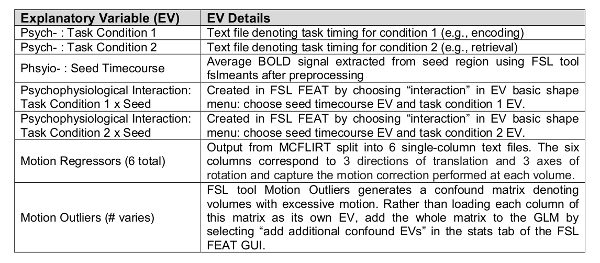
表1:gPPI 模型设置。
7. 组间比较
- 在 FSL FEAT 中选择“高级分析”(higher-level analysis),以运行简单的组水平模型,对每种任务-种子区组合下的 APOEε4 携带者与非携带者进行比较。
注意:这些比较用于生成相关的组水平 4D 残差图像(“res4d”),以估算数据集的平滑度。该组间比较的统计显著性结果有效,但在下述步骤中,将描述一种使用 AFNI 和 SPM8 结合蒙特卡洛模拟设定显著性簇最小阈值的方法。 - 使用功能神经影像分析工具(Analysis of Functional Neuroimaging, AFNI)
- 在命令行中使用 AFNI 的 3dFWHMx 工具(需使用 2015 年 12 月之后的版本),以估算通过 FSL 生成的组水平 4D 残差图像的平滑度。
注意:AFNI 的 3dClustSim 工具在 2015 年 5 月发现并修复了一个漏洞。2015 年 12 月,AFNI 的 3dFWHMx 被更新,以更准确地建模自相关性。因此,应使用 2015 年 12 月或之后发布的这些工具版本。 - 使用 AFNI 的 3dClustSim 工具(需使用 2015 年 12 月之后的版本),确定在不同体素水平阈值下达到显著性的最小簇大小。在调用 3dClustSim 命令时,需包含上一步得到的平滑度估计值。根据 3dClustSim 生成的表格,结合研究假设中对效应高度和范围的预期,选择适当的体素水平阈值及相应的最小簇大小。
注意:通常情况下,较大的簇可最小化假阳性。
- 在命令行中使用 AFNI 的 3dFWHMx 工具(需使用 2015 年 12 月之后的版本),以估算通过 FSL 生成的组水平 4D 残差图像的平滑度。
- 使用统计参数映射软件(Statistical Parametric Mapping, SPM8)
- 在 SPM8 图形用户界面(GUI)中,选择“指定二级分析”(specify 2nd-level)。批处理编辑器将打开。在“设计”(design)下选择“双样本 t 检验”(two sample t-test)。导航至第一组(APOEε4 携带者)的参数估计图像所在目录,并通过点击选择这些图像。接着,添加第二组(APOEε4 非携带者)的图像。点击绿色播放按钮运行该比较。
- 返回 SPM GUI,选择“估计”(estimate),并导航至上一步生成的 SPM.mat 文件,以运行模型估计过程。
- 选择“结果”(results),并运行组间比较对比:APOEε4 携带者 > APOEε4 非携带者,APOEε4 非携带者 > APOEε4 携带者。
- 点击“定义新对比”(define a new contrast),在“类型”(type)下选择“T-对比”(T-contrast),在“对比”(contrast)框中输入“1 -1”,用于 APOEε4 携带者 > APOEε4 非携带者。点击“完成”(done)。在“掩模应用”(Apply Masking)中选择“无”(none),并根据步骤 7.2.2 的确定结果,手动设置体素水平阈值和最小簇大小。对于 APOEε4 非携带者 > APOEε4 携带者,输入“-1 1”。
注意:在本研究中,采用的体素水平阈值为 p < 0.005,簇水平阈值设为 alpha < 0.05。
- 点击“定义新对比”(define a new contrast),在“类型”(type)下选择“T-对比”(T-contrast),在“对比”(contrast)框中输入“1 -1”,用于 APOEε4 携带者 > APOEε4 非携带者。点击“完成”(done)。在“掩模应用”(Apply Masking)中选择“无”(none),并根据步骤 7.2.2 的确定结果,手动设置体素水平阈值和最小簇大小。对于 APOEε4 非携带者 > APOEε4 携带者,输入“-1 1”。
访问受限。请登录或开始试用以查看此内容。
结果
由于存在两种不同的主动任务阶段(编码和提取)以及两个种子区域(海马前部和海马后部),因此每组需报告四种条件下的结果。组内任务激活图谱(此处未显示,参见 Harrison et al., 201612)显示,在两组实验组中,枕叶、听觉皮层、顶叶的广泛区域、额叶语言区、颞上回以及尾状核(在提取阶段更为显著)在编码和提取过程中均表现出显著的BOLD信号升高。组内PPI分析表明,无论是APOEε4携带者还是非携带者,与海马前部或后部种子区域之间的功能连接均无显著增强。组内PPI分析发现,APOEε4携带者在两种任务条件下、针对两个海马亚区均出现功能连接显著降低(图2)。而在APOEε4非携带者中,仅在编码阶段与海马后部之间观察到功能连接的显著降低(图2)。正向与负向的PPI图谱表明,在记忆任务过程中,APOEε4携带者与非携带者在海马功能连接变化模式上存在差异。为了确定该差异是否具有统计学意义,有...
访问受限。请登录或开始试用以查看此内容。
讨论
早期基于任务的fMRI研究旨在揭示特定认知过程或认知需求与BOLD信号相对于基线测量值变化之间的统计学关系。这种传统方法有助于识别大脑中受实验任务调节的特定活动区域。相比之下,PPI分析主要关注由任务诱发的认知过程所导致的功能连接性(即活动同步性)的调节。PPI测量的是在特定认知背景下,一个预定义的兴趣区域(种子区)与其他脑区之间的上下文依赖性功能连接,而不仅仅是局部区域的活动增强或减弱。种子区的选择必须基于假设,因为当种子区的活动在单变量框架下受到任务诱发的认知背景调节时,PPI分析才能达到最佳效果。随后,可利用PPI框架探讨在特定任务情境(如记忆编码或提取)下,种子区的活动如何与其他脑区的活动同步性增强或减弱。因此,组间差异仅限于由特定任务阶段所调节的种子区与其他区域之间的功能连接性变化。
深入理解广义线性模型(GLM)对于实施心理生理交互(PPI)分析至关重要。一项完整的组间比较PPI研究包含三个层次的线性建模:第一层(预处理、任务和运动建模)、中层PPI模型(添加种子区域时间进程和任务交互效应变量)以及高层组间比较模型(对参数估计值进行组间对比)。在每一步中,前一步的输出图...
访问受限。请登录或开始试用以查看此内容。
披露
DGM 是 Biospective, Inc. 的员工。Biospective, Inc. 未处理本文展示的任何数据。
致谢
本工作由美国国家衰老研究所资助(SYB 获资助号 R01AG013308,TMH 获资助号 F31AG047041)。作者使用了由加州大学洛杉矶分校数字研究与教育研究所的研究技术组提供的 Hoffman2 共享集群相关的计算和存储服务。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 3T 磁共振成像扫描仪 | Siemens Medical Solutions | MAGNETOM Trio, A Tim System | 3T MRI 扫描仪 |
| FSL(FMRIB 软件库) | 牛津大学 | 版本 6.0 | 功能成像处理软件 |
| AFNI(功能神经影像分析) | 美国国立卫生研究院国家精神卫生研究所 | 2015 年 5 月之后的任意版本 | 功能成像处理软件 |
| SPM8(统计参数映射) | 伦敦大学学院 | SPM8 | 功能成像处理软件 |
| Matlab 软件 | The Mathworks, Inc | 版本 R2012a | 计算软件 |
| SDS 软件 | Applied Biosystems, Inc | 7900HT Fast Real-Time PCR 系统 | 实时 PCR |
| Taqman 检测试剂 | ThermoFisher Scientific | 针对特定 SNP | SNP 分型 |
参考文献
- Sporns, O., Tononi, G., Kötter, R. The Human Connectome: A Structural Description of the Human Brain. PLoS Comput Biol. 1 (4), 42(2005).
- Friston, K. J., Buechel, C., Fink, G. R., Morris, J., Rolls, E., Dolan, R. J. Psychophysiological and modulatory interactions in neuroimaging. NeuroImage. 6 (3), 218-229 (1997).
- McLaren, D. G., Ries, M. L., Xu, G., Johnson, S. C. A generalized form of context-dependent psychophysiological interactions (gPPI): a comparison to standard approaches. NeuroImage. 61 (4), 1277-1286 (2012).
- O'Reilly, J. X., Woolrich, M. W., Behrens, T. E. J., Smith, S. M., Johansen-Berg, H. Tools of the trade: psychophysiological interactions and functional connectivity. Soc Cogn Affect Neurosci. 7 (5), 604-609 (2012).
- Moody, T. D., Sasaki, M. A., et al. Functional connectivity for face processing in individuals with body dysmorphic disorder and anorexia nervosa. Psychol Med. 45 (16), 3491-3503 (2015).
- Simard, I., Luck, D., Mottron, L., Zeffiro, T. A., Soulières, I. Autistic fluid intelligence: Increased reliance on visual functional connectivity with diminished modulation of coupling by task difficulty. NeuroImage Clin. 9, 467-478 (2015).
- Yan, L. -R., Wu, Y. -B., Zeng, X. -H., Gao, L. -C. Dysfunctional putamen modulation during bimanual finger-to-thumb movement in patients with Parkinson's disease. Front Hum Neurosci. 9, 516(2015).
- Cole, M. W., Reynolds, J. R., Power, J. D., Repovs, G., Anticevic, A., Braver, T. S. Multi-task connectivity reveals flexible hubs for adaptive task control. Nat Neurosci. 16 (9), 1348-1355 (2013).
- McLaren, D. G., Sperling, R. A., Atri, A. Flexible modulation of network connectivity related to cognition in Alzheimer's disease. NeuroImage. 100, 544-557 (2014).
- Morawetz, C., Bode, S., Baudewig, J., Heekeren, H. R. Effective amygdala-prefrontal connectivity predicts individual differences in successful emotion regulation. Soc Cogn Affect Neurosci. , 169(2016).
- Takashima, A., Bakker, I., van Hell, J. G., Janzen, G., McQueen, J. M. Richness of information about novel words influences how episodic and semantic memory networks interact during lexicalization. NeuroImage. 84, 265-278 (2014).
- Harrison, T. M., Burggren, A. C., Small, G. W., Bookheimer, S. Y. Altered memory-related functional connectivity of the anterior and posterior hippocampus in older adults at increased genetic risk for Alzheimer's disease. Hum Brain Mapp. 37 (1), 366-380 (2016).
- Wechsler, D. Wecshler Adult Intelligence Scale, 3rd Edition. , Harcourt Assessement. San Antonio, TX. (1997).
- Cauthen, N. R. Verbal fluency: normative data. J Clin Psychol. 34 (1), 126-129 (1978).
- Goodglass, H. P., Kaplan, E. P. Boston Naming Test, 3rd Edition. , (2001).
- Buschke, H., Fuld, P. A. Evaluating storage, retention, and retrieval in disordered memory and learning. Neurol. 24 (11), 1019-1025 (1974).
- Osterrieth, P. A. Le test de copie d'une figure complex: Contribution à l'étude de la perception et de la memoir. Archives de Psychologie. 30, 286-356 (1944).
- Hamilton, M. The assessment of anxiey states by rating. Br J Med Psychol. 32, (August) 50-55 (1959).
- Hamilton, M. A rating scale for depression. J Neurol Neurosurg Psychiatry. 23, 56-62 (1960).
- Folstein, M. F., Robins, L. N., Helzer, J. E. The Mini-Mental State Examination. Arch Gen Psychiatry. 40 (7), 812(1983).
- O'Brien, D., Campbell, K. A., Morken, N. W., Bair, R. J., Heath, E. M. Automated Nucleic Acid Purification for Large Samples. J Lab Autom. 6 (2), 67-70 (2001).
- Lehmann, M., Ghosh, P. M., et al. Greater medial temporal hypometabolism and lower cortical amyloid burden in ApoE4-positive AD patients. J Neurol Neurosurg Psychiatry. 85 (3), 266-273 (2014).
- TaqMan® SNP Genotyping Assays User Guide. , Thermo Fisher Scientific. Available from: https://tools.thermofisher.com/content/sfs/manuals/TaqMan_SNP_Genotyping_Assays_man.pdf (2014).
- Bookheimer, S. Y., Strojwas, M. H., et al. Patterns of brain activation in people at risk for Alzheimer's disease. N Engl J Med. 343 (7), 450-456 (2000).
- Jenkinson, M., Bannister, P., Brady, M., Smith, S. Improved optimization for the robust and accurate linear registration and motion correction of brain images. NeuroImage. 17 (2), 825-841 (2002).
- Smith, S. M. Fast robust automated brain extraction. Hum Brain Mapp. 17 (3), 143-155 (2002).
- Greve, D. N., Fischl, B. Accurate and robust brain image alignment using boundary-based registration. NeuroImage. 48 (1), 63-72 (2009).
- Patenaude, B., Smith, S. M., Kennedy, D. N., Jenkinson, M. A Bayesian model of shape and appearance for subcortical brain segmentation. NeuroImage. 56 (3), 907-922 (2011).
- Learn MATLAB Basics. , Available from: https://www.mathworks.com/support/learn-with-matlab-tutorials.html?s_tid=hp_ff_I_tutorials (2017).
- Lerma-Usabiaga, G., Iglesias, J. E., Insausti, R., Greve, D. N., Paz-Alonso, P. M. Automated segmentation of the human hippocampus along its longitudinal axis. Hum Brain Mapp. 37 (9), 3353-3367 (2016).
- Salami, A., Eriksson, J., Nyberg, L. Opposing effects of aging on large-scale brain systems for memory encoding and cognitive control. J Neurosci. 32 (31), 10749-10757 (2012).
- Schacter, D. L., Wagner, A. D. Medial temporal lobe activations in fMRI and PET studies of episodic encoding and retrieval. Hippocampus. 9 (1), 7-24 (1999).
- Strange, B., Dolan, R. Functional segregation within the human hippocampus. Mol Psychiatry. 4 (6), 508-511 (1999).
- Strange, B. A., Fletcher, P. C., Henson, R. N., Friston, K. J., Dolan, R. J. Segregating the functions of human hippocampus. Proc Natl Acad Sci U S A. 96 (7), 4034-4039 (1999).
- Eldridge, L. L., Engel, S. A., Zeineh, M. M., Bookheimer, S. Y., Knowlton, B. J. A dissociation of encoding and retrieval processes in the human hippocampus. J Neurosci. 25 (13), 3280-3286 (2005).
- Strange, B. A., Witter, M. P., Lein, E. S., Moser, E. I. Functional organization of the hippocampal longitudinal axis. Nat Rev Neurosci. 15 (10), 655-669 (2014).
- Zeineh, M. M., Engel, S. A., Thompson, P. M., Bookheimer, S. Y. Dynamics of the hippocampus during encoding and retrieval of face-name pairs. Science. 299 (5606), 577-580 (2003).
- Nieuwenhuis, S., Forstmann, B. U., Wagenmakers, E. -J. Erroneous analyses of interactions in neuroscience: a problem of significance. Nat Neurosci. 14 (9), 1105-1107 (2011).
- Cisler, J. M., Bush, K., Steele, J. S. A comparison of statistical methods for detecting context-modulated functional connectivity in fMRI. NeuroImage. 84, 1042-1052 (2014).
- Friston, K. J., Harrison, L., Penny, W. Dynamic causal modelling. NeuroImage. 19 (4), 1273-1302 (2003).
访问受限。请登录或开始试用以查看此内容。
重印与许可
