一旦神经组织被从体内取出,其会受到环境条件的显著影响,导致在6至8小时后逐渐降解。通过一种独特的孵育方法,可对组织的细胞外环境进行密切监测和精确调控,从而将组织活性显著延长至>24小时。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
急性神经组织制备物,如脑切片和视网膜全层标本,通常在解剖后仅能维持6 - 8小时。这限制了实验时间,并增加了每项研究所需的动物数量。这一限制尤其影响需要长时间预孵育并使用浴式施加染料的实验方案,例如钙成像。切片后3 - 4小时内细菌呈指数级增长,与组织健康状况下降密切相关。本研究描述了一种方法,可 限制急性制备物中细菌的增殖,从而在无需抗生素、无菌操作或含生长因子的组织培养基的条件下,将神经组织维持在可存活状态超过>24小时。通过将细胞外液循环经过紫外照射,并将组织置于定制的保存室中,保持温度为15 - 16 °C,解剖后>24小时的组织在电生理特性或通过细胞内钙染料检测的钙信号方面均未表现出差异。这些方法不仅将延长使用急性神经组织的研究者的实验时间,还将减少完成实验目标所需的动物数量,并为急性神经组织的孵育建立黄金标准。
引言
电生理学和功能成像(钙离子、电压敏感性染料)是神经科学中最常用的两种实验技术。本文将探讨脑切片和视网膜全层标本,这些制备方法可在不受麻醉剂或肌肉松弛剂干扰的情况下,用于研究电生理特性和突触连接性。与细胞培养物或组织匀浆不同,脑切片和视网膜全层标本能保持其结构完整性,从而允许对特定神经环路和脑网络进行研究1离体组织记录相较于其他方法具有以下优势 体内 通过消除与心跳和呼吸相关的运动,可获得稳定的记录。此外,直接可视化技术能够靶向特定类型的细胞,并实现药理学工具的局部应用 2,3.
在视网膜全层标本中进行膜片钳记录和钙染料负载时,内界膜(ILM)的存在带来了困难,因为该膜覆盖在视网膜神经节细胞(RGC)层表面,阻碍了对细胞的直接接触。通常需要使用玻璃移液管刮除该膜,以便直接应用膜片钳移液管并在单个细胞上形成吉欧姆密封。此外,浴施加的钙 染料无法穿过内界膜,因此必须将其注射至该膜下方4,或通过视神经注射后经逆行运输5,或通过电穿孔方式导入组织6。此外,在使用视网膜色素变性的小鼠模型(rd/rd 小鼠)时,内界膜更厚且更难穿透。本文中,我们采用酶消化法去除内界膜7,从而实现广泛的钙 染料负载,并直接接触视网膜神经节细胞以进行膜片钳记录8。
成功的脑片或视网膜全层记录依赖于活性神经组织的解剖与孵育。通常,组织在实验当天早晨获取,并在人工脑脊液(aCSF)中孵育,直至用于记录。一般情况下,组织在6至8小时内保持活性,超过此时间窗口后活性显著下降。然而,脑片和视网膜全层制备通常产生的组织量超过这一短暂时间内可完成记录的需要,因此实验结束时常有组织被丢弃,后续实验日需重新进行解剖。这意味着需使用新的实验动物,并重复约2小时的准备、解剖或染色过程。以下方案介绍了一种可将神经组织存活时间延长至24小时以上的方法,从而减少动物使用数量,并提供更长的实验时间。通过记录电生理特性和钙动力学评估组织活性,结果显示,延长孵育时间后的组织与新鲜组织在这些特性上无明显差异。 <4 h 和 >解剖后24小时
这些结果表明,不仅在长时间孵育后单个细胞的特性仍然保持完整且具有功能,而且通过钙成像和电生理记录评估的神经网络活动在解剖后超过24小时也未发生改变>24 h postdissection。此外,我们证明钙离子染料可在细胞内长时间留存,而不会引起任何不利影响。本方案的应用表明,只要外部环境得到高度调控,急性神经组织中神经元的功能活性便可维持较长时间。此外,由于不同实验室之间因孵育方案不同而导致组织存活率差异较大,该方法为应采用的理想参数建立了金标准,以降低急性神经组织健康状态的变异性。
访问受限。请登录或开始试用以查看此内容。
方案
以下方案描述了C57BL/6和C3H/He(视网膜变性)小鼠神经组织的制备过程,但类似技术也可应用于其他物种。所有动物均健康,并在标准的温度、湿度、12小时明暗循环条件下饲养,自由获取食物和水,且未施加任何有意的压力刺激。所有实验均经西悉尼大学动物护理与伦理委员会批准,并遵循动物使用与护理指南(动物研究许可号 #A9452、#A10396 和 #A8967)进行。
1. 脑切片制备
- 通过吸入异氟烷(5%)麻醉动物,并使用啮齿类动物断头器进行断头。迅速取出脑组织,方法如前所述9,并将其置于冰冻的生理溶液(aCSF)中,溶液成分(单位为 mM)如下:125 NaCl、2.5 KCl、1 MgCl2、1.25 NaH2PO4、2 CaCl2、25 NaHCO3、25 葡萄糖,并用碳合气(95% O2/5% CO2 混合气体)饱和(310 mOsm;pH 7.4)。
- 使用振动切片机在目标区域切割厚度为 300 µm 的脑片。
- 将脑片转移至自行设计的孵育系统中,该系统可密切监测并控制 pH 值(pH 7.2 - 7.4)、碳合气流速和温度,具体如前所述10,11。
- 将孵育 chamber 初始温度设为 35 °C,维持 15 - 30 分钟,然后如图 1C所示缓慢降温至 15 - 16 °C。随后将脑片保留在孵育系统中,直至用于电生理记录或成像实验。
注意:若脑片将用于钙成像实验,应在将组织温度降至室温以下之前完成以下步骤。
2. 视网膜铺片制备与内界膜去除
- 在常规实验室光照条件或弱红光/红外光下制备视网膜全层铺片。
- 通过颈椎脱位处死动物,立即摘除眼球。沿锯齿缘做一小切口,并将眼球置于Ames培养基或含以下成分的aCSF中(mM):125 NaCl、25 NaHCO₃3,3 KCl,2 CaCl2,1 MgCl2,10 葡萄糖,0.5 L-谷氨酰胺,并用碳氧混合气体(95% O2/5% CO₂2 混合物;约300 mOsm;pH 7.4),室温下。
- 立即用小剪刀沿锯齿缘剪下角膜、晶状体和玻璃体,并用镊子取下晶状体和玻璃体。将组织置于室温下的孵育系统中。
注意:视网膜组织在眼球杯中经缓慢降温至15–16 °C后可维持存活 >24小时,直至需要时取出。 - 为去除内界膜(ILM),将含有视网膜的眼杯转移至一个小玻璃瓶中,瓶内含有含30 U/mL木瓜蛋白酶、1 mM L-半胱氨酸、0.5 mM EDTA和0.005% DNase的Earl's平衡液 盐溶液(BSS)在37°C下孵育20分钟。通入95% O₂2/5% CO₂2 通过瓶盖向溶液中加入,但不要产生气泡。若使用幼龄动物的组织(<6 周后,将溶液稀释至一半浓度。
- 通过将组织置于含卵类粘蛋白(10 mg/mL)和牛血清白蛋白(BSA,10 mg/mL)的Earle's BSS溶液中孵育10分钟,以终止酶消化反应。在转移至孵育系统前,用aCSF充分洗涤组织,并将温度降至15–16 °C。
- 在需要前,将视网膜组织保留在眼杯中。转移至显微镜前,将视网膜从眼杯中分离,并用刀片切成4块。若需完整视网膜,可在视网膜周边做四个小切口,使其能够展平。
注意:进行成像实验时,应在转移至孵育系统前用钙染料加载,详见下文。
3. 在培养箱中维持组织
- 将组织置于主腔室中,该腔室内含有用于测量 pH 和温度的探针(图 1A, B)。
- 通过第二个腔室(UVC 腔室,结构如前所述12)循环 aCSF,该腔室与主腔室隔离,并暴露于 1.1 W 的 UVC 光(254 nm,5W/2P 紫外线杀菌灯)下,以消除溶液中漂浮的细菌(图 1A)。使用可编程定时器控制 UVC 光照时间,通过随机功能在每 15 - 30 分钟内于 15 至 26 分钟之间的不同时间点开启,以避免 aCSF 过度加热。
- 将 UVC 腔室的流速设定为 12 mL/min,如先前报道12。用铝箔覆盖 UVC 腔室,以防止 UVC 光线逸出腔室外,从而避免对神经组织造成损伤。
注意:对于暗适应的视网膜组织,应使用定制的遮光罩覆盖主腔室,以隔绝光线。 - 使用蠕动泵使溶液(aCSF)在两个腔室之间循环,并利用帕尔贴热电制冷板对主腔室进行冷却或加热,使其达到 0 - 50 °C 范围内的目标温度。为获得最佳组织孵育效果,建议长期存活实验采用 15 - 16 °C。
4. 钙离子染料负载
- 根据研究人员的偏好选择钙离子染料。此处我们使用 Fura-2AM、Fluo-8AM 或 Fluo-4AM。但该方法也可适用于其他染料:将钙离子染料溶解于 DMSO 中,配制成 1 mM 溶液,并加入 1% 嵌段共聚物(例如,普流尼克酸-127),最终体积为 50 µL,超声处理 10 分钟。
- 将上述溶液加入 aCSF 中,使终浓度为 10 µM,并含 0.01% 嵌段共聚物(用于脑片);或 20 µM(用于视网膜)并含 0.02% 嵌段共聚物(用于视网膜)。对于木瓜蛋白酶处理的视网膜以及幼年动物的脑片,将组织置于染料溶液中,在 37 °C(Fura-2 AM)或室温(Fluo-4 AM;Fluo-8 AM)下孵育 45 分钟。
- 对于成年动物(>12 周龄),直接将染料溶液(50 µL)滴加到脑片上,孵育 75 分钟,以促进染料更好地渗透至深层组织。
- 为确保染料孵育期间浸没式脑片的充分供氧,准备一个带密封盖的玻璃加载室(直径 2.5 cm,高 3.5 cm 的圆形瓶),其中加入用 2.5 mL aCSF 稀释的钙离子染料,并持续通入 95% O2/5% CO2 混合气体进行氧合。切勿鼓泡。
- 染料加载完成后,用 aCSF 洗涤组织,然后转移至孵育系统,缓慢降温至 15–16 °C,直至实验使用。
5. 电生理记录与成像
- 将组织置于显微镜下的浸没式记录室中,并以4 - 5 mL/min的流速灌注含氧人工脑脊液(aCSF),温度可选择室温(~22 °C)或生理温度(~35 °C)。使用自制的“琴弦”固定组织,该“琴弦”由尼龙丝或金丝拉伸并粘合在U形金丝或铂丝上制成。
- 进行电生理记录:
- 使用微电极拉制仪,从1.5 mm(内径1.19 mm)的硼硅酸盐玻璃毛细管制备记录电极,使其最终电阻为5-6 MΩ。
- 向电极内灌注3 - 4 µL的胞内液(配方见前文13),并通过CCD相机在红外差分干涉对比(IR-DIC)下观察细胞。胞内液的成分应根据具体实验需求进行精确优化,以实现预期的实验结果。
- 使用显微操作器将电极移至细胞膜表面,同时通过电极夹上的吸力接口持续施加正压。由于视网膜的内界膜(ILM)已被去除,无需预先刮除膜组织。当电极接触细胞后,施加轻柔的负压以形成吉欧姆级封接,随后施加短暂的负压破裂细胞膜。
- 根据实验需要,采用标准技术进行全细胞电流钳或电压钳记录。
- 钙成像:
- 进行Fura-2的比率成像时,使用超高速波长切换器提供340 nm和380 nm的激发光。将单个细胞发出的荧光通过510 ±20 nm的发射滤光片,并用高灵敏度、高速数字相机采集信号。
- 对于Fluo-4的单波长激发,使用460 - 490 nm的带通滤光片过滤激发光,使用515 - 550 nm的带通滤光片过滤发射光。为实现最快且最灵敏的记录,应使用高速数字相机。根据需要采集图像。
- 按照前文所述方法8,14,测量荧光强度随时间的变化,可采用单波长(Fluo-4)或波长比值法(Fura-2)进行分析。
访问受限。请登录或开始试用以查看此内容。
结果
在孵育过程中,严格调控人工脑脊液(aCSF)中的细菌载量和温度对于维持神经组织的活性至关重要。可通过UVC光照射以及将aCSF温度维持在15 - 16 °C来优化条件(图1)。此外,人工脑脊液参数标记(APS;图1C)可为实验人员提供环境条件(pH值和温度)的记录,从而为神经组织孵育时的参数设定提供金标准,遵循该标准可减少实验间的变异性。
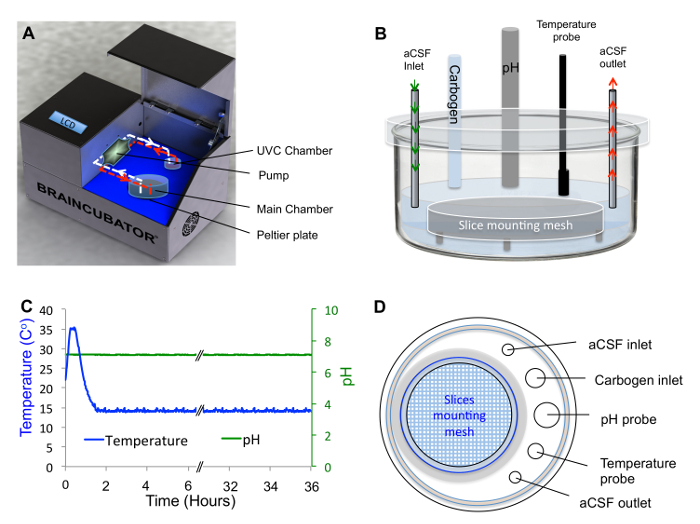
图1. 一种可精确调控组织环境的孵育系统。A, 孵育系统的示意图,由制冷帕尔贴板、主腔室、蠕动泵和UVC腔室组成。B,主腔室的侧视图,显示aCSF的入口和出口位置,...
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍了一种孵育方法,可延长急性神经组织在成像和电生理实验中的活性,从而减少实现实验目标所需的动物数量。神经组织随时间推移而退化的两个主要过程为:i)细菌水平升高及其伴随释放的细菌内毒素增加;ii)继创伤性切片操作后出现的兴奋性毒性10由于急性神经组织对外界环境缺乏保护能力,因此必须通过密切监测pH值、温度和细菌水平,严格调控组织环境,以维持细胞活性及神经网络的完整性。组织分离及处理(包括木瓜蛋白酶消化、钙离子染料负载)可能耗时超过2小时,导致实际可用于实验的时间缩短。然而,由于组织可在孵育系统中保存 >24 小时内活力未出现可测量的下降7,8,此制备步骤仅需完成一次即可获得 >24 小时的结果。作为 3R 策略的一部分 (替代、减少、优化) 旨在为动物的伦理使用提供指导原则16该方法将对减少此类实验中动物的使用数量产生重大影响。
消化...
访问受限。请登录或开始试用以查看此内容。
披露
Yossi Buskila 和 Paul Breen 宣布他们是 PAYO Scientific Pty Ltd 的共同所有者,该公司专门从事急性神经组织孵育系统的研发。其他所有作者均声明与本研究无任何经济利益或潜在的利益冲突。
致谢
感谢 Colin Symons 和 James Wright 提供的技术支持。本工作由西悉尼大学(WSU)的种子基金资助项目以及西悉尼大学创新办公室资助。M.C. 获得了澳大利亚研究委员会(ARC)博士后研究员项目(DECRA)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 氯化钠 | Sigma Aldrich VETEC | V800372 | |
| 氯化钾 | Sigma Aldrich | P9333 | |
| N-甲基-D-葡糖胺 | Sigma Aldrich | M2004 | |
| D-葡萄糖 | Sigma Aldrich | G5767 | |
| 碳酸氢钠 | Sigma Aldrich | S6014 | |
| 磷酸二氢钠 | Sigma Aldrich | S2554 | |
| 氯化镁 | Sigma Aldrich | M9272 | |
| 氯化钙 | Sigma Aldrich | 223506 | |
| 木瓜蛋白酶解离系统 | Worthington | LK003150 | |
| 无水二甲基亚砜 | Sigma Aldrich | 276855 | |
| Pluronic F-127 低紫外吸收* | Life technologies | P-6867 | DMSO 中的 20% 溶液 |
| Fura-2 AM | Anaspec | 84017 | |
| Fluo-4 AM | Life Technologies | F23917 | |
| Fluo-8 AM | Abcam | Ab142773 | |
| 振动切片机 | Leica Biosystem | VT1200 S | 配备 Leica’s Vibrocheck™ 测量装置 |
| 防震台 | Kinetic Systems Vibraplane | Vibraplane 9100/9200 | |
| 固定载物台直立显微镜 | Olympus | BX51WI | |
| 显微镜物镜 | Olympus | XLUMPlanFLN 20x/1.00w | 20X |
| 显微镜物镜 | Olympus | LUMPlanFLN 60x/1.00w | 60X |
| CCD 相机 | Andor | Ixon + | |
| 高速波长切换器 | Sutter instrument | Lambda DG-4 | |
| 膜片钳放大器 | Molecular Devices | MultiClamp 700B | |
| 数据采集系统 | Molecular Devices | Digidata 1440A | Axon Digidata® 系统 |
| 硼硅酸盐玻璃毛细管 | Sutter Instrument Co | BF150-86-10 | |
| 微电极拉制仪 | Sutter Instrument Co | P-97 | Flaming/Brown 型微管拉制仪 |
| 记录/灌流腔室 | Warner Instruments | RC-40LP | 低剖面开放式浴槽腔室 |
| 软件 | Molecular Devices | pClamp 10.2 | |
| Andor iQ 活细胞成像软件 | Andor | Andor iQ3 | |
| Braincubator | Payo Scientific | BR26021976 | www.braincubator.com.au |
| 帕尔贴热电制冷板冷却器 | TE Technology | CP-121 | |
| 温度控制器 | TE Technology | TC-36-25 RS232 |
参考文献
- Colbert, C. M. Preparation of cortical brain slices for electrophysiological recording. Meth mol biol. 337, Clifton, N.J. 117-125 (2006).
- Gibb, A., Edwards, F. Patch clamp recording from cells in sliced tissues. Microelect Techniq. , 255-274 (1994).
- Kantevari, S., Buskila, Y., Ellis-Davies, G. C. R. Synthesis and characterization of cell-permeant 6-nitrodibenzofuranyl-caged IP3. Photochem photobiol sci. 11 (3), 508-513 (2012).
- Blankenship, A. G., et al. Synaptic and Extrasynaptic Factors Governing Glutamatergic Retinal Waves. Neuron. 62 (2), 230-241 (2009).
- Sargoy, A., Barnes, S., Brecha, N. C., Perez De Sevilla Muller, L. Immunohistochemical and Calcium Imaging Methods in Wholemount Rat Retina. J Vis Exp. (92), e51396(2014).
- Kulkarni, M., et al. Imaging Ca2+ dynamics in cone photoreceptor axon terminals of the mouse retina. J Vis Exp. (99), e52588(2015).
- Velte, T. J., Masland, R. H. Action potentials in the dendrites of retinal ganglion cells. J neurophysiol. 81 (3), 1412-1417 (1999).
- Cameron, M., et al. Calcium imaging of AM dyes following prolonged incubation in acute neuronal tissue. PLoS ONE. 11 (5), (2016).
- Buskila, Y., Morley, J. W., Tapson, J., van Schaik, A. The adaptation of spike backpropagation delays in cortical neurons. Front Cell Neurosci. 7, (2013).
- Breen, P. P., Buskila, Y. Braincubator: An incubation system to extend brain slice lifespan for use in neurophysiology. Eng Med Biol Soc. , 4864-4867 (2014).
- Buskila, Y., Breen, P., Wright, J. Device for storing a tissue sample. WIPO Patent. , WO2015021513A1 (2015).
- Buskila, Y., et al. Extending the viability of acute brain slices. Sci Rep. 4, 4-10 (2014).
- Buskila, Y., Farkash, S., Hershfinkel, M., Amitai, Y. Rapid and reactive nitric oxide production by astrocytes in mouse neocortical slices. Glia. 52 (3), 169-176 (2005).
- Barreto-Chang, O. L., Dolmetsch, R. E. Calcium imaging of cortical neurons using Fura-2 AM. J Vis Exp. (23), e3-e5 (2009).
- Buskila, Y., et al. Enhanced Astrocytic Nitric Oxide Production and Neuronal Modifications in the Neocortex of a NOS2 Mutant Mouse. PLoS ONE. 2 (9), 9(2007).
- Russell, W. M. S., Burch, R. L. The Principles of Humane Experimental Technique. , Methuen. London, UK. (1959).
访问受限。请登录或开始试用以查看此内容。
重印与许可
