蛋白质通常包含多个可发挥不同细胞功能的结构域。基因敲除(KO)无法考虑这种功能多样性。本文中,我们报道了一种基于重组介导的盒式交换(RMCE)的结构-功能研究方法,该方法应用于基因敲除的胚胎干细胞,可实现对蛋白质不同功能结构域或变异体的分子解析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
在小鼠胚胎或小鼠胚胎干细胞(mESCs)中进行基因工程操作,可用来研究特定蛋白质的功能。蛋白质是细胞内的主要功能执行者,通常由多个功能结构域组成,并可能受到翻译后修饰的调控。在条件性或组成型敲除(KO)小鼠中,对整个蛋白质进行耗竭处理,往往忽略了这些功能多样性及调控机制。此前已有研究报道建立了一种mESC细胞系及其衍生的小鼠模型,其中在ROSA26(R26)位点插入了用于FLPe介导的重组依赖性盒式交换(RMCE)的对接位点。本文介绍一种结构-功能研究策略,可用于分子层面解析多结构域蛋白的不同功能特性。为此,需将RMCE兼容型小鼠与KO小鼠杂交,并从中分离出RMCE兼容型的KO mESCs。随后,可通过RMCE靶向技术将一系列潜在的挽救型表达构建体导入R26位点。候选的挽救型cDNA可通过重组克隆方法,便捷地插入靶向载体的RMCE位点之间。接着,将靶向载体与表达FLPe重组酶的质粒共同转染至KO mESCs中。RMCE可重新激活ROSA26对接位点中无启动子的新霉素抗性基因,从而实现对正确靶向事件的筛选。该方法可实现接近100%的高效靶向,支持以半高通量方式插入多个潜在的挽救型构建体。最终,可评估多种由R26启动子驱动的挽救型构建体是否能够恢复在亲本KO mESCs中所观察到的表型。本文以p120连环蛋白(p120ctn)KO mESCs为模型,利用拟胚体(EBs)中的内胚层分化作为表型读出指标,展示了该策略的概念验证性结构-功能研究。该方法有助于鉴定对特定蛋白KO表型起关键作用的功能结构域、潜在的下游信号通路以及与疾病相关的点突变。
引言
据估计,哺乳动物基因组包含约 20,000 个编码蛋白质的基因。选择性剪接和翻译后修饰进一步扩展了蛋白质的多样性。蛋白质具有模块化结构1 并且通常包含多个相互作用结构域,使其能够被招募到不同的蛋白质复合物中,并参与多种细胞过程2一个例子是名为 p120ctn 的多功能蛋白。p120ctn 由基因 Ctnnd1 基因,包含一个大的中央犰狳重复结构域,两侧分别为N端和C端区域。p120ctn的犰狳结构域可结合经典钙黏蛋白中高度保守的膜近端结构域,这些钙黏蛋白参与细胞间黏附,同时该结构域也能结合转录抑制因子Kaiso。p120ctn的N端结构域可与多种激酶、磷酸酶、小G蛋白RhoGTPases以及微管相关蛋白相互作用3有趣的是,由于选择性剪接,p120ctn 亚型可由四个不同的起始密码子产生4p120ctn 亚型1A是最长的,因其从最靠近5'端的起始密码子翻译而来,并包含全长的N端片段。在p120ctn 亚型3和4中,该N端片段分别被部分和完全删除。明确蛋白质(或蛋白质亚型)及其结构域在不同细胞功能中的精确作用仍是一项挑战。
在小鼠胚胎干细胞(mESCs)中进行基因靶向研究,可通过遗传学方法敲除相应基因来探究蛋白质功能,该技术已广泛应用于发育相关及疾病相关基因与通路的鉴定。这一反向遗传学领域的突破得益于小鼠胚胎干细胞分离技术以及基于同源重组的基因靶向技术的发展5。同源重组(HR)是一种在双链DNA断裂后,两个相似或相同的核酸分子之间交换DNA片段的过程。通常情况下,HR效率较低,因为双链DNA断裂事件较为罕见。近年来,利用位点特异性核酸酶可提高同源定向基因靶向的效率6,7,但遗憾的是,这些方法容易产生脱靶效应8。一种更为可靠的基因靶向技术是RMCE(重复介导的基因盒交换),该技术基于位点特异性重组系统,如Cre/loxP或FLPe/Frt系统。loxP和Frt序列分别来源于噬菌体bacteriophage P1和酵母Saccharomyces cerevisiae,长度为34 bp,包含一个决定位点方向的非对称8 bp序列。例如,一段DNA区域内两个loxP位点的相对方向将决定在Cre介导的重组过程中,被loxP包围的DNA片段是被切除还是发生倒位9。此外,若两个loxP位点位于不同染色体上,Cre还可引发染色体易位。RMCE技术利用的是彼此不发生交叉反应的异源特异性重组位点,这些位点已被整合至基因组特定位置。当存在一个供体质粒,其携带的DNA片段两侧含有与基因组位点匹配的异源特异性位点时,重组酶将通过双重同步易位机制将该DNA片段插入到与RMCE兼容的基因组位点(图1)。在此系统中,只有正确完成RMCE靶向的克隆才能获得药物抗性,这是因为进入的载体上含有一个启动子,可恢复受体细胞R26基因组中原本“被捕获”且无启动子的新霉素抗性基因(NeoR)的表达(图1)10,11。因此,该方法具有极高的靶向效率,通常接近100%11,12。综上所述,基于RMCE的基因靶向技术效率极高,适用于基因结构与功能的研究;但其前提是需要预先构建好工程化的基因组位点。
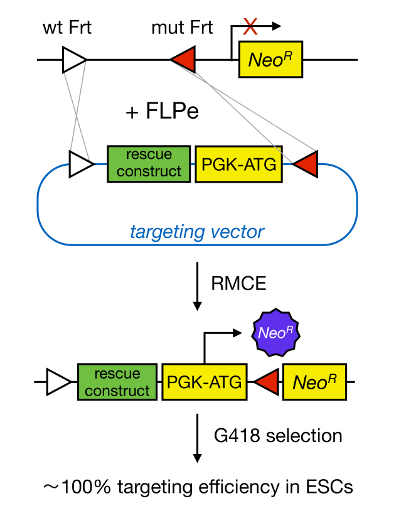
图1. RMCE介导的靶向示意图。 RMCE技术可实现将外源靶向载体中的DNA片段置换到基因组特定位点,前提是两者均含有两个异源的Frt位点(图中以白色和红色三角形表示)。此外,经改造的基因组位点包含一个无启动子且截短的新霉素抗性(NeoR)基因。通过在导入的DNA片段中提供启动子和起始密码子,只有正确的重组事件才能恢复新霉素抗性,从而实现高效的靶向效率。请点击此处查看该图的放大版本。
在小鼠胚胎干细胞(mESCs)中进行基因组编辑可实现RMCE兼容小鼠的制备。1981年,两个研究团队成功从囊胚的内细胞团(ICM)中分离出多能性细胞,并实现了其在体外培养中的长期维持13,14。mESCs具有自我更新能力,并可分化为所有类型的胚胎和成体细胞,包括生殖细胞系。因此,通过对mESCs进行基因靶向操作,可利用构建组成型或条件型(使用Cre/LoxP系统)基因敲除(KO)小鼠,开展反向遗传学研究。然而,传统的小鼠胚胎干细胞分离方法效率极低。近年来多项关键技术改进显著提高了mESC细胞系的建立成功率,包括使用成分明确的无血清替代物(SR)培养基15、在含SR的mESC培养基与含胎牛血清(FBS)的培养基之间交替培养16,以及添加小分子化合物如pluripotin或2i体系17。pluripotin是一种小分子合成化合物,可在无需白血病抑制因子(LIF)和小鼠胚胎成纤维细胞(MEFs)饲养层的情况下,维持mESCs处于未分化状态18。最终研究表明,当将SR/FBS交替培养方案与LIF和pluripotin联合使用时,mESCs的分离效率可达到极高水平(接近100%)19,20。这些方法能够高效地获得RMCE兼容的基因敲除mESC,进而用于基因结构与功能的研究。
本文介绍了一种可用于鉴定蛋白质中负责特定细胞过程的关键结构域或残基的方法。为此,建立了一套先进的技术流程,可实现小鼠胚胎干细胞(mESC)的高效分离、靶向载体构建及mESC基因靶向。因此,可在基因敲除mESC中引入包含蛋白质异构体、结构域突变体及下游效应分子的大规模文库,并评估其恢复表型的能力 体外 基因敲除表型
访问受限。请登录或开始试用以查看此内容。
方案
所有小鼠实验均按照机构、国家及欧洲的动物管理条例进行。
1. 分离可用于RMCE的基因敲除小鼠胚胎干细胞
- 将杂合的基因敲除小鼠与具有RMCE兼容性的小鼠(如ROSALUC小鼠)进行杂交10 或 ROSA26-iPSC 小鼠21两株RMCE兼容型小鼠均维持在混合的129/C57BL6/Swiss遗传背景下。
注意:建议与杂合子基因敲除小鼠杂交,以克服纯合子基因敲除小鼠的胚胎致死性。 - 使用PCR筛选在R26位点含有RMCE盒的杂合子基因敲除小鼠12.
- 将RMCE兼容的杂合子KO小鼠与杂合子KO小鼠交配,分离获得RMCE兼容的纯合子KO囊胚。
- 傍晚设置交配,次日早晨检查交配栓。
注意:栓塞由雄性凝固腺和精囊腺的凝固分泌物形成,这些栓塞充满雌性阴道,并在交配后持续存在 8 - 24 小时。发现有栓塞的雌性被视为携带 0.5 dpc(交配后天数)胚胎。- 检查交配栓时,抓住雌性小鼠尾根部将其提起,观察其阴道口是否有乳白色栓状物。若交配栓不易观察,可用弯头探针轻轻分开阴唇。发现有交配栓的雌鼠应与雄鼠分笼饲养。
- 在3.5天后收集囊胚。
- 采用批准的方法处死妊娠雌性动物(例如, 颈椎脱位。在腹部正中做切口,使用精细剪刀和镊子解剖子宫和输卵管(两者仍相连)。
- 将一根26号针头弯成 45° 角度。将装有M2培养基的1 mL注射器连接到该弯针上,用于将囊胚从子宫冲洗至10 cm培养皿的皿盖中。
- 将针头插入靠近输卵管的子宫末端。用精细镊子固定针头位置,同时推动针栓;子宫膨胀表明灌洗成功。
- 使用口吹移液管(直径为 100 - 200 µm) 收集所有胚胎,并用一滴新鲜M2培养基清洗两次。清洗后立即转移囊胚至培养板(见下文)。
注意:囊胚的解剖和操作应在层流净化台中进行。
- 傍晚设置交配,次日早晨检查交配栓。
- 分离适用于 RMCE 的基因敲除小鼠胚胎干细胞
- 用丝裂霉素C处理的DR4小鼠胚胎成纤维细胞接种于12孔板中(参见 材料清单)囊胚分离前一日。
注意:这些MEFs分离自Tg(DR4)1Jae/J小鼠,该小鼠含有四个药物筛选基因,可赋予对新霉素、嘌呤霉素、潮霉素和6-巯基鸟嘌呤的抗性22.- 用 0.1% 明胶包被所有培养板。向培养板中加入 0.1% 明胶,在 5 分钟内孵育 37 °C 在5% CO₂中2,吸去明胶溶液。将一支P2代MEF细胞的四分之一接种于12孔板中,加入2 mL MEF培养基培养(参见 表1, 材料表)至汇合的单层细胞19.
- 用丝裂霉素-C灭活它们(10 µg/mL) 3小时,然后用磷酸盐缓冲液(PBS)洗涤两次19.
- 使用口吸管将囊胚接种到已明胶包被的12孔板中(每胚1孔),每孔含经丝裂霉素C处理的MEF细胞,并加入SR-ES细胞培养基(2 mL/孔),培养基中添加以下成分之一 2 µM pluripotin 或 2i1 µM Erk 抑制剂 PD0325901 和 3 µM Gsk3抑制剂CHIR99021)。孵育于 37 °C 在5% CO₂中2.
- 每隔 2 - 3 天更换一次 SR-ES 细胞培养基(添加 pluripotin 或 2i)。
- 在体视显微镜下以4.0倍放大倍数观察每个囊胚,检查其孵化情况及是否附着于MEF层。
注意:囊胚孵化时会失去包裹它们的透明带。对于未贴壁的囊胚,需使用口吸管更换培养孔中的培养液。 - 在培养10至12天后,使用体视显微镜和带一次性吸头的P10移液器挑取单个ICM外延生长物。将外延生长物转移至约 10 µL 将培养基加入含有细胞的V型96孔板中 30 µL/well PBS(室温)。
- 添加 50 µL 使用多通道移液器向每孔加入0.25%胰蛋白酶,37℃孵育3分钟 37 °C 在5% CO₂中2.
- 添加 100 µL 含FBS的mESC培养基;通过吹打10-15次将ICM外延生长物解离为单细胞;将解离后的细胞转移至已用丝裂霉素C处理的96孔MEF板中,该MEF板需在挑选ICM集落前一天预先制备。
- 从这一步开始,在mESC培养基中不再添加pluripotin或2i。次日,将培养基更换为含SR的mESC培养基,取代含FBS的培养基。100 µL/well).
- 将已建立的小鼠胚胎干细胞系从96孔板扩增至24孔板格式19.
- 洗涤细胞 200 µL PBS,加入 50 µL 胰蛋白酶,于37°C孵育5分钟 37 °C 在5% CO₂中添加 100 µL 用含FBS的mESC培养基重悬;使用多通道移液器吹打10–15次进行消化,将消化后的细胞转移至经丝裂霉素C处理的24孔MEF培养板中。
- 第二天更换为SR培养基。以类似方式将mESCs从24孔板扩增至6孔板。从一个汇合的6孔板中制备3至4管冻存样本。19.
- 使用针对 R26 位点的 PCR 引物鉴定 RMCE 兼容的纯合 KO mESCs23 以及选定的敲除等位基因(本例中为 p120ctn;针对 p120ctn 空白和条件性等位基因的 PCR 方法此前已有描述)12).
- 用丝裂霉素C处理的DR4小鼠胚胎成纤维细胞接种于12孔板中(参见 材料清单)囊胚分离前一日。
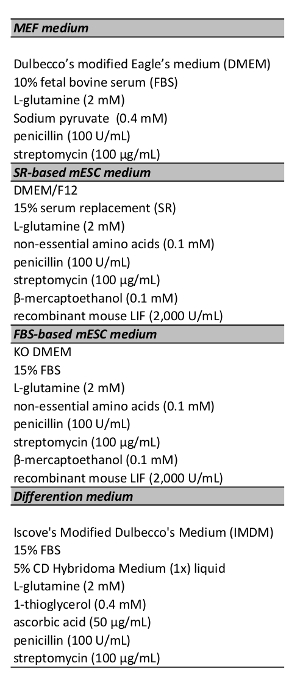
表 1. 培养基。 所有培养基均在 4 °C 下保存,并在使用前 30 分钟预热至 37 °C。
2. 利用重组克隆技术构建 RMCE 兼容的靶向载体
- 使用基于限制性内切酶(RE)或基于PCR的方法,将拯救构建体克隆至兼容重组的载体中24 克隆技术。确保cDNA包含终止密码子。
- 设计 AttB 接头标记的引物24确保正向引物包含以下元件:GGGG序列、AttB1位点、连接子、Kozak序列以及约25个核苷酸的救援cDNA(以ATG起始)。确保反向引物具有类似组成:GGGG序列、AttB2位点、连接子以及约25个核苷酸的救援cDNA(反向互补序列)。
- 扩增救援cDNA 通过 通过PCR获得AttB侧翼cDNA。
- 进行10-µL 含卡那霉素抗性基因的重组兼容型供体质粒150 ng与100 ng AttB侧翼cDNA进行BP反应。
- 转化 5 µL 热激感受态MC1061中BP混合物的 大肠杆菌 (E. coli)细菌(类似于步骤 2.3 中描述的细菌)。
- 鉴定含有正确拯救cDNA载体的菌落(与步骤2.4中描述的类似)
- 进行10-µL 使用含救援cDNA的载体100 ng及Cre切除的pRMCE-DV1载体150 ng进行LR反应11 (LMBP 8195);以及 2 µL 重组酶混合物,其中包含噬菌体编码的整合酶和切除酶以及细菌整合宿主因子。在37°C下孵育2小时 25 °C.
注意:LR 反应是一种重组反应,其中含有 attL 位点的入门克隆与含有 attR 位点的目的载体在 LR Clonase 酶混合物的作用下发生重组,从而生成一个表达克隆,其两侧由 attB 位点包围目标基因。 - 转化 5 µL 热激感受态MC1061中LR反应混合物的处理 E. coli 细菌
- 添加 5 µL 将LR混合物加入带有肋纹和裙边的2 mL螺口管中 40 µL 热激感受态 E. coli 细菌,冰上孵育 20 分钟。然后在 37 °C 下孵育 5 分钟。 37 °C.
- 加入 1 mL LB 培养基,37°C 振荡培养 1 小时 37 °C. 板 50 µL 在氨苄青霉素(Amp; 100 µg/mL含 ) 的琼脂平板,37°C 过夜培养 37 °C.
- 鉴定含有正确靶向载体的菌落。
- 随机挑选5个菌落,使用p200枪头将菌落转移至含有2 - 5 mL LB培养基的玻璃试管中,过夜培养于 37 °C.
- 使用市售试剂盒从细菌培养物中提取质粒DNA。
- 使用限制性内切酶消化和测序进行验证。切割 0.5 - 2 µg 质粒使用 0.2 µL RE(20 U/µL)和 1 µL 对应10倍缓冲液的10-µL 反应。在至少1 h的孵育时间内 37 °C 在1%琼脂糖凝胶上进行分离,筛选具有预期DNA片段模式的菌落。
- 分析已确认的载体(50 ng/µL) 使用 Tlox F (ATC ATG TCT GGA TCC CCA TC) 和 IRES R (GGG GCG GAA TTC GAT ATC AAG) 引物(5 pmol/µL) 采用 Sanger 测序法。
3. 通过RMCE介导的mESC将拯救构建体靶向R26位点
- 培养RMCE兼容的KO mESC,并在含FBS的mESC培养基中于MEF上传代至少两次。将mESC接种至明胶包被的6孔板中进行分瓶。
- 第二天,当细胞融合度约为50%时,用1.5 mL含FBS的mESC培养基更换培养基,并使用含有救援cDNA的Cre切除型pRMCE-DV1靶向载体转染mESCs。
- 配制DNA混合液。加入 1 µg 靶向载体和 1 µg FLPe表达质粒25 至 250 µL 纯DMEM培养基。
- 制备脂质体转染混合物。加入 7 µL 基于脂质转染的转染试剂(例如, Lipofectamine 2000) 到 250 µL 加入纯 DMEM 培养基,在室温(RT)下孵育 5 分钟。
注:使用其他基于脂质体转染的试剂也获得了相似的RMCE靶向效率(例如, Lipofectamine LTX 和 Effectene - 将DNA混合物与脂转染混合物混合,室温孵育20分钟。用移液器将转染混合物滴加到换液后的小鼠胚胎干细胞(mESCs)上,轻轻摇晃混匀,过夜培养。
- 转染后一天,将6孔板中所有mESCs消化并传代至含DR4 MEF饲养层的10 cm培养皿中,加入10 mL基于FBS的mESC培养基。
- 转染后两天,通过向培养基中添加0.2 mg/mL G418(100倍浓度)筛选发生正确FLPe介导的盒式交换的mESC克隆。
注意:每批 G418 均需制作杀灭曲线,以确定可杀死全部 mESCs 的最低 G418 浓度。 - 每天用含 G418 的 mESC 培养基更换 mESCs 培养液。7 至 10 天后应出现克隆,按步骤 1.4 的方法挑取并扩增这些克隆。
- 确认正确的克隆 通过 PCR11.
4. 胚状体(EBs)中mESCs的分化
- 在含血清的mESC培养基中,于MEFs上培养表达R26驱动的挽救型构建体的KO mESCs,并传代至少两次。随后将mESCs在明胶包被的6孔板上再传代一次,以去除MEFs。
- 用PBS洗涤并消化接近汇合的mESC培养物。将解离后的mESCs以不同稀释比例(1/20和1/40)接种至非黏附性、细菌级培养皿中,加入分化培养基进行悬浮培养。
- 让胚胎体(EBs)在这些培养皿中形成并培养30天。每2–3天更换一次培养基,操作步骤如下:将EB悬液转移至50 mL离心管中,静置使EB依靠重力沉降,吸除上清液,加入新鲜培养基,再将EB悬液重新转移回细菌级培养皿中。
- 采用先前已描述的实验方案12,通过免疫荧光染色和透射电子显微镜对目标mESCs及EBs进行分析。
访问受限。请登录或开始试用以查看此内容。
结果
分离RMCE兼容型KO mESC细胞系的流程如图所示 图2需要进行两次连续的杂交以获得可用于RMCE的基因敲除囊胚。首先,将杂合子基因敲除小鼠与可用于RMCE的小鼠杂交,以获得可用于RMCE的杂合子基因敲除小鼠。随后,将这些小鼠与另一些杂合子基因敲除小鼠进行定时交配,以获取3.5天后受精(dpc)、可用于RMCE的纯合子基因敲除囊胚。根据孟德尔遗传规律,获得此类胚胎的概率为八分之一。因此,必须采用高效的mESC分离方案。利用基于pluripotin或2i的方案,我们能够以约94%(n = 114个囊胚)和64%(n = 22个囊胚)的效率分离得到mESC细胞系,包括可用于RMCE的p120ctn基因敲除mESC。12,19通常,囊胚在3至6天内孵化。 体外 (DIV) 培养;随后将ICM外延组织附着于MEFs或明胶包被的培养皿上。第12天时,形成较大的ICM外延组织,可稳定建立小鼠胚胎干细胞系(
访问受限。请登录或开始试用以查看此内容。
讨论
我们的小鼠胚胎干细胞(mESC)分离方法操作简便,无需显微手术等高级技能或特殊设备,因此该技术可被科学界大多数研究人员所采用。任何具备基本细胞培养经验的人员均可扩增内细胞团(ICM)外延生长物并建立mESC系。然而,囊胚的冲取与操作仍需一定练习。转移囊胚时需使用口吸管,该装置由微量移液器、微量移液器支架、连接管和吸嘴28组成。微量移液器可通过将巴斯德移液器最细部分加热数秒,随后移开火焰并向两端拉伸的方式自行制备。选择直径略大于囊胚(100 - 200 µm)的玻璃针。玻璃针在用蒸馏水清洗(3次)和乙醇(3次)处理后可重复使用。根据我们的经验,基于pluripotin的mESC分离效率高于基于2i的方案12。然而,已有研究表明,高浓度pluripotin的使用可能诱导基因组不稳定性19。
基于RMCE的mESC中R26位点靶向通常在G418筛选后产生20至40个克隆。若观察到更多克隆,则表明G418浓度未达最佳,导致非靶向mESC存活,从而影...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Jinke D'Hont、Frederique Van Rockeghem、Natalie Farla、Kelly Lemeire和Riet De Rycke提供的出色技术支持。我们还感谢来自根特大学炎症研究中心生物成像核心设施的Eef Parthoens、Evelien Van Hamme和Amanda Goncalves给予的专业协助。我们对研究团队成员的宝贵讨论表示感谢。本工作得到了比利时科学政策办公室(Belspo大学间吸引力计划——IAP VII-07 DevRepair项目;https://devrepair.be)、比利时伊丽莎白女王医学基金会(GSKE 2008-2010;http://www.fmre-gske.be)以及比利时根特大学协同研究行动项目(GOA 01G01908;http://www.ugent.be/en/ghentuniv)的资助。SG为弗拉芒研究基金会(FWO-V)的博士后研究员。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| ROSALUC 小鼠 | 自制 | 冷冻精子可应要求提供 | |
| R26-iPSC小鼠 | 自制 | 冷冻精子可根据要求提供 | |
| 容器探针 | 精细科学工具 | 10160-13 | 检查交配栓 |
| M2 培养基 | Sigma-Aldrich | M7167 | 分装并储存在 -20 °C |
| 精细镊子(Dumont #5 标准尖头学生镊) | 精细科学工具 | 11251-10 | 使用前用70% EtOH喷洒(切勿高压灭菌) |
| 23 G 针头 | Fine-ject | 8697 | |
| 1-mL 注射器 | Soft-ject | 6680 | |
| 60毫米细菌级培养皿(用于冲洗) | Gosselin | BB60-01 | |
| 移液管吸头 | 自行制备 | 参见讨论部分 | |
| 小鼠胚胎成纤维细胞(MEFs,TgN (DR4)1 Jae 品系) | ATTC | SCRC-1045 | |
| TgN (DR4)1 Jae 小鼠 | 杰克逊实验室 | 3208 | |
| 丝裂霉素C | Sigma-Aldrich | M0503 | |
| 不含钙和镁的磷酸盐缓冲液(PBS) | Gibco | 14190-094 | |
| Tg(DR4)1Jae/J 小鼠 | JAX | 3208 | 含有四种药物筛选基因且DR4 MEFS对新霉素、嘌呤霉素、潮霉素和6-硫鸟嘌呤具有抗性的小鼠 |
| 0.1% 明胶 | Sigma-Aldrich | G1393 | 将0.5 g溶于500 mL蒸馏水中,高压灭菌后保存于 4 °C. |
| 胰蛋白酶(0.25%) | Gibco | 25200-056 | |
| 2 μM pluripotin | Cayman Chemical | 10009557 | |
| pRMCE-DV1 | BCCM/LMBP 菌种保藏中心 | LMBP 08870 | 可从 BCCM/LMBP 收藏库(http://bccm.belspo.be)公开获取 |
| cre切除的pRMCE-DV1 | BCCM/LMBP 菌种保藏中心 | LMBP 08195 | 可从 BCCM/LMBP 收藏库(http://bccm.belspo.be)公开获取 |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| 热激感受态DH5α 细菌 | 自行制备 | ||
| Gateway pDONR221 载体 | 赛默飞世尔科技 | 12536-017 | 含有卡那霉素抗性基因 |
| BP克隆酶II混合物 | 赛默飞世尔科技 | 11789-020 | |
| LR Clonase II 酶混合物 | Thermo Fisher | 11791-020 | |
| Luria肉汤(LB) | |||
| 氨苄青霉素 | |||
| Applied Biosystems 3730XL DNA分析仪 | 赛默飞世尔科技 | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Lipofectamine 2000 转染试剂 | Thermo Fisher | 11668027 | |
| Lipofectamine LTX 转染试剂 | 赛默飞世尔科技 | 15338100 | |
| Effectene 转染试剂 | Qiagen | 301425 | |
| GATEWAY pENTR 1A 载体 | 赛默飞世尔科技 | A10462 | 重组兼容性载体 |
| 小鼠单克隆抗p120ctn抗体 | BD Transduction Laboratories | 610134 | |
| 小鼠单克隆抗Ecadherin抗体 | BD Transduction Laboratories | 610181 | |
| 通用设备 | |||
| 无菌解剖工具 | 用于解剖子宫的精细剪刀和镊子 | ||
| 无菌移液管:5 mL、10 mL 和 25 mL | |||
| 15 mL 和 50 mL 锥形离心管 | |||
| 96孔培养板(V形底和平底) | |||
| 培养皿:24 孔、12 孔和 6 孔 | |||
| 多通道移液器(用于移液 30、50、100 和 200 μL) | |||
| 无菌多通道储液槽 | |||
| 进入层流空气环境 | |||
| 可进入恒温培养箱 37 °C 含5% CO2 | |||
| 倒置显微镜的使用权限 | |||
| 可使用台式离心机 | |||
| 使用配备透射光的体视显微镜 | |||
| 培养基 | |||
| MEF 培养基 | 储存于 4 °C;30 分钟,37°C 预热 37 °C 使用前 | ||
| 杜尔贝科’s 改良的 Eagle’DMEM培养基 | Gibco | 41965-062 | |
| 10% 胎牛血清(FBS) | Sigma-Aldrich | F-7524 | |
| L-谷氨酰胺(2 mM) | Gibco | 25030-024 | |
| 丙酮酸钠 (0.4 mM) | Gibco | 11360-039 | |
| 青霉素(100 U/mL) | Gibco | 15140-122 | |
| 链霉素(100 µg/mL) | Gibco | 15140-122 | |
| 基于SR的mESC培养基 | 储存于 4 °C;30 分钟,37 °C 预热 37 °C 使用前 | ||
| DMEM/F12 | Gibco | 31330-038 | 以1:1的比例混合 |
| 15% 基因敲除血清替代物(SR) | Gibco | 10828–028 | |
| L-谷氨酰胺(2 mM) | Gibco | 25030-024 | |
| 0.1 mM 非必需氨基酸 | Gibco | 11140-050 | |
| 青霉素(100 U/mL) | Gibco | 15140-122 | |
| 链霉素(100 µg/mL) | Gibco | 15140-122 | |
| β-巯基乙醇(0.1 mM) | Sigma-Aldrich | M 3148 | |
| 2,000 U/mL 重组小鼠 LIF | (IRC/VIB 蛋白质服务中心) | ||
| 基于FBS的mESC培养基(类似于基于SR的mESC培养基) | 储存于 4°C;30 分钟,37 °C 预热 37°C 使用前 | ||
| 敲除DMEM | Gibco | 10829-018 | |
| 15% FBS | Hyclone | SH30070.03E | |
| 分化培养基 | 储存于 4 °C;30 分钟,37°C 预热 37 °C 使用前 | ||
| Iscove's 改良 Dulbecco 培养基(IMDM) | Gibco | 21980-032 | |
| 15% FBS | Hyclone | SH30070.03E | |
| 5% CD杂交瘤培养基(1x) 液体 | Gibco | 11279-023 | |
| 2 mM L-谷氨酰胺 | Gibco | 25030-024 | |
| 0.4 mM 1-巯基甘油 | Sigma-Aldrich | M-6145 | |
| 50 μg/mL 抗坏血酸 | Sigma-Aldrich | A-4544 | |
| 青霉素(100 U/mL) | Gibco | 15140-122 | |
| 链霉素(100 µg/mL) | Gibco | 15140-122 | |
| 2i | |||
| 1 μM Erk抑制剂PD0325901 | Axon Medchem | 轴突 1408 | |
| 3 μM Gsk3抑制剂CHIR99021 | Axon Medchem | Axon 1386 |
参考文献
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
