本方案描述了一种检测蛋白质与丝状肌动蛋白(F-actin)共沉淀能力的方法,若观察到结合,则可进一步测定该相互作用的亲和力。
本文内容
摘要
摘要
细胞内丝状肌动蛋白(F-actin)的组织结构受到大量肌动蛋白结合蛋白的调控,这些蛋白可控制肌动蛋白的成核、生长、交联和/或解聚过程。本实验方案介绍了一种称为肌动蛋白共沉淀(或沉淀)实验的技术,用于检测某种蛋白质或蛋白质结构域是否能够结合F-actin,并测定其相互作用的亲和力。即, 解离平衡常数)。在该技术中,首先将目标蛋白与溶液中的F-actin共同孵育,然后通过差速离心法沉淀肌动蛋白丝,再通过SDS-PAGE分析沉淀物。如果目标蛋白能够结合F-actin,则会与肌动蛋白丝共沉淀。结合反应的产物即, F-肌动蛋白和目标蛋白)可被定量以确定相互作用的亲和力。肌动蛋白沉降实验是一种简单直接的技术,用于判断目标蛋白是否结合F-肌动蛋白,并评估目标蛋白的变化(如配体结合)对其与F-肌动蛋白相互作用的影响。
引言
肌动蛋白是一种重要的细胞骨架蛋白,在多种细胞过程中发挥关键作用,包括细胞运动、收缩、黏附和形态维持1。肌动蛋白以两种形式存在:单体球状肌动蛋白(G-actin)和聚合的丝状肌动蛋白(F-actin)。在细胞内,F-actin 的组织结构受到一大类蛋白质的调控,这些蛋白质参与调控肌动蛋白丝的成核、生长、交联和解聚过程2,3,4。然而,多种肌动蛋白结合蛋白如何协同作用以调控肌动蛋白网络的组织结构,目前仍 largely 不清楚。
检测蛋白质-蛋白质相互作用是理解蛋白质在生化水平上如何影响细胞行为的重要方法。多种不同的实验方法可用于检测纯化蛋白质之间的相互作用。对于可溶性蛋白质,常用的方法包括下拉实验(pull-down)、荧光偏振、等温滴定 calorimetry(ITC)和表面等离子共振(SPR)。重要的是,所有这些实验方法都要求蛋白质具有可溶性,因此难以适用于如F-actin这类聚合性丝状蛋白。本文中,我们介绍一种技术——肌动蛋白共沉淀(或称沉降)实验——用于确定某种蛋白质或蛋白质结构域是否能够结合F-actin,并测定其相互作用的亲和力。
肌动蛋白沉淀实验是一种相对简单的技术,除超速离心机外,无需特殊设备。所有试剂均可自行配制(需具备基础生物化学知识)或直接购买。一旦确定与F-肌动蛋白的结合后,该实验可用于测定表观亲和力(即, 解离平衡常数5此外,一旦建立了亲和力,沉淀实验便是用于检测目标蛋白(即、翻译后修饰、突变或配体结合)如何影响其与F-肌动蛋白的相互作用6该技术确实存在局限性(见 讨论研究人员在尝试该检测之前应注意的事项。
方案
1. 准备材料
- 纯化目的蛋白(参见第2节)。
- 制备或购买G-actin。
注:G-actin 可从多种来源分离获得1;或者可直接购买。重悬的G-actin(溶于5 mM Tris pH 8.0、0.2 mM CaCl₂中)2,0.2 mM ATP(三磷酸腺苷)和 0.5 mM 二硫苏糖醇(DTT))应快速冷冻,并在 -80 ℃ 下保存 °C 和 >10 mg/mL,小份(10-20) µL)分装样品,并在使用前解冻。G-actin 分装样品不应再次冷冻。 - 准备或购买一种对照蛋白,例如 BSA(参见步骤 4.4)。
- 制备 10x 聚合缓冲液(200 mM 咪唑,pH 7.0,1 M KCl,20 mM MgCl₂)2,5 mM ATP,和 10 mM EGTA(乙二醇双(β-氨基乙基醚)-N,N,N',N'-四乙酸)。配制10倍浓度储备液,并在加入ATP后必要时调节pH值。分装(25 µL 是一种有用的体积单位,并在 -80 保存 °C.
- 制备10×反应缓冲液(200 mM 咪唑,pH 7.0,1.5 M NaCl,20 mM MgCl₂)2,5 mM ATP 和 10 mM EGTA)。配制 10 倍浓度储存液,并在加入 ATP 后必要时调节 pH 值。分装(50–100 µL 是一种有用的体积单位,并在 -80 ℃下保存 °C.
注意:反应缓冲液的组成具有灵活性,可根据需要进行调整,以减少背景沉淀、限制非特异性结合和/或增强结合(步骤1.5.1–1.5.3)。- 将反应缓冲液的 pH 值调节至 6 到 8 之间,以优化蛋白质稳定性。当 pH 值低于或高于此范围时,应使用适当的缓冲液替代咪唑。
注意:除非蛋白质需要更低或更高的 pH 值以保持稳定,否则以 pH 7.0 为起始点。请勿使用 pH 低于 6.0 或高于 8.0 的缓冲液,因为这可能会破坏肌动蛋白。推荐的缓冲液(列出终浓度和最佳 pH)包括:20 mM MOPS(3-(N-吗啉代)丙磺酸),pH = 6.5;20 mM 咪唑,pH = 7.0;10 mM HEPES(4-(2-羟乙基)哌嗪-1-乙磺酸),pH = 7.5;以及 20 mM Tris,pH = 8.0。 - 根据实验需求调整反应缓冲液的盐浓度。
注意:肌动蛋白是一种酸性蛋白,几乎所有肌动蛋白结合蛋白在一定程度上都依赖静电相互作用与肌动蛋白结合。因此,在大多数情况下,提高盐浓度会减弱肌动蛋白的结合。反应缓冲液采用生理盐浓度(150 mM NaCl,工作浓度),建议以此作为起始条件。如有必要,可降低盐浓度(例如, 至100 mM)以促进结合,或提高浓度以限制结合。 - 不要改变 MgCl₂ 的浓度2,除非有特殊原因,否则不要在反应缓冲液中加入ATP或EGTA。
- 将反应缓冲液的 pH 值调节至 6 到 8 之间,以优化蛋白质稳定性。当 pH 值低于或高于此范围时,应使用适当的缓冲液替代咪唑。
2. 准备用于实验的测试蛋白
- 为获得最佳结果,使用液相色谱法制备高纯度蛋白质7。
注意:若使用重组蛋白,应通过蛋白酶切割去除目标蛋白上较大的蛋白标签(如谷胱甘肽-S-转移酶(GST)),因为这些标签可能干扰结合反应。此外,GST 还会引起融合蛋白的同源二聚化,从而人为增强与肌动蛋白的结合亲和力。 - 通过测量 280 nm 处的吸光度确定蛋白浓度,再除以消光系数;消光系数可通过序列分析或在线工具根据蛋白序列计算得出。或者,也可使用 Bradford 法或 BCA(二辛可宁酸)法测定蛋白浓度。
注意:在初步实验中,通常使用 50–100 µL 浓度为 20–40 µM 的蛋白即已足够。这可使结合反应在低微摩尔范围内进行分析,对大多数肌动蛋白结合蛋白而言是一个合适的起始点。若需生成结合曲线以计算亲和力(见第 5 节),则通常需要更大用量及更高浓度的蛋白。 - 使用前立即对蛋白进行高速离心(4 °C 下 50,000–100,000 × g 离心 10 分钟),以去除不溶性蛋白的聚集体。若存在溶解度问题,离心后应重新测定蛋白浓度(步骤 2.2)。
3. 准备F-actin
- 从 -80 °C 冰箱中取出一份 G-肌动蛋白样品,并迅速解冻。
- 向 G-肌动蛋白中加入 10 倍浓度的聚合缓冲液,使其终浓度为 1 倍。确保 G-肌动蛋白在 1 倍聚合缓冲液中的浓度至少为 10–20 µM,远高于临界浓度。在室温(RT)下孵育 1 小时,使肌动蛋白充分聚合。
- 聚合完成后,将 F-肌动蛋白溶液储存于 4 °C,可稳定保存数周。再次使用储存的 F-肌动蛋白前,应轻轻颠倒或弹敲离心管数次,以确保所有肌动蛋白充分溶解并在溶液中均匀分布。
注意:(可选)加入鬼笔环肽,使其与 G-肌动蛋白的摩尔比达到 1:1。在室温下孵育 30 分钟,使鬼笔环肽结合 F-肌动蛋白。鬼笔环肽可稳定 F-肌动蛋白,具有两个作用:(i)减少离心过程中未能沉淀的肌动蛋白量;(ii)允许将 F-肌动蛋白稀释至临界浓度以下(约 0.5 µM),这在通过改变 F-肌动蛋白用量以生成结合曲线时(见第 5 节,测量亲和力)通常是必需的。
4. 沉降实验——基本方案
注意:第4节中描述的基本实验方案用于确定目的蛋白是否与F-actin共沉淀。一旦确认该蛋白与F-actin结合,即可按照第5节中描述的实验方案测定此相互作用的亲和力。
- 在使用当天配制反应缓冲液,将10x储存液稀释至1x,并加入DTT至终浓度为1 mM。
注意:(可选)在反应缓冲液中加入聚多卡醇,使其终浓度为0.02%。聚多卡醇是一种表面活性剂,可减少非特异性背景结合,并有助于防止疏水性蛋白粘附到超速离心管上。 - 将目的蛋白用超速离心管中的1×反应缓冲液稀释至所需浓度。保持样品体积较小(40–60) µL)使用最小体积较小的超速离心管,以避免使用大量蛋白质,例如,7个可容纳0.2 mL的20 mm试管
注意:由于许多肌动蛋白结合蛋白对F-actin的亲和力处于微摩尔范围,因此建议在2和10 μM浓度下检测目标蛋白 µ建议使用 M。如果在 10 µM时,高浓度下可能无法观察到结合。如果所添加的蛋白质占最终反应体积的10–20%以上,则可能需要在进行实验前将该蛋白质透析至反应缓冲液中。 - 加入F-actin至所需终浓度。
注意:2 µM 是初始实验的有用浓度,因为它远高于临界浓度,从而维持肌动蛋白处于纤维状状态。在 SDS-PAGE 分析时(步骤 4.10)将产生可见的沉淀。 - 在超速离心管中准备以下对照,以确保实验结果具有可解读性。
- 制备不含F-actin的待测蛋白样品。确保这些样品中蛋白的浓度与后续反应体系中的浓度一致 "加F-actin" 样品
注意:这些样品将用于确定在无F-actin存在时发生聚集或黏附在超速离心管管壁上的蛋白量。 - 以与目标蛋白相同或相似的浓度制备阴性对照样品。使用不与F-actin结合的对照蛋白,分别在有F-actin和无F-actin的条件下进行实验。
注意:这是一个重要的对照,因为蛋白质可能会发生 "被捕获" 在肌动蛋白丝中并随F-actin沉淀,即使它们并不结合F-actin。 trapping的量可能因F-actin来源、缓冲液条件而异 等等。 因此,所有实验均应包含此对照。理想情况下,对照蛋白的分子量应与目标蛋白相近例如,用于 αE-钙粘蛋白(约100 kDa),BSA(66 kDa)是合适的对照)。市售的凝胶过滤标准品是极佳的对照蛋白,因其涵盖多种分子量范围且通常不含聚集体。 - 可选地,准备含有与F-actin结合的蛋白的阳性对照样品,分别在有和无F-actin的条件下进行。确保其浓度与目标蛋白的浓度相近。
注意:此对照实验具有重要意义,可证明实验条件(例如, 已制备的F-actin、反应缓冲液和离心条件)允许F-actin结合。由于沉降实验可能无法检测到较弱的F-actin相互作用(见讨论部分),建议所用的已知F-actin结合蛋白对F-actin具有中等至较弱的亲和力(即, 在低微摩尔范围内)。纯化的F-actin结合蛋白可从商业途径获得。
- 制备不含F-actin的待测蛋白样品。确保这些样品中蛋白的浓度与后续反应体系中的浓度一致 "加F-actin" 样品
- 所有样品在室温下孵育30分钟。
注意:只要目标蛋白在室温下稳定,更长的孵育时间也可以接受,但可能并无必要。如果目标蛋白在室温下不稳定,则可将样品在 4°C 下孵育 °C. 此情况下,可能需要更长的孵育时间。 - 将样品加入离心机转子中。在转子内合理放置离心管,以便在离心后有助于重悬沉淀。为此,标记所有离心管(例如, 并确保所有离心管在转子中的位置一致(附样品编号)例如, 朝外的数目)
- 在 4 °C 条件下以 100,000 x g 离心 20 分钟 °在超速离心机中于 C 温度下离心。
- 离心后,移除上清液的3/4(例如, 45 µ如果起始体积为60 µL)并加入等体积 1/3 的 4× 上样缓冲液(15 µL 在此情况下)置于另一个微量离心管中。
- 使用加样枪头小心移除剩余的上清液,注意不要扰动沉淀(沉淀可能呈现为透明的小点)。
注意:离心结束后应尽快从离心管中移除上清液,以减少分离后蛋白质的解离。同样,出于相同原因,不要用反应缓冲液洗涤沉淀。
- 使用加样枪头小心移除剩余的上清液,注意不要扰动沉淀(沉淀可能呈现为透明的小点)。
- 向每个沉淀中加入 4/3 体积的 1× 上样缓冲液(例如, 80 µ如果起始体积为60 µL)
注意:此操作使稀释倍数与上清液相同(步骤 4.8 中加入了 1/3 体积的 4× 上样缓冲液),从而允许直接比较沉淀与上清液样品,并确定沉淀蛋白的百分比。- 向所有离心管中加入上样缓冲液,在室温下孵育至少5分钟。让沉淀在上样缓冲液中静置,以提高样品回收率。
- 用 p200 移液枪头将样品上下吹打 8–10 次,通过持续冲洗管壁上的沉淀区域使其充分重悬。吹打过程中应轻柔地刮擦枪头接触沉淀,以促进重悬。
注意:吹打混匀时需避免将空气引入样品,否则会导致样品缓冲液起泡,从而降低样品回收率。 - 在吹打重悬后,将样品转移至微量离心管中。
- 通过 SDS-PAGE 和考马斯亮蓝染色分析上清液和沉淀样品8 通过上样10-15 µ每泳道上样量为 L;此量足以清晰观察蛋白质。
注意:与F-actin共沉淀的蛋白质将富集于沉淀中 "加F-actin" 沉淀样品于上方 "无F-actin" 沉淀样品(图1A)。如果蛋白质浓度在 0.1–10 mg/mL 范围内,标准考马斯亮蓝染色足以用于检测 µ毫摩尔(mM)范围。胶体考马斯亮蓝9 若使用较低的蛋白浓度来检测高亲和力相互作用,可采用蛋白质印迹法以提高检测灵敏度。 - 使用扫描仪或成像系统对考马斯亮蓝染色的凝胶进行成像(步骤 5.12)。
5. 沉淀实验——定量分析
注意:如果观察到对 F-actin 的特异性结合,测量相互作用的亲和力将非常有意义。这可以通过对第 4 节中所述方案进行若干修改和补充来实现。有关设计和解读结合实验的优秀指南,参见 Pollard10。为辅助分析与定量,提供了一个流程图(图 2)。
- 确定待测的浓度范围。
注意:浓度范围取决于蛋白质,应涵盖从低于表观 Kd (例如, 1 µM)至足以饱和结合的浓度。在整个浓度范围的高端,多个样品中的结合必须达到饱和,这是生成准确结合曲线的关键(图1C)。如上所述,许多肌动蛋白结合蛋白对F-actin的亲和力在微摩尔低浓度范围内(1-5 µM)。对于具有 Kd 0.5-1 µM,一个有用的起始浓度范围为 0.1–10 µM. - 高速离心(步骤2.3)目标蛋白以去除聚集体。将蛋白进行系列稀释,制备包含7–8个样品的浓度梯度,各样品浓度为待测终浓度的2倍。例如,若待测浓度范围为0.1–8 µM,在1x反应缓冲液中配制以下稀释度:16, 8, 4, 2, 1, 0.5 和 0.2 µM.
注意:如步骤 4.2 中所述,如果所添加的蛋白质占第一次稀释液(即 16 µ在上述示例中,若样品浓度过低(如 M 样品),可能需要进一步浓缩蛋白质,或将其透析至 1x 反应缓冲液中。请确保每种稀释浓度的样品均准备足够用量 "加F-actin" 和 "无F-actin" 样品 - 在超速离心管中,用1×反应缓冲液将目标蛋白稀释至所需浓度,制备样品(如第4节所述)。保持样品体积较小(40–60 μL)。 µL)通过使用最小体积较小的超速离心管,避免使用大量蛋白质(例如,7个20毫米长、每管容量0.2毫升的管子。
- 将F-actin加入适当的样品中,使其达到所需的最终浓度,并用1×反应缓冲液补足体积。例如,对于50-µ使用 2 微升的 L 反应 µM F-actin,确保每个样品含有25 µL of 2x 蛋白,10 µ10 L µM F-actin,以及15 µ1x 反应缓冲液。包括对照样品(步骤 4.4.2 和 4.4.3)。
注意:对于阴性对照和阳性对照,使用待测范围内的一个浓度(步骤 5.1),理想情况下选择该范围中点至高端附近的浓度例如, 4 µM,如果浓度范围为 0.1–10 µM)
- 将F-actin加入适当的样品中,使其达到所需的最终浓度,并用1×反应缓冲液补足体积。例如,对于50-µ使用 2 微升的 L 反应 µM F-actin,确保每个样品含有25 µL of 2x 蛋白,10 µ10 L µM F-actin,以及15 µ1x 反应缓冲液。包括对照样品(步骤 4.4.2 和 4.4.3)。
- 将所有样品在室温下孵育 30 分钟。
- 30 分钟后,取各样品的 1/5例如, 10 µ50-升的µL 反应)并混入 20 µ升水和10 µ4x 样品缓冲液,L
注意:这些是 "总计" 样品将用于生成标准曲线。 - 将样品加入超速离心转子中,在 4°C 条件下以 100,000 × g 离心 20 分钟 °C.
- 可选步骤:离心后,移除上清液的3/4例如, 30 µ如果离心体积为40 µL)并加入4倍上样缓冲液(10 µ在此情况下,将 L 置于另一微量离心管中。用加样枪头小心吸除剩余上清液,注意不要扰动沉淀。
注意:在测定结合亲和力时,无需上样分析上清液。然而,建议保存上清液,尤其是在检测新蛋白时。 - 如果不进行分析(步骤5.7),则移除上清液。
- 将沉淀重悬于1体积的1×上样缓冲液中(例如, 40 µ如果离心体积为40 µL)
- 向所有离心管中加入上样缓冲液,在室温下孵育至少5分钟。
- 用 p200 移液器枪头将样品吹打 8–10 次,持续冲洗管壁上的沉淀区域。吹打过程中应轻轻刮擦枪头接触沉淀部位,以促进重悬。
- 将重悬的蛋白质转移至微量离心管中。
注意:这些是 "沉淀" 样品 - 通过SDS-PAGE分析总样品和沉淀样品8尽可能将所有样品上样至同一块凝胶;若不可行,则将沉淀样品上样至一块凝胶,总样品上样至另一块凝胶。
注意:鉴于样本数量较多,建议使用大型凝胶系统进行分析。若在两个或更多凝胶上同时电泳样本,则必须确保所有凝胶的染色条件完全一致(即, 相同的考马斯亮蓝溶液以及相同的染色/脱色时间 - 使用可在宽动态范围内测量蛋白质条带强度的成像系统对考马斯亮蓝染色凝胶进行成像即 两到三个数量级)和线性范围。确保采集的图像无饱和像素。
注:基于激光的成像系统可提供最佳的灵敏度和信噪比。 - 使用 ImageJ 或类似的分析软件,测量蛋白条带强度并计算结合蛋白的量。
注意:对于所有样品测量,在 ImageJ 中使用选择工具在每条条带周围绘制感兴趣区域(ROI),并测量(分析) > 测量面积和平均灰度值。通过测量无样品区域的平均灰度值来计算每块凝胶的背景值。将每个感兴趣区域(ROI)的平均灰度值减去背景平均灰度值,然后乘以面积,得到每条条带的积分密度值。- 从总样本(Total)中测量目的蛋白条带的强度图 2A).
- 通过绘制条带强度(即, 积分密度测量值)与蛋白质质量(图2B).
- 测量与F-actin共沉淀的目标蛋白的量(共沉淀蛋白, 图2C).
- 测量在无F-actin存在时目标蛋白的沉降量(背景沉降, 图2D).
- 从共沉淀的蛋白质中减去背景沉淀值(即, 将步骤 5.13.3 的数值减去步骤 5.13.4 的数值,以确定与 F-actin 结合的蛋白量。
- 测定每个沉淀中F-actin的含量(图2E)。确定每个样品中F-actin的平均量,然后将每个样品的值除以该平均值,以计算各样品中F-actin相对于平均值的比值(即, 条带下方的数字)。
- 对于每个样品,将结合的蛋白量(按步骤 5.13.5 计算)除以 F-actin 肌动蛋白沉淀比例(步骤 5.13.6),以校正沉淀量之间的差异。
注:此值为归一化的结合蛋白量。 - 使用标准曲线(步骤 5.13.2)计算每个样品中归一化结合蛋白的量(质量)(步骤 5.13.7)。
注意:最初去除的蛋白质(上清液中的 "总计" 样品),以及上样量(若未将整个沉淀全部上样,则仅为沉淀的一部分)在计算沉淀的蛋白总量时必须予以考虑。 - 根据沉淀物中蛋白质的总质量(步骤 5.13.8 中计算得出)和样品体积,确定每个样品中结合蛋白的浓度。从起始浓度中减去该值,以确定游离蛋白的量。将结合蛋白的浓度除以肌动蛋白的浓度(µM/µM 的肌动蛋白)并相对于游离蛋白浓度作图,以生成结合曲线(图1C).
注意:由于F-actin并非单一均一的物种,因此很难根据G-actin浓度推算出F-actin的摩尔浓度。请使用起始的G-actin浓度来确定结合蛋白的量µM/µM 的肌动蛋白)并估算反应中结合位点的表观浓度。结合位点的浓度通常低于反应中肌动蛋白单体的浓度,因为并非所有肌动蛋白都会发生聚合,且单个肌动蛋白结合蛋白分子可与肌动蛋白丝上的多个单体发生接触。
- 使用统计学程序,确定亲和力(Kd)和 B最大 通过非线性最小二乘回归法从结合曲线中确定。
注意:不建议使用Scatchard图分析结合数据,部分原因是其可能掩盖结合是否达到饱和,并可能扭曲实验误差。10.
结果
我们在共沉淀实验中检测了αE-连环蛋白同源二聚体与F-肌动蛋白的结合。由于先前的实验表明,αE-连环蛋白同源二聚体对F-肌动蛋白的亲和力约为1 µM,且Bmax接近111,因此我们采用较低浓度的F-肌动蛋白(0.2 µM而非2 µM;参见讨论部分)进行实验。由于0.2 µM低于临界浓度,因此添加鬼笔环肽以稳定由兔骨骼肌G-肌动蛋白聚合而成的F-肌动蛋白(步骤3.3)。将不同浓度的αE-连环蛋白同源二聚体(0.125–12.0 µM)在有或无0.2 µM F-肌动蛋白的条件下孵育。样品经离心后,对所得沉淀物进行分析(图1A)。如预期所示,αE-连环蛋白同源二聚体与F-肌动蛋白共沉淀的信号高于背景水平(图1A,将含F-肌动蛋白的沉淀样品与不含F-肌动蛋白的沉淀样品比较)。以牛血清白蛋白(BSA)作为阴性对照(图1B)。对结合蛋白进行定量,并以游离蛋白为横坐标作图,以计算相互作用的亲和力(图1C)。拟合数据最符合Hill方程。计算得到的Kd为2.9 µM,Bmax为0.2,Hill系数(h)为4.8。因此,αE-连环蛋白同源二聚体以低微摩尔亲和力协同结合F-肌动蛋白,该结果与先前研究一致(Kd为2.9 µM,而先前报道约为1.0 µM)11。
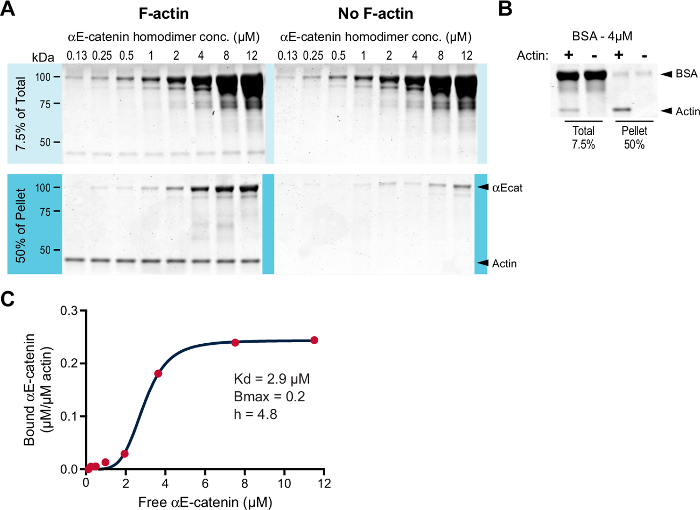
图 1: 高速 F-肌动蛋白共沉淀实验。(A)将不同浓度(0.125–12.0 µM)的 αE-连环蛋白同源二聚体与(左图)或不与(右图)0.2 µM 经鬼笔环肽稳定的 F-肌动蛋白共同孵育。室温孵育 30 分钟后离心。总样品(起始材料的 7.5%)和沉淀样品(沉淀物的 50%)通过 SDS-PAGE 分离,并用考马斯亮蓝染色。(B)以 4 µM BSA 作为阴性对照。总样品和沉淀样品,无论有(+)或无(-)F-肌动蛋白,均通过 SDS-PAGE 分离并用考马斯亮蓝染色。(C)将 A 中结合的 αE-连环蛋白(µM/µM 肌动蛋白)对游离的 αE-连环蛋白(µM)作图,数据拟合至 Hill 方程(红线)。Kd、Bmax 和 Hill 系数(h)已列出。请点击此处查看该图的放大版本。
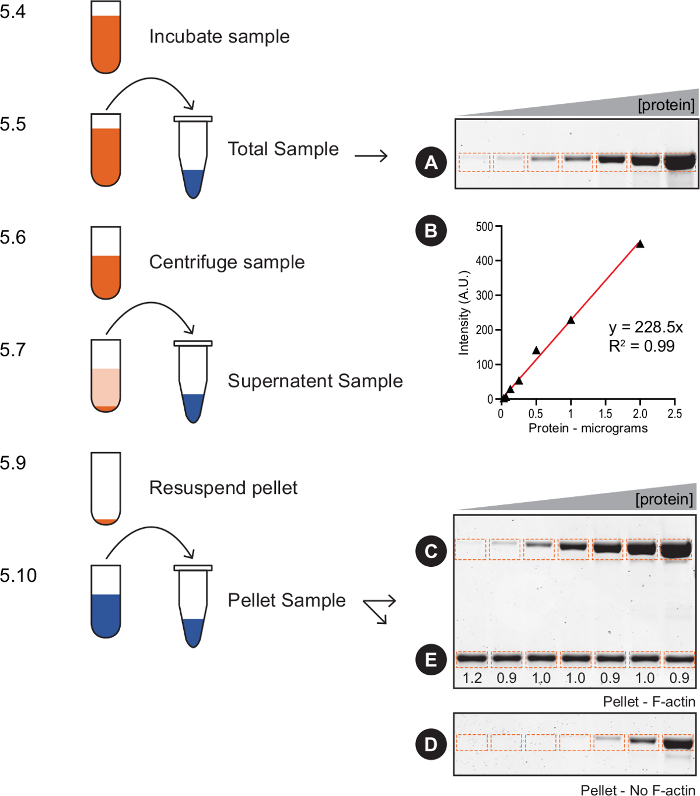
图 2: 肌动蛋白沉淀定量分析 ——流程图。 本示意图概述了第5节中的关键步骤,包括总样品(A、C-E)和用于定量的标准曲线(B)的示例。第5.13步: 1)测定总样品中目标蛋白质的含量(A)。2)通过绘制条带强度与蛋白质质量的关系曲线生成标准曲线(B)。3)测定与F-肌动蛋白共沉淀的目标蛋白质的量(C)。4)测定在无F-肌动蛋白存在时沉淀的目标蛋白质的量(D)。5)从C中减去D,以确定与F-肌动蛋白结合的蛋白质的量。6)测定每个沉淀中F-肌动蛋白的量(E),计算每个样品中F-肌动蛋白的平均量,并将每个样品除以该平均值(下方数字显示比值)。7)对每个样品,将结合蛋白的量(第5步计算得出)除以F-肌动蛋白沉淀比值(第6步计算得出),以校正沉淀之间的差异。8)利用标准曲线(B)计算每个样品中归一化后结合蛋白的量(质量)(第7步)。9)确定游离蛋白和结合蛋白的浓度,以绘制结合曲线。请点击此处查看该图的放大版本。
讨论
肌动蛋白共沉淀实验是一种简单直接的技术,可快速确定某种蛋白质是否与F-肌动蛋白结合。通过一些改进,该技术还可用于测定相互作用的亲和力。除上述实验方案中提到的要点外,在设计、实施和解读该实验时,还应考虑以下问题。
目的蛋白
可使用 freshly prepared 或冷冻的蛋白质进行实验。如果使用冷冻蛋白质,强烈建议将结果与新鲜(从未冷冻)蛋白质进行比较,以确保冷冻不会影响 F-肌动蛋白的结合能力。
G-肌动蛋白来源
许多沉淀实验使用从肌肉中分离的G-actin,因其相对丰度较高。哺乳动物中有三种主要的肌动蛋白同型异构体——α、β和γ,它们在结构上极为相似(>90% 序列同一性)。尽管如此,这些同工型之间仍存在功能差异12,13. 如果可能,结合实验中所用的G-actin同工型应与目标蛋白的来源相匹配 体内 同型对照。例如,若检测在骨骼肌中表达的蛋白,应选择α-肌动蛋白;若检测在成纤维细胞中表达的蛋白,则推荐使用β-肌动蛋白。
鬼笔环肽的使用
由于鬼笔环肽可结合F-肌动蛋白,因此可能干扰甚至阻断某些F-肌动蛋白结合蛋白的结合例如, 鬼笔环肽阻止cofilin与肌动蛋白丝结合14因此,使用鬼笔环肽时应谨慎,并在可能的情况下将结果与未使用鬼笔环肽处理的样本进行比较。
高背景
在没有F-actin的情况下,蛋白质发生沉淀并不少见(图1A,无F-actin沉淀样品)。然而,过高的背景沉淀可能会掩盖真实的肌动蛋白共沉淀现象,使得难以甚至无法判断某蛋白质是否结合F-actin,或难以测定其相互作用的亲和力。在反应缓冲液中添加聚乙烯醇(polidicanol)(步骤4.1)可显著降低背景沉淀,是一种简便的解决方案。如果该方法仍不能降低背景,可尝试调整反应缓冲液、盐浓度和/或孵育温度。
结合曲线
为了生成结合曲线,需要在一系列反应中改变目的蛋白或F-肌动蛋白的浓度。在实际操作中,更简便且推荐的方法是保持F-肌动蛋白浓度恒定,而改变目的蛋白的浓度。在沉降实验中,将F-肌动蛋白维持在固定浓度(例如,2 µM),可避免在较高F-肌动蛋白浓度下发生非特异性滞留,并防止在较低(<0.5 µM)浓度下发生解聚。虽然可以使用鬼笔环肽来防止解聚,但这会为系统引入潜在的干扰因素(见步骤3.3及上文)。保持F-肌动蛋白浓度恒定还有助于在不同样品间比较(并进行归一化处理)F-肌动蛋白沉淀量,从而识别失败的实验(即,F-肌动蛋白沉淀量差异显著,导致无法进行跨浓度分析)。最后,保持F-肌动蛋白浓度恒定还可用于判断目的蛋白与肌动蛋白丝的结合是否具有协同性(图1C)。
饱和结合
与所有结合实验一样,关键是要确保与F-肌动蛋白的结合达到饱和,且蛋白质与F-肌动蛋白的浓度达到平台期(图1C)。若未达到平台期,则无法准确计算解离平衡常数。因此,必须仔细设计待测试的稀释梯度,并始终包含较高浓度的蛋白质(即,至少比预期的Kd高5至10倍)。
结合分析
为了使测得的解离常数具有明确意义,实验应使用一种F-actin浓度,使得F-actin上目标蛋白的结合位点浓度远低于其亲和力。为验证是否满足此条件,可通过Bmax估算结合位点的浓度。例如,若[F-actin]为2 µM且Bmax = 0.5,则[结合位点] ≈ 1 µM。Kd应至少比[结合位点]高5至10倍。如果测得的Kd与[结合位点]处于同一数量级,则观察到的结合曲线可能反映的是高亲和力结合位点的滴定过程,而非真实的结合等温线。若出现此情况,应重复实验,使用低10倍的F-actin浓度以准确测定亲和力。对于高亲和力相互作用,可能需要使用鬼笔环肽稳定(步骤3.3),以实现足够低的F-actin浓度,从而准确测定亲和力。
最后,研究人员在进行和评估共沉淀实验时,应意识到该实验存在一些基本的局限性。最重要的是,共沉淀实验无法获得真正的平衡常数。结合反应的产物即, 蛋白与F-actin复合物)在离心过程中与反应物分离,随后产物可解离并建立新的平衡。因此,共沉淀实验可能低估或无法检测到低亲和力的相互作用。由于许多肌动蛋白结合蛋白具有较低的(即, 微摩尔级)对F-肌动蛋白的亲和力,阴性结果(即, 在该检测中未检测到结合信号并不一定意味着蛋白质不与F-actin结合。作为替代方法,基于全内反射荧光显微镜(TIRF)的单丝结合实验在测定解离常数时具有更高的灵敏度和准确性(有关该技术的综述,请参见参考文献)15,16尽管存在这些局限性,沉淀实验仍处于大多数研究人员的能力范围内,是确定蛋白质是否结合F-actin以及测量其相互作用亲和力的有效工具。
披露
作者声明不存在任何竞争性经济利益。
致谢
本工作获得了美国国立卫生研究院资助项目HL127711(授予AVK)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 索瓦尔 MTX 150 微型超速离心机 | 赛默飞世尔科技 | 46960 | |
| S100-AT3 转子 | 赛默飞世尔科技 | 45585 | |
| 超速离心管 - 0.2 mL | 赛默飞世尔科技 | 45233 | |
| 肌动蛋白,兔骨骼肌来源 | Cytoskeleton | AKL99 | |
| 牛血清白蛋白 | Sigma | A8531 | |
| 聚乙二醇十二烷基醚(Thesit) | Sigma | 88315 | |
| 鬼笔环肽 | 赛默飞世尔科技 | P3457 | |
| 二硫苏糖醇(DTT) | 赛默飞世尔科技 | R0862 | |
| 三磷酸腺苷(ATP) | Sigma | A2383 | |
| 咪唑 | 费希尔科技 | O3196 | |
| 氯化钠(NaCl) | 费希尔科技 | BP358 | |
| 氯化镁(MgCl2) | 费希尔科技 | M33 | |
| 氯化钾(KCl) | 费希尔科技 | P217 | |
| 乙二醇双(β—氨基乙基醚)四乙酸(EGTA) | Sigma | 3779 | |
| Odyssey CLx 成像系统 | LI-COR | ||
| 考马斯亮蓝 R-250 染料 | 赛默飞世尔科技 | 20278 | |
| 胶体蓝染色试剂盒 | 赛默飞世尔科技 | LC6025 |
参考文献
- Pollard, T. D. Actin and Actin-Binding Proteins. Cold Spring Harb Perspect Biol. 8 (8), (2016).
- Hansen, M. D., Kwiatkowski, A. V. Control of actin dynamics by allosteric regulation of actin binding proteins. Int Rev Cell Mol Biol. 303, 1-25 (2013).
- Lappalainen, P. Actin-binding proteins: the long road to understanding the dynamic landscape of cellular actin networks. Mol Biol Cell. 27 (16), 2519-2522 (2016).
- Mullins, R. D., Hansen, S. D. In vitro studies of actin filament and network dynamics. Curr Opin Cell Biol. 25 (1), 6-13 (2013).
- Miller, P. W., et al. Danio rerio alphaE-catenin is a monomeric F-actin binding protein with distinct properties from Mus musculus alphaE-catenin. J Biol Chem. 288 (31), 22324-22332 (2013).
- Wickline, E. D., et al. alphaT-Catenin Is a Constitutive Actin-binding alpha-Catenin That Directly Couples the Cadherin.Catenin Complex to Actin Filaments. J Biol Chem. 291 (30), 15687-15699 (2016).
- Simpson, R. J., Adams, P. D., Golemis, E. Basic methods in protein purification and analysis : a laboratory manual. , Cold Spring Harbor Laboratory Press. (2009).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Dyballa, N., Metzger, S. Fast and sensitive colloidal coomassie G-250 staining for proteins in polyacrylamide gels. J Vis Exp. (30), (2009).
- Pollard, T. D. A guide to simple and informative binding assays. Mol Biol Cell. 21 (23), 4061-4067 (2010).
- Hansen, S. D., et al. alphaE-catenin actin-binding domain alters actin filament conformation and regulates binding of nucleation and disassembly factors. Mol Biol Cell. 24 (23), 3710-3720 (2013).
- Perrin, B. J., Ervasti, J. M. The actin gene family: function follows isoform. Cytoskeleton (Hoboken). 67 (10), 630-634 (2010).
- Tondeleir, D., Vandamme, D., Vandekerckhove, J., Ampe, C., Lambrechts, A. Actin isoform expression patterns during mammalian development and in pathology: insights from mouse models. Cell Motil Cytoskeleton. 66 (10), 798-815 (2009).
- Prochniewicz, E., Janson, N., Thomas, D. D., Dela Cruz, E. M. Cofilin increases the torsional flexibility and dynamics of actin filaments. J Mol Biol. 353 (5), 990-1000 (2005).
- Kuhn, J. R., Pollard, T. D. Real-time measurements of actin filament polymerization by total internal reflection fluorescence microscopy. Biophys J. 88 (2), 1387-1402 (2005).
- Hansen, S. D., Zuchero, J. B., Mullins, R. D. Cytoplasmic actin: purification and single molecule assembly assays. Methods Mol Biol. 1046, 145-170 (2013).
重印与许可
