本研究采用多光谱成像流式细胞术,结合分析功能,对3种自噬标志物的明场细节图像进行比较,并定量分析其共定位情况,同时进行LC3斑点计数,从而以客观、定量且具有统计学稳健性的方式检测自噬水平。
本文内容
摘要
摘要
自噬是一种分解代谢途径,通过溶酶体降解在生长和分化过程中积累的正常或功能异常的细胞组分,并实现其再循环。在自噬过程中,细胞质中的LC3蛋白发生脂化修饰,并被招募至自噬体膜上。随后,自噬体与溶酶体融合形成自噬溶酶体,在其中自噬体囊泡及其内容物被降解。与LC3结合的泛素结合蛋白p62也常用于监测自噬流。发生自噬的细胞应表现出p62、LC3和溶酶体标志物的共定位。免疫荧光显微镜已被用于在单细胞水平上直观识别LC3斑点、p62和/或溶酶体。然而,获得客观且具有统计学严谨性的评估结果往往较为困难。为克服这些问题,本研究结合多光谱成像流式细胞术与一种分析功能,该功能通过比较三种自噬标志物(LC3、p62和溶酶体LAMP1)的亮细节图像,量化其共定位程度,并结合LC3斑点计数,以实现对自噬水平的客观、定量且统计学稳健的测量。
引言
巨自噬(下文简称自噬)是一种分解代谢途径,通过该途径降解受损或功能异常的组分、长寿命蛋白质以及细胞器 通过 溶酶体中被回收利用1自噬是一个动态的多步骤过程,包括自噬体的形成、自噬体与溶酶体融合形成自噬溶酶体,以及自噬溶酶体内容物的降解。2关键的生物标志物微管相关蛋白1A/1B轻链3(LC3)是哺乳动物系统中用于识别自噬的标志性分子,该蛋白构成自噬体膜。在自噬过程中,胞质中的LC3-I与磷脂酰乙醇胺共价结合形成LC3-II;随后LC3-II被整合到自噬体膜中3另一个广泛用于自噬流检测的标志物是自噬受体sequestosome 1(SQSTM1,p62),它可将自噬底物与自噬膜在物理上连接起来4,5.
传统上用于检测自噬的方法包括蛋白质印迹法(Western blot)和荧光显微镜技术7。然而,这两种方法均未被视为自噬检测的"金标准"2,6,因为它们各自存在一定的技术局限性。蛋白质印迹法仅能提供平均值,因其使用的是组织或细胞匀浆样本,因此无法观察单个细胞内的自噬动态变化。另一方面,荧光显微镜可在单细胞水平提供信息,但通量较低,难以实现客观且具有统计学意义的定量分析。近年来,利用多光谱成像流式细胞术(MIFC,参见材料表)检测LC3和p62的方法日益受到关注,因其具备定量能力强、高通量、多重检测潜力以及可对每个细胞进行成像的优势。目前最广泛使用的基于MIFC(及其配套分析软件,参见材料表)的自噬检测方法之一是通过计数LC3点状结构(puncta)或自噬小体的数量8,9,10,11,12,13,14,15,16,17。然而,自噬小体数量的增加并不一定意味着自噬活性增强,也可能反映自噬过程受阻2。LC3-II的周转率是一个可用于评估自噬流(autophagic flux)的有效参数,通常通过比较在存在与不存在溶酶体降解抑制剂(如氯喹)条件下细胞中的LC3-II水平来实现。氯喹可抑制自噬小体与溶酶体的融合,从而在溶酶体降解发生前阻断自噬流,使得自噬小体的形成量得以被定量,进而反映自噬程度18。此外,p62主要通过自噬途径降解,当自噬小体及其内容物的溶酶体降解被阻断时,p62会出现累积17,19。
自噬是一个多步骤的过程,单独检测LC3或p62并不能完整反映细胞内的实际变化。近期多项研究强调,需要同时观察自噬溶酶体的形成2,17,20,21。多光谱成像流式细胞术(MIFC)能够通过成像自噬小体与溶酶体的共定位,独特地检测自噬溶酶体的形成15-17,20,21,22,23,24,25,26。此外,已有研究利用MIFC检测p62与LC3的共定位,以评估自噬流5。在所引用的分析软件中,用于测量共定位的"特征"被称为"Bright Detail Similarity R3"(BDS),该参数专门设计用于比较两幅图像中微小而明亮的细节区域。BDS是半径小于或等于3个像素的局部亮斑的对数转换后的Pearson相关系数;换句话说,BDS计算的是两个不同荧光通道中重叠像素的程度。这些亮斑可能是相关的(即空间位置相同)或不相关的(即空间位置不同)。因此,相关系数的取值范围为0(无相关性)到1(完全相关)。该系数经过对数转换,以将其范围扩展至从0到无穷大26,27。然而,仅使用BDS可能并不充分;Rajan 等发现,仅依赖BDS可能导致假阳性或假阴性结果21。BDS评估的是两种自噬标志物的共定位情况,但未考虑自噬小体的数量。为纳入自噬小体数量的影响,Rajan 等引入了LC3点状结构的计数分析21。Rajan 等建议采用LC3点状结构数量与BDS的双变量散点图进行分析。通过该双变量图,首先可识别出两个细胞群体:一类是LC3点状结构水平较高的细胞,另一类是LC3点状结构水平较低的细胞。其中高LC3点状结构群体可进一步分为两类:共定位程度低的细胞(即自噬小体积累)和共定位程度高的细胞(即自噬溶酶体积累)。该双变量图有助于区分自噬小体极少的细胞与自噬小体和/或自噬溶酶体积累的细胞21。
迄今为止,使用单一方法同时实现LC3、p62和LAMP1(溶酶体标志物)的共定位尚不可行 "特征类型" 在MIFC伴生分析软件中(参见 材料表)。然而,6.1 版本中最近引入的一项新功能称为亮细节共定位 3(Bright Detail Colocalization 3, BDC3)。BDC3 比较来自三幅图像中每幅图像的亮细节部分(本例中为 LC3、p62 和 LAMP1),并量化三种探针的共定位情况即, LC3、p62 和 LAMP1)。BDC3 特征计算的是扩展至三幅图像的皮尔逊相关系数。由于三幅图像中的亮斑点可能相关或不相关,因此相关系数在 0(不相关)到 1(完全相关)之间变化。该系数经过对数变换以扩大动态范围,从 0 到无穷大。通过将 BDS 特征替换为 BDC3 特征,Rajan 提出的分析方法 等 现在可以在同一系统中同时整合三种最常用的自噬检测标志物。在单次实验中实现这三种自噬标志物的共定位,有助于深入理解自噬的诱导及其调控机制。以下实验方案详细描述了在Jurkat细胞中诱导自噬、使用LC3、p62和LAMP1抗体对细胞进行标记、在多光谱成像流式细胞仪上获取数据,以及分析数据以评估自噬流的完整步骤。
方案
1. 培养基与溶酶体降解抑制剂的制备
- 1.1. 配制约 500 mL 的 1 倍 RPMI 培养基。向 500 mL 的 RPMI-1640 1 倍培养基瓶中加入 5 mL MEM 非必需氨基酸(100 倍)、5 mL 丙酮酸钠(100 mM)、5 mL 青霉素-链霉素-谷氨酰胺混合液(100 倍)以及 25 mL 胎牛血清(FBS)。培养基应在生物安全柜中配制。将 RPMI 培养基储存于 2–8 °C。使用前将 RPMI 培养基预热至 37 °C。
- 配制 100 mM 氯喹,即溶酶体降解抑制剂。称取 0.05 g 二磷酸氯喹,加入 1 mL 细胞培养级水中,置于 15 mL 离心管中。涡旋振荡直至氯喹完全溶解。
2. 细胞培养
- 在37 °C、5% CO2条件下,将80 mL Jurkat细胞系E6-1接种于RPMI培养基中进行培养。
注意:在固定前培养或操作Jurkat细胞时,所有操作均应在生物安全柜中进行。 - 诱导自噬前,使用血细胞计数板或其他细胞计数装置对Jurkat细胞进行计数,以确定细胞浓度(个/mL)。
3. 诱导细胞自噬
- 取处于对数生长期的Jurkat细胞,用50 mL离心管将其分为四份,每份20 mL。将离心管标记为"对照组"、"对照组 + 氯喹"、"饥饿组"和"饥饿组 + 氯喹"。
注意:Jurkat细胞浓度应为2.5–5 × 10⁵ 个细胞/mL。 - 向每份样品中加入30 mL不含Ca2+或Mg2+的Hank's平衡盐溶液(HBSS),洗涤细胞。在250 × g条件下离心10分钟,将上清液倒入废液杯中。
- 使用25 mL无菌一次性移液管,通过反复吹打将对照组样品重悬于20 mL RPMI培养基中,随后轻轻涡旋混匀。同样,将饥饿组样品用25 mL无菌一次性移液管重悬于20 mL不含Ca2+或Mg2+的Earle's平衡盐溶液(EBSS)中。
- 使用25 mL无菌一次性移液管,将对照组和饥饿组样品转移至已标记为"对照组"、"对照组 + 氯喹"、"饥饿组"和"饥饿组 + 氯喹"的T75培养瓶中。
- 向标记为"对照组 + 氯喹"和"饥饿组 + 氯喹"的培养瓶中的20 mL细胞培养基中各加入20 µL 100 mM氯喹。通过轻轻旋转培养瓶使氯喹充分混匀。将所有培养瓶置于37 °C、5% CO2的培养箱中孵育2小时。
4. LC3、LAMP1 和 p62 固定与标记用缓冲液的制备
- 在15 mL离心管中,将4 mL的10%甲醛母液加入1 mL不含Ca2+或Mg2+的10倍浓度杜氏磷酸盐缓冲液(PBS)和5 mL超纯水中,配制10 mL的4%甲醛固定液。
注意:警告。甲醛/福尔马林若被吸入或吞咽具有毒性;对眼睛、呼吸系统和皮肤具有刺激性;可能通过吸入或皮肤接触引起致敏。存在对眼睛造成严重损伤的风险。其为潜在致癌物。 - 在15 mL离心管中,将1 mL的10%甲醛母液加入9 mL的1倍浓度PBS中,配制10 mL的1%甲醛终末重悬液。
- 向500 mL的1倍浓度PBS瓶中加入10 mL胎牛血清(FBS),配制500 mL洗涤缓冲液。
- 在50 mL离心管中,将0.5 mL的10% Triton X-100加入第4.3步配制的49.5 mL洗涤缓冲液中,配制50 mL通透缓冲液。
- 将5 µL抗SQSTM1/p62-Alexa 488(AF488)抗体加入第4.4步配制的495 µL通透缓冲液中,配制抗SQSTM1/p62-AF488抗体/通透缓冲液工作液。确保终浓度为5 µg/mL。
注意:在即将加入样本前配制抗体通透缓冲液工作液。避免光照。 - 将5 µL小鼠抗LC3抗体加入第4.4步配制的495 µL通透缓冲液中,配制小鼠抗LC3/通透缓冲液工作液。确保终浓度为20 µg/mL。
注意:在即将加入样本前配制抗体通透缓冲液工作液。避免光照。 - 将5 µL Alexa 647(AF647)标记的驴抗小鼠IgG抗体加入第4.4步配制的495 µL通透缓冲液中,配制驴抗小鼠-AF647/通透缓冲液工作液。确保终浓度为20 µg/mL。
注意:在即将加入样本前配制抗体通透缓冲液工作液。避免光照。 - 将25 µL抗人CD107a(LAMP1)-PE抗体加入第4.4步配制的495 µL通透缓冲液中,配制抗人CD107a(LAMP1)-PE抗体/通透缓冲液工作液。确保终浓度为21 µg/mL。
注意:在即将加入样本前配制抗体通透缓冲液工作液。避免光照。 - 将4 µL的5 mg/mL DAPI和100 µL的10% Triton X-100加入896 µL的1倍浓度PBS中,配制10倍浓度DAPI核染液。
5. 使用 LC3、LAMP1 和 p62 标记 Jurkat 细胞
- 移除 2 x 10⁶ 每份样品的细胞数(按步骤2.2的方法计数细胞)。将每份样品置于已标记相应样品名称的15 mL离心管中(即, 对照、对照+氯喹、饥饿处理、饥饿处理+氯喹
- 加入洗涤缓冲液,使每个15 mL离心管中的总体积为15 mL。在250 × g下离心样品10分钟。吸除上清液。
- 向每个细胞沉淀中加入100 µL 4%多聚甲醛固定液,用P200移液器吹打重悬。室温孵育10分钟。固定期间,将样品转移至已标记的硅化聚丙烯微量离心管中。
注意:切勿过度固定细胞,否则可能导致标记效果不佳。 - 固定10 min后,向每个样品中加入1 mL洗涤缓冲液。使用P1000移液器上下吹打混匀样品。在250 × g下离心5 min。吸除上清液。
- 向每个样本中加入 100 µL 抗 SQSTM1/p62 - AF488 抗体/通透缓冲液工作液。使用 P200 移液器吹打混匀。室温避光孵育 30 分钟。
- 向每个样本中加入1 mL破膜缓冲液洗涤细胞。使用P1000移液器吹打混匀。在250 × g下离心5分钟。吸除上清液。
- 对每种抗体工作溶液重复步骤 5.4–5.5。
注意:抗体工作液分别为小鼠抗 LC3/透化缓冲液工作液、驴抗小鼠-AF647/透化缓冲液工作液以及抗人 CD107a(LAMP1)-PE 抗体/透化缓冲液工作液。每种抗体应单独处理,并按所列顺序依次进行。该顺序的选择旨在最大限度减少抗体之间的非特异性交叉反应。 - 加入100 µL 1% 福尔马林溶液。使用P200移液器吹打混匀。向每个样品中加入10 µL 10x DAPI核染料。轻轻涡旋每个样品以混匀。避光、室温孵育10分钟,然后上机检测。
注意:此时,样品可直接用于MIFC检测,或在2-8 °C避光保存最多一周。
6. 单色对照的标记
- 每个单色对照(即, AF488、PE、AF647 和 DAPI),取 1 × 10⁶ Jurkat 细胞,可来自任意样本群体。加入 1 x 10⁶ 在标记为 AF488、PE、AF647 或 DAPI 的 15 mL 离心管中的细胞。
- 加入洗涤缓冲液,使每个15 mL离心管中的总体积为15 mL。将样品在250 × g下离心10分钟。吸除上清液。
- 向 AF488、PE 和 AF647 管中各加入 100 µL 洗涤缓冲液。
注意:对于 DAPI 管,请转至步骤 6.8。- 使用P200移液器反复吹打重悬,转移至1.5 mL离心管中。
- 向AF488、PE或AF647试管中分别加入5 µL的anti-CD45-AF488、anti-CD45-PE或anti-CD45-AF647抗体。轻轻涡旋混匀。
- 将AF488、PE和AF647管在室温避光条件下孵育30分钟。
注意:可使用其他标记物,例如 LC3、p62 和 LAMP-1 抗体替代抗 CD45 抗体。然而,CD45 是单色对照的可靠标记物。 - 向每个样品中加入 1 mL 洗涤缓冲液,洗涤 AF488、PE 和 AF647 标记的细胞。
- 使用P1000移液器上下吹打混匀样品。在250 × g下离心5分钟。吸除上清液。
- 加入100 µL 1%甲醛溶液,用P200移液器上下吹打重悬。
注意:此时,样品可直接用于MIFC检测,或在2-8 °C避光保存最多一周。 - 向DAPI管中加入100 µL 1%甲醛固定液。
- 用P200移液器上下吹打重悬。室温孵育30分钟。
- 向DAPI样品中加入10 µL的10倍浓度DAPI核染色液,轻轻涡旋混匀。避光室温孵育10分钟,然后上机检测。
注意:此时,样品可直接用于MIFC检测,或在2-8 °C避光保存最多一周。
7. 启动并校准MIFC
- 检查鞘液、系统校准试剂(参见材料表)、去泡器、清洗液和消毒剂容器是否已加满,并确认废液罐为空。若未满足,请加满各容器并清空废液罐。
- 启动系统,双击软件(参见材料表)图标以运行程序;这将启动MIFC软件。
- 点击启动按钮,并确保已选择启动所有校准和测试选项。系统将自动冲洗管路,加载鞘液和系统校准试剂,并完成系统校准。
8. 在MIFC上运行样本及单色对照
- 通过前往加载默认模板 文件 标签并选择 加载默认模板.
注意:默认模板包含原始的最大像素点图。 - 打开488 nm、405 nm、642 nm和SSC激光器,方法是单击对应激光器的按钮。通过在每个激光器按钮旁输入所需的功率值来设置激光功率。参见 图1.
注意:本实验中,488 nm、405 nm、642 nm 和 SSC 的激光功率分别为 200 mW、20 mW、150 mW 和 5 mW(Ch06)。MIFC 默认模板的放大倍数设为 40X,默认灵敏度为 你好,以及 所有通道 已启用。 - 确认放大倍数滑块已设置为40X,已选择高灵敏度模式,且所有通道均在图像库中显示; 图1 显示本实验所用的仪器设置。
- 加载 "饥饿处理 + 氯喹" 通过点击样本来 加载 按钮并将1.5 mL离心管装载到仪器上。
注意:该实验样本在AF488、PE和AF647通道中的信号应为所有样本中最强,而DAPI信号在所有实验样本(包括该样本)中的强度应大致相同 "饥饿处理 + 氯喹" 样本)。 - 使用 "饥饿处理 + 氯喹" 样本以确认488 nm、405 nm、642 nm和SSC激光器的激光功率设置恰当。利用默认模板中的原始最大像素点图调整激光功率,使信号强度足够强,但不超过4,096的原始最大像素值,以避免仪器CCD相机饱和。所有实验样本均使用此激光设置。
- 点击 创建点图 创建新点图的图标。选择 "面积_M01" 在X轴上 "长宽比_M01" Y轴上 "全部" 群体。点击 创建多边形区域 图标。在细胞周围绘制一个区域。将此区域命名 "细胞"
注意:用户可添加额外的图和区域,以进一步缩小待收集细胞的范围。常见的附加图是梯度均方根(Gradient RMS),用于识别处于焦平面的细胞。 - 设置采集参数。指定文件名和目标文件夹,更改采集事件数量至 "5,000," 并选择 "细胞" 收集群体。点击 获取 单击按钮以获取文件。收集完文件后,单击返回样本 返回 按钮。从仪器中取出样本管。
- 接下来的三个样本("饥饿处理," "对照组" 和 "对照 + 氯喹"),加载样品,输入样品名称,采集样品,并使用与之前相同的设置返回样品 "饥饿处理 + 氯喹" 样本,如上所述。
- 样本采集完成后,运行单色对照样本并采集数据,以生成补偿矩阵。通过点击关闭SSC激光器 SSC 按钮。通过点击关闭明场通道 明场 按钮并选择 关闭.
注意:如果在实验样本采集过程中已将通道从图像库中移除,请重新启用所有通道。或者,可通过单击来获取单色对照。 补偿 标签并选择 创建矩阵;这将打开补偿向导,指导用户完成文件采集和创建补偿矩阵的步骤。 - 单击“加载”按钮,将1.5 mL离心管放入仪器中,加载DAPI单色对照。输入样本名称(仅DAPI),设置采集群体为 "全部" 并更改事件数量为 "500."
- 点击 获取 单击按钮以获取单色对照文件。
- 当文件采集完成后,单击返回样品 返回 按钮。从仪器中取出样本管。
- 在 DAPI 样本之后,像加载样本一样,点击加载 10% 漂白剂 加载 按钮,并在1.5 mL离心管中加入100 µL 10%次氯酸钠溶液。让样品运行约15秒,以去除管中残留的DAPI。
- 运行100 µL的1x PBS(操作同8.10.3),以去除残留的10%次氯酸钠溶液。此时仪器已准备好运行AF488、PE和AF647单色对照。
- 对每种单色对照重复步骤 8.10–8.10.2(即, AF488、PE 和 AF647。
注意:这些样品之间无需运行10%漂白液或PBS,仅在DAPI单色对照之后需要。
9. MIFC 分析软件中的数据分析
- 启动MIFC分析软件(参见 材料表).
- 点击 开始分析 开始 打开文件向导. 通过浏览选择要打开的数据文件 "饥饿处理 + 氯喹" 原始图像文件(.rif)。选择该文件并点击 打开 按钮。单击 下一步.
- 应用补偿。选择一个先前创建的补偿矩阵,然后单击 下一步. 或者,通过点击 新基质 按钮
注意:步骤 9.2.1.1–9.2.1.2 是创建新矩阵的操作步骤。- 添加单色对照文件(即, DAPI 单独、AF488 单独、PE 单独和 AF647 单独)至 对照文件 点击列表 添加文件,选择文件,然后单击 打开 按钮。单击 下一步.
- 该 创建补偿矩阵 将为此实验弹出窗口。请确保选中 Ch02、Ch03、Ch07 和 Ch11,然后点击 下一步补偿矩阵将被创建。点击 完成 保存补偿矩阵。将补偿文件添加到 打开文件向导 并点击 下一步.
- 应用分析模板。此阶段尚无可用的分析模板,因此点击 下一步.
注意:对于其他实验文件,此 "饥饿 + 氯喹.daf" 文件可作为模板使用。 - 命名文件(文件名需与对应的 "rif" 名称将自动生成)并单击 下一步设置图像显示属性,方法是选择 "02," "03," "07," 和 "11" 通道;已预选通道 01、06 和 09。点击 下一步.
- 应用补偿。选择一个先前创建的补偿矩阵,然后单击 下一步. 或者,通过点击 新基质 按钮
- 在结束时 打开文件向导,选择 细胞凋亡向导. 点击 细胞凋亡向导 图标,然后点击 选择向导 打开按钮 细胞凋亡向导.
- 选择核图像通道(Ch07)并单击 下一步. 在最佳焦距下对细胞进行门控。点击 创建线性区域 图标并在梯度 RMS_M01_Ch01 的 60-90 范围内绘制一个区域。将此区域命名为 "聚焦" 点击 好的,然后单击 下一步.
- 圈选单个细胞。点击 创建多边形区域 图标。围绕单个细胞绘制区域,并为该区域命名 "单个," 点击 好的,然后单击 下一步. 点击 无 用于 "您是否要分析亚群?"
- 圈选有核细胞。点击 创建线性区域 图标并绘制一个包含所有有核细胞的区域。为该区域命名 "有核的。" 点击 好的 和 下一步.
- 圈定凋亡细胞。点击 创建多边形区域 图标。在凋亡细胞周围绘制区域;这些细胞具有较低的核面积_T50%和较高的明场对比度。点击 完成. 通过单击添加第二个区域 创建多边形区域 图标并围绕非凋亡细胞绘制一个区域;将此区域命名为 "细胞"
- 选择 LAMP1、p62 和 LC3 阳性的细胞。点击 基础模块 图标,选择 荧光阳性——单色,并选择 "细胞" 种群和 强度_MC_Ch03. 标注 X 轴 "强度 LAMP1" 绘制一个包含强度大于10,000的细胞的区域,方法是单击 创建线性区域 图标并绘制该区域。将此区域标记为 "LAMP1+" 按照9.4中的相同步骤,选择p62和LC3阳性的细胞。
- 选择 p62+ "LAMP1+" 种群和 强度_MC_Ch02. 标注 X 轴 "p62 强度" p62+ 细胞区域 "LAMP1+/p62+" 对于 LC3+,选择 "LAMP1+/p62+" 种群与强度_MC_Ch11。标记X轴 "LC3 强度" LC3+ 细胞区域 "LAMP1+/p62+/LC3+" 使用此方法 "LAMP1+/p62+/LC3+" 用于后续分析的群体。
- 创建一个点计数功能以统计 LC3 斑点数量。
注意:应使用以下方法创建 "饥饿处理 + 氯喹" 样品- 点击 分析 标签并选择 口罩. 点击 新 然后 功能 按钮。在下方 功能,选择 峰值; 口罩,选择 M11;以及 通道,选择 Ch11. 设置 点与细胞背景比值 到 4. 点击 好的 关闭 定义掩膜功能 窗和 好的 以将其添加到 口罩 列表。点击 关闭 退出 口罩管理器.
- 点击 分析 标签并选择 特点. 点击 新 按钮。在下方 特征类型,选择 斑点计数 以及在……之下 口罩,选择 峰值 (M11,Ch11,Bright,4)。类型 "LC3 斑点计数" 对于 名称 并单击 好的 和 关闭 退出 功能经理.
注意: 斑点 向导也可用于创建斑点计数特征。本实验中使用的斑点计数特征可能不适用于其他实验和/或细胞系。用户在为特定数据集选择斑点计数掩模/特征时,应测试多种斑点计数掩模/特征。Pugsley 2017 提供了使用 MIFC 分析软件进行斑点计数的更多详细信息26. - 点击 新直方图 图标。选择 "LAMP1+/p62+/LC3+" 群体。选择“Spot Count LC3”功能并点击 好的.
- 创建 BDC3 特征。
- 点击 分析 标签并选择 特点. 点击 新 按钮。在下方 特征类型,选择 明亮细节共定位 3; 口罩,选择 MC; 图像 1,选择 Ch02 (p62) 图像 2,选择 Ch03 (LAMP1);以及 我图像 3,选择 Ch11 (LC3)。类型 "BDC3 p62/LAMP1/LC3" 对于 名称 并单击 好的 和 关闭 退出 功能经理.
- 点击 新直方图 图标。选择 "LAMP1+/p62+/LC3+" 群体。选择 BDC3 p62/LAMP1/LC3 特征并单击 好的.
- 点击 新的散点图 图标。选择 "LAMP1+/p62+/LC3+" 群体。选择 BDC3 p62/LAMP1/LC3 X轴。选择 LC3 斑点计数 Y轴的特征。点击 好的.
- 保存 "饥饿处理 + 氯喹" 文件。单击 文件 并选择 保存数据分析文件 (.daf). 点击 保存 和 是 以替换文件的先前版本;此文件现在可用作模板。
- 打开 "对照" 文件。单击 文件 然后 打开. 选择" 对照.rif" 文件并点击 打开. 从步骤 9.2.1 中选择补偿矩阵以及 "饥饿 + 氯喹.daf" 文件作为模板。点击 好的.
- 创建用于自噬体聚集和自噬溶酶体聚集的区域,使用 "对照" 样本以设定区域。
- 点击 创建矩形区域 图标。绘制一个X坐标从-0.1到3、Y坐标从1.5到-0.3的区域。将此区域命名为 "低点" 点击 创建矩形区域 图标。绘制一个X坐标从-0.1到1、Y坐标从17.5到1.5的区域。将此区域命名为 "高亮点/低BDC3"
- 单击“创建矩形区域”图标。绘制一个X坐标范围为1至3、Y坐标范围为17.5至1.5的区域。将此区域命名为 "高亮点/高BDC3"
- 保存 "对照" 文件。单击 文件 并选择 保存数据分析文件 (.daf)). 点击 保存 和 是 以替换文件的先前版本;此文件现在可用作模板。
- 打开 "对照 + 氯喹" 点击文件以 文件 然后 开放. 选择 "对照 + 氯喹/利福平" 文件并点击 开放. 从步骤 9.2.1 中选择补偿矩阵以及 "对照.daf" 文件作为模板。点击 好的. 对其重复此操作 "饥饿处理" 和 "饥饿处理 + 氯喹" 文件。
注意:分析软件中的批处理功能也可用于将补偿矩阵和/或模板应用于其他文件。最终的设门策略如下所示 图2.
结果
该分析方法利用多个特征来评估自噬流。为了充分理解最终的双变量图,必须首先考察各个分析特征。计数自噬体是测量自噬的一种合理方式;然而,LC3 斑点的大小、形状和亮度在不同细胞之间可能存在显著差异。这种变异性使得通过手动或分析软件中的斑点计数功能进行自噬体计数变得困难。因此,由于自噬体存在较大的变异性,任何斑点计数功能都无法做到完美。然而,一个良好的斑点计数功能可在大多数细胞上有效工作26。 图3 展示了使用不同斑点掩膜对Jurkat细胞中LC3斑点进行斑点掩蔽的示例。本数据集所选用的斑点计数功能为“Spot Count_Peak(M11, Ch11-LC3-AF647, Bright, 4)_4”,即该斑点计数功能统计了在默认通道11掩膜(M11)内、通道11(Ch11-LC3-AF647)上由峰值掩膜识别出的斑点,且斑点与细胞背景的比值为4(Bright, 4)。图4 展示了经抗LC3-AF647标记的对照组、对照组+氯喹、饥饿组以及饥饿+氯喹Jurkat细胞的斑点计数直方图及代表性图像。对照组与饥饿组的平均斑点数无显著差异;而加入氯喹后,对照组+氯喹与饥饿组+氯喹之间的平均斑点数差异显著。
接下来要研究的特征是 BDC3。BDC3 是对三种标记物/探针共定位情况的测量,此处指 LC3、p62 和 LAMP1 的共定位。图 5A-5D 展示了用抗-p62-AF488、抗-LAMP1-PE 和抗-LC3-AF647 标记的对照组、对照组+氯喹、饥饿组以及饥饿组+氯喹处理的 Jurkat 细胞的 BDC3 直方图。对照组均值与饥饿组均值之间,以及对照组+氯喹均值与饥饿组+氯喹均值之间均存在位移。然而,观察 图 5E-5H 中 BDC3 平均得分对应细胞图像,可以发现样本之间的差异比直方图所显示的更为显著。这是因为 BDC3 未考虑共定位自噬细胞器的数量,导致相同 BDC3 得分下自噬体数量存在较大变异性。在大多数情况下,三种探针之间存在重叠,因为即使在基础水平下,p62、LAMP1 和 LC3 也应在一定程度上发生共定位或位于细胞内的相似区域。作为对比,图 6 展示了饥饿组+氯喹样本中三种不应共定位的探针示例:抗-p62-AF488、抗-LC3-AF647 和 DAPI 核染料。
当斑点计数特征与BDC3特征结合时,不同亚群的存在使得区分各种样本/条件的能力得到提升,这一点变得明显。图7展示了四个样本(对照、对照+氯喹、饥饿、饥饿+氯喹)中LC3的斑点计数与BDC3(p62/LAMP1/LC3)的双变量图。对照样本用于设定三种群体的设门策略:低斑点、高斑点/低BDC3以及高斑点/高BDC3。对照样本显示,超过98%的细胞具有1个或更少的斑点。高斑点/低BDC3与高斑点/高BDC3之间的界限设定为BDC3得分为1,因为超过91%的对照样本的BDC3得分低于1。双变量图结果的汇总见表1。
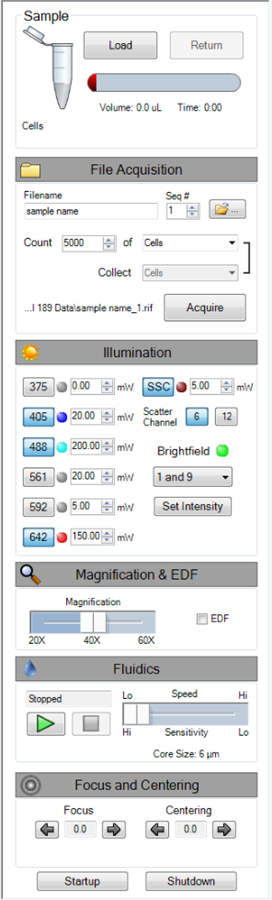
图1:MIFC仪器设置。 本实验所用MIFC仪器设置的截图,详见操作步骤8。 请点击此处查看该图的放大版本。
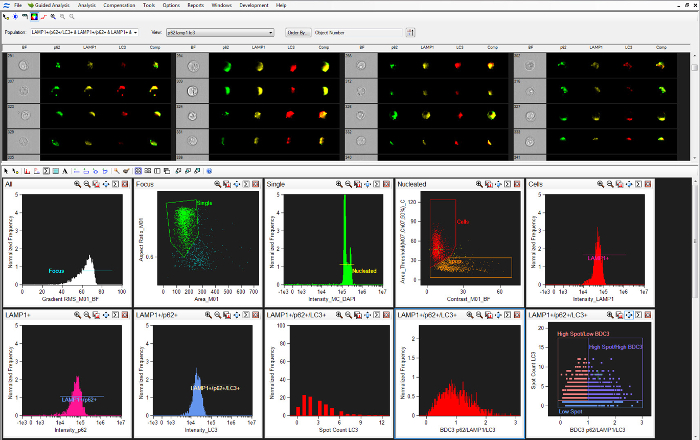
图 2:分析软件设门策略。 协议第 9 步中所述分析软件设门方案的截图。 请点击此处查看该图的放大版本。
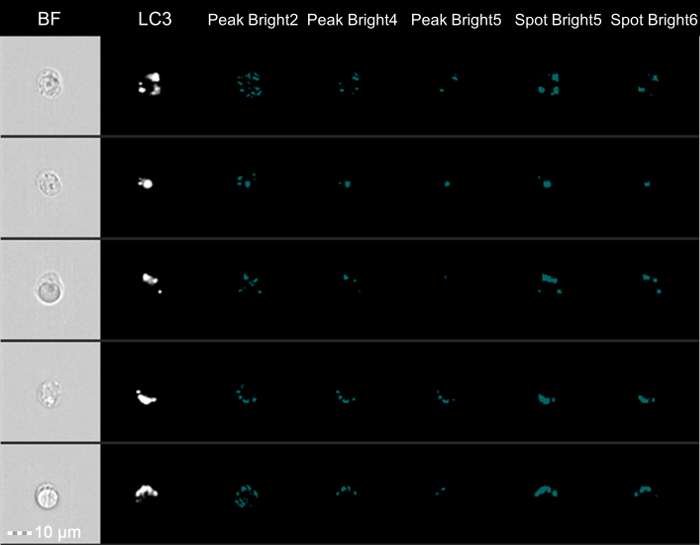
图3:LC3 斑点掩膜。 用于生成斑点计数特征的 Jurkat 细胞图像及对应掩膜。图中显示了明场(BF)、LC3-AF647、Peak(M11, Ch11-LC3-AF647, Bright,2)、Peak(M11, Ch11-LC3-AF647, Bright,4)、Peak(M11, Ch11-LC3-AF647, Bright,5)、Spot(M11, Ch11-LC3-AF647, Bright,5,3,1) 和 Spot(M11, Ch11-LC3-AF647, Bright,6,2,1)。对所有所示细胞效果最佳的掩膜为 Peak(M11, Ch11-LC3-AF647, Bright,4)。请点击此处查看该图的放大版本。

图 4:LC3 斑点计数直方图。 使用斑点计数功能“Spot Count_Peak(M11, Ch11-LC3-AF647, Bright, 4)_4”获得对照组(A,浅蓝色)、对照组 + 氯喹(B,蓝色)、饥饿处理组(C,粉色)和饥饿处理组 + 氯喹(D,红色)的 LC3-AF647 斑点计数直方图。对照组、对照组 + 氯喹、饥饿处理组和饥饿处理组 + 氯喹的平均斑点数分别为 0.07、1.13、0.10 和 2.77。图中还展示了代表性细胞的明场(BF)、LC3-AF647 信号(红色)、DAPI 核染色(蓝色)以及 LC3-AF647 与 DAPI 图像的叠加结果,分别对应于对照组(E,0 个斑点)、对照组 + 氯喹(F,1 个斑点)、饥饿处理组(G,0 个斑点)和饥饿处理组 + 氯喹(H,3 个斑点)。请点击此处查看该图的高清版本。

图 5:BDC3 的 p62/LAMP1/LC3 直方图。 BDC3 的 p62/LAMP1/LC3 直方图,分别对应对照组(A,浅蓝色)、对照组 + 氯喹(B,蓝色)、饥饿处理组(C,粉色)和饥饿处理组 + 氯喹(D,红色)。对照组、对照组 + 氯喹、饥饿处理组和饥饿处理组 + 氯喹的平均 BDC3 评分分别为 0.57、0.82、0.74 和 0.98。BF;p62-AF488(绿色);LAMP1-PE(黄色);LC3-AF647(红色);以及代表性细胞的 p62-AF488、LAMP1-PE 和 LC3-AF647 图像的合并图,分别显示对照组(E)、对照组 + 氯喹(F)、饥饿处理组(G)和饥饿处理组 + 氯喹(H)的结果。请点击此处查看该图的放大版本。
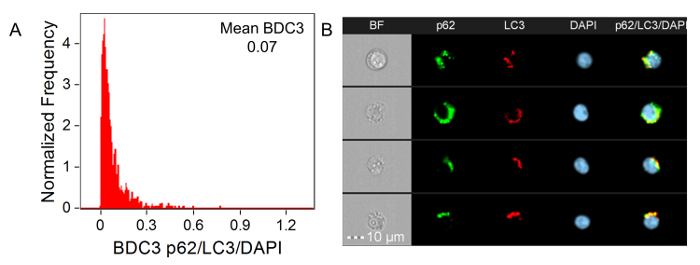
图6:饥饿 + 氯喹处理样本的 BDC3 p62/LC3/DAPI 比值直方图。(A)显示了饥饿 + 氯喹处理样本的 BDC3 p62/LC3/DAPI 直方图。平均 BDC3 得分为 0.07。(B)明场(BF);p62-AF488(绿色);LC3-AF647(红色);DAPI(蓝色);以及代表性细胞的 p62-AF488、LC3-AF647 和 DAPI 图像的合并图,对应于饥饿 + 氯喹处理样本的平均 BDC3 值。 请点击此处查看该图的放大版本。
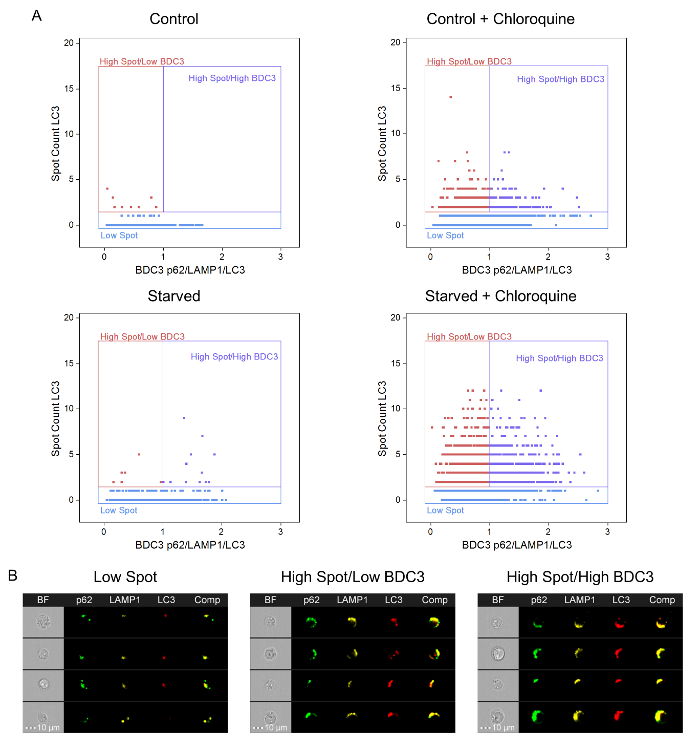
图7:LC3斑点计数与BDC3 p62/LAMP1/LC3的双变量图 (A对照、对照+氯喹、饥饿及饥饿+氯喹处理的Jurkat细胞中LC3斑点数与BDC3 p62/LAMP1/LC3的双变量图。B明场;p62-AF488(绿色);LAMP1-PE(黄色);LC3-AF647(红色);以及来自三个区域的 p62-AF488、LAMP1-PE 和 LC3-AF647 图像的合并图即, 饥饿+氯喹样本的低信号点、高信号点/低BDC3以及高信号点/高BDC3结果如图所示。 请点击此处以查看该图的放大版本。
| 细胞计数 | 亮细节共定位3均值 | LC3斑点计数均值 | 低斑点百分比 | 高斑点/低BDC3百分比 | 高斑点/高BDC3百分比 | |
| 对照 | 439 | 0.57 | 0.07 | 98.2 | 1.8 | 0.0 |
| 对照 + 氯喹 | 1432 | 0.82 | 1.13 | 68.9 | 19.5 | 11.7 |
| 饥饿 | 1204 | 0.74 | 0.10 | 98.4 | 0.6 | 1.0 |
| 饥饿 + 氯喹 | 1811 | 0.98 | 2.77 | 32.1 | 36.9 | 31.0 |
表1:Jurkat细胞LC3斑点计数汇总 与 BDC3 p62/LAMP1/LC3 双变量图
讨论
进行此分析时,需考虑一些事项。必须设置适当的对照样本。本实验使用了两种不同的对照:对照组和对照组+氯喹。对照组用于设定区域的阈值,代表未抑制溶酶体降解时自噬的基础水平,是饥饿样本的对照。然而,由于氯喹本身会影响对照组,因此对照组不适合作为饥饿+氯喹样本结果的比较对照,故有必要设置对照组+氯喹样本。
在进行自噬分析之前,重要的是仅对处于焦距清晰的单个细胞进行分析/设门即, 梯度均方根大于60时),若存在多个细胞或图像失焦,结果可能受到影响。自噬体和溶酶体必须处于清晰对焦状态,以确保准确的斑点计数和BDC3分析。在进行自噬分析前,必须剔除凋亡细胞,因其可能干扰结果,不应纳入分析。三种标记物均应有适当的染色(即, LC3、p62 和 LAMP1)。例如,这三种标志物均为细胞内蛋白,应呈现点状信号;如果信号不是点状,或出现在细胞表面,则表明染色不适当,实验或染色需重新进行。此外,为确保 BDC3 结果的准确性,必须对三种目标荧光标志物均呈强荧光的细胞进行设门。设门于阳性事件可避免对非特异性结合、成像伪影和/或背景噪声进行 BDC3 测量。这一点至关重要,因为 BDC3 可能会放大并非真实信号的伪影。由于 BDC3 仅适用于荧光强烈的阳性事件,许多细胞可能无法纳入最终分析;对于未出现 LC3、p62 和/或 LAMP1 积累的对照细胞,尤其如此。因此,该检测方法的一个局限性在于,BDC3 仅分析三种标志物均为阳性的细胞,这在某些自噬实验中可能并不适用。
与先前已有报道的BDS类似15,16,17,20,21,22,23,24,25,26,单独使用BDC3并未考虑共定位的自噬细胞器数量,导致自噬小体数量存在较大变异性。因此,采用了Rajan et al. 提出的双变量分析方法。观察双变量图时,可能会产生疑问:细胞是否必须对LC3、p62和LAMP1均为阳性?为何存在如此多的细胞显示0个斑点?这是因为LC3信号可能足够强以实现共定位,但其强度可能未达到峰掩膜(Peak (M11, Ch11-LC3-AF647, Bright, 4))所设定的阈值,因而无法被识别为有效斑点。
本方案采用MIFC技术计数LC3点状结构以及三种自噬标志物的共定位,以检测自噬流。在基础条件下(对照样本),自噬小体数量较低,仅有少数细胞被发现含有 "高亮点" 加入氯喹(可抑制自噬体与溶酶体融合)后,LC3斑点数量增加。由于溶酶体无法降解自噬体及其内部的p62蛋白,导致LC3、p62与LAMP1共定位增强,自噬溶酶体积累增多。该效应在营养剥夺条件下进一步增强,因营养剥夺可诱导自噬。然而,在未添加氯喹的情况下,自噬体数量未见显著增加,最可能的原因是自噬周转速率加快所致。当细胞在氯喹存在下进行饥饿处理时,自噬体的共定位程度及数量均增加,支持了饥饿可增强自噬流的结论。已知EBSS是强烈的自噬诱导剂,因此预期其诱导的自噬增加幅度较大。若采用其他方法(如药物诱导)诱导自噬,则对照组与处理组之间的差异可能较为细微。
该特定实验方案旨在检测人源细胞系中的自噬作用,但通过更换针对特定物种的抗体,该检测方法也可适用于其他物种。此外,该分析方法可用于任何需要三种探针/标记物共定位的细胞内应用。
披露
我受雇于MilliporeSigma公司,该公司是本研究中所使用的Amnis品牌ImageStream的制造商。
致谢
我要感谢我在MilliporeSigma的同事Philip J. Morrissey和Sherree L. Friend多年来给予的支持与指导。同时,我也感谢Vidya Venkatachalam和Bryan R. Davidson在IDEAS软件的BDC3功能方面提供的帮助。, 感谢Ryan P. Jessup对手稿编辑提供的帮助,Raymond Kong在拍摄当天的协助,以及特别感谢化妆师Cynthia Xamonthiene。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 15 mL 离心管 | Falcon | 352096 | |
| 50 mL 离心管 | Falcon | 352070 | |
| AF647 标记的驴抗小鼠 IgG | Invitrogen | A-31571 | 驴抗小鼠 IgG (H+L) 二抗,Alexa Fluor 647 标记。浓度 2 mg/mL。https://www.thermofisher.com/antibody/product/Donkey-anti-Mouse-IgG-H-L-Secondary-Antibody-Polyclonal/A-31571 |
| 抗人 CD107a-PE (LAMP1) | BioLegend | 328607 | 克隆号 H4A3。浓度 400 µg/mL。http://www.biolegend.com/pe-anti-human-cd107a-lamp-1-antibody-4967.html |
| 抗人 CD45- AF488 | BioLegend | 304017 | 克隆号 HI30。http://www.biolegend.com/alexa-fluor-488-anti-human-cd45-antibody-2738.html |
| 抗人 CD45- PE | BioLegend | 304008 | 克隆号 HI30。 http://www.biolegend.com/pe-anti-human-cd45-antibody-708.html |
| 抗人 CD45-AF647 | BioLegend | 304018 | 克隆号 HI30。 http://www.biolegend.com/alexa-fluor-647-anti-human-cd45-antibody-2739.html |
| 抗 LC3(人)单克隆抗体,克隆 4E12 | MBL International Corporation | M152-3 | 克隆号 4E+12。 浓度 2 mg/mL。 https://www.mblintl.com/products/m152-3 |
| 抗 SQSTM1 / p62 抗体 [EPR4844] - 自噬体标记物(Alexa Fluor 488) | abcam | ab185015 | 克隆号 EPR4844。 浓度 0.5 mg/mL。 http://www.abcam.com/sqstm1-p62-antibody-epr4844-autophagosome-marker-alexa-fluor-488-ab185015.html |
| 氯喹二磷酸盐 | Sigma-Aldrich | C6628-25G | |
| 清洗液 - Coulter Clenz | Beckman Coulter | 8546931 | 用 200 mL 清洗液填充容器。 https://www.beckmancoulter.com/wsrportal/page/itemDetails?itemNumber=8546931#2/10//0/25/1/0/asc/2/8546931///0/1//0/ |
| DAPI 染色液 5 mg/mL | MilliporeSigma | 508741 | http://www.emdmillipore.com/US/en/product/DAPI-Stain---CAS-28718-90-3---Calbiochem,EMD_BIO-508741 |
| 消泡剂 - 70% 异丙醇 | MilliporeSigma | 1.3704 | 用 200 mL 消泡剂填充容器。 http://www.emdmillipore.com/US/en/product/2-Propanol-70%25-%28V%2FV%29-0.1-%C2%B5m-filtred,MDA_CHEM-137040?ReferrerURL=https%3A%2F%2Fwww.google.com%2F |
| 杜尔贝科磷酸盐缓冲液 10x | MilliporeSigma | BSS-2010-B | 无 Ca++ 和 Mg++ |
| 杜尔贝科磷酸盐缓冲液 1x | MilliporeSigma | BSS-1006-B | PBS 无 Ca++ 和 Mg++ |
| 厄尔平衡盐溶液 1x | Gibco | 14155 | |
| 胎牛血清 | HyClone | SH30071.03 | |
| 甲醛,10%,无甲醇,超纯 | Polysciences, Inc. | 04018 | 用于配制 4% 和 1% 的福尔马林。警告:甲醛/福尔马林吸入或吞咽有毒。 对眼睛、呼吸系统和皮肤有刺激性。 可能通过吸入或皮肤接触引起致敏。对眼睛有严重损伤风险。 有潜在致癌危险。 http://www.polysciences.com/default/catalog-products/life-sciences/histology-microscopy/fixatives/formaldehydes/formaldehyde-10-methanol-free-pure/ |
| 汉克斯平衡盐溶液 1x | Gibco | 14175 | |
| Jurkat 细胞,克隆 E6-1 (ATCC TIB-152) | ATCC | TIB-152 | https://www.atcc.org/products/all/TIB-152.aspx |
| MEM 非必需氨基酸 100x | HyClone | SH30238.01 | |
| MIFC - ImageStreamX Mark II | MilliporeSigma | 100220 | 使用配备 405 nm、488 nm 和 642 nm 激光器的双相机 ImageStreamX Mark II。http://www.emdmillipore.com/US/en/life-science-research/cell-analysis/amnis-imaging-flow-cytometers/imagestreamx-Mark-ii-imaging-flow-cytometer/VaSb.qB.QokAAAFLzRop.zHe,nav?cid=BI-XX-BDS-P-GOOG-FLOW-B325-0006 |
| MIFC 分析软件 - IDEAS 6.2 | MilliporeSigma | 100220 | MIFC(ImageStreamX MKII)的配套软件。 IDEAS 版本 6.2 |
| MIFC 软件 - INSPIRE | MilliporeSigma | 100220 | 用于运行 MIFC(ImageStreamX MKII)的软件。INSPIRE 版本 200.1.388.0 |
| PE 标记抗人 CD107a (LAMP-1) 抗体,克隆 H4A3 | BioLegend | 328608 | http://www.biolegend.com/pe-anti-human-cd107a-lamp-1-antibody-4967.html |
| 青霉素/链霉素/谷氨酰胺溶液 100x | HyClone | SV30082.1 | |
| 冲洗液 - 超纯水或去离子水 | NA | NA | 可使用任何超纯水或去离子水。 用 900 mL 冲洗液填充容器。 |
| RPMI-1640 培养基 1x | HyClone | SH30027.01 | |
| 鞘液 - PBS | MilliporeSigma | BSS-1006-B | 与杜尔贝科磷酸盐缓冲液 1X 相同, 无 Ca++ 和 Mg++。 用 900 mL 鞘液填充容器。 |
| 硅化聚丙烯微量离心管 | Fisherbrand | 02-681-320 | Fisherbrand 硅化低吸附微量离心管 1.5 mL。https://www.fishersci.com/shop/products/fisherbrand-siliconized-low-retention-microcentrifuge-tubes-8/p-193936 |
| 丙酮酸钠溶液 (100 mM) | HyClone | SH30239.01 | |
| 消毒液 - 0.4 - 0.7% 次氯酸盐 | VWR | JT9416-1 | 这实质上是 10% 的 Clorox 漂白剂,可通过将 Clorox 漂白剂与水稀释配制而成。 用 200 mL 消毒液填充容器。 |
| 系统校准试剂 - SpeedBead | MilliporeSigma | 400041 | 每管约含 10 mL。 https://www.emdmillipore.com/US/en/life-science-research/cell-analysis/amnis-imaging-flow-cytometers/support-training/XDqb.qB.wQMAAAFLBDUp.zHu,nav |
| T75 培养瓶 | Falcon | 353136 | |
| TRITON X-100,蛋白级去垢剂,10% 溶液,无菌过滤 | MilliporeSigma | 648463-50ML | http://www.emdmillipore.com/US/en/product/TRITON-X-100,-PROTEIN-GRADE-Detergent,-10%25-Solution,-Sterile-Filtered---CAS-9002-93-1---Calbiochem,EMD_BIO-648463 |
| 细胞培养级水 | HyClone | SH30529.03 |
参考文献
- Levine, B., Klionsky, D. J. Development by self-digestion: molecular mechanisms and biological functions of autophagy. Developmental Cell. 6, 463-477 (2004).
- Zhang, X. J., Chen, S., Huang, K. X., Le, W. D. Why should autophagic flux be assessed? Acta Pharmacologica Sinica. 34, 595-599 (2013).
- Tanida, I., Takashi, U., Kominami, E. LC3 and Autophagy. Methods Mol Biol. 445, 77-88 (2008).
- Larsen, K. B., Lamark, T., Øvervatn, A., Harneshaug, I., Johansen, T., Bjørkøy, G. A reporter cell system to monitor autophagy based on p62/SQSTM1. Autophagy. 6 (6), 784-793 (2010).
- Demishtein, A., Porat, Z., Elazar, Z., Shvets, E. Applications of flow cytometry for measurement of autophagy. Methods. 75, 87-95 (2015).
- Mizushima, N., Yoshimori, T., Levine, B. Methods in mammalian autophagy research. Cell. 140 (3), 313-326 (2010).
- Klionsky, D. J., et al. Guidelines for the use and interpretation of assays for monitoring autophagy. Autophagy. 8 (4), 445-544 (2012).
- Arsov, I., et al. BAC-mediated transgenic expression of fluorescent autophagic protein Beclin 1 reveals a role for Beclin 1 in lymphocyte development. Cell Death Differ. 15 (9), 1385-1395 (2008).
- Maloyan, A., Sayegh, J., Osinska, H., Chua, B. H., Robbins, J. Manipulation of death pathways in desmin-related cardiomyopathy. Circ Res. 106 (9), 1524-1532 (2010).
- Altman, B. J., et al. Autophagy is essential to suppress cell stress and to allow BCR-Abl-mediated leukemogenesis. Oncogene. 30 (16), 1855-1867 (2011).
- Suarez, A. L., Kong, R., George, T., He, L., Yue, Z., van Dyk, L. F. Gammaherpesvirus 68 infection of endothelial cells requires both host autophagy genes and viral oncogenes for optimal survival and persistence. J Virol. 85 (13), 6293-6308 (2011).
- Tra, T., et al. Autophagy in human embryonic stem cells. PLoS One. 6 (11), (2011).
- Yuan, N., et al. Bafilomycin A1 targets both autophagy and apoptosis pathways in pediatric B-cell acute lymphoblastic leukemia. Haematologica. 100 (3), 345-356 (2015).
- Leveque-El Mouttie, L., et al. Autophagy is required for stem cell mobilization by G-CSF. Blood. 125 (19), 2933-2936 (2015).
- Watson, A. S., et al. Autophagy limits proliferation and glycolytic metabolism in acute myeloid leukemia. Cell Death Discov. 1, 15008(2015).
- Stranks, A. J., et al. Autophagy Controls Acquisition of Aging Features in Macrophages. J Innate Immun. 7 (4), 375-391 (2015).
- Clarke, A. J., et al. Autophagy is activated in systemic lupus erythematosus and required for plasmablast development. Ann Rheum Dis. 74 (5), 912-920 (2015).
- Warnes, G. Flow cytometric assays for the study of autophagy. Methods. 82, 21-28 (2015).
- Bjørkøy, G., et al. p62/SQSTM1 forms protein aggregates degraded by autophagy and has a protective effect on huntingtin-induced cell death. J Cell Biol. 171 (4), 603-614 (2005).
- Phadwal, K., et al. A novel method for autophagy detection in primary cells: Impaired levels of macroautophagy in immunosenescent T cells. Autophagy. 8 (4), 677-689 (2012).
- Rajan, R., Karbowniczek, M., Pugsley, H. R., Sabnani, M. K., Astrinidis, A., La-Beck, N. M. Quantifying autophagosomes and autolysosomes in cells using imaging flow cytometry. Cytometry A. 87 (5), 451-458 (2015).
- Kwok, A. S., et al. HspB8 mutation causing hereditary distal motor neuropathy impairs lysosomal delivery of autophagosomes. J Neurochem. 119 (6), 1155-1161 (2011).
- Lopez-Herrera, G., et al. Deleterious Mutations in LRBA Are Associated with a Syndrome of Immune Deficiency and Autoimmunity. Am J Hum Genet. 90 (6), 986-1001 (2012).
- Pike, L. R., Phadwal, K., Simon, A. K., Harris, A. L. ATF4 orchestrates a program of BH3-only protein expression in severe hypoxia. Mol Biol Rep. 39 (12), 10811-10822 (2012).
- Pike, L. R., et al. Transcriptional up-regulation of ULK1 by ATF4 contributes to cancer cell survival. Biochem J. 449 (2), 389-400 (2013).
- Pugsley, H. R. Quantifying autophagy: Measuring LC3 puncta and autolysosome formation in cells using multispectral imaging flow cytometry. Methods. 112, 147-156 (2017).
- IDEAS. Image Data Exploration and Analysis Software User's Manual Version 6.2. , (2015).
重印与许可
