本方案描述了小鼠小肠混合细胞的分离与培养方法。这些原代肠道细胞培养物可用于通过多种技术研究介导肠肽分泌的信号通路。
方法文章
用于研究肠道激素分泌及肠内分泌细胞活体成像的小鼠小肠混合原代培养
* These authors contributed equally
本文内容
摘要
摘要
肠道是人体最大的内分泌器官,其肠内分泌细胞沿胃肠道上皮全长分布,可分泌多种激素。尽管这类细胞具有重要的生理功能,但其仅占上皮细胞群体的一小部分,过去对其研究面临较大挑战,因而常依赖细胞系模型。本文提供了一种分离与培养小鼠小肠混合细胞的详细方案。这些原代培养细胞已被用于鉴定多种营养物质、神经肽及药理学物质刺激或抑制肠道肽类激素分泌所涉及的信号通路。此外,结合转基因荧光报告小鼠模型,我们已证实此类原代培养体系可成为在细胞内水平研究荧光标记肠内分泌细胞的有力工具,可用于膜片钳、单细胞钙离子成像以及cAMP-FRET成像等技术。
引言
本方法的总体目标是分离并培养混合的小鼠肠道细胞,以实现对肠道肽类分泌的研究以及肠内分泌细胞的活细胞成像。该实验方案的早期版本最初由 Reimann et al.1 于2008年发表,此后已成为我们研究团队后续20篇论文的基础。在本论文中,我们选择专注于小肠细胞培养,因为相较于结肠细胞培养,小肠细胞培养的建立更具挑战性。
肠内分泌细胞分泌多种肠道肽,包括胰高血糖素样肽1(GLP-1)、葡萄糖依赖性促胰岛素多肽(GIP)、胆囊收缩素(CCK)和肽YY(PYY)2。这些肠道肽在协调餐后反应中具有重要的生理作用,例如减缓肠道转运、增强葡萄糖刺激的胰岛素释放以及诱导饱腹感。目前已有GLP-1类似物及抑制其降解的药物被批准用于2型糖尿病的治疗,同时针对促进该肽内源性分泌的治疗潜力仍在持续评估中3。因此,更深入地理解肠内分泌生理学及其分泌过程的调控机制(包括刺激与抑制机制)具有至关重要的意义。
肠道肽的分泌可通过多种体外和离体实验模型进行研究,每种模型各有优缺点(关于体内模型应用的全面最新综述,参见 Svendsen et al.4)。目前,诸如离体灌流肠道5和尤斯室(Ussing chambers)6等离体技术正被用于探索肠道肽在不同物质刺激下的分泌情况。与原代培养相比,这些方法的主要优势在于肠内分泌细胞的微环境在很大程度上得以保持完整,且细胞的极性得以维持,这一点尤为重要。因此,可以明确分泌刺激物作用于细胞的哪个表面6。然而,这些方法通常通量较低,且所得数据的质量高度依赖于肠道组织的完整性和活性,而组织的完整性和活性会随着时间推移不可避免地下降。
肠道类器官现正被越来越多地用于 体外 用于研究肠内分泌细胞功能与发育的模型7类器官可来源于小鼠和人类组织,其优势在于能够形成维持细胞极性的三维“隐窝样”结构。然而,目前对类器官来源的肠内分泌细胞尚未完全表征,其与天然L细胞的相似性仍 largely 不明确。原代培养的优势在于更接近生理环境,因为肠内分泌细胞无需在人工条件下长期维持和分化。
一种用于评估肠道肽分泌的替代性原代培养方法是分离胎鼠肠细胞(FRICs)8然而,成年肠道组织的培养成功率较低,且在FRICs的反应性方面已观察到一些差异 与 成年小鼠肠细胞(例如 葡萄糖8).
肠内分泌样细胞系(例如 GLUTag、STC-1 和 NCI-H716)传统上被用于区分直接 与间接影响肠内分泌细胞,并解析刺激与分泌之间关联的潜在分子机制;参见 Kuhre 等.9 用于由类L细胞的永生化细胞系生产与分泌肽。这是必要的,因为沿胃肠道散在分布的肠内分泌细胞仅占肠上皮细胞的不到1%10 在我们实验室的条件下,分选后的细胞在培养中无法存活1细胞系由于具有较高的细胞同质性,便于进行基因沉默等遗传操作,因此仍是重要的研究工具。因此,当缺乏转基因小鼠模型时,细胞系有助于研究那些无法通过药物靶向的蛋白质功能。然而,细胞系并不总能有效模拟原代细胞。尽管存在诸多相似之处,但已有原代培养研究指出,某些营养物质在原代L细胞与GLUTag细胞中激活的信号通路存在差异。例如蛋白胨11。关键的是,结合转基因荧光报告小鼠,该原代培养模型可在细胞内水平对单个原代肠内分泌细胞进行详细研究。本课题组已利用原代培养中荧光标记的L细胞进行膜片钳记录1,12 研究,以及单细胞钙成像11,13 环磷酸腺苷-FRET成像14 研究,这些研究在肠内分泌生理学领域取得了重大进展。
以下方案经过优化,适用于使用单只成年小鼠的小肠10 cm节段进行分泌实验(采用24孔板)或制备最多16个成像培养皿。通过延长消化时间并提高胶原酶浓度,该方案可轻松修改用于结肠细胞的研究。
方案
所有动物实验程序均经剑桥大学动物福利与伦理审查委员会批准,并符合《1986年动物(科学实验程序)法》修正条例(SI 2012/3039)的规定。
1. 提前准备
- 将基底膜基质(BMM)的等分试样(约 200 µL)置于冰上解冻。
注意:BMM 在室温(RT)下会凝固。 - 在 37 oC 水浴中预热 50 mL 无添加物的无菌高糖 Dulbecco 改良 Eagle 培养基(DMEM)以及约 40 mL 无菌培养液(高糖 DMEM 添加 10% 胎牛血清(FBS)、100 U/mL 青霉素、0.1 mg/mL 链霉素(P/S)和 2 mM L-谷氨酰胺),均置于 50 mL 离心管中。
- 预先将含钙和镁的磷酸盐缓冲液(PBS)冷却。
- 称取 15 mg 胶原酶(XI 型粗品),加入 50 mL 离心管中,并保持在冰上。
- 警告:胶原酶有害。可引起皮肤刺激(H315)和严重眼刺激(H319)。吸入可能引起过敏或哮喘症状或呼吸困难(H334)。可能引起呼吸道刺激(H335)。使用适当的个人防护装备,避免粉尘形成,避免吸入粉尘。确保通风充分。
2. 组织采集
- 向50 mL离心管中加入约20 mL L-15培养基,并置于冰上。
- 通过颈椎脱位或其他经批准的1类安乐死方法处死小鼠。
注意:肠道组织通常取自C57BL6背景的小鼠,但其他遗传背景的小鼠也已被使用。 例如 129/SvEv15成像实验需要使用荧光报告小鼠 例如 GLU-Venus1从2至6个月大的成年雌雄小鼠中获取组织。小鼠饲养在独立通风的笼具中, 随意摄取 可自由获取水和普通饲料。然而,为检测高脂饮食等对肠内分泌细胞功能的影响而进行的实验16 在获得项目许可支持的情况下可以进行。 - 使用镊子和解剖剪解剖并轻柔取出小鼠肠道(从幽门至直肠起始处),置于预冷的L-15培养基中,冰上保存备用。
3. 组织制备
- 将肠组织置于一个10 cm的培养皿中,加入足量的PBS以完全覆盖组织。取所需部位的10 cm肠段(例如 上段小肠,距幽门近端起始的前10 cm)。
- 使用塑料巴斯德吸管和预冷的PBS冲洗肠腔内容物。
- 用镊子轻轻夹住肠段一端,将巴斯德吸管尖端插入肠腔内,用预冷的PBS冲洗内容物。从两端反复冲洗,直至大部分内容物被清除。随后将组织转移至另一盛有新鲜预冷PBS的洁净培养皿中。
- 用镊子去除肠段周围的脂肪组织和肠系膜,注意避免同时撕下肌层。
- 在解剖显微镜下,使用两把精细镊子将肌层像脱袜子一样剥离。
注意:此步骤并非必需,但强烈推荐。除本方法外,尚有其他去除肌层的方式。例如,可先将肠管沿纵轴切开,再进行肌层剥离。- 在组织近端寻找一个肌层翻折较明显的起始点,用镊子轻轻将肌层从肠管周围一圈微微拉开。
注意:为避免撕裂肌层或肠上皮,应通过夹持更大面积来减小局部张力,避免仅用精细镊子的尖端施力。 - 用镊子夹紧肠管及尽可能多的肌层翻折部分,轻轻拉开并开始沿肠管周围剥离肌层。为防止肌层和上皮同时撕裂,应不断调整镊子位置,使其保持靠近。以此方式将整段肠组织的肌层完全剥离并弃去。
- 在组织近端寻找一个肌层翻折较明显的起始点,用镊子轻轻将肌层从肠管周围一圈微微拉开。
- 将肠管沿纵轴切开,并在盛有新鲜预冷PBS的洁净培养皿中轻轻搅动清洗。如有必要,重复操作以彻底清除残留的食糜或黏液。
- 使用外科手术刀片将组织切成约1–2 mm2的小块,用巴斯德吸管将组织块转移至50 mL离心管中,管内预先加入约20 mL预冷PBS。为防止组织粘附在吸管上,可剪去吸管尖端,并通过反复吹打PBS润湿吸管。
- 轻轻振荡离心管,进一步清洗组织块。待组织自然沉降后,倾去或吸除大部分PBS,再加入新鲜PBS重复洗涤,直至PBS澄清透明。
4. BBM包被板/培养皿的制备及消化培养基的配制
注意:以下步骤应在组织培养罩内进行(孵育步骤在37 °C水浴中进行)。
- 在预冷的 DMEM(无添加物)中配制 2% BMM 溶液。操作过程中将溶液置于冰上保存。配制 2% 溶液时,将 140 µL 解冻的 BMM 加入 7 mL DMEM 中(足够用于制备一块 24 孔板)。
- 每孔(24 孔板)或每个玻璃底成像皿中加入 250 µL 2% BMM 溶液。
- 将包被好的板或皿在 37 °C 培养箱中孵育至少 30 分钟,以确保 BMM 充分聚合。
- 将 50 mL 预热的 DMEM(无添加物)加入 15 mg 胶原酶(来自步骤 1.2 和 1.4)中,配制成 0.3 mg/mL 溶液,并颠倒混匀至溶解。
- 待完全溶解后,使用 20 mL 注射器将胶原酶溶液经 0.2 µm 无菌滤器过滤至新的无菌 50 mL 离心管中。标记为消化液。
5. 组织消化
- 使用10 mL血清移液管从PBS中取出组织块,加入含有预冷无添加物的无菌DMEM的无菌50 mL离心管中,轻轻混匀后弃去DMEM。
注意:为避免组织粘附在血清移液管上,使用前需先用DMEM反复吹打润湿移液管,再接触组织。 - “消化”1 和 2:去除细胞碎片和单个细胞
- 向组织块中加入7 mL消化液,并轻轻涡旋混匀。
- 在水浴中孵育 5 分钟,温度为 37 °C.
- 轻轻振荡试管约 3 秒(不要旋转摇动)。
- 让组织沉淀,弃去消化液,保留少量液体用于显微镜下观察。
注意:尤其是刚开始时,强烈建议检查每份“消化液”的少量样本(约30 µL在显微镜下观察以评估消化过程的进展。如果此阶段观察到大量隐窝结构,可能表明振荡过于剧烈。有关不同“消化”阶段典型形态的代表性图像,请参见 图1. - 重复步骤 5.2–5.2.4(使用新鲜消化液)。
- 第3至5步:隐窝片段的收集
- 加入7 mL消化液至组织中。
- 孵育 10 分钟,温度为 37 °C.
- 孵育期间,每5分钟摇动10至12秒。
注意:此步骤的振荡强度比“消化 1”和“消化 2”的振荡更剧烈。
- 孵育期间,每5分钟摇动10至12秒。
- 让未消化的组织沉淀,收集消化液至15 mL离心管中。若组织随消化液被意外收集,需让其重新沉淀,用10 mL血清移液管移除组织,并将其转移回含有未消化组织的50 mL离心管中。
- 室温下,以100 × g离心收集的培养基/上清液3分钟。
- 弃去上清液,用5 mL预热的培养基通过轻柔吹打重悬细胞沉淀,置于一旁。
- 在显微镜下检查少量细胞悬液(参见步骤5.2.4的注意事项)。
注意:理想情况下,隐窝片段应从第3次“消化液”中开始出现,同时伴有细胞碎片和单个细胞。第4次和第5次“消化液”中含有更大量的隐窝片段,且细胞碎片较少。图1)。根据需要调整振荡强度 即 如果组织未被消化且隐窝片段未出现,则需更剧烈地振荡。 - 重复步骤 5.3.1–5.3.6,直至完成 5 次“消化”或直至大部分组织已被消化(约 6th 可能需要进行消化处理。
- 收集完第3-5步(或第3-6步)“消化液”的全部上清后,在室温下以100 × g离心3分钟。
- 在分泌实验中,离心前合并第3-5次(或第3-6次)“消化”步骤的上清液。
注意:成像实验所需的组织较少,因此应选择最干净(无细胞碎片和单个细胞)且隐窝片段数量较多的消化上清液。通常为第4或第5次“消化”液。 - 弃去上清液,通过吹打轻轻重悬沉淀,直至肉眼不可见团块。将沉淀重悬于预热的培养基中,培养基需添加 10 µM 盐酸Y-27632(用于防止失巢凋亡)17分泌实验使用5 mL,成像实验使用2 mL培养基。
- 通过100-µm 过滤(以去除未消化的组织)。再将2 mL预热的培养基通过滤器冲洗(最终体积分别为分泌实验7 mL和成像实验4 mL)。
注意:过滤并非必需,但较大的组织碎片往往不易贴附于培养板/培养皿上。
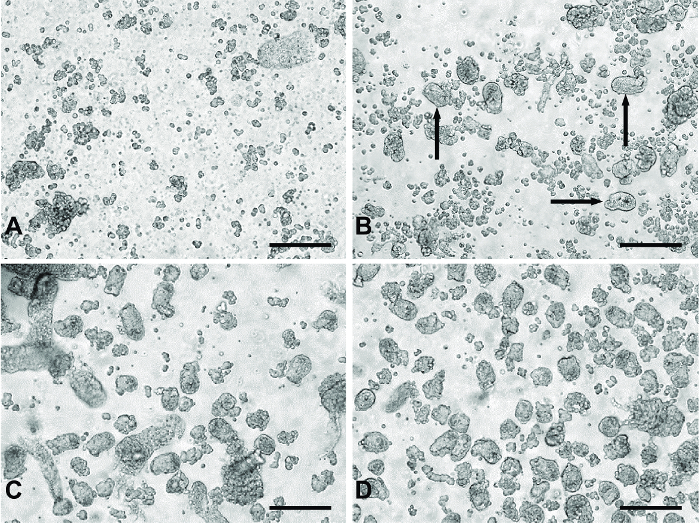
图1:小肠原代培养方法中“消化产物”的代表性图像。(A)来自“消化产物”1和2的典型材料,主要包含单个细胞和细胞碎片。(B)“消化产物”3的示例,黑色箭头指示出现在消化物中的隐窝片段。(C)典型代表“消化产物”4或5。(D)为将“消化产物”3至5合并后通过100 µm滤网过滤所得材料,以去除(C)中所示较大的不必要组织碎片。所有图像均使用配备20倍物镜的数字倒置显微镜拍摄。比例尺 = 100 µm。请点击此处查看该图的放大版本。
6. 接种肠道培养物(富含隐窝细胞)
- 从培养板或培养皿中移除多余的BMM溶液,每孔加入250 µL预热的培养基。
注意:成像用培养皿不加培养基,因此需迅速进行下一步操作,以防培养皿干燥。 - 每孔(24孔板)或每玻璃底培养皿中接种250 µL细胞悬液。
- 以缓慢的“之”字形运动将细胞悬液逐滴加入孔中。让类器官片段静置约5分钟,使其沉降,然后再将培养板放入培养箱。
注意:此操作有助于类器官/细胞在孔内均匀分布。
- 以缓慢的“之”字形运动将细胞悬液逐滴加入孔中。让类器官片段静置约5分钟,使其沉降,然后再将培养板放入培养箱。
- 将培养板或培养皿在37 °C、5% CO2条件下孵育过夜。
注意:应已形成“斑块状”的单层细胞。有关经过三次洗涤后培养物的代表性图像,请参见图2A。 - 每皿加入2 mL预热的培养基,使成像用培养皿“淹没”在培养基中。
注意:这些培养皿在接种后最多可适用于成像实验约72小时。结肠类器官培养物通常可持续更长时间,达7天。未贴壁的细胞可通过洗涤步骤去除。原代培养物现已准备好用于实验。
结果
采用连续消化步骤可获得相对纯净的隐窝片段,用于后续实验接种。前两次消化主要去除消化材料中的单个细胞和细胞碎片(图1A)。在第三次消化过程中,隐窝片段开始出现在消化产物中(图1B)。第四次和第五次消化可获得更多隐窝片段,且单个细胞较少(图1C)。将第3至第5次消化产物合并后进行过滤,可去除未完全消化的大块组织,避免其对培养产生不利影响,从而获得纯净的隐窝片段制备物(图1D)。
培养18-24小时后,可观察到原代小肠细胞形成的单层细胞(图2A). 利用在胰高血糖素原启动子调控下特异性表达钙荧光传感器GCaMP3的转基因小鼠所建立的细胞培养11,L细胞在培养物中易于识别,并分散分布于其中(图2B)。在原代小肠培养物中,靶向G的化合物q-钙2+i 和 cAMPi依赖性通路刺激了GLP-1的分泌(分泌实验方法详见Reimann 等.1)。铃蟾肽(BBS,100 nM)以及佛司可林与3-异丁基-1-甲基黄嘌呤(IBMX)联合应用(F/I, 10 µM 分别比基础水平诱导GLP-1释放增加了2倍和11倍(图2C)。L细胞特异性表达GCaMP3可实现对单个L细胞中钙离子动员的鉴定与实时监测。100 nM 丁泌素(BBS)和30 mM 氯化钾(KCl)均可诱导细胞内钙离子瞬时升高,表明存在已知的G蛋白偶联受体信号激活。q- 以及原代L细胞中的生电性偶联通路图2D).
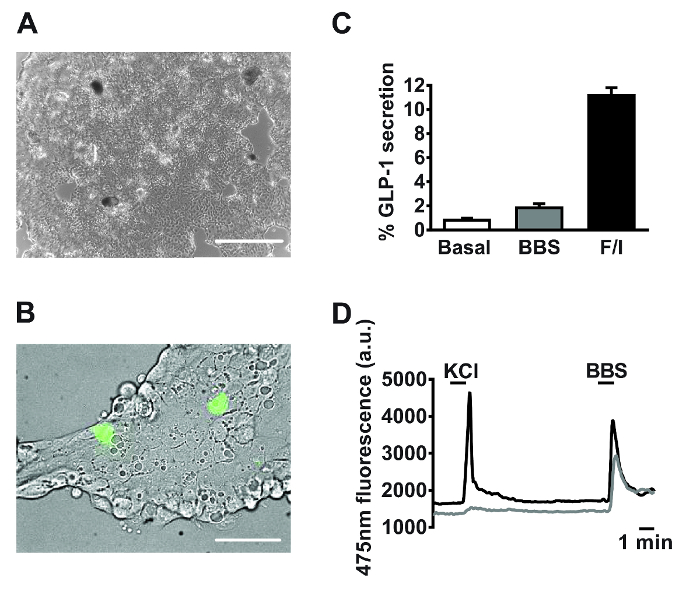
图 2:源自原代小肠培养物的代表性数据。 用于(A)分泌实验和(B)铺板 24 小时后成像实验的混合原代小肠培养物的示例图像。(A)图像来自 24 孔板,使用配备 4X 物镜的倒置数码显微镜拍摄。比例尺 = 500 µm。(B)使用 GLU-Cre × ROSA26 GCamP3 小鼠,视野中的 L 细胞(绿色细胞)通过 GCaMP3 的荧光进行识别。比例尺 = 50 µm。(C)检测了对铃蟾肽(BBS,100 nM)以及佛司可林/3-异丁基-1-甲基黄嘌呤(IBMX)(F/I,各 10 µM)刺激下的 GLP-1 分泌反应。GLP-1 分泌百分比通过测定上清液和细胞裂解液中的 GLP-1 水平计算得出。数据表示每种条件下 n = 3 的均值 ± 标准误(SEM)。(D)对(B)中标记的两个细胞的 GCaMP3 荧光信号(反映胞质钙离子浓度)进行实时监测,响应氯化钾(KCl,30 mM)和 BBS(100 nM)刺激。单细胞成像使用配备 40X 油浸物镜的倒置荧光显微镜完成。采用 75 W 氙弧灯和由荧光成像软件控制的单色器,在 475/10 nm 波长下激发 GCaMP3。发射光通过高分辨率数码电荷耦合器件(CCD)相机,利用二向色镜和 510–560 nm 带通滤光片进行采集。请点击此处查看该图的放大版本。
讨论
本方案描述了混合小鼠小肠细胞的分离与培养,以用于研究肠道肽的分泌以及标记的肠内分泌细胞的单细胞成像。
为提高小肠组织培养的成功率,应尽快开展实验操作(理想情况下,在组织获取后3小时内进行),并在消化处理前将组织保存在冰上预冷的培养基或缓冲液中,以减少细胞死亡。尽管去除小肠的肌层并非必需步骤,尤其对于结肠组织培养而言,但仍强烈建议进行此操作。小肠组织培养方案已尽可能实现标准化。然而需要注意的是,每次消化过程均存在差异,本方案的多个步骤在不同实验日期间可能引入变异。 例如 肌肉切除的程度、组织碎块的大小、振荡的强度、特定批次胶原酶的活性 等等因此,至关重要的是在显微镜下检查每一份不同的“消化液”等分试样,以评估消化过程的进展,并相应调整振荡强度和消化次数。建议初始阶段采用较轻柔的振荡方式;如果从第3次“消化”开始仍不明显观察到隐窝片段,则应逐步增强振荡力度。
根据我们的经验,肠内分泌细胞在培养条件下不会增殖,通常在小肠组织培养的4天内便会丢失。尽管如此,这仍足以进行肠道肽类分泌实验(通常在接种后18–24小时开始,持续约2小时),以检测生理刺激和/或药理学物质的作用。在分泌实验前需要过夜孵育的实验设计也是可行的,e.g. 如百日咳毒素预处理的情况15。
本文所介绍的原代培养技术是一种经过长期研究验证的成熟方法,其多年来的研究成果充分证明了该方法的可靠性。原代培养模型已被广泛用于研究多种肠道肽类物质的分泌,包括GLP-11,GIP18 和 PYY19,响应多种营养和非营养物质14,20 刺激物与抑制剂。此外,该技术已成功应用于人肠道细胞的培养21通常,将原代细胞培养方法与另一种实验模型相结合 例如. 离体 或 体内 能提供最深入的见解6值得注意的是,与其他方法不同,该技术的应用远不止于肠道肽释放的测量。我们已证明,利用转基因报告小鼠获得的原代小肠培养物是研究与肠道肽分泌偶联的细胞内信号通路的有力工具,例如可通过 Ca2+ 和cAMP传感器,GCaMP311,13 和 Epac2camps14以及电生理技术12.
与所有情况一样 体外 模型相比,原代肠培养物具有某些固有的局限性,包括上皮细胞在培养过程中极性的丧失,以及血液供应和神经支配的缺失。这些人工条件对肠内分泌细胞功能可能产生的影响难以评估。然而,从原代培养物中获得的数据通常具有可转化性 体内 设置(例如 短链脂肪酸对GLP-1分泌的影响15).
原代肠道培养是一种具有多种潜在应用的通用技术。该技术已为肠道肽分泌调控机制提供了重要的研究依据。
披露
作者无任何利益冲突需要披露。
致谢
GLP-1 免疫测定由阿登布鲁克医院的核心生化检测实验室完成。
多年来,本工作得到了惠康基金会(目前有效的资助编号为 106262/Z/14/Z 和 106263/Z/14/Z)以及英国医学研究理事会(MRC)(资助编号 MRC_MC_UU_12012/3 和 MRC_MC_UU_12012/5)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 24孔板 | Costar | 3524 | 用于分泌实验 |
| 铃蟾素 | Sigma-Aldrich | B4272 | 阳性对照(钙成像实验) |
| 离心管,15 mL,无菌 | Greiner bio-one | 188261 | 用于组织制备/消化 |
| 50 mL无菌离心管 | 康宁 | 430828 | 用于组织制备/消化 |
| 胶原酶XI(粗品) | Sigma-Aldrich | C9407 | 用于配制消化液 |
| 二向色镜 | 凯恩研究 | - | 用于成像实验 |
| DMEM高糖(4500 mg) | Sigma-Aldrich | D6546 | 用于溶解 Matrigel(置于 4℃) °C)。配制消化液时,需预热至37 °C. |
| 发射滤光片(带宽 510-560 nm) | 凯恩研究 | - | 用于成像实验 |
| 胎牛血清 | Sigma-Aldrich | F7524 | 用于配制培养基 |
| 镊子 | Agar Scientific | AGT520 | 用于肠道解剖/切除 |
| Forskolin | Sigma-Aldrich | F6886 | 阳性对照(分泌实验) |
| 玻璃底培养皿(35 mm) | MatTek | P35G-0-14-C | 用于成像实验 |
| 高精度镊子(110 mm) | IDEAL-TEK | 3480641(5 SA) | 用于去除肌肉层 |
| 高分辨率数字CCD相机 | 滨松 | ORCA-ER | 用于成像实验 |
| 3-异丁基-1-甲基黄嘌呤 | Sigma-Aldrich | I7018 | 阳性对照(分泌实验) |
| L-15 培养基(Leibovitz) | Sigma-Aldrich | L1518 | 采集组织时需置于冰上 |
| L-谷氨酰胺 | Sigma-Aldrich | G7513 | 用于配制培养基 |
| Matrigel | 康宁 | 354234 | 基底膜基质,用于培养板和培养皿的包被 |
| MetaFluor | Molecular Devices(由Cairn Research提供) | - | 荧光比率成像软件 |
| 小鼠(C57BL6) | 查尔斯河实验室 | C57BL/6J | 用于繁育的背景小鼠。也可用于分泌实验 |
| 小鼠(GLU-cre x ROSA26 GCaMP3) | 自主研发 | - | 用于钙成像和分泌实验 |
| 显微镜(EVOS XL Core) | 赛默飞世尔科技 | AMEX1000 | 用于培养物的显微照片 |
| 显微镜 | 奥林巴斯 | IX71 | 配备40倍油镜的倒置显微镜,用于成像实验 |
| 单色仪 | 凯恩研究 | - | 用于成像实验 |
| 巴斯德吸管 | Alpha 实验室 | LW4234 | 用于组织清洗 |
| 含钙的 PBS2+ 和 Mg2+ | Sigma-Aldrich | D8662 | 洗涤组织时,需置于冰上 |
| 青霉素 &氨苄青霉素和链霉素 | Sigma-Aldrich | P0781 | 用于配制培养基 |
| 培养皿(100 mm × 20 mm) | 康宁 | CLS430167 | 用于清洗组织并去除肌肉层 |
| 氯化钾 | Fisher Scientific | P/4280/53 | 阳性对照(钙成像实验) |
| 剪刀 | Agar Scientific | AGT554 | 用于肠道的解剖/切除 |
| 无菌细胞滤网 100 µm | Fisher Scientific | 22363549 | 用于在接种前过滤隐窝细胞悬液 |
| 手术刀片22号(无菌,不锈钢) | Swann Morton | 0308 | 用于组织切碎 |
| 注射器滤器,Minisart NML(0.2 µm 孔径大小) | 赛多利斯 | 16534-K | 用于过滤除菌胶原酶溶液(消化培养基) |
| 20 mL一次性无菌滑动式鲁尔接头注射器 | BD | 300613 | 用于过滤除菌胶原酶溶液(消化培养基) |
| 75 W 氙弧灯 | 凯恩研究 | - | 用于成像实验 |
| Y-27632 二盐酸盐 | Tocris | 1254 | ROCK 抑制剂,用无菌水配制 10 mM 储存液(在终末培养基中使用比例为 1:1,000) |
参考文献
- Reimann, F., Habib, A. M., Tolhurst, G., Parker, H. E., Rogers, G. J., Gribble, F. M. Glucose sensing in L cells: A primary cell study. Cell Metab. 8, 532-539 (2008).
- Psichas, A., Reimann, F., Gribble, F. M. Gut chemosensing mechanisms. J Clin Invest. 125 (3), 908-917 (2015).
- Lovshin, J. A., Drucker, D. J. Incretin-based therapies for type 2 diabetes mellitus. Nat Rev Endocrinol. 5 (5), 262-269 (2009).
- Svendsen, B., Holst, J. J. Regulation of gut hormone secretion. Studies using isolated perfused intestines. Peptides. 77, 47-53 (2016).
- Kuhre, R. E., Frost, C. R., Svendsen, B., Holst, J. J. Molecular mechanisms of glucose-stimulated GLP-1 secretion from perfused rat small intestine. Diabetes. 64 (2), 370-382 (2015).
- Brighton, C. A., et al. Bile acids trigger GLP-1 release predominantly by accessing basolaterally located G protein-coupled bile acid receptors. Endocrinology. 156 (11), 3961-3970 (2015).
- Petersen, N., et al. Generation of L cells in mouse and human small intestine organoids. Diabetes. 63 (2), 410-420 (2014).
- Brubaker, P. L., Vranic, M. Fetal rat intestinal cells in monolayer culture: a new in vitro system to study the glucagon-like immunoreactive peptides. Endocrinology. 120 (5), 1976-1985 (1987).
- Kuhre, R. E., et al. Peptide production and secretion in GLUTag, NCI-H716, and STC-1 cells: a comparison to native L-cells. J Mol Endocrinol. 56 (3), 201-211 (2016).
- Gerbe, F., et al. Distinct ATOH1 and Neurog3 requirements define tuft cells as new secretory cell type in the intestinal epithelium. J Cell Biol. 192 (5), 767-780 (2011).
- Pais, R., Gribble, F. M., Reimann, F. Signalling pathways involved in the detection of peptones by murine small intestinal enteroendocrine L-cells. Peptides. 77, 9-15 (2016).
- Rogers, G. J., et al. Electrical activity-triggered glucagon-like peptide-1 secretion from primary murine L-cells. J Physiol. 589 (Pt 5), 1081-1093 (2011).
- Emery, E. C., et al. Stimulation of GLP-1 secretion downstream of the ligand-gated ion channel TRPA1. Diabetes. 64 (4), 1202-1210 (2015).
- Psichas, A., Glass, L. L., Sharp, S. J., Reimann, F., Gribble, F. M. Galanin inhibits GLP-1 and GIP secretion via the GAL1 receptor in enteroendocrine L and K cells. Br J Pharmacol. 173 (5), 888-898 (2016).
- Tolhurst, G., et al. Short-chain fatty acids stimulate glucagon-like peptide-1 secretion via G-protein-coupled receptor FFAR2. Diabetes. 61 (2), 364-371 (2012).
- Richards, P., et al. High fat diet impairs the function of glucagon-like peptide-1 producing L-cells. Peptides. 77, 21-27 (2016).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nat Biotechnol. 25 (6), 681-686 (2007).
- Parker, H. E., Habib, A. M., Rogers, G. J., Gribble, F. M., Reimann, F. Nutrient-dependent secretion of glucose-dependent insulinotropic polypeptide from primary murine K cells. Diabetologia. 52 (2), 289-298 (2009).
- Pais, R., Rievaj, J., Larraufie, P., Gribble, F. M., Reimann, F. Angiotensin II type 1 receptor-dependent GLP-1 and PYY secretion in mice and humans. Endocrinology. 157 (10), 3821-3831 (2016).
- Moss, C. E., et al. Somatostatin receptor 5 and cannabinoid receptor 1 activation inhibit secretion of glucose-dependent insulinotropic polypeptide from intestinal K cells in rodents. Diabetologia. 55 (11), 3094-3103 (2012).
- Habib, A. M., Richards, P., Rogers, G. J., Reimann, F., Gribble, F. M. Co-localisation and secretion of glucagon-like peptide 1 and peptide YY from primary cultured human L cells. Diabetologia. 56 (6), 1413-1416 (2013).
重印与许可
