癌症细胞移植是研究癌症机制和治疗反应的重要工具。目前的技术依赖于免疫缺陷型动物。本文介绍一种将斑马鱼肿瘤细胞移植到免疫健全胚胎中的方法,用于长期分析肿瘤细胞行为 体内 药物反应
方法文章
将斑马鱼儿童脑肿瘤移植到免疫健全宿主中以长期研究肿瘤细胞行为和药物反应
* These authors contributed equally
本文内容
摘要
摘要
肿瘤细胞移植是一种重要的技术,可用于阐明调控癌细胞生长、迁移及宿主反应的机制,并评估患者对治疗的潜在反应。目前的方法主要依赖于使用同源或免疫缺陷动物,以避免肿瘤移植物被排斥。这类方法需要使用特定的遗传品系,常常限制了对免疫细胞与肿瘤细胞相互作用的分析,和/或局限于特定的遗传背景。在斑马鱼中,一种替代方法利用了胚胎脑在发育早期(3天龄之前)免疫系统尚未完全建立的特点,将肿瘤细胞移植用于短期实验(即 3至10天)。然而,这些方法会导致宿主死亡,从而无法对肿瘤细胞行为和药物反应进行长期研究。本实验方案描述了一种简单且高效的方法,可将斑马鱼脑肿瘤组织长期原位移植至2天龄、免疫功能健全的斑马鱼第四脑室。该方法具有以下优势:1)可长期研究肿瘤细胞行为,如侵袭和播散;2)可持续观察肿瘤对药物的反应;3)可对肿瘤进行再移植,以研究肿瘤的演化过程和/或不同宿主遗传背景的影响。总之,该技术使癌症研究人员能够在数月时间内评估肿瘤的植入、侵袭和远端生长,并开展化合物筛选和细胞竞争实验。本方案可拓展至其他类型肿瘤的研究,并可用于揭示化疗耐药和转移的机制。
引言
将肿瘤细胞移植到免疫缺陷动物(尤其是小鼠异种移植模型)中,是一种广泛使用的技术,用于研究调控癌细胞增殖1,2、存活、侵袭和转移3,4的机制,同时也为药物筛选提供了平台5,6,7。近年来,将原发性肿瘤组织样本移植到免疫缺陷小鼠体内,以建立患者来源的异种移植(PDX)模型,已被用于诊断和临床前药物筛选,并成为个体化医疗计划的核心组成部分8,9,10,11。然而,大量证据表明,调节免疫系统可对肿瘤行为及患者预后产生显著影响12,13。这推动了基于异种移植技术的重新设计,发展出包含"人源化"小鼠的方法,即通过将人类免疫细胞与肿瘤细胞共同移植,重建小鼠的免疫系统。然而,该方法在技术上仍具挑战性,存在可重复性差异、与技术相关的毒性问题,以及高昂的成本14,15。因此,亟需在免疫健全动物中开发新的移植技术,以加速揭示癌症进展及药物反应中与免疫和肿瘤特异性相关的机制。
斑马鱼是研究人类癌症的一种替代动物模型,目前已建立了20多种癌症模型16,包括高度恶性的脑癌17、黑色素瘤18,19,20和胰腺癌21,22,以及多种白血病23,24,25,26,27。斑马鱼系统的两个特征使其特别适用于癌症研究:1)透明动物的光学通透性允许通过简单的显微镜技术直接观察癌细胞的行为(即增殖、存活、侵袭和扩散);2)雌性斑马鱼每天可产生多达200个胚胎,能够在低成本条件下快速扩大动物数量,适用于遗传学或药物筛选。此外,斑马鱼与人类的癌症基因组高度保守(包括癌基因和肿瘤抑制基因)28,使得机制性发现和药物研究成果能够迅速转化至哺乳动物系统。这些特性也使斑马鱼成为移植技术的理想动物模型,可充分利用该系统在成像、可扩展性和低成本方面的优势。
先前在免疫缺陷型斑马鱼中进行的肿瘤移植研究,有助于鉴定肿瘤细胞的自我更新能力、恶性程度以及侵袭/扩散能力11,29。在将肿瘤细胞移植至γ射线辐照的成年斑马鱼后,可开展短期的肿瘤细胞行为研究,此类成年鱼的免疫系统可被有效抑制约20天11,30。使用地塞米松处理成年斑马鱼可在排斥反应发生前抑制B细胞和T细胞功能长达30天31。另一种较少使用的方法是采用克隆型斑马鱼品系,可在免疫功能完整的宿主体内进行长期研究32。然而,目前已建立的克隆品系数量有限,且由于繁殖力低而难以维持。此外,大多数已建立的斑马鱼肿瘤模型是在其他遗传背景下构建的,因此这些肿瘤若未经免疫抑制处理,无法移植到克隆品系中11,33,34。近年来为改善长期移植研究而发展的新方法包括构建rag2E450fs 突变品系,该品系的B细胞和T细胞功能受损,已被成功用于多种癌症的移植研究35,36。为了规避对克隆斑马鱼品系或免疫缺陷宿主的需求,多个研究团队已采用早期胚胎(即>受精后72小时(hpf))进行人类肿瘤细胞移植,因为这些胚胎的适应性免疫系统尚未完全发育37,38,39,40,41,42,43。然而,这些方法仅限于对肿瘤细胞行为或药物反应进行短期分析(通常少于2周),因为人类癌细胞本身或移植操作会导致宿主死亡,从而无法开展长期研究和再移植实验。
本方案详细描述了一种改良的胚胎移植方法,即将细胞移植至受精后2天(dpf)胚胎脑中第四脑室的腔内。该方法对宿主的毒性最小,可与斑马鱼脑肿瘤模型结合,实现肿瘤细胞的长期植入。因此,该技术允许多代间将肿瘤细胞重新移植到新的宿主体内,有助于未来对肿瘤异质性、宿主/免疫应答、药物反应或转移潜能的研究。此外,该方法操作简便、高效且可扩展,单名操作者每天最多可完成300次移植,植入率高达90%。这使得单个原发性肿瘤可在受精后2天(dpf)快速扩增至数百个胚胎,适用于基因筛选或药物筛选项目,也可在数月内直接观察脑肿瘤细胞在不同宿主背景下的行为特征。
方案
所有动物实验程序均经犹他大学机构动物护理和使用委员会(IACUC#16-03019)批准,并遵循其动物护理指南。
1. 准备显微注射设备
- 准备注射平板。
- 配制50 mL含1.2%琼脂糖的溶液,溶剂为卵水(反渗透水中含0.6 g/L水族盐 + 0.01 mg/L亚甲蓝)。加热煮沸至琼脂糖完全溶解,然后补充添加0.05 mg/L亚甲蓝。将25 mL最终溶液倒入直径10 cm的培养皿中,静置使其凝固。将剩余的25 mL琼脂糖溶液置于42 °C水浴中,待进行步骤1.1.2时使用。
- 将一个直径2英寸的烧杯置于已凝固的琼脂糖表面中央,然后倒入剩余的25 mL 1.2%琼脂糖溶液。
注意:此操作可在平板边缘形成注射区域,中心则形成核心区域,用于测试针头尺寸和肿瘤悬液的一致性。- 注射前至少将注射平板在28 °C条件下平衡30分钟,或于4 °C条件下长期保存。
- 准备注射针头。
- 使用外径1.2 mm、内径0.9 mm(无纤维丝)的10 cm毛细管,在拉针仪上拉制成两根针头。
注意:每根针头总长度应约为6 cm,末端约1.5 cm处呈锥形 taper。 - 小心将针头放置在用塑料石蜡膜包裹的显微镜载玻片上。使用剃刀刀片以45°角切割针头末端,形成尖端开口的针头。
注意:通常需切除针头末端0.1 mm至0.3 mm。注射操作无需斜面尖端。
- 使用外径1.2 mm、内径0.9 mm(无纤维丝)的10 cm毛细管,在拉针仪上拉制成两根针头。
- 准备显微注射装置。
- 配置标准的显微注射系统,包括体视显微镜、操纵器和用于移植的微量注射仪。
2. 准备受体胚胎进行移植
- 按照文献45所述方法收集最多500个mitfa w2 胚胎44(或用户定义的任何其他斑马鱼基因型胚胎),并在28 °C培养箱中维持培养。
- 在24 hpf时,向盛有胚胎的培养皿中加入100 µL用胚胎水稀释的10 mg/mL蛋白酶混合液,轻轻摇晃约20分钟以去除卵膜。用新鲜胚胎水清洗胚胎3次,以去除残留的蛋白酶。
- 在48 hpf时根据标准分期系列标准45对胚胎进行筛选,确认其处于合适的发育阶段。
注意:仅可使用发育阶段正确且形态正常的胚胎进行移植。 - 在含有0.002% Tricaine-S的胚胎水中麻醉约二十个48 hpf胚胎。通过观察运动是否停止来确认麻醉效果。
3. 制备肿瘤细胞悬液
注意:斑马鱼脑肿瘤模型可通过遗传改造癌基因和肿瘤抑制基因的不同组合来构建17,46,47。此处使用了最近所描述的由sox10启动子驱动的NRASWT、p53zdf1/zdf1中枢神经系统原始神经外胚层肿瘤(CNS-PNET)斑马鱼模型17。
- 根据IACUC批准的方案,使用0.4%三卡因-S过量麻醉并随后浸入冰水中,处死肿瘤负荷约为总体积20%的脑肿瘤模型鱼。
- 在荧光显微镜下,使用无菌技术以刀片和镊子分离带有荧光标记的肿瘤,并将其置于5 mL 1×磷酸盐缓冲液(PBS)中。
注:具体的解剖方法由使用者根据肿瘤类型和组织位置自行确定。有关斑马鱼不同器官及脑肿瘤解剖的详细步骤,请参见所列参考文献17,48。 - 使用p1000移液器手动破碎肿瘤组织,直至形成均匀且浑浊的溶液。用移液器吸头或40 µm细胞筛去除大颗粒物质(此步骤依肿瘤类型而定)。将悬液在室温下以290 × g离心5分钟,弃去上清液。
注意:不采用荧光激活细胞分选(FACS)来分离肿瘤细胞。这有助于移植包含基质细胞、免疫细胞和肿瘤细胞在内的异质性细胞群体。 - 将肿瘤细胞沉淀重悬于100 µL无菌PBS中,并转移至1.5 mL微量离心管。取5 µL细胞悬液加入250 µL PBS中稀释,使用血细胞计数板计数细胞数量。以290 × g离心3分钟,弃去上清液,再将沉淀重悬于无菌PBS中,以获得所需细胞浓度。
注:通常将细胞重悬于30–40 µL无菌PBS中,可得到黏稠且不透明的溶液(细胞浓度 ≥100 个细胞/nL),此类悬液移植成功率较高。无需评估细胞活力。 - 在移植过程中,将肿瘤悬液置于28 °C加热块上保存。
4. 将肿瘤悬液注射至2天受精龄胚胎的第四脑室
- 使用转移移液管将10-20个已麻醉的胚胎(来自步骤2.4)转移至注射板的边缘;胚胎应侧向落入注射板,使脑室清晰可见且易于操作。根据需要使用斜头探针调整胚胎位置,并将其置于远离注射板外缘的位置。
- 使用凝胶上样枪头将1-2 µL肿瘤细胞悬液吸入注射针中,并将针插入操纵器。
- 手动降低操纵器,保持针头呈45°角。调节显微操作仪的x、y和z方向旋钮,直至针头位于胚胎头部正上方且约在其右侧5 mm处。通过体视显微镜目镜观察,缓慢调节显微操作仪的x方向,直至针头刺入胚胎第四脑室。注意避免针头刺入心脏或卵黄。
- 踩下连接显微注射仪的脚踏开关,注入肿瘤细胞悬液。
注:注射压力和时间将根据针头孔径大小而变化,但合适的起始参数为5 - 10 PSI和50 - 100 ms。如有需要,可通过将液体注射至矿物油中并采用标准油滴法评估注射体积49。通常,注射500 pL、液滴直径为0.1 mm时效果最佳。
- 踩下连接显微注射仪的脚踏开关,注入肿瘤细胞悬液。
- 用新鲜的卵水轻轻冲洗已注射的胚胎,使其从注射板上脱离并进入培养皿中。在后续操作完成前或转入养殖箱前(如步骤4.9.1所述),将胚胎维持在卵水中。
- 在荧光体视显微镜下检查已注射的胚胎。确认注射压力、角度、针头尺寸及细胞悬液黏度能使肿瘤细胞填充脑室空间的25-50%。根据需要调整这些参数。
- 对剩余胚胎重复步骤4.1-4.5。根据需要对额外胚胎进行麻醉处理(见步骤2.4)。
注:熟练的操作者可在3-4小时内完成最多300个胚胎的注射。 - 将胚胎放回28 °C培养箱中过夜。
- 次日,通过观察形态学和生理学特征(如正常的心脏和脑部发育)评估胚胎存活情况,方法见文献45所述。
- 用于筛选时,在移植后1天(dpt)按照步骤2.4所述方法对胚胎进行麻醉。
- 使用转移移液管将4%甲基纤维素加至培养皿中央,再将胚胎加入甲基纤维素液滴中。使用斜头探针调整胚胎方向(腹面朝向光源),并在荧光显微镜下筛选具有稳定移植体积的胚胎。剔除肿瘤细胞超出脑室外或填充脑室空间不足25%的胚胎。
注:稳定的移植定义为单个肿瘤团块占据脑室空间的25-50%17。用于筛选时,建议使用配备1X物镜、数值孔径0.15、放大倍数0.7-1.6X、曝光时间50 ms至1 s的荧光体视显微镜。所有图像均应同时采集明场通道以及GFP或RFP通道。 - 如需维持肿瘤生长,将移植后的胚胎放入养殖箱中继续培养至8 dpf(6 dpt)45。
- 使用转移移液管将4%甲基纤维素加至培养皿中央,再将胚胎加入甲基纤维素液滴中。使用斜头探针调整胚胎方向(腹面朝向光源),并在荧光显微镜下筛选具有稳定移植体积的胚胎。剔除肿瘤细胞超出脑室外或填充脑室空间不足25%的胚胎。
5. 移植胚胎的细胞行为成像
- 将3-8 dpf(1-6 dpt)的胚胎麻醉后,用1.2%低熔点琼脂糖固定(背侧朝向盖玻片)。根据需要,使用激光扫描共聚焦显微镜对固定好的胚胎进行延时成像,以观察细胞行为,如迁移、细胞分裂或细胞间相互作用,成像持续适当时长38,43,53。
注:采用1,024 × 1,024的分辨率,扫描速度为8 µs/像素。使用扫描平均,并设定z轴深度范围(1,000–1,500 µm),以确保完整捕获整个肿瘤组织。此外,建议使用40倍物镜,每10–15分钟采集一次图像,进行4小时的延时实验,以监测侵袭性行为。探测器灵敏度需根据肿瘤组织的荧光强度进行调整,激光功率则依显微镜型号而异,通常建议设置在15%至40%之间。 - 成像完成后,使用斜角探针将固定在琼脂糖中的胚胎释放,并转移至含有新鲜卵水的培养皿中。
6. 对移植胚胎的药物给药及肿瘤负荷评估17
- 在3 dpf时麻醉胚胎,并将其置于4%甲基纤维素中,使腹侧朝向光源。使用荧光显微镜对处理前的胚胎进行成像17。
- 将移植后的胚胎在3 dpf时放入12孔板中,每孔10个胚胎,加入0.5 mL的胚胎水。加入适量药物以达到所需终浓度(例如,50 µM MEK抑制剂),然后将胚胎放回28 °C培养箱中。次日,用细口移液管移除含药的胚胎水,更换新鲜药物处理液。此后每日重复换液,直至胚胎发育至8 dpf。
- 在8 dpf时,将胚胎从药物处理中取出,转移至新鲜胚胎水中。麻醉胚胎后,将其置于4%甲基纤维素中并调整方向(腹侧朝向光源)。使用荧光显微镜对处理后的胚胎进行成像。按照文献所述方法17,使用适当的软件量化肿瘤面积。
- 根据处理条件将胚胎分别转移至养殖缸中继续培养。4–9周后,麻醉斑马鱼,并使用标准荧光体视显微镜评估总体肿瘤负荷,方法见文献17。
结果
肿瘤移植与植入
该实验流程的示意图见图1。从原发器官部位提取荧光标记的肿瘤细胞,并制备单细胞悬液,移植至2天受精龄(dpf)的mitfa w2 斑马鱼胚胎第四脑室44。图2展示了利用中枢神经系统原始神经外胚层肿瘤(CNS-PNET)斑马鱼模型获得的代表性结果,该模型中sox10启动子驱动野生型NRAS或激活型NRAS与mCherry的融合蛋白在p53缺陷的少突神经前体细胞中表达17。使用缺乏黑色素细胞的mitfa w2斑马鱼突变体44,可更清晰地观察移植后肿瘤细胞的分布,甚至持续至成鱼阶段。其他色素缺陷突变体也可用于进一步提高成像清晰度,例如Casper50。移植后最早在24小时即可观察到肿瘤细胞向周围脑组织侵袭(图2A,3 dpf,箭头所示)。随后一周内,肿瘤移植物在脑室及周围脑组织中持续生长(图2A,8 dpf)。此时,亦可在肾脏区域观察到荧光信号(图2A,星号所示),这可能是由于肾脏在过滤移植过程中产生的细胞碎片所致,该现象与既往研究中使用荧光染料评估肾功能的结果一致51。随着肿瘤细胞持续增殖和侵袭,至28 dpf时,可在整个斑马鱼脑部观察到明显的肿瘤团块(图2A,28 dpf)。
该技术可实现将肿瘤细胞快速移植到数百个胚胎中,且具有可重复的一致性,因为注射位点能够被精确定位,同时对宿主的损伤最小。在图2B的上层面板中展示了移植了mCherry标记的脑肿瘤细胞的一组代表性胚胎。通常情况下,80–90%的胚胎可成功实现肿瘤移植,且肿瘤移植物可长期存留至成年阶段;图2B的下层面板展示了三个代表性实例。这使得肿瘤移植物可在多代之间被收获、冷冻保存或重新移植。
肿瘤侵袭与药物反应
图3A展示了一种共移植方案,其中分别用GFP(肿瘤A)或mCherry(肿瘤B)标记的两种不同肿瘤通过全肿瘤解离法获取(注意此处未使用FACS,但如有需要也可使用经FACS分选的肿瘤细胞)。肿瘤A和肿瘤B可来源于不同部位、由不同癌基因诱导,或在不同遗传背景下诱导产生。每种肿瘤均被处理成单细胞悬液,然后按1:1比例混合,并移植到2天受精后(2-dpf)的胚胎中。随后可在同一宿主体内观察肿瘤A与肿瘤B在定植、生长、侵袭及扩散等方面的特性,从而为该技术及遗传背景提供内部对照。
在图3B中,取自视顶盖的NRAS驱动、mCherry标记的斑马鱼中枢神经系统原始神经外胚层肿瘤(CNS-PNET)以及来自小脑的GFP标记的CNS-PNET,经处理制成单细胞悬液。细胞计数后,将来自两种肿瘤的等量细胞混合,并移植到2天龄的胚胎中。移植后第4天,利用共聚焦显微镜对胚胎进行成像。图中显示了一个代表性胚胎,表明视顶盖来源的肿瘤细胞(红色)向宿主脑组织迁移的程度明显超过小脑来源的肿瘤细胞(箭头所示)。
移植了荧光标记肿瘤细胞的胚胎可用于药物治疗方案,以鉴定抑制肿瘤生长的化合物。图3C展示了治疗和成像肿瘤移植物的典型时间线。移植后24小时,筛选胚胎以确保移植物大小一致,并将其分入不同的治疗组。在本示例中,移植了由NRAS驱动且带有mCherry标记的斑马鱼CNS-PNETs的胚胎,分别用50 µM二甲基亚砜(DMSO)或MEK抑制剂(AZD6244)处理。胚胎持续处理5天,并在8 dpf时进行成像,具体流程如图3C所示。图3D(左侧面板)展示了两个治疗组的代表性个体。与DMSO处理组相比,MEK抑制剂处理组胚胎的荧光信号显著降低,如文献17所述。成像完成后,将动物转移至不含药物的水箱中,并持续监测其肿瘤生长情况,为期两个月。在本示例中,MEK抑制剂治疗在成年鱼中产生了持久的治疗反应(图3D,右侧面板)。有关药物处理、成像及定量分析的更多细节,请参见参考文献17。
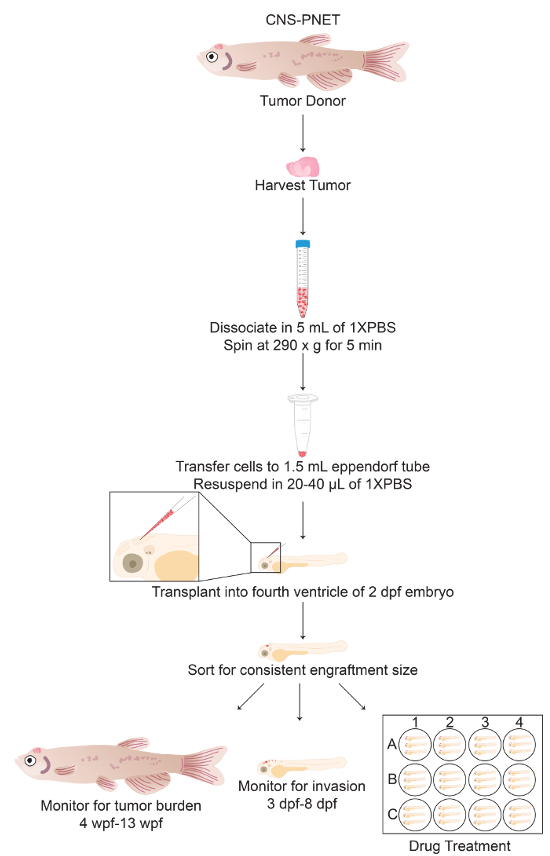
图1:将肿瘤细胞移植至2天龄斑马鱼胚胎第四脑室的实验方案示意图。 本图概括了方案中第3至第4部分的总体流程,包括可选的终点分析(第4.9–4.6节)。请点击此处查看此图的放大版本。
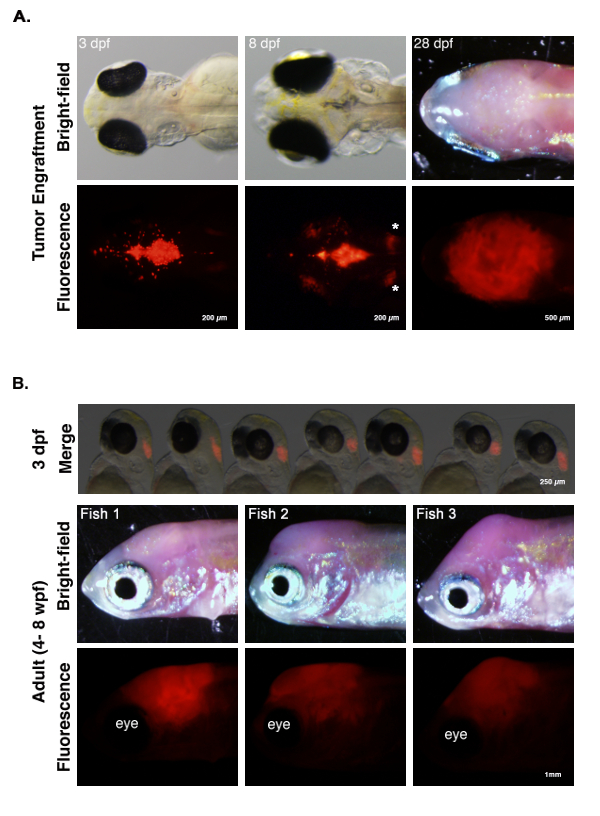
图 2:肿瘤移植与进展。 (A) 标记了 mCherry 的斑马鱼原发性中枢神经系统原始神经外胚层肿瘤(CNS-PNET17)细胞被移植至 2 日龄受精胚胎的第四脑室。在 3 日龄时,可见肿瘤细胞侵入周围脑组织(箭头所示)。在 8 日龄时,肿瘤细胞在脑室内生长;红色的肿瘤细胞也出现在周围脑组织和肾脏中(星号所示)。在 28 日龄时,肿瘤细胞已侵入并在整个宿主脑内生长。(B) 上图:7 条 3 日龄受精胚胎,移植了标记 mCherry 的斑马鱼脑肿瘤细胞。可将肿瘤细胞稳定地移植到数百个胚胎中,且移植成功率高(即 通常为每 100 个胚胎中 85 个成功)。中图和下图:3 条具有移植肿瘤的代表性成年鱼,受精后 4–8 周。可通过荧光显微镜观察肿瘤。请点击此处查看该图的放大版本。

图 3:比较肿瘤侵袭性与药物反应。 (A)分别来源于视顶盖或小脑的CNS-PNETs17,用mCherry或GFP标记,处理成单细胞悬液后按1:1比例混合,并共同移植到2天受精后(dpf)的胚胎中。 (B)一只6 dpf的胚胎共同移植了GFP标记的小脑肿瘤细胞和mCherry标记的视顶盖来源肿瘤细胞。通过荧光显微镜可观察到在同一宿主体内两种肿瘤侵袭特性的差异。在此示例中,mCherry标记的肿瘤细胞比GFP标记的细胞迁移更广泛(箭头所示)。 (C)对移植了肿瘤细胞的胚胎进行药物处理的时间线。 (D)在治疗结束时(8 dpf)以及治疗后8周(8 wpf)具有代表性的动物图像,分别接受DMSO对照或50 µM MEK抑制剂处理。如文献所述17,可通过定量荧光强度来评估肿瘤负荷。在此实验中,经MEK抑制剂处理的胚胎中mCherry标记的肿瘤细胞生长受到抑制,并在成体阶段表现为持久的治疗反应。 请点击此处查看该图的放大版本。
讨论
本方案详细描述了一种简单且高效的移植实验方法,涉及将斑马鱼肿瘤细胞注射到2天受精龄(dpf)胚胎的心室中,该胚胎将发育出完全具备功能的免疫系统。迄今为止,斑马鱼中枢神经系统原始神经外胚层肿瘤(CNS-PNET)17 和黑色素瘤(数据未显示)已成功用于长期研究肿瘤细胞的行为与侵袭特性。本方案的关键步骤包括确保使用合适孔径的注射针头、制备适当的肿瘤细胞悬液,以及充分麻醉宿主胚胎。对于每位研究人员而言,该技术的进一步优化可能包括调整肿瘤细胞浓度、注射压力和胚胎摆放方向。此外,来源于不同肿瘤的细胞悬液在黏度上可能存在异质性,因此不同类型肿瘤在重悬和移植过程中可能难度各异。然而,通过调整针头孔径以及使用不同稀释度的肿瘤细胞悬液,可以克服因肿瘤黏度不同所带来的操作困难。
根据我们的经验,脑室内细胞稀疏或细胞团块不一致的最常见原因如下:1)肿瘤细胞悬液浓度过低;2)针头孔径过小;3)注射时间或压力过低;和/或4)肿瘤组织未充分过滤,残留组织堵塞针头。注射后肿瘤细胞悬液从脑室流出,可能原因包括:1)针头抵住脑室底部;2)注射压力过高或时间过长;和/或3)针头孔径过大。移植胚胎存活率低可能由以下因素导致:1)胚胎麻醉时间过长;2)胚胎在注射板上暴露过久导致干燥;3)将气泡注入脑室内;和/或4)针头穿透脑室后刺伤脑、心脏等重要器官。
既往在成年或胚胎斑马鱼脑内进行肿瘤移植的方法依赖于成年个体的免疫抑制(通过基因手段、药物手段或 通过 辐射)或仅限于对人类或小鼠胚胎细胞的短期研究38,43,52,53,54例如,可将小鼠脑瘤通过鼻内注射的方式接种于地塞米松免疫抑制的30日龄幼年斑马鱼中,用于短期(约2天)的临床前药物筛选实验。54然而,这些实验中的注射位点被颅骨和脑组织遮挡,可能导致正常脑组织受损,从而降低宿主存活率和移植效率。另一种近期报道的方法是将人胶质母细胞瘤细胞系注射至斑马鱼胚胎的中脑区域,该方法可实现对肿瘤生长、侵袭及药物反应的短期分析。43注射位点的精确定位存在差异,且可能损伤正常组织。因此,以往的胚胎脑移植方法常影响宿主的存活率,限制了这些研究仅能进行短期分析。即, 2至14天),导致因注射位点模糊而使个体注射间变异增大,并阻碍对细胞行为、药物反应或跨多代再移植的长期分析。
本文所述方法通过以下方式克服了当前斑马鱼胚胎移植及免疫缺陷移植技术的局限性:1)可重复地将物质注入相同位置,同时对周围组织造成最小损伤;2)直接可视化注射部位,以最大程度提高移植效率;3)每天可完成数百个胚胎的移植;4)可在具有完整免疫功能的动物体内使肿瘤生长;5)可在斑马鱼整个生命周期内持续监测肿瘤细胞行为及持久的药物反应;6)可实现肿瘤在多代间的再移植,适用于潜在的肿瘤演化或药物复发机制研究。此外,本方案使研究人员能够使用任意斑马鱼基因型来评估宿主反应,包括不同免疫细胞群体。这些特性使得任何已开展斑马鱼常规显微注射的实验室均可轻松采用该方法。最后,尽管该方法特别适用于斑马鱼脑肿瘤的原位注射,但在移植其他类型肿瘤(如肝或胰腺肿瘤)时,原位环境可能比免疫能力更为重要(例如,当研究人员关注间质微环境对肿瘤生长的影响时)。在此情况下,新开发的免疫缺陷型斑马鱼模型可能更适用于进行原位肿瘤移植11。
本方案已用于开展肿瘤细胞竞争实验以及双标记肿瘤的注射。文中还讨论了一种评估化学化合物对肿瘤发生作用效果的潜在治疗策略,即通过将药物添加到水中,对移植后的胚胎进行处理。此前也有报道,在移植前对肿瘤细胞进行ex vivo处理的方法17。此外,移植后的肿瘤已被用于多轮重复移植,这将有助于肿瘤进化和化疗耐药性的研究17。目前,临床前研究依赖于小鼠异种移植模型来评估潜在化合物的疗效。然而,这些研究耗时较长且成本高昂。鉴于斑马鱼与人类在致癌信号通路方面具有高度保守性28,预计该方法将可作为传统小鼠和人类细胞研究的有力补充,从而更快速地筛选出可用于临床前和临床试验的有效化合物。最终,该方法可能在原代患者肿瘤的快速化学筛选中发挥重要作用,进一步推动个体化医疗的发展。然而,人类细胞在斑马鱼(成鱼或胚胎)体内长期生长的条件仍有待明确。
披露
作者无任何披露信息。
致谢
我们感谢两位审稿人对稿件提出的宝贵建议和改进意见。同时感谢亨茨曼癌症研究所/犹他大学提供的动物饲养与维护支持。本工作由美国癌症协会(#124250-RSG-13-025-01-CSM)、美国国立卫生研究院资助项目(P30 CA042014 CRR项目)、犹他大学种子基金以及亨茨曼癌症基金会资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 卵水 | 自制 | 胚胎维持,制备注射板 | |
| 亚甲蓝 | Sigma-Aldrich | M9140 | 添加至卵水中以防止真菌生长 |
| 培养皿 | Thermo Fisher | FB0875711Z | 容纳胚胎,制备注射板 |
| 50 mL 烧杯(2 英寸直径) | 任何商用品牌 | 制备注射板 | |
| 琼脂糖 | Denville | CA3510-8 | 制备注射板 |
| 玻璃容器 | 任何商用品牌 | 制备注射板 | |
| 镊子 | Fine Science Tools | 11295-10 | 肿瘤解剖 |
| 刀片 | Thermo Fisher | 12640 | 针头制备,肿瘤解剖 |
| 包裹有Parafilm的载玻片 | 任何商用品牌 | 针头制备 | |
| 1×磷酸盐缓冲液,pH 7.4 | Life Technologies | 10010023 | 肿瘤重悬 |
| 细胞筛,40 µm | Corning Falcon | 352340 | 肿瘤重悬 |
| 1,000 µL滤芯吸头 | 任何商用品牌 | 肿瘤重悬 | |
| 100 µL滤芯吸头 | 任何商用品牌 | 肿瘤重悬 | |
| 50 mL锥形管 | Genesee Scientific | 21-108 | 肿瘤重悬 |
| 15 mL锥形管 | Genesee Scientific | 21-103 | 肿瘤重悬 |
| 1.7 mL微量离心管 | Genesee Scientific | 24-281 | 肿瘤重悬 |
| 移液器 | 任何商用品牌 | 肿瘤重悬与移植 | |
| 玻璃毛细管(无丝) | World Precision Instruments | TW120-4 | 肿瘤移植 |
| 拉针仪 | Sutter Instruments | P-97 | 肿瘤移植 |
| 微量加样吸头 | Eppendorf | 930001007 | 肿瘤移植 |
| 显微注射仪 | Harvard Apparatus | PLI-90 | 肿瘤移植 |
| 三卡因-S(MS-222) | Western Chemical | TRS1 | 肿瘤移植,麻醉剂 |
| 弯头探针 | Fine Science Tools | 10140-02 | 胚胎操作 |
| 移液管 | 任何商用品牌 | 胚胎操作 | |
| 离心机 | Eppendorf | 5810R | 肿瘤重悬过程中需要 |
| 微量离心机 | Eppendorf | 5424 | 肿瘤重悬过程中需要 |
| 体视显微镜 | Olympus | SZ61 | 肿瘤移植 |
| 荧光体视显微镜 | Olympus | SZX16 | 成像肿瘤移植 |
| 显微镜相机 | Olympus | DP-72 | 成像肿瘤移植 |
| 甲基纤维素 | Sigma-Aldrich | M7140 | 成像肿瘤移植 |
| 培养箱 | 任何商用品牌 | 胚胎维持,加热注射件 | |
| 微波炉 | 任何商用品牌 | 制备注射板 | |
| 天平 | 任何商用品牌 | 制备注射板 | |
| 手套 | 任何商用品牌 | 实验方案所有环节 | |
| 低熔点琼脂糖 | 任何商用品牌 | 胚胎共聚焦成像 | |
| 玻璃底培养皿 | Mattek Corporation | P35G-1.0-20-C | 胚胎共聚焦成像 |
| 激光扫描共聚焦显微镜 | Olympus | FLUOVIEW FV1200 | 胚胎共聚焦成像 |
| 蛋白酶K | Roche Diagnostics | 11459643001 | 去除胚胎的卵膜 |
| PBS | 任何商用品牌 | 重悬肿瘤/肿瘤细胞 | |
| 12孔板 | 任何商用品牌 | 胚胎药物处理 | |
| 细口径移液管 | 任何商用品牌 | 胚胎药物处理 | |
| 血细胞计数板 | 任何商用品牌 | 用于悬浮肿瘤细胞计数 | |
| N2 | 任何商用品牌 | 用于显微注射仪设置 |
参考文献
- Shaw, T. J., Senterman, M. K., Dawson, K., Crane, C. A., Vanderhyden, B. C. Characterization of intraperitoneal, orthotopic, and metastatic xenograft models of human ovarian cancer. Mol Ther. 10 (6), 1032-1042 (2004).
- Stephen, R. M., et al. Monitoring the development of xenograft triple-negative breast cancer models using diffusion-weighted magnetic resonance imaging. Exp Biol Med. 237 (11), 1273-1280 (2012).
- Deroose, C. M., et al. Multimodality imaging of tumor xenografts and metastases in mice with combined small-animal PET, small-animal CT, and bioluminescence imaging. J Nucl Med. 48 (2), 295-303 (2007).
- Saxena, M., Christofori, G. Rebuilding cancer metastasis in the mouse. Mol Oncol. 7 (2), 283-296 (2013).
- Johnson, J. I., et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 84 (10), 1424-1431 (2001).
- Kerbel, R. S. Human tumor xenografts as predictive preclinical models for anticancer drug activity in humans - Better than commonly perceived - But they can be improved. Cancer Biology & Therapy. 2 (4), S134-S139 (2003).
- Scholz, C. C., Berger, D. P., Winterhalter, B. R., Henss, H., Fiebig, H. H. Correlation of Drug Response in Patients and in the Clonogenic-Assay with Solid Human Tumor Xenografts. Eur J Cancer. 26 (8), 901-905 (1990).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Cho, S. Y., et al. An Integrative Approach to Precision Cancer Medicine Using Patient-Derived Xenografts. Mol Cells. 39 (2), 77-86 (2016).
- Hiroshima, Y., et al. Patient-derived mouse models of cancer need to be orthotopic in order to evaluate targeted anti-metastatic therapy. Oncotarget. 7 (44), 71696-71702 (2016).
- Moore, J. C., Langenau, D. M. Allograft Cancer Cell Transplantation in Zebrafish. Adv Exp Med Biol. 916, 265-287 (2016).
- Hanahan, D., Weinberg, R. A. Hallmarks of cancer: the next generation. Cell. 144 (5), 646-674 (2011).
- Dranoff, G. Experimental mouse tumour models: what can be learnt about human cancer immunology. Nat Rev Immunol. 12 (1), 61-66 (2011).
- Richmond, A., Su, Y. Mouse xenograft models vs GEM models for human cancer therapeutics. Dis Model Mech. 1 (2-3), 78-82 (2008).
- Bernard, D., Peakman, M., Hayday, A. C. Establishing humanized mice using stem cells: maximizing the potential. Clin Exp Immunol. 152 (3), 406-414 (2008).
- White, R., Rose, K., Zon, L. Zebrafish cancer: the state of the art and the path forward. Nat Rev Cancer. 13 (9), 624-636 (2013).
- Modzelewska, K., et al. MEK Inhibitors Reverse Growth of Embryonal Brain Tumors Derived from Oligoneural Precursor Cells. Cell Rep. 17 (5), 1255-1264 (2016).
- Patton, E. E., et al. BRAF mutations are sufficient to promote nevi formation and cooperate with p53 in the genesis of melanoma. Curr Biol. 15 (3), 249-254 (2005).
- Dovey, M., White, R. M., Zon, L. I. Oncogenic NRAS cooperates with p53 loss to generate melanoma in zebrafish. Zebrafish. 6 (4), 397-404 (2009).
- Santoriello, C., et al. Kita driven expression of oncogenic HRAS leads to early onset and highly penetrant melanoma in zebrafish. PLoS One. 5 (12), e15170(2010).
- Park, S. W., et al. Oncogenic KRAS induces progenitor cell expansion and malignant transformation in zebrafish exocrine pancreas. Gastroenterology. 134 (7), 2080-2090 (2008).
- Liu, S., Leach, S. D. Screening pancreatic oncogenes in zebrafish using the Gal4/UAS system. Methods Cell Biol. 105, 367-381 (2011).
- Langenau, D. M., et al. Myc-induced T cell leukemia in transgenic zebrafish. Science. 299 (5608), 887-890 (2003).
- Langenau, D. M., et al. Cre/lox-regulated transgenic zebrafish model with conditional myc-induced T cell acute lymphoblastic leukemia. Proc Natl Acad Sci U S A. 102 (17), 6068-6073 (2005).
- Sabaawy, H. E., et al. TEL-AML1 transgenic zebrafish model of precursor B cell acute lymphoblastic leukemia. Proc Natl Acad Sci U S A. 103 (41), 15166-15171 (2006).
- Chen, J., et al. NOTCH1-induced T-cell leukemia in transgenic zebrafish. Leukemia. 21 (3), 462-471 (2007).
- Feng, H., et al. Heat-shock induction of T-cell lymphoma/leukaemia in conditional Cre/lox-regulated transgenic zebrafish. Br J Haematol. 138 (2), 169-175 (2007).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496 (7446), 498-503 (2013).
- Li, P., White, R. M., Zon, L. I. Transplantation in zebrafish. Methods Cell Biol. 105, 403-417 (2011).
- Traver, D., et al. Effects of lethal irradiation in zebrafish and rescue by hematopoietic cell transplantation. Blood. 104 (5), 1298-1305 (2004).
- Stoletov, K., Montel, V., Lester, R. D., Gonias, S. L., Klemke, R. High-resolution imaging of the dynamic tumor cell vascular interface in transparent zebrafish. Proc Natl Acad Sci U S A. 104 (44), 17406-17411 (2007).
- Streisinger, G., Walker, C., Dower, N., Knauber, D., Singer, F. Production of clones of homozygous diploid zebra fish (Brachydanio rerio). Nature. 291 (5813), 293-296 (1981).
- Mizgirev, I., Revskoy, S. Generation of clonal zebrafish lines and transplantable hepatic tumors. Nat Protoc. 5 (3), 383-394 (2010).
- Mizgireuv, I. V., Revskoy, S. Y. Transplantable tumor lines generated in clonal zebrafish. Cancer Res. 66 (6), 3120-3125 (2006).
- Tenente, I. M., Tang, Q., Moore, J. C., Langenau, D. M. Normal and malignant muscle cell transplantation into immune compromised adult zebrafish. J Vis Exp. (94), (2014).
- Tang, Q., et al. Optimized cell transplantation using adult rag2 mutant zebrafish. Nat Methods. 11 (8), 821-824 (2014).
- Geiger, G. A., Fu, W., Kao, G. D. Temozolomide-mediated radiosensitization of human glioma cells in a zebrafish embryonic system. Cancer Res. 68 (9), 3396-3404 (2008).
- Kitambi, S. S., et al. Vulnerability of glioblastoma cells to catastrophic vacuolization and death induced by a small molecule. Cell. 157 (2), 313-328 (2014).
- Lally, B. E., et al. Identification and biological evaluation of a novel and potent small molecule radiation sensitizer via an unbiased screen of a chemical library. Cancer Res. 67 (18), 8791-8799 (2007).
- Vittori, M., Motaln, H., Turnsek, T. L. The study of glioma by xenotransplantation in zebrafish early life stages. J Histochem Cytochem. 63 (10), 749-761 (2015).
- Yang, X. J., et al. A novel zebrafish xenotransplantation model for study of glioma stem cell invasion. PLoS One. 8 (4), e61801(2013).
- Zhao, H., Tang, C., Cui, K., Ang, B. T., Wong, S. T. A screening platform for glioma growth and invasion using bioluminescence imaging. Laboratory investigation. J Neurosurg. 111 (2), 238-246 (2009).
- Welker, A. M., et al. Correction: Standardized orthotopic xenografts in zebrafish reveal glioma cell-line-specific characteristics and tumor cell heterogeneity. Dis Model Mech. 9 (9), 1063-1065 (2016).
- Lister, J. A., Robertson, C. P., Lepage, T., Johnson, S. L., Raible, D. W. nacre encodes a zebrafish microphthalmia-related protein that regulates neural-crest-derived pigment cell fate. Development. 126 (17), 3757-3767 (1999).
- Westerfield, M. The Zebrafish Book. A Guide for the Laboratory Use of Zebrafish (Danio rerio). , University of Oregon Press. (2000).
- Solin, S. L., Shive, H. R., Woolard, K. D., Essner, J. J., McGrail, M. Rapid tumor induction in zebrafish by TALEN-mediated somatic inactivation of the retinoblastoma1 tumor suppressor rb1. Sci Rep. 5, 13745(2015).
- Ju, B., et al. Oncogenic KRAS promotes malignant brain tumors in zebrafish. Mol Cancer. 14, (2015).
- Gupta, T., Mullins, M. C. Dissection of organs from the adult zebrafish. J Vis Exp. (37), (2010).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of zebrafish embryos to analyze gene function. J Vis Exp. (25), (2009).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Christou-Savina, S., Beales, P. L., Osborn, D. P. Evaluation of zebrafish kidney function using a fluorescent clearance assay. J Vis Exp. (96), e52540(2015).
- Rampazzo, E., et al. Wnt activation promotes neuronal differentiation of glioblastoma. Cell Death Dis. 4, (2013).
- Lal, S., La Du,, Tanguay, J., L, R., Greenwood, J. A. Calpain 2 is required for the invasion of glioblastoma cells in the zebrafish brain microenvironment. J Neurosci Res. 90 (4), 769-781 (2012).
- Eden, C. J., et al. Orthotopic models of pediatric brain tumors in zebrafish. Oncogene. 34 (13), 1736-1742 (2015).
重印与许可
