甲型流感病毒(IAVs)是重要的人类呼吸道病原体。为了理解IAVs的致病性并进行新型疫苗策略的临床前测试,需要采用模拟人类生理特征的动物模型。本文描述了利用小鼠感染模型评估IAV致病机制、体液免疫应答及疫苗效力的技术方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
流感病毒在全球范围内每年导致超过50万人死亡1,仅在美国,考虑到直接的医疗和住院费用以及因病缺勤,每年造成的经济损失达120至140亿美元2。在甲型流感病毒(IAV)研究中,动物模型对于评估病毒致病性、宿主与病原体相互作用、免疫应答以及现有或新型疫苗策略和抗病毒药物的有效性至关重要。小鼠是一种具有优势的小型动物模型,因为其免疫系统在进化上与人类相似,可从商业供应商处获得遗传背景一致的个体,存在多种品系可用于探究感染的遗传基础,且饲养成本相对较低,操作简便。为了通过呼吸道模拟人类IAV感染,需在适当的生物安全防护条件下,先对小鼠进行麻醉,再经鼻内接种具有感染性的IAV。感染后,通过每日监测小鼠的发病情况(体重减轻)和死亡率(存活率)来评估IAV的致病性。此外,还可通过检测感染小鼠上呼吸道(鼻黏膜)或下呼吸道(肺部)中的病毒复制水平来评估病毒致病性。IAV感染后的体液免疫应答可通过无创采血结合次级抗体检测方法快速评估,以检测总抗体或中和抗体的存在。本文描述了经鼻内(i.n.)途径感染小鼠并评估其致病性、体液免疫应答及保护效力的常用方法。
引言
甲型流感病毒(IAVs)属于有包膜病毒,归类于Orthomyxoviridae科3。其基因组由八条单链负链RNA分子组成3。在人类中,当新型病毒传入人群时,IAVs可引起季节性流行,并偶尔导致具有重大影响的全球大流行4。此外,季节性IAVs在人与人之间传播能力强且迅速,每年在全球范围内造成巨大的经济损失2,5。IAVs感染的症状包括咳嗽、鼻塞、发热、不适、头痛、食欲减退和肌痛,但在免疫功能低下患者中,该病毒还可引发更严重的疾病6。事实上,世界卫生组织(WHO)估计,季节性流感病毒每年在全球导致30万至50万人死亡1。目前,美国食品药品监督管理局(FDA)仅批准了两类用于人类流感预防和治疗的药物:神经氨酸酶(NA)抑制剂(例如,奥司他韦)和M2离子通道阻断剂(例如,金刚烷胺);然而,耐药病毒株的出现日益令人担忧。因此,接种疫苗仍是预防人类IAVs感染的最佳医学手段。截至目前,FDA已批准三种可用于人类的流感疫苗:重组病毒血凝素(HA)蛋白疫苗、灭活流感疫苗(IIV)和减毒活流感疫苗(LAIV)5,7。这三种疫苗的设计均旨在诱导针对病毒HA蛋白的适应性免疫应答,而HA蛋白是抗IAVs中和抗体的主要靶标。
一种经验证的小鼠模型用于研究甲型流感病毒感染 体内
动物模型已被用于研究流感病毒(IAV)的致病机制8,9,10,11、参与疾病发展的病毒因子12和/或病毒传播能力13,14,以及评估新型疫苗或抗病毒药物的有效性9,10,15。小鼠(Mus musculus)是目前IAV研究中应用最广泛的动物模型,原因包括:1)其免疫系统在进化上与人类的免疫系统相似;2)饲养成本低,包括购买、饲养和繁殖费用较低;3)体型小,便于操作和保存;4)宿主个体间差异小,可获得均一的反应和实验结果;5)对小鼠生物学特性已有大量研究积累,包括基因组序列信息;6)有丰富的分子生物学和/或免疫学试剂可供使用;7)存在多种基因敲除(KO)小鼠模型,可用于研究特定宿主蛋白在病毒感染中的作用;8)拥有多种不同的小鼠品系,可用于探究感染的遗传基础。
目前有多种小鼠品系可用于研究甲型流感病毒(IAV) 体内年龄、免疫状态、性别、遗传背景和小鼠品系,以及感染途径、剂量和病毒株,均会影响小鼠感染甲型流感病毒(IAV)后的结果。IAV 研究中最常用的小鼠品系为 C57BL/6、BALB/c,以及近年来更易感 IAV 疾病的 DBA.2 小鼠,其易感性高于前两种品系。16,17,18,19,20重要的是,免疫反应也可能因小鼠品系的不同而有所差异18,19,20因此,为了选择最适合待开展实验的方案,获取有关小鼠和IAV毒株的所有可用信息至关重要。
尽管小鼠是感染研究的良好动物模型 体内 在使用小鼠进行甲型流感病毒(IAV)研究时,存在若干局限性,这些局限性在实验设计中需要予以考虑。例如,使用小鼠的一个主要局限性在于 体内 研究的一个问题是,IAVs 在小鼠之间不会传播。因此,对于传播研究,更被接受的动物模型(例如,雪貂或豚鼠)被使用16,17,21此外,小鼠与人类感染甲型流感病毒(IAV)后的表现存在若干差异。与人类不同,小鼠在感染IAV后不会出现发热,反而表现为体温过低。16,17在小鼠中,甲型流感病毒(IAV)的复制主要集中于下呼吸道(肺部),而非上呼吸道。因此,IAV在小鼠中的毒力并不总是与在人类中的表现相关。总体而言,由于优势超过局限性,小鼠成为评估流感病毒致病机制、免疫原性以及疫苗和抗病毒药物保护效果的首选动物模型。此外,在缺乏小动物模型中IAV感染的前期证据时,使用大型动物模型开展IAV相关研究在伦理上是不可接受的。本文中,我们描述了如何通过鼻内途径(i.n.)感染小鼠,如何监测病毒感染的严重程度和进展过程,以及如何开展评估体液免疫反应和保护效力所需的实验。
访问受限。请登录或开始试用以查看此内容。
方案
本文所述所有动物实验方案均经罗切斯特大学医学院和牙科学院的机构动物护理与使用委员会(IACUC)和机构生物安全委员会(IBC)批准,并符合美国国家研究委员会《实验动物护理与使用指南》22 中的建议。医学院和牙科学院动物实验中心及实验动物医学部的设施与项目已获得国际实验动物评估和认可委员会(AAALAC International)认证,并符合州法律、联邦法规以及美国国立卫生研究院(NIH)政策的要求。各机构在实施本论文所述动物实验方案时,均应遵循类似的规范与要求。
1. 小型脊椎动物的使用
注意:操作小鼠时必须穿戴适当的个人防护装备(PPE)。最低要求包括一次性防护服、鞋套、头帽、口罩和手套。
- 根据 IACUC 协议,每笼最多放置 5 只小鼠。按照 IACUC 协议,采用两种安乐死方法(第二种必须为物理方法)处死小鼠,以确保动物死亡。
注意:在评估流感病毒(IAV)发病率和死亡率的实验中,当小鼠体重减轻达到初始体重的 20% 时,视为达到实验终点,此时使用 CO2 进行安乐死,并以颈椎脱位作为物理性二次确认方法。该体重减轻百分比在其他机构可能有所不同。在需要采集小鼠肺组织和鼻黏膜以研究 IAV 感染的实验程序中,采用致死剂量的 2,2,2-三溴乙醇(TBE)进行安乐死,并以切断肝静脉作为物理性二次确认方法。雌性 6 至 8 周龄 C57BL/6 小鼠购自罗切斯特大学医学院和牙医学院动物饲养设施,并在无特定病原体条件下进行饲养和维护。
2. 生物安全
注意:本报告中用于感染小鼠的流感病毒(IAVs)为常见的小鼠适应性实验室毒株甲型流感病毒 A/Puerto Rico/8/34 H1N1(PR8 WT)22,23 以及一种温度敏感型LAIV变异株,PR8 LAIV8. 进行所有涉及IAV感染的操作(体外 或 体内)、细胞培养物和生物样本,在生物安全二级(BSL-2)条件下于生物安全柜中操作。若使用高致病性IAV毒株,应采用其他BSL防护服或 containment 条件。
- 在执行本文所述所有实验操作前后,使用二氧化氯消毒剂清洁生物安全柜。根据机构生物安全委员会(IBC)的正确建议,在使用前后对所有解剖器械(剪刀、手术刀和解剖镊)以及Dounce匀浆器进行灭菌处理。根据机构生物安全委员会(IBC)和机构动物护理与使用委员会(IACUC)的正确指南,丢弃实验过程中产生的所有材料。
3. 鼻腔感染
- 将6至8周龄的雌性C57BL/6小鼠置于特定病原体阴性环境中饲养。根据所使用的病毒及剂量对小鼠笼具进行整理并标记。采用耳缘打孔编码或其他经批准的方法(如尾部标记)对每笼小鼠进行个体识别。每笼最多放置5只小鼠。
- 在无菌条件下,将IAV(荧光形成单位(FFU)/小鼠)稀释至总体积 30 µL/mouse,在无菌1×磷酸盐缓冲液(PBS)中。将病毒接种物置于冰上保存。使用以下公式计算病毒稀释液中需加入的IAV量:(每只小鼠 X 个FFU / 30 µL)× 最终体积)/ 病毒原液滴度。
- 使用天平称量小鼠体重,并记录每只小鼠的体重(第0天)。用食指和拇指捏住小鼠颈背部的皮肤,将小鼠固定于背侧位置。用小指将尾巴固定于手掌侧。
- 通过将针头插入腹部右侧后2/3处,以240–250 mg/kg剂量对小鼠进行腹腔内(i.p.)麻醉。拔针前短暂停顿。将小鼠放回笼中,等待5分钟。
- 为防止小鼠在麻醉期间眼睛干燥,涂抹无菌眼用软膏。通过检查小鼠是否缺乏足底回缩反射来确认其是否已麻醉(即,脚趾夹捏)。如果小鼠未完全麻醉,可能会咳出病毒。
- 当小鼠完全麻醉后,将其置于仰卧位。将含有移液器吸头的 30 µL 将病毒接种液滴入小鼠鼻腔,并缓慢而持续地推出溶液。通过观察接种液滴消失的情况,确保小鼠正在吸入该制剂。
- 检查小鼠是否正常呼吸,因为TBE可能抑制体温和呼吸频率。将动物放回笼中,使其呈仰卧位。监测小鼠是否有呼吸困难的迹象,若发现异常,应通过将小鼠垂直握住以帮助其呼吸,并通过撞击诱导呼吸运动。24. 持续监测小鼠,直至其恢复意识(麻醉后30 - 45分钟)。
4. 病毒致病性的表征(图1)
- 评估发病率与死亡率(图 1 和 图 2)
- 按照第 3 节所述方法,用 PR8 WT 病毒以 10 倍剂量(10、102、103 和 104 FFU/只)经鼻内(i.n.)感染 3 至 4 组雌性 6 至 8 周龄 C57BL/6 小鼠(每组至少 5 只,n = 5)。
- 在接下来的 14 天内,使用天平在大致相同的时间点监测并称量小鼠体重,以尽量减少因摄食引起的体重波动。当小鼠体重下降超过初始体重的 20% 时,按照第 1 节所述方法实施安乐死。
- 14 天后,对仍存活的小鼠按照第 1 节所述方法实施安乐死。
- 根据 Reed 和 Muench25 方法获得的存活数据计算病毒 50% 小鼠致死剂量(MLD50)。首先计算比例距离(PD):
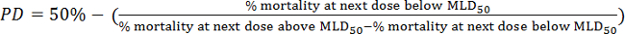
- 然后根据以下公式计算 MLD50:
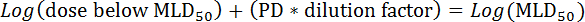
- 然后根据以下公式计算 MLD50:
- 评估肺和鼻黏膜中的病毒滴度(图 1 和 图 2)
- 肺和鼻黏膜的回收
- 按照第 3 节所述方法,用待测剂量(10–104 FFU)的 PR8 WT 病毒经鼻内(i.n.)感染雌性 6 至 8 周龄 C57BL/6 小鼠(n = 6)。
- 在感染后第 2 天(n = 3)和第 4 天(n = 3)采集小鼠肺和鼻黏膜。
- 通过腹腔注射致死剂量的 TBE(500 mg/kg)对小鼠实施安乐死。将动物置于仰卧位,用 70% 乙醇对胸部皮肤进行消毒。使用手术刀从胸骨向腹部基部切开皮肤。用剪刀从切口基部向动物两侧各做 1 cm 的切口。
- 用剪刀剪断肝静脉以放血,作为辅助安乐死方法。将动物置于俯卧位,等待 2 分钟使血液充分排出。此步骤对于减少肺部血液至关重要。
- 借助解剖镊和剪刀,将动物从头部至腹部切口基部的整个上半身皮肤去除。用剪刀剪下头部并置于无菌干燥的培养皿中。
- 用剪刀剪断上颌骨与下颌骨之间的连接处,并丢弃下颌骨。用剪刀在颧弓末端两侧各做两个切口并移除颧弓。借助解剖镊去除眼球。
- 用解剖镊夹住颅骨,用手术刀沿矢状缝切开颅骨。抬起带有脑组织的两半颅骨以暴露鼻黏膜。鼻黏膜周围由颅骨前部骨骼包围,包括鼻骨、上颌骨、腭骨、颧骨和筛骨。
- 用手术刀切下带有脑组织的颅骨部分并弃去。将另一侧带有鼻黏膜的颅骨部分放入无菌管中。若样品当天处理,则将管置于冰上(4 °C);若稍后处理,则置于干冰上快速冷冻。
- 为避免样品污染,每次回收组织及每只动物解剖后,均需使用二氧化氯消毒剂清洁并消毒解剖工具。
- 为采集肺组织,将动物置于仰卧位,用剪刀剪开胸膜。在胸骨两侧各 1 cm 处剪断肋骨以打开胸腔。用剪刀从胸腔基部向上部剪开。
- 在胸腔上部的两个切口之间用剪刀做一横切,移除胸板。用镊子夹住肺组织,在气管末端(紧邻肺部之前)用剪刀剪断,将肺放入无菌管中。若样品当天处理,则将管置于冰上(4 °C);若稍后处理,则置于干冰上快速冷冻。
注:组织样品应在采集当天进行匀浆处理,并储存于 -80 °C 以备后续病毒滴度分析。在测定病毒滴度前,应避免样品经历反复冻融循环。或者,可将组织样品直接储存于 -80 °C,待后续处理。
- 肺和鼻黏膜的匀浆处理
- 将肺或鼻黏膜放入无菌 Dounce 匀浆器中,加入 1 mL 冷感染培养基。在室温(RT)下上下移动研杵约 1 分钟,直至肺组织完全破碎。将匀浆样品转移至无菌管中,置于 4 °C 保存。每个样品均需使用新的 Dounce 匀浆器。
- 在室温下以 300 x g 离心 5–10 分钟。收集上清液至新的无菌管中。若当天进行病毒滴定,则将上清液置于 4 °C 保存,并弃去沉淀。或者,将匀浆样品的上清液冷冻(-80 °C)以备后续病毒滴度测定。
- 通过间接免疫荧光法进行病毒滴定
- 滴定前一天,在 96 孔板中接种 Madin-Darby 犬肾(MDCK)上皮细胞(4 × 10⁴ 细胞/孔),使用组织培养基培养至约 80–90% 汇合度。将细胞置于 37 °C、5% CO2 的培养箱中。病毒滴定当天,在显微镜下检查细胞,确认形成单层后开始病毒感染。
- 在 96 孔板中用感染培养基对匀浆样品(肺或鼻黏膜)的上清液进行 1:10 系列稀释。每个样品设三个复孔,以准确测定病毒滴度。
- 向 96 孔板的每个孔中加入 90 µL 感染培养基。向 A1、A2 和 A3 孔各加入 10 µL 某一匀浆样品的上清液,以三个复孔测定该样品的病毒滴度。向 A4、A5 和 A6 孔各加入 10 µL 另一匀浆样品的上清液。依此类推,对剩余样品连续进行稀释。
- 向 A 行各孔加样后,使用多通道移液器上下吹吸混匀。从 A 行转移 10 µL 至 B 行。每次稀释后更换吸头并充分混匀。重复此操作直至最后一行(H 行)。
- 使用真空抽吸多通道适配器从 96 孔板中的 MDCK 细胞中移除组织培养基(步骤 4.2.3.1),并用 1× PBS 洗涤两次,每次 100 µL/孔。
- 将匀浆样品上清液的系列稀释液以每孔 50 µL 转移至含 MDCK 细胞的 96 孔板中。从稀释度最高的孔(H 行)开始,依次向稀释度较低的孔(A 行)转移。此步骤无需在不同行之间更换吸头。
- 将 96 孔板置于摇床上,室温孵育 1 小时,使病毒吸附。吸附完成后,使用真空抽吸多通道适配器移除接种物,并向每孔加入 100 µL 感染后培养基。将感染细胞在 33 °C 或 37 °C、5% CO2 的培养箱中孵育 8 小时。随后按照步骤 4.2.3.6–4.2.3.12 所述进行固定、染色、成像及病毒滴度计算。
- 使用真空抽吸多通道适配器从 96 孔板中移除组织培养基。每孔加入 100 µL 固定/通透溶液,在室温下固定和通透细胞 20 分钟。
警告:应在通风橱中使用固定/通透溶液,以防止甲醛暴露。 - 使用真空抽吸多通道适配器移除固定/通透溶液,用 1× PBS 洗涤,然后在室温下用封闭液孵育固定细胞 1 小时。可将细胞在 4 °C 的封闭液中保存,或直接进行下一步操作。
- 移除封闭液。每孔加入 50 µL 用抗体稀释液稀释的 1 µg/mL 单克隆抗体(mAb)抗 NP HB-65。37 °C 孵育 1 小时。也可使用其他抗 PR8 的单克隆抗体或抗 PR8 的多克隆抗体(pAb)。
- 同时,在抗体稀释液中将异硫氰酸荧光素(FITC)标记的二抗(抗小鼠)稀释 1:200。在室温下以 1,700 x g 离心 5–10 分钟。也可使用其他荧光标记的二抗。
- 移除一抗,用 1× PBS 洗涤 3 次,每次 100 µL/孔。每孔加入 50 µL 二抗稀释液,37 °C 孵育 30–45 分钟。移除二抗,用 1× PBS 洗涤 3 次,每次 100 µL/孔。最后一次洗涤后保留洗涤液于孔中。
- 在荧光显微镜下观察细胞,确定阳性染色(绿色)细胞的数量。通过计数 FFU/mL 计算病毒滴度。使用含有 30–50 个阳性染色细胞的稀释度,根据公式:((n1 + n2 + n3) / 3) × 20 × 1/稀释倍数,计算以 FFU/mL 表示的病毒滴度。
- 肺和鼻黏膜的回收
5. 体液免疫应答的评估(图3)
- 用不同剂量(10)分别感染3组6至8周龄雌性C57BL/6小鼠(n = 5)2, 103,和104 每只小鼠接种 PR8 LAIV 病毒剂量为 FFU/小鼠,并设一组(n = 5)以 1×无菌 PBS 进行模拟感染作为阴性对照。按照第3节所述方法进行小鼠经鼻感染操作。
- 小鼠下颌下穿刺采血
- 免疫后14天,使用4 mm采血针通过下颌下出血法采集小鼠血液26,或采用其他经IACUC批准的方法。
- 用食指和拇指捏住小鼠颈背部的皮肤以固定小鼠,同时用小指将尾巴压向手部以固定不动。
- 将小鼠置于侧卧位以显露面颊。在眶后静脉与下颌下静脉汇入颈静脉的交界处进行穿刺。插入4 mm采血针,并用无菌试管收集血液(每只小鼠可采集约0.2–0.4 mL)。用无菌纱布在穿刺部位按压数秒。将小鼠放回笼中。
- 将试管放置 1 - 2 小时于 37 °C 然后在室温下以700 × g离心30分钟,以分离血清与血液。用移液管将含有血清的上层转移至新的无菌管中。弃去红细胞(RBCs)沉淀。将血清储存在-20 °C.
- 免疫后14天,使用4 mm采血针通过下颌下出血法采集小鼠血液26,或采用其他经IACUC批准的方法。
- 小鼠下颌下穿刺采血
- 病毒蛋白总抗体的分析
- 感染MDCK细胞提取物的制备
- 感染前一天,将4 - 5 x 10⁵个细胞接种于一个100 mm培养皿中。6 MDCK 细胞(在组织培养基中培养至次日达到约 80 - 90% 汇合度)。将细胞置于培养箱中 37 °C 含5% CO₂的培养箱2病毒感染当天,在显微镜下检查细胞,以确认形成单层细胞后再开始病毒感染。
- 用感染培养基配制 PR8 WT 病毒液,使其感染复数(MOI)为 0.001,总体积为 4 mL。根据公式(X MOI × n°(细胞数)× 最终体积 / 病毒原液滴度
- 吸弃MDCK细胞培养板中的组织培养液,用4 mL 1×PBS洗涤两次。加入病毒接种物(4 mL),将培养板置于室温下的摇床上孵育1 h,以促进病毒吸附。用真空泵吸除病毒接种物,随后加入8–10 mL含相应成分的感染后培养基 1 µg/mL TPCK处理的胰蛋白酶。将感染的细胞在37°C、5% CO₂培养箱中孵育48 - 72小时。 33 °C 或 37 °C 5% CO₂ 培养箱2.
- 用细胞刮刀刮下细胞,并用移液器将细胞和组织培养基收集至15 mL离心管中。在室温下以400 × g离心5–10分钟。吸去上清液,将细胞沉淀重悬于1 mL RIPA裂解缓冲液中,转移至1.5 mL无菌离心管中。冰上孵育20–30分钟。
- 在 1,300 x g 条件下离心 20 - 30 分钟,温度为 4 °C小心地回收上清液。将细胞裂解物储存于 100 µL -80 °C 分装保存20 °C.
- 按照酶联免疫吸附测定(ELISA)所述方法对细胞提取物进行滴定,然后检测其中是否存在抗体9,10,11,27加入未感染的MDCK细胞提取物(按上述方法制备)作为阴性对照。
- ELISA(酶联免疫吸附测定)图4)
- 用适当稀释度的感染MDCK细胞裂解液(通常为1:200 - 1:1,000)在1x PBS中包被聚苯乙烯96孔板。另设一孔板以相同稀释度的模拟感染MDCK细胞裂解液包被,作为阴性对照。4℃过夜孵育(O/N) 4 °C.
- 使用真空抽滤多通道适配器移除上清液,并用 100 µL/well 用多通道移液器加入1×PBS。通过添加封闭液阻断非特异性结合 100 µL/well 室温下用封闭液孵育1小时。
- 同时,在96孔板中,用抗体稀释液对第5.1步中感染小鼠的血清进行2倍系列稀释(起始稀释度为1:50)。
- 使用真空抽滤多通道适配器从聚苯乙烯96孔板中移除封闭溶液。加入 50 µL 每只小鼠血清稀释液加入相应孔中,37℃孵育1小时 37 °C.
- 用真空抽吸仪-多通道适配器移除小鼠血清。使用多通道移液器用蒸馏水洗涤孔板3次。加入 50 µL/well 辣根过氧化物酶(HRP)标记的抗小鼠二抗,用抗体稀释液按1:2,000稀释后孵育1小时 37 °C.
- 用真空吸液多通道适配器移除二抗。使用多通道移液器用蒸馏水洗涤孔板3次。通过将溶液A与溶液B按1:1比例混合配制四甲基联苯胺(TMB)底物溶液。加入 100 µL/well 底物,室温避光孵育5 - 10分钟。
- 通过添加终止反应 100 µL/well 0.2 N H2SO4在酶标仪上于450 nm处读取吸光度。
- 从MDCK感染的96孔板中各稀释度测得的值中减去MDCK模拟感染的96孔板中相应稀释度测得的值。计算不同血清在各稀释度下的平均值,并以标准差(SD)表示,绘制成图。
- 感染MDCK细胞提取物的制备
- 中和抗体分析
- 血凝抑制(HAI)试验(图5)
- 在进行血凝抑制(HAI)试验前,需用受体破坏酶(RDE)处理小鼠血清,以去除血清中存在的所有非特异性抑制物。将1体积的小鼠血清加入4体积的RDE工作液中(此时血清稀释度为1:5),于37 °C孵育过夜(12–18 h)。 37 °C 水浴锅
- 将血清样品加热至 56 °C 孵育30分钟以灭活RDE。
- 通过标准血凝活性(HAU)检测预先确定PR8 WT的血凝集活性28. 确定病毒血凝单位(HAU)后,将病毒原液稀释至每8 HAU为一单位 50 µL 在1x PBS中。
- 在96孔V型底板中,对经RDE处理的血清进行2倍系列稀释(共12个稀释度)。每份血清样本使用一整行例如,A1 至 A12。
- 添加 25 µL 从 A1 到 A12 孔加入 1x PBS。每行用于检测一个血清样本。添加 25 µL RDE处理血清(1:5)的 25 µL 在A1孔中加入1x PBS。第一份血清稀释度为1:10。
- 当所有经RDE处理的血清均加入第一列后,(例如,A1,B1,C1),使用多通道移液器通过上下吹吸混合血清与1×PBS。转移 25 µL 将第一列稀释后的血清移至第二列(例如,从 A1 到 A2)。每次稀释之间更换枪头并混匀。
- 重复步骤 5.3.1.4.2,直至到达最后一列(例如,A12,B12,C12)。弃去 25 µL 从最后一列开始,保持所有孔中的体积一致(25 µL)。包含一排仅含有 25 µL 不含任何血清的1×PBS作为阴性对照。
- 添加 25 µL 8 HAU/的 IAV 稀释液50 µL 向96孔V型底板中含血清的各孔分别加入;每孔终体积为 50 µL,含4 HAU病毒。用移液器反复吹打混匀。在室温下孵育1小时。
- 添加 50 µL 加入0.5%火鸡红细胞至各孔中,通过反复吹打混匀孔内液体。将培养板置于冰上孵育30至45分钟。当对照孔(1×PBS)中的红细胞形成红色沉淀时,肉眼观察血凝抑制(HAI)试验结果即,沉淀物位于孔底。
注意:也可使用其他物种(如鸡、豚鼠或马)的红细胞。 - 通过确定红细胞形成红色沉淀且未发生血凝的最后一个孔来计算 HAI 滴度。
注意:该稀释度的倒数即为血凝抑制(HAI)滴度。该倒数需乘以20的校正因子,以校正第一排血清的1:20稀释。
- 病毒微量中和试验(VNA)(图6)
- VNA 前一天,按照步骤 5.2.1.1 所述,在 96 孔板中接种 MDCK 细胞,使其于次日达到 80–90% 汇合度。用感染培养基配制 PR8 WT 的稀释液,使每毫升含 200 FFU25 µL.
- 灭活小鼠血清 56 °C 孵育1小时。使用96孔板,对每只小鼠血清进行3次重复的2倍系列稀释(共12个稀释度)。
- 添加 40 µL 血清的 160 µL 第一行第一孔中感染培养基的量,(例如,A1)(血清稀释度1:5)。用移液器吹打混匀。加入 100 µL 感染培养基加入其余各孔(A2至H12)。
- 转移 100 µL 从第一行到第二行进行1:2稀释(例如,从 A1 到 A2)。每次稀释时更换吸头,并通过移液混匀。重复此操作直至最后一行(例如,A12)。弃去 100 µL 从最后一行开始,保持所有孔中的体积一致(100 µL).
- 添加 100 µL 加入IAV稀释液至所有孔中,室温孵育1小时。在此期间,使用真空抽吸多通道适配器从96孔板的MDCK细胞中移除组织培养基,并用PBS洗涤两次 100 µL/well 1× PBS 溶液
- 在每块含 MDCK 细胞的 96 孔板中,预留两行用于对照。其中一行为阴性对照(不含病毒和血清的细胞),另一行为感染的阳性对照(仅含病毒而无血清,或含来自模拟感染小鼠的血清的细胞)。
- 转移 50 µL/well 从病毒-抗体板转移至 MDCK 细胞的 96 孔板。将板置于室温下摇床上孵育 1 小时,以促进病毒吸附。
- 使用真空抽滤器-多通道适配器移除病毒-抗体接种液,并加入 100 µL/well 含感染后培养基的 1 µg/mL 经TPCK处理的胰蛋白酶
- 将细胞孵育约 3 - 4 天 33 °C 或 37 °C 5% CO₂ 培养箱2 直到阳性对照(未加血清或加入对照血清的感染细胞)中观察到细胞病变效应(CPE)。
- 使用真空抽吸器-多通道适配器移除组织培养基,并添加 100 µL/well 0.1% 结晶紫溶液中,室温孵育1小时。使用真空抽滤多通道适配器移除结晶紫溶液。用蒸馏水洗涤各孔3次。于室温下干燥培养板。
- 通过确定仍能保持MDCK细胞单层融合生长的最高稀释度来计算VNA滴度。
注意:该对应稀释度的倒数即为中和抗体滴度。将该倒数乘以10的校正因子,以校正血清在每行第一孔中1:10的稀释度。
- 血凝抑制(HAI)试验(图5)
6. 疫苗保护效力的评估(图3)
- 用待测剂量的 PR8 LAIV(FFU/小鼠)对一组 6 至 8 周龄雌性 C57BL/6 小鼠(n = 11)进行鼻内免疫接种,并用 1×无菌 PBS 对另一组小鼠(n = 11)进行模拟免疫接种。小鼠鼻内免疫接种操作按第 3 节所述方法进行。
- 免疫接种后第 14 天,按第 3 节所述方法采集小鼠血液并收集血清。按第 5.1.1 节所述方法分析血清中针对 PR8 野生型病毒的总抗体和中和抗体的存在情况。
- 免疫接种后第 15 天,测量并记录小鼠体重(第 0 天)。随后按第 3 节所述方法,以致死剂量的 PR8 野生型病毒(同源攻击)对小鼠进行鼻内攻击。
- 攻击后连续 14 天监测小鼠体重变化和存活情况(每组 n = 5),以评估 PR8 野生型病毒攻击在免疫小鼠中引起的发病和死亡情况(第 4.1 节)。
- 在 PR8 野生型病毒攻击后第 2 天和第 4 天,分别采集小鼠肺组织和鼻黏膜组织(每天 n = 3)。按第 4.2 节所述方法进行组织匀浆并分析,以评估 PR8 野生型病毒在免疫小鼠体内的复制情况。
访问受限。请登录或开始试用以查看此内容。
结果
小鼠中病毒致病机制的表征
流感病毒(IAV)的致病机制与其感染所导致的发病率和死亡率相关。这两个参数可在小鼠中轻松评估:IAV感染小鼠的体重下降程度反映其发病率,而存活率百分比则指示死亡率(图1)。通常在感染后至少两周内每日监测IAV感染小鼠的体重变化和存活情况8,9,10,29。所获得的存活数据可用于确定采用Reed和Muench法计算的半数致死剂量(MLD50)25。IAV致病性的另一项指标涉及病毒在下呼吸道(肺)和上呼吸道(鼻黏膜)的复制情况(
访问受限。请登录或开始试用以查看此内容。
讨论
IAV 的小鼠模型被广泛用于 IAV 致病性、免疫原性和保护效力的 体内 研究。与其他动物模型(如雪貂或豚鼠)相比,小鼠体型小,易于操作和饲养。此外,由于其动物成本低、饲养方便且繁殖能力强,适合用于需要大量动物的临床前疫苗试验。值得注意的是,由于小鼠已被广泛应用于多个研究领域,目前已有多样化的分子与免疫学小鼠试剂可供使用,从而促进其在 IAV 研究中的应用。此外,小鼠宿主变异程度低,且其免疫系统在进化上与人类免疫系统具有相似性,使其成为研究 IAV 的可靠小型动物模型。最后,通过使用基因敲除(KO)小鼠,目前可实现对宿主-病毒蛋白相互作用及其在病毒致病过程中作用的研究。然而,尽管小鼠在 IAV 研究中具有多种优势,却不适用于 IAV 传播研究。因此,雪貂或豚鼠是研究 IAV 传播更为合适的动物模型。感染 IAV 的小鼠通常在感染后 2 至 3 天出现临床症状,但具体时间可能因小鼠年龄、免疫状态、性别、遗传背景和品系,以及所用病毒株和剂量的不同而有所差异。症状包括厌食、嗜睡、蜷缩、毛发竖立、体重下降和死亡16,17<...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
LM-S 实验室的流感病毒研究部分由纽约流感卓越中心(NYICE)资助,该中心是美国国家过敏与传染病研究所流感研究与监测卓越中心(CEIRS)的成员。我们感谢 Wendy Bates 在稿件修改过程中提供的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Madin-Darby 犬肾(MDCK)上皮细胞 | ATCC | CCL-34 | |
| 6至8周龄雌性C57BL/6小鼠 | 美国国家癌症研究所(NCI) | 01XBE | |
| 火鸡红细胞 | Biolink 公司 | 4°C 保存 °C | |
| 杜尔贝科’s 改良的 Eagle’DMEM培养基 | Corning Cellgro | 15-013-CV | 4°C 保存 °C |
| 胎牛血清(FBS) | Seradigm | 1500-050 | 储存于 -20 °C |
| 青霉素/链霉素/L-谷氨酰胺(PSG)100倍浓缩液 | 康宁 | 30-009-CI | -20℃保存 °C |
| 青霉素/链霉素(PS)100倍浓缩液 | 康宁 | 30-00-CI | -20℃保存 °C |
| 牛血清白蛋白溶液(BA) | Sigma-Aldrich | A7409 | 4°C 下保存 °C |
| 牛血清白蛋白(BSA) | Sigma-Aldrich | A9647 | 4°C 保存 °C |
| 经甲苯磺酰苯丙氨酰氯甲基酮(TPCK)处理的胰蛋白酶 | Sigma-Aldrich | T8802 | -20℃保存 °C |
| 10% 中性缓冲福尔马林 | EMD | 65346-85 | 室温保存 |
| Triton X-100 | J.T.Baker | X198-07 | 室温保存 |
| 单克隆抗体抗甲型流感病毒NP HB-65 | ATTC | H16-L10-4R5 | -20℃保存 °C |
| 多克隆兔抗小鼠免疫球蛋白/FITC | Dako | F0261 | 4°C 下保存 °C |
| ECL 抗小鼠 IgG,辣根过氧化物酶标记的完整抗体 | GE Healthcare | LNA931V/AG | 4°C 保存 °C |
| TMB底物试剂盒 | BioLegend | 421101 | 4°C 下保存 °C |
| Vmax 动力学酶标仪 | Molecular Devices | ||
| 邓斯组织研磨器 | Thomas Scientific | 7722-7 | |
| 受体破坏酶,RDE(II) | Denka Seiken Co. | 370013 | -20℃保存 °C |
| 结晶紫 | Fisher Scientific | C581-100 | 室温保存 |
| 96孔细胞培养板 | Greiner Bio-one | 655-180 | |
| 100 mm 细胞培养皿 | Greiner Bio-one | 664-160 | |
| Nunc MicroWell 96孔微孔板 | 赛默飞世尔科技 | 269620 | |
| Nunc 96孔聚苯乙烯锥底微孔板 | 赛默飞世尔科技 | 249570 | |
| Puralub Vet 软膏 | 德克拉 | 9N-76855 | |
| 荧光显微镜 | Olympus | 奥林巴斯 IX81 |
参考文献
- Girard, M. P., Cherian, T., Pervikov, Y., Kieny, M. P. A review of vaccine research and development: human acute respiratory infections. Vaccine. 23 (50), 5708-5724 (2005).
- Arnold, S., Monto, M. D. Epidemiology and Virology of Influenza Illness. Am J Manag Care. 6, Suppl 5. 255-264 (2000).
- Palese, P., Shaw, M. L. Orthomyxoviridae: The Viruses and Their Replication. Fields Virology. Knipe, D. M., Howley, P. M., Griffin, D. E., Lamb, R. A., Martin, M. A. , 5th ed, Lippincott Williams and Wilkins. (2007).
- Li, K. S., et al. Genesis of a highly pathogenic and potentially pandemic H5N1 influenza virus in eastern Asia. Nature. 430 (6996), 209-213 (2004).
- Nogales, A., Martinez-Sobrido, L. Reverse Genetics Approaches for the Development of Influenza Vaccines. Int J Mol Sci. 18 (20), (2017).
- Kunisaki, K. M., Janoff, E. N. Influenza in immunosuppressed populations: a review of infection frequency, morbidity, mortality, and vaccine responses. Lancet Infect Dis. 9 (8), 493-504 (2009).
- Belshe, R. B. Live attenuated versus inactivated influenza vaccine in infants and young children. N Engl J Med. 356 (7), 685-696 (2007).
- Cox, A., Baker, S. F., Nogales, A., Martinez-Sobrido, L., Dewhurst, S. Development of a mouse-adapted live attenuated influenza virus that permits in vivo analysis of enhancements to the safety of live attenuated influenza virus vaccine. J Virol. 89 (6), 3421-3426 (2015).
- Nogales, A., et al. Influenza A Virus Attenuation by Codon Deoptimization of the NS Gene for Vaccine Development. J Virol. 88 (18), 10525-10540 (2014).
- Nogales, A., DeDiego, M. L., Topham, D. J., Martinez-Sobrido, L. Rearrangement of Influenza Virus Spliced Segments for the Development of Live-Attenuated Vaccines. J Virol. 90 (14), 6291-6302 (2016).
- Nogales, A., Huang, K., Chauché, C., DeDiego, M. L., Murcia, P. R., Parrish, C. R., Martínez-Sobrido, L. Canine influenza viruses with modified NS1 proteins for the development of live-attenuated vaccines. Virology. 500 (2017), 1-10 (2016).
- Garcia-Sastre, A., et al. Influenza A virus lacking the NS1 gene replicates in interferon-deficient systems. Virology. 252 (2), 324-330 (1998).
- Lowen, A. C. Blocking interhost transmission of influenza virus by vaccination in the guinea pig model. J Virol. 83 (7), 2803-2818 (2009).
- Mubareka, S. Transmission of influenza virus via aerosols and fomites in the guinea pig model. J Infect Dis. 199 (6), 858-865 (2009).
- Nogales, A., Baker, S. F., Martinez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. 476C, 206-216 (2014).
- Margine, I., Krammer, F. Animal Models for Influenza Viruses: Implications for Universal Vaccine Development. Pathogens. 3 (4), 845-874 (2014).
- Bouvier, N., Lowen, A. C. Animal Models for Influenza Virus Pathogenesis and Transmission. Viruses. 2 (8), 1530-1563 (2010).
- Pica, N., Iyer, A., Ramos, I., Bouvier, N. M., Fernandez-Sesma, A., García-Sastre, A., Lowen, A. C., Palese, P., Steel, J. The DBA.2 mouse is susceptible to disease following infection with a broad, but limited, range of influenza A and B viruses. J Virol. 85 (23), 12825-12829 (2011).
- Watanabe, H., Numata, K., Ito, T., Takagi, K., Matsukawa, A. Innate immune response in Th1- and Th2-dominant mouse strains. Shock. 22 (5), 460-466 (2004).
- Srivastava, B., Blazejewska, P., Hessmann, M., Bruder, D., Geffers, R., Mauel, S., Gruber, A. D., Schughart, K. Host genetic background strongly influences the response to influenza a virus infections. PLoS One. 4 (3), e4857(2009).
- Lowen, A. C., Bouvier, N. M., Steel, J. Transmission in the Guinea Pig Model. Curr Top Microbiol Immunol. 385, 157-183 (2014).
- Schickli, J. H. Plasmid-only rescue of influenza A virus vaccine candidates. Philos Trans R Soc Lond B Biol Sci. 356 (1416), 1965-1973 (2001).
- Martinez-Sobrido, L., Garcia-Sastre, A. Generation of recombinant influenza virus from plasmid DNA. J Vis Exp. (42), (2010).
- National Research Council (U.S.) Committee for the Update of the Guide for the Care and Use of Laboratory Animals., Institute for Laboratory Animal Research (U.S.). Guide for the care and use of laboratory animals. , 8th ed, National Academies Press (U.S.). (2011).
- Reed, L. J., Muench, H. A simple method of estimating fifty percent endpoints. The American Journal of Hygiene. 27 (3), 493-497 (1938).
- Golde, W. T., Gollobin, P., Rodriguez, L. L. A rapid, simple, and humane method for submandibular bleeding of mice using a lancet. Lab Animal. 34 (9), 39-43 (2005).
- Nogales, A. A temperature sensitive live-attenuated canine influenza virus H3N8 vaccine. J Virol. , (2016).
- Eisfeld, A. J., Neumann, G., Kawaoka, Y. Influenza A virus isolation, culture and identification. Nat Protoc. 9 (11), 2663-2681 (2014).
- Guo, H., Baker, S. F., Martinez-Sobrido, L., Topham, D. J. Induction of CD8 T cell heterologous protection by a single dose of single-cycle infectious influenza virus. J Virol. 88, 12006-12016 (2014).
- CDC: Centers for Disease Control and Prevention. Antigenic Characterization. , Available from: http://www.cdc.gov/flu/professionals/laboratory/antigenic.htm (2017).
- He, W., Mullarkey, C. E., Miller, M. S. Measuring the neutralization potency of influenza A virus hemagglutinin stalk/stem-binding antibodies in polyclonal preparations by microneutralization assay. Methods. , (2015).
- Gulati, U. Antibody epitopes on the neuraminidase of a recent H3N2 influenza virus (A/Memphis/31/98). J Virol. 76 (23), 12274-12280 (2002).
- Beare, A. S., Webster, R. G. Replication of avian influenza viruses in humans. Arch Virol. 119, 37-42 (1991).
- Rowe, T. Detection of antibody to avian influenza A (H5N1) virus in human serum by using a combination of serologic assays. J Clin Microbiol. 37 (4), 937-943 (1999).
- Stephenson, I., Wood, J. M., Nicholson, K. G., Zambon, M. C. Sialic acid receptor specificity on erythrocytes affects detection of antibody to avian influenza haemagglutinin. J Med Virol. 70 (3), 391-398 (2003).
访问受限。请登录或开始试用以查看此内容。
重印与许可
