本文描述了将肽微阵列技术应用于识别组蛋白及其翻译后修饰的抗体特异性分析的方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
组蛋白蛋白的翻译后修饰(PTMs)因其在调控染色质结构和基因表达中的作用而被广泛研究。针对组蛋白PTMs的抗体的大规模生产和分发极大地推动了这些修饰标记的研究。由于组蛋白PTM抗体是许多染色质生物化学应用中的关键试剂,因此对抗体特异性的严格分析对于准确解读数据以及该领域的持续进展至关重要。本实验方案描述了一套整合的流程,用于设计、制备和使用肽段微阵列,以分析组蛋白抗体的特异性。该流程中的设计与分析部分由ArrayNinja软件辅助完成,ArrayNinja是我们近期开发的一种开源、交互式软件工具包,旨在简化微阵列打印格式的定制化操作。该流程已被用于筛选大量市售且广泛使用的组蛋白PTM抗体,相关实验产生的数据可通过一个在线、持续更新的组蛋白抗体特异性数据库免费获取。除组蛋白外,本文所述的通用方法还可广泛应用于其他翻译后修饰特异性抗体的分析。
引言
基因组DNA在真核细胞核内与组蛋白结合,以一种精巧的方式包装形成染色质。染色质的基本重复单位是核小体,由147个碱基对的DNA缠绕在组蛋白八聚体核心(包括H2A、H2B、H3和H4)上构成1。染色质总体上可分为松散包装的常染色质和紧密包装的异染色质区域。染色质压缩程度决定了蛋白质机器对底层DNA的可及性,从而调控DNA复制、转录和修复等以DNA为模板的基本生物学过程的进行。
染色质背景下基因组可及性的关键调控因子是组蛋白蛋白非结构化尾部和核心结构域上的翻译后修饰2,3组蛋白翻译后修饰通过影响染色质结构而直接发挥作用4 并通过招募具有染色质重塑、酶活性和支架功能的阅读蛋白及其相关大分子复合物间接实现5过去二十年对组蛋白PTM功能的研究 overwhelmingly 表明,这些修饰在调控细胞命运、生物体发育以及疾病发生/进展中发挥关键作用。得益于基于质谱的蛋白质组学技术的进步,目前已发现超过80个不同的组蛋白残基上存在20多种独特的组蛋白PTM6值得注意的是,这些修饰通常以组合形式发生,且与之相符的 "组蛋白密码" 假设,大量研究表明,阅读蛋白通过识别组蛋白PTM的特定组合而被靶向至染色质的特定区域7,8,9未来面临的一个关键挑战将是为组蛋白翻译后修饰(PTMs)不断增长的列表分配功能,并确定特定组蛋白PTMs组合如何协调与染色质相关的动态功能。
抗体是检测组蛋白翻译后修饰(PTM)的关键试剂。因此,已有超过1,000种针对组蛋白PTM的特异性抗体被商业化开发,广泛应用于染色质生物化学研究。随着高通量DNA测序技术的快速发展,这些试剂被个体研究者以及大规模表观基因组学“路线图”计划(e.g.,ENCODE和BLUEPRINT)广泛用于ChIP-seq(染色质免疫沉淀联合下一代测序)流程中,以生成全基因组范围内组蛋白PTM分布的高分辨率空间图谱10,11。然而,近期研究表明,组蛋白PTM抗体的特异性差异较大,这些试剂常表现出不利特性,例如对非靶向表位的识别、邻近PTM的强烈正负干扰,以及难以区分特定残基上修饰的程度(e.g.,单、双或三甲基化赖氨酸)12,13,14,15,16,17,18。因此,对组蛋白PTM特异性抗体试剂进行严格的质控,对于准确解读这些宝贵试剂所产生的数据至关重要。
微阵列技术能够在高通量、可重复且微型化的体系中同时检测数千种大分子间的相互作用。因此,已开发出多种微阵列平台,用于分析蛋白质-DNA19,20、蛋白质-蛋白质21以及蛋白质-肽段相互作用22。其中,组蛋白肽段微阵列已成为染色质生物化学研究中一种具有重要信息价值的发现工具,可用于高通量分析组蛋白翻译后修饰的“书写者”、“擦除者”和“阅读者”15,23,24,也可用于评估组蛋白抗体的特异性17,25。除了在染色质和表观遗传学研究中的应用外,组蛋白肽阵列在系统性红斑狼疮及其他产生抗染色质自身抗体的自身免疫性疾病的诊断和预后检测方面也具有潜在应用价值26,27。
本文介绍了一种我们开发的整合性流程,用于设计、制备和检测组蛋白肽微阵列,以生成识别组蛋白及其翻译后修饰(PTMs)的抗体的特异性谱型。该流程得益于我们近期开发的开源交互式软件工具ArrayNinja,该工具整合了微阵列实验的设计与分析环节28。ArrayNinja在Google Chrome浏览器中运行效果最佳。简而言之,采用机器人接触式微阵列点样仪,将一系列生物素标记的组蛋白肽按预定位置点样于链霉亲和素包被的玻璃载玻片上。随后,这些微阵列可用于竞争性和平行检测模式,以研究抗体与表位之间的相互作用(图1)。该肽库包含数百种独特的合成肽,单独或以相关组合形式携带多种翻译后修饰(包括赖氨酸乙酰化、赖氨酸/精氨酸甲基化以及丝氨酸/苏氨酸磷酸化),其设计主要基于蛋白质组学数据集。肽的合成与验证方法在其他文献中有详细描述23。利用该微阵列平台开展的组蛋白PTM抗体筛选工作所产生的数据,已归档于公共网络资源“组蛋白抗体特异性数据库”(www.histoneantibodies.com)。值得注意的是,采用本方案变体所制备的组蛋白肽微阵列已被广泛用于表征组蛋白PTM识别结构域的活性8,29,30,31,32,33,34,35,36,37,近期还被用于分析组蛋白PTM书写酶和擦除酶的活性24。

图1:组蛋白肽微阵列上抗体筛选逐步操作的示意图。 带有特定翻译后修饰(红色和蓝色圆圈)的生物素化组蛋白肽与生物素-荧光素共同点样于链霉亲和素包被的玻片上。阳性相互作用以红色荧光显示。 请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 安装和运行 ArrayNinja
- 从 www.virtualbox.org 下载并安装 Oracle Virtual Box。
- 从 http://research.vai.org/Tools/arrayninja 下载并解压 ArrayNinja 虚拟机(VM)。
- 打开 Virtual Box,点击“机器”,“添加”,然后从保存 ArrayNinja 虚拟机的文件夹中选择 arrayninja.vbox,以添加 ArrayNinja 虚拟机。
- 在 Virtual Box 中选择 ArrayNinja,然后点击绿色的“启动”箭头以启动程序。
- Virtual Box 将打开一个新窗口,并显示一条消息,提示可通过在浏览器中导航至 localhost:2080 来访问虚拟机。 注意:ArrayNinja 还提供容器化版本 通过 hub.docker.com/r/bradley.dickson/arrayninja/
2. 设计芯片载片和源板布局
- 在 ArrayNinja 界面的“规划载片布局”标题下,点击与所用微阵列打印机相对应的链接。
注意:ArrayNinja 已被编程以模拟两种常用微阵列打印机的机器人运动(见表 1)。可根据要求配置与其他阵列仪的兼容性。 - 点击“加载板”对话框内部,输入“empty”,然后点击“enter”。图 2 显示了 ArrayNinja 设计模块的截图。
- 将点样直径调整为 275 µm,点样间距调整为 375 µm。调整其余设置(板区块/板行、总板行数、重复次数、y 方向特征数、超级阵列、SuperA fudge;参见图 2),以自定义特征在微阵列载片上的排列方式。
注意:点样直径由微阵列针的尺寸决定。当这些设置被调整时,示意图载片将实时更新。请使用该示意图预览每个设置如何影响最终的载片布局。 - 在载片上的特征布局确定后,将鼠标悬停于每个独特特征上,并在弹出的对话框中输入特征标识符。
注意:特征标识符可由数字、字母或其组合构成。此操作仅针对独特特征必需;当选择重复特征时,不会出现对话框。 - 在所有独特特征均被分配标识符后,点击“填充”。输入载片布局的名称,然后点击“打印您的板”以保存。新页面将打开,显示制造所选载片设计所需的 384 孔源板数量,以及将每个特征映射到源板中物理位置的表格。
注意:请记住此名称,因为在分析微阵列数据时将使用该名称调用此设计(见第 6.2 节)。点击“打印您的板”会将该布局保存在 ArrayNinja 中。

图2:ArrayNinja 设计模块。 虚线框内显示的是 ArrayNinja 设计模块的截图。控制面板(顶部)展示了可在微阵列打印机上调整的所有参数。随着这些参数的调整,载玻片布局的示意图(左下)会实时更新。布局设定完成后,用户可将鼠标悬停在各个点位上,以输入唯一的特征标识符。ArrayNinja 根据用户的输入,生成所需源板(右下)中每个特征位置的对应图谱,用于制备指定的微阵列载玻片布局。请点击此处查看该图的放大版本。
3. 制备微阵列
- 准备源板
- 使用第2.5节中通过ArrayNinja生成的图谱来制备384孔源板。
注意:该平台上所查询肽段的详细描述可参见其他文献17. - 沉积 1 - 2 µL 每项特征例如,将生物素化组蛋白肽)加入384孔源板的正确孔中。
注意:生物素标记的组蛋白肽通常从 200 - 400 µM 储存溶液,相当于单个阵列点中肽相对于链霉亲和素结合位点的10至25倍摩尔过量。该值通过以下公式计算:
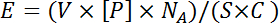
其中 V 是移液针所传递的体积,[P] 是待打印特征的浓度, NA 是阿伏伽德罗常数,且 S 是一个斑点的表面积。 C 即载玻片的覆盖度,表示为每单位面积的链霉亲和素分子数乘以三(链霉亲和素结合位点的平均数量)。 V 和 C 由相应制造商提供。其他特征可能需要根据生物大分子的大小调整不同浓度,以避免拥挤效应带来的影响。每种新类型特征的打印浓度应通过实验测试一系列浓度,以确定最佳打印浓度。 - 将每种组分用含有1%牛血清白蛋白(BSA)的1×打印缓冲液稀释10倍。在室温下,以500 × g离心源板1至2分钟。
注意:需加入荧光素标记的生物素(fluorescein-labeled biotin)5 µg/µL) 建议在打印缓冲液中加入点样对照,作为视觉辅助,以便在分析过程中实现正确的芯片阵列对齐(参见 图4).
- 使用第2.5节中通过ArrayNinja生成的图谱来制备384孔源板。
- 打印方案(图3A – B).
- 清空废液收集容器,并向清洗液容器和加湿器容器中加入无菌蒸馏水,以准备阵列仪。
- 输入在 ArrayNinja 中设计载玻片所用的参数(第 2 节和 图2) 导入微阵列打印机控制程序。
- 使用微阵列打印机控制程序,将清洗程序设置为浸入式清洗1次,每次清洗持续1秒。设置清洗后步骤:每次清洗后针头重新浸入5次。将湿度设置为60%。
注意:最佳洗涤配置可能因所使用的微阵列打印机而异。最佳的洗涤后点样针浸润配置可能因所使用的微阵列打印机而异。 - 插入功能化载玻片(例如,链霉亲和素包被的玻片)插入底物压板中,并将所有压板放入压板升降器内。将源板插入板架中,并置于源板升降器内。
- 单击“打印”。监控打印过程数个特征沉积循环,以确保所有清洗和浸入设置均正确。打印完成后,从点样仪上取下基底板。
注意:当大批量打印导致无法在一天内完成封闭步骤时,打印好的载玻片可置于湿盒中孵育 4 °C 过夜。将载玻片置于一个密封的纸箱内,旁边放置盛有水的小烧杯,并用塑料膜密封纸箱。 - 用封闭缓冲液在室温下振荡孵育30分钟以封闭载玻片。
- 在室温下,用磷酸盐缓冲液(PBS,pH 7.6)振荡洗涤载玻片,每次10分钟,共洗两次。将载玻片置于微阵列载玻片离心机中,室温离心30秒以干燥。
注意:若需同时处理大量载玻片,可使用高通量显微镜载玻片清洗槽,可平行清洗多达50张载玻片。 - 对于设计为使用石蜡分隔的载玻片,进入第4.1节。对于所有其他设计,将载玻片保存于 4 °C 避光防潮。
注意:以这种方式储存时,打印的生物素化组蛋白肽至少可保持6个月的稳定性。
4. 芯片分区分隔
- 疏水性蜡笔(图3C)
- 使用蜡笔在含有特征区域的周围涂抹蜡。涂抹后静置空气中干燥5分钟,然后进入第5节操作。
注意:封闭后,阵列点可能肉眼极难观察。可按实际比例打印ArrayNinja提供的载玻片设计图,作为涂抹蜡时的参考指南。
- 使用蜡笔在含有特征区域的周围涂抹蜡。涂抹后静置空气中干燥5分钟,然后进入第5节操作。
- 硅胶垫圈(图3D)
- 将阵列垫圈背面的透明保护膜撕下,使粘性面朝下贴附到微阵列载玻片上。
- 固定垫圈位置,保持5秒,然后进入第5节操作。
- 蜡印模(图3E)
- 对于设计为蜡分隔的载玻片,可先在普通玻片上用10% BSA打印测试片。使用该测试片优化蜡印模引导装置或阵列设置,确保所有特征均位于蜡模腔体内。
- 将微阵列蜡印模加热至85 °C,直至所有蜡完全熔化,约需30分钟。
- 将打印面朝下的载玻片插入印模中,并将其完全推至微阵列印模右侧导轨位置。抬起手柄,使模具与载玻片表面接触,保持2秒。
注意:可通过调整保持时间以获得最佳的蜡边厚度。 - 迅速取出载玻片,目视检查蜡边,确保所有孔室均被封闭,且蜡边厚度适中,不侵占点样区域。将载玻片置于4 °C环境中,避光防潮保存。
注意:可通过增加或减少保持时间来获得更厚或更薄的蜡边。

图3:微阵列制备。 (A) 在链霉亲和素包被的显微镜载玻片上使用接触式微阵列打印机制造组蛋白肽微阵列 (B) 采用包含3个亚阵列的48 × 48肽段特征网格制备的微阵列。分离 (C) 用疏水性蜡笔划出3个微阵列区域, (D) 2个子阵列,使用硅胶粘合剂;(E) 48个子阵列,采用石蜡压印。所示所有微阵列均使用25 × 75 mm显微镜载玻片制备。 请点击此处以查看此图的放大版本。
5. 组蛋白PTM抗体与肽微阵列的杂交
- 配制杂交缓冲液(PBS,pH 7.6,5% BSA,0.1% Tween-20)。
- 使用杂交容器将载玻片在杂交缓冲液中平衡。用杂交缓冲液完全覆盖整个载玻片,并在4 °C、低速振荡条件下孵育30分钟。
- 在杂交缓冲液中配制稀释的组蛋白PTM抗体溶液。
注意:在示例数据中,组蛋白抗体#1和抗体#2均以1:1,000的比例稀释于杂交缓冲液中。建议以与免疫印迹实验相似的稀释范围作为起始点。 - 将芯片与抗体溶液在4 °C孵育1小时。移除抗体溶液后,用冷的PBS(pH 7.6)在4 °C下洗涤芯片3次,每次5分钟。
- 在杂交缓冲液中配制1:5,000至1:10,000稀释度的荧光染料标记的二抗溶液。
- 将芯片与二抗溶液在4 °C避光孵育30分钟。移除二抗溶液后,用PBS(pH 7.6)在4 °C下洗涤芯片3次,每次5分钟。将芯片浸入含有0.1x PBS(pH 7.6)的50 mL锥形管中,在室温下去除多余盐分。在室温下使用芯片离心机干燥载玻片。
- 按照芯片扫描仪制造商推荐的扫描程序,以25 µm或更高的分辨率对载玻片进行扫描。
注意:如果存在荧光素标记的生物素示踪剂,应同时扫描绿色通道(激发:488 nm,发射:509 nm)和对应于荧光染料标记二抗的通道(通常为红色通道,激发:635 nm,发射:677 nm)。扫描的目的是获得可合并为单个.png文件的单通道.tif文件(如第6.1节所述)。
使用 ArrayNinja 分析微阵列数据
- 制备合并的微阵列图像
注意:本节的目的是生成一个将两个单通道 .tif 文件(来自第 5 节)合并的 .png 图像文件。这是唯一与 ArrayNinja 分析模块兼容的图像格式。以下说明仅为获取合并图像文件的一种可行方法,但也可采用其他方案(例如,免费软件 ImageJ)。- 在安装了免费软件 ImageMagick 的计算机上,通过 bash 终端的命令行进入包含单通道 .tif 文件的文件夹,然后逐条复制并粘贴以下步骤,每一步之间按“回车”键执行(6.1.4 - 6.1.7)。
注意:大写字母的文件名(例如,RED_CHANNEL)应替换为微阵列玻片图像的文件名。 - 如有需要,首先使用命令“convert INPUT.tif -negate OUTPUT.tif”对图像进行反相。当扫描仪将.tif文件保存为信号为白色、背景为黑色时,此步骤是必需的。
- convert -depth 16 RED_CHANNEL.TIF -clone 0 -channel GB -evaluate set 0 -delete 0 out.png 2>错误文件。
- convert -depth 16 CONTROL_CHANNEL.TIF -clone 0 -channel RB -evaluate set 0 -delete 0 outa.png 2>错误文件。
- convert -depth 16 CONTROL_CHANNEL.TIF -clone 0 -channel RG -evaluate set 0 -delete 0 outB.png 2>错误文件。
- convert out.png outa.png outB.png -set colorspace RGV -combine merged.png
注意:一个名为“merged.png”的文件将被保存在与原始 .tif 文件相同的文件夹中。
- 在安装了免费软件 ImageMagick 的计算机上,通过 bash 终端的命令行进入包含单通道 .tif 文件的文件夹,然后逐条复制并粘贴以下步骤,每一步之间按“回车”键执行(6.1.4 - 6.1.7)。
- 使用 ArrayNinja 定量分析数据
- 打开 ArrayNinja,点击相应的微阵列打印机链接 "用于量化已知来源培养板的图像。" 输入已保存的幻灯片设计名称(步骤 2.5) "加载样品板" 对话框并点击“enter”。参见 图4 有关 ArrayNinja 分析模块的截图。
- 单击“选择文件”,浏览并选择在 6.1 节中创建的“merged.png”文件。合并后的图像将被加载,同时显示幻灯片布局的网格。
- 使用 ArrayNinja 控制面板底部的滑块来调节对比度、亮度和中点。
注意:这些调整仅用于可视化目的,不会影响定量结果。 - 选择 "分辨率" 并输入与扫描图像分辨率相匹配的数值。使用 "边缘侧" 和 "页边距 顶部" 将网格移动至与阵列上的点对齐。根据需要进行调整,使网格尽可能与每个点精确对齐。
- 单击“Spot Seek”,等待按钮恢复为原始的灰色。
注意:可重复此步骤多次,以将网格圆圈对准各个位点。使用“查找”功能可使网格向每个位点微调,从而优化对齐。 - 更换 "超级阵列" 值 "1" 如有需要,可分别处理每个子阵列面板。如果使用 4 x 12 蜡印切片布局(图3E),使用 "iPin" "jPin" 和 "subA" 对照组可用于关闭功能,以分析任意选定的 4 x 12 孔组合。例如,若要将左上角和右上角的孔作为彼此的重复进行分析,请输入 "1 4" 插入 iPin, "1 1" 到 jPin 和 "1 4" 进入 subA。按“回车”键。
- 将鼠标悬停在各个斑点上,以查看该特征的身份信息。
- 单击“切换缩放”以更仔细地查看特征。将鼠标悬停在背景参考点上,然后按“R”键以选择参考点。参考点将以橙色高亮显示。
注意:在 "切换缩放" 模式下,当鼠标悬停于某特征上时,其放大图像将显示在右上角。ArrayNinja 中其他背景校正功能的详细讨论见 elsewhere28. - 将鼠标悬停在受影响的斑点上,同时按下“A”键,以关闭那些形态差异较大或含有干扰物(可能影响准确量化)的斑点。失活的斑点将变为白色。
- 点击“填充”,然后点击“提交”以定量分析斑点。
注意:新标签页将打开,显示归一化至最亮斑点平均值的数据条形图。条形图下方的表格包含归一化数据和原始数据值。该表格可复制到电子表格中,用于存档和进一步分析。

图4:ArrayNinja 分析模块。 图中显示了 ArrayNinja 分析模块的界面截图。控制面板(左上)展示了所有可调节的参数,用于可视化芯片图像、识别点阵以及在芯片图像上对齐网格。将鼠标悬停在某个特征点上时,会显示该点的放大视图(右上),并弹出包含该特征点相关信息的提示框(底部)。用于背景校正的参考点以橙色标示。在后续分析中需排除的特征点以白色显示。ArrayNinja 包含基于文本的搜索功能,可将匹配的特征点以黄色高亮显示,图中以 H4K16 为例进行了展示。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
本方案已用于设计和构建肽段微阵列平台,以分析组蛋白PTM抗体的特异性。该阵列检测包含300多种独特肽段特征(长度为20至40个残基)的文库,代表了核心组蛋白和变异组蛋白上已知的多种PTM组合38。该流程已成为筛选多种广泛使用且 commercially available 的组蛋白PTM抗体的主要工具,完整数据集可在组蛋白抗体特异性数据库(www.histoneantibodies.com)中获取17。
本流程的核心是ArrayNinja,这是我们近期开发的一款开源软件应用程序,用于整合微阵列实验的实验设计与数据分析环节28。ArrayNinja的分析模块允许用户以交互方式处理原始阵列图像文件。打印的特征标识会自动与图像对齐,通过将鼠标悬停在某个点位上即可显示其标识信息。该集成功能还支持按名称快速搜索目标特征,...
访问受限。请登录或开始试用以查看此内容。
讨论
抗体在生物医学研究应用中的可靠性至关重要46,47。这一点在染色质生物化学研究中尤为突出,因为抗体是目前大多数用于表征组蛋白翻译后修饰(PTM)丰度与分布技术中的关键工具。本文所述方案详细介绍了一种经过优化的肽段微阵列设计、制备和应用流程,用于分析组蛋白PTM抗体的特异性。该流程已被用于筛选大量 commercially available 且广泛使用的组蛋白PTM抗体,相关实验产生的数据可通过在线开放且持续更新的组蛋白抗体特异性数据库(www.histoneantibodies.com)免费获取17。
我们的研究以及他人的工作均表明,组蛋白PTM抗体的行为经常存在不利情况,这可能会使利用这些试剂产生的数据解释变得复杂12,15,17...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作部分由范安德尔研究所及美国国立卫生研究院(CA181343)向 S.B.R. 提供的研究资助支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 打印缓冲液 | ArrayIt | PPB | |
| 牛血清白蛋白(BSA) | Omnipure | 2390 | |
| 链霉亲和素包被的玻璃显微镜载片 | Greiner Bio-one | 439003-25 | |
| 聚丙烯 384 孔板 | Greiner Bio-one | 784201 | |
| 生物素-荧光素 | Sigma | 53608 | |
| 接触式微阵列打印机 | Aushon | 2470 | Aushon 2470 微阵列打印机 |
| 接触式微阵列打印机 | Gene Machines | OmniGrid 100 | OmniGrid 微阵列打印机 |
| 磷酸盐缓冲液(PBS) | Invitrogen | 14190 | |
| 封闭缓冲液 | ArrayIt | SBB | |
| 疏水性蜡笔 | Vector Labs | H-4000 | ImmEdge 疏水屏障 PAP 笔 |
| 硅胶垫片 | Grace Bio-labs | 622511 | |
| 杂交容器 | Thermo Scientific | 267061 | 或类似容器 |
| 荧光染料标记的二抗 | Life Technologies | A-21244 | Alexa Fluor 647(抗兔) |
| 荧光染料标记的二抗 | Life Technologies | A-21235 | Alexa Fluor 647(抗小鼠) |
| 蜡印仪 | ArrayIt | MSI48 | |
| 吐温-20(Tween-20) | Omnipure | 9490 | |
| 微阵列扫描仪 | Innopsys | InnoScan 1100AL | 或同等性能的微阵列扫描仪 |
| EpiTitan 组蛋白肽微阵列 | Epicypher | 112001 | |
| AbSurance Pro 组蛋白肽微阵列 | Millipore | 16668 | |
| MODified 组蛋白肽阵列 | Active Motif | 13001 | |
| 组蛋白密码肽微阵列 | JPT | His_MA_01 | |
| 蜡 | Royal Oak | GulfWax | 用于蜡印仪 |
| 加湿型微阵列载片杂交室 | VWR | 97000-284 | |
| 高通量显微镜载片洗涤槽 | ArrayIt | HTW | |
| 显微镜载片离心机 | VWR | 93000-204 | |
| 抗体 1 | Abcam | 8898 | |
| 抗体 2 | Millipore | 07-473 | |
| 生物素化组蛋白肽 | EpiCypher | 12-0001 | 示例肽。多种不同修饰的类似肽可从多个商业来源获得。 |
| ImageMagick | https://www.imagemagick.org/script/index.php | ||
| ArrayNinja | https://rothbartlab.vai.org/tools/ |
参考文献
- van Steensel, B. Chromatin: constructing the big picture. EMBO J. 30 (10), 1885-1895 (2011).
- Kouzarides, T. Chromatin modifications and their function. Cell. 128 (4), 693-705 (2007).
- Rothbart, S. B., Strahl, B. D. Interpreting the language of histone and DNA modifications. Biochim Biophys Acta. 1839 (8), 627-643 (2014).
- Shogren-Knaak, M., Ishii, H., Sun, J. -M., Pazin, M. J., Davie, J. R., Peterson, C. L. Histone H4-K16 acetylation controls chromatin structure and protein interactions. Science. 311 (5762), 844-847 (2006).
- Musselman, C. A., Lalonde, M. -E., Côté, J., Kutateladze, T. G. Perceiving the epigenetic landscape through histone readers. Nat Struct Mol Biol. 19 (12), 1218-1227 (2012).
- Huang, H., Sabari, B. R., Garcia, B. A., Allis, C. D., Zhao, Y. SnapShot: Histone Modifications. Cell. 159 (2), 458(2014).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Rothbart, S. B., Krajewski, K., et al. Association of UHRF1 with methylated H3K9 directs the maintenance of DNA methylation. Nat Struct Mol Biol. 19 (11), 1155-1160 (2012).
- Wang, Z., Zang, C., et al. Combinatorial patterns of histone acetylations and methylations in the human genome. Nat Genet. 40 (7), 897-903 (2008).
- Stunnenberg, H. G., Hirst, M. International Human Epigenome Consortium. The International Human Epigenome Consortium: A Blueprint for Scientific Collaboration and Discovery. Cell. 167 (5), 1145-1149 (2016).
- ENCODE Project Consortium. An integrated encyclopedia of DNA elements in the human genome. Nature. 489 (7414), 57-74 (2012).
- Egelhofer, T. A., Minoda, A., et al. An assessment of histone-modification antibody quality. Nat Struct Mol Biol. 18 (1), 91-93 (2011).
- Bock, I., Dhayalan, A., Kudithipudi, S., Brandt, O., Rathert, P., Jeltsch, A. Detailed specificity analysis of antibodies binding to modified histone tails with peptide arrays. Epigenetics. 6 (2), 256-263 (2011).
- Busby, M., Xue, C., et al. Systematic comparison of monoclonal versus polyclonal antibodies for mapping histone modifications by ChIP-seq. Epigenetics Chromatin. 9, 49(2016).
- Fuchs, S. M., Krajewski, K., Baker, R. W., Miller, V. L., Strahl, B. D. Influence of combinatorial histone modifications on antibody and effector protein recognition. Curr Biol. 21 (1), 53-58 (2011).
- Kungulovski, G., Jeltsch, A. Quality of histone modification antibodies undermines chromatin biology research. F1000Research. 4, 1160(2015).
- Rothbart, S. B., Dickson, B. M., et al. An Interactive Database for the Assessment of Histone Antibody Specificity. Mol Cell. 59 (3), 502-511 (2015).
- Rothbart, S. B., Lin, S., et al. Poly-acetylated chromatin signatures are preferred epitopes for site-specific histone H4 acetyl antibodies. Sci Rep. 2, 489(2012).
- Berger, M. F., Bulyk, M. L. Universal protein-binding microarrays for the comprehensive characterization of the DNA-binding specificities of transcription factors. Nat Protoc. 4 (3), 393-411 (2009).
- Hu, S., Wan, J., et al. DNA methylation presents distinct binding sites for human transcription factors. eLife. 2, e00726(2013).
- Moore, C. D., Ajala, O. Z., Zhu, H. Applications in high-content functional protein microarrays. Curr Opin Chem Biol. 30, 21-27 (2016).
- MacBeath, G., Schreiber, S. L. Printing proteins as microarrays for high-throughput function determination. Science. 289 (5485), 1760-1763 (2000).
- Rothbart, S. B., Krajewski, K., Strahl, B. D., Fuchs, S. M. Peptide microarrays to interrogate the "histone code" . Methods Enzymol. 512, 107-135 (2012).
- Cornett, E. M., Dickson, B. M., et al. Substrate Specificity Profiling of Histone-Modifying Enzymes by Peptide Microarray. Methods Enzymol. 574, 31-52 (2016).
- Nady, N., Min, J., Kareta, M. S., Chédin, F., Arrowsmith, C. H. A SPOT on the chromatin landscape? Histone peptide arrays as a tool for epigenetic research. Trends Biochem Sci. 33 (7), 305-313 (2008).
- Dieker, J., Berden, J. H., et al. Autoantibodies against Modified Histone Peptides in SLE Patients Are Associated with Disease Activity and Lupus Nephritis. PLoS ONE. 11 (10), (2016).
- Price, J. V., Tangsombatvisit, S., et al. "On silico" peptide microarrays for high-resolution mapping of antibody epitopes and diverse protein-protein interactions. Nat Med. 18 (9), 1434-1440 (2012).
- Dickson, B. M., Cornett, E. M., Ramjan, Z., Rothbart, S. B. ArrayNinja: An Open Source Platform for Unified Planning and Analysis of Microarray Experiments. Methods Enzymol. 574, 53-77 (2016).
- Gatchalian, J., Fütterer, A., et al. Dido3 PHD modulates cell differentiation and division. Cell Rep. 4 (1), 148-158 (2013).
- Cai, L., Rothbart, S. B., et al. An H3K36 methylation-engaging Tudor motif of polycomb-like proteins mediates PRC2 complex targeting. Mol Cell. 49 (3), 571-582 (2013).
- Rothbart, S. B., Dickson, B. M., et al. Multivalent histone engagement by the linked tandem Tudor and PHD domains of UHRF1 is required for the epigenetic inheritance of DNA methylation. Genes Dev. 27 (11), 1288-1298 (2013).
- Ali, M., Rincón-Arano, H., et al. Molecular basis for chromatin binding and regulation of MLL5. Proc Natl Acad Sci U S A. 110 (28), 11296-11301 (2013).
- Kinkelin, K., Wozniak, G. G., Rothbart, S. B., Lidschreiber, M., Strahl, B. D., Cramer, P. Structures of RNA polymerase II complexes with Bye1, a chromatin-binding PHF3/DIDO homologue. Proc Natl Acad Sci U S A. 110 (38), 15277-15282 (2013).
- Klein, B. J., Piao, L., et al. The histone-H3K4-specific demethylase KDM5B binds to its substrate and product through distinct PHD fingers. Cell Rep. 6 (2), 325-335 (2014).
- Kim, H. -S., Mukhopadhyay, R., et al. Identification of a BET family bromodomain/casein kinase II/TAF-containing complex as a regulator of mitotic condensin function. Cell Rep. 6 (5), 892-905 (2014).
- Greer, E. L., Beese-Sims, S. E., et al. A histone methylation network regulates transgenerational epigenetic memory in C. elegans. Cell Rep. 7 (1), 113-126 (2014).
- Andrews, F. H., Tong, Q., et al. Multivalent Chromatin Engagement and Inter-domain Crosstalk Regulate MORC3 ATPase. Cell Rep. 16 (12), 3195-3207 (2016).
- Sidoli, S., Lin, S., Karch, K. R., Garcia, B. A. Bottom-Up and Middle-Down Proteomics Have Comparable Accuracies in Defining Histone Post-Translational Modification Relative Abundance and Stoichiometry. Anal Chem. 87 (6), 3129-3133 (2015).
- Tsukada, Y., Ishitani, T., Nakayama, K. I. KDM7 is a dual demethylase for histone H3 Lys 9 and Lys 27 and functions in brain development. Genes Dev. 24 (5), 432-437 (2010).
- Tachibana, M., Sugimoto, K., Fukushima, T., Shinkai, Y. Set domain-containing protein, G9a, is a novel lysine-preferring mammalian histone methyltransferase with hyperactivity and specific selectivity to lysines 9 and 27 of histone H3. J Biol Chem. 276 (27), 25309-25317 (2001).
- Wu, H., Chen, X., et al. Histone methyltransferase G9a contributes to H3K27 methylation in vivo. Cell Res. 21 (2), 365-367 (2011).
- Koch, C. M., Andrews, R. M., et al. The landscape of histone modifications across 1% of the human genome in five human cell lines. Genome Res. 17 (6), 691-707 (2007).
- Okitsu, C. Y., Hsieh, J. C. F., Hsieh, C. -L. Transcriptional Activity Affects the H3K4me3 Level and Distribution in the Coding Region. Mol Cell Biol. 30 (12), 2933-2946 (2010).
- Zentner, G. E., Tesar, P. J., Scacheri, P. C. Epigenetic signatures distinguish multiple classes of enhancers with distinct cellular functions. Genome Res. 21 (8), 1273-1283 (2011).
- Garske, A. L., Oliver, S. S., et al. Combinatorial profiling of chromatin binding modules reveals multisite discrimination. Nat Chem Biol. 6 (4), 283-290 (2010).
- Baker, M. Reproducibility crisis: Blame it on the antibodies. Nature. 521 (7552), 274-276 (2015).
- Bradbury, A., Plückthun, A. Reproducibility: Standardize antibodies used in research. Nature. 518 (7537), 27-29 (2015).
- Nguyen, U. T. T., Bittova, L., et al. Accelerated chromatin biochemistry using DNA-barcoded nucleosome libraries. Nat Methods. 11 (8), 834-840 (2014).
- Frank, R. Spot-synthesis: an easy technique for the positionally addressable, parallel chemical synthesis on a membrane support. Tetrahedron. 48 (42), 9217-9232 (1992).
- Hilpert, K., Winkler, D. F. H., Hancock, R. E. W. Peptide arrays on cellulose support: SPOT synthesis, a time and cost efficient method for synthesis of large numbers of peptides in a parallel and addressable fashion. Nat Protoc. 2 (6), 1333-1349 (2007).
- Kudithipudi, S., Kusevic, D., Weirich, S., Jeltsch, A. Specificity analysis of protein lysine methyltransferases using SPOT peptide arrays. J Vis Exp. (93), e52203(2014).
访问受限。请登录或开始试用以查看此内容。
重印与许可
