本文介绍了一种用于检测补体受体1(CR1)长度多态性的创新方法,该方法可应用于多个领域,特别是用于评估阿尔茨海默病(AD)等疾病的易感性。该方法有助于更深入地理解CR1异构体在AD发病机制中的作用。
本文内容
摘要
摘要
补体受体1(CR1)是一种跨膜糖蛋白,在先天免疫系统中发挥关键作用,表达于多种细胞类型,尤其在红细胞(RBCs)上高度表达。作为补体成分C3b和C4b的受体,CR1可调节补体级联反应的激活,并促进免疫复合物、细胞碎片以及阿尔茨海默病(AD)中淀粉样β肽(Aβ)的吞噬。多项研究已证实,CR1基因中存在与AD相关的单核苷酸多态性(SNPs)以及拷贝数变异(CNV)。本文介绍一种用于测定CR1受体长度多态性的创新方法。该受体包含三个结构域,即长同源重复序列(LHR)-LHR-A、LHR-C和LHR-D,以及一个可变数量的n个LHR-B结构域,其中n为0至3之间的整数。利用一对特异性引物,可从遗传物质中扩增出LHR-B结构域的第一片段(可变扩增子B)和LHR-C结构域的第二片段(不变扩增子)。所述引物结合区域之外,可变扩增子B与不变扩增子在五个核苷酸位点上存在差异。通过定量分析工具(高分辨率熔解曲线,HRM)推断可变扩增子B和不变扩增子的数量,且可变扩增子B与不变扩增子的比值随CR1长度多态性的不同而变化。与传统的表型检测方法相比,该方法具有多项优势:无需新鲜样本,成本更低、速度更快,因而适用于更大规模的人群研究。因此,该方法的应用将有助于更深入地理解CR1异构体在AD等疾病发病机制中的作用。
引言
阿尔茨海默病(AD)是痴呆症最常见的病因,全球受影响人数超过3000万,是重大的公共卫生问题1。临床上,AD以神经认知障碍为特征,导致自主能力进行性丧失2。AD具有两种神经病理学标志性改变,即细胞外淀粉样蛋白沉积和细胞内神经纤维缠结3。
传统上,根据疾病发病年龄,阿尔茨海默病(AD)分为两种类型。第一种是早发性阿尔茨海默病(EOAD),通常在65岁之前发病,占AD病例的不到5%。这是一种罕见的常染色体显性遗传形式,由淀粉样前体蛋白(APP)4、早老素1(PSEN1)5或早老素2(PSEN2)6基因的完全外显突变引起。第二种更为常见的形式(>90%的AD病例)被称为"散发性"晚发性阿尔茨海默病(LOAD),多见于65岁及以上的个体,由多种遗传和环境风险因素共同导致7。在LOAD中,载脂蛋白E(APOE)基因的4等位基因是主要的遗传风险因素8,9。此外,全基因组关联研究(GWAS)已鉴定出超过20个与AD风险相关的基因位点,其中之一是补体成分(3b/4b)受体1(CR1)基因10,该基因位于1号染色体长臂32区(1q32),处于一组补体相关蛋白的基因簇中。CR1基因编码补体受体1型(CR1)蛋白,是补体活性调节因子的组成部分。
CR1(C3b/C4b 受体,CD35)是一种跨膜糖蛋白,分子量约为 200 kDa11,可结合 C3b、C4b、C3bi、C1q、甘露糖结合凝集素(MBL)以及 ficolin 补体蛋白12。CR1 的生物学功能随其表达的细胞类型而异。在人体中,90% 的循环 CR1 存在于红细胞(RBCs)上13。位于红细胞表面的 CR1 可结合被 C3b 或 C4b 调理的微生物或免疫复合物,促进其从血液循环中清除。当红细胞流经肝脏和脾脏时,与 CR1 结合的复合物确实会转移至吞噬细胞11,14。通过限制 C3b 和 C4b 的沉积,CR1 可能防止补体系统的过度激活。因此,红细胞表面的 CR1 表达被认为是保护组织(如中枢神经系统)免受免疫复合物沉积及其所致疾病的重要机制之一。红细胞上的 CR1 还被证实参与病原体感染过程15,16。此外,作为先天免疫中的关键分子,CR1 参与调控补体级联反应以及免疫复合物的运输与清除。CR1 通过结合 C3b 和 C4b 片段,并解离经典和旁路途径的转化酶(即从 C4b2a 复合物中解离 C2a,以及从 C3bBb 复合物中解离 C3b),发挥其生物学活性。作为血浆丝氨酸蛋白酶因子 I(FI)的辅助因子,CR1 可增强 FI 对 C4b 和 C3b 的裂解作用(该功能称为辅助因子活性,CA),从而抑制经典和旁路补体通路;同时通过抑制 C3 放大环路,进一步阻止补体系统的持续激活。Rogers 及其同事提供了证据表明,Aβ 肽可在无抗体存在的情况下结合并激活补体通路17,并提出 Aβ 肽可通过依赖补体的机制黏附于红细胞表面表达的 CR1,从而实现其在血液循环中的清除18。
CR1 存在三种类型的多态性:结构或长度多态性、密度多态性以及Knops血型多态性11,19。结构多态性与长同源重复序列(LHRs)的数量变异有关,由此定义了四种异构体。事实上,CR1蛋白的胞外区由一系列重复单位组成,称为短同源重复序列(SCRs)或补体调控重复序列(CCPs)。这些SCRs已从编码CR1的补体脱氧核糖核酸(cDNA)中得到证实。SCRs以七个为一组串联排列,称为长同源重复序列(LHRs)。CR1由四个LHR组成,分别命名为LHR-A、-B、-C和-LHR-D,它们来源于一个七SCR单位的重复19,20,21。
按照频率递增的顺序,通过蛋白质印迹法(WB)确定的这些CR1异构体分别为CR1*1(A/F)(在凝胶电泳中迁移较快)、CR1*2(B/S)(在凝胶电泳中迁移较慢)、CR1*3(C/F')和CR1*4(D)。其中最常见的两种异构体CR1*1(A/F)和CR1*2(B/S)分别由四个和五个LHR组成,而CR1*3(C/F')和CR1*4(D)则分别由3个和6个LHR组成。最常见的异构体CR1*1由30个SCR组成,包含三个C4b结合位点(SCRs 1-3、8-10和15-17)以及两个C3b结合位点(SCRs 8-10和15-17),而SCRs 22-28可结合C1q、ficolins和MBL12,20,21,22,23,24,25。因此,与CR1*1相比,CR1*2多出一个C3b/C4b结合位点。图1展示了四种不同CR1异构体的结构、命名方式及分子量。
密度多态性对应于一种稳定的表型,代表红细胞(RBC)上CR1组成性表达的水平。在健康的高加索人群中,已发现每个红细胞上的CR1分子数量可相差达十倍(从每个细胞150至1,200个分子不等)26。Helgeson表型的红细胞具有极低的CR1密度,已被证实低于每个细胞150个分子27,28。红细胞上CR1密度在遗传上与CR1基因上的常染色体共显性双等位基因系统相关,该系统与HindIII限制性片段长度多态性(RFLP)相关联29。CR1基因第27内含子中发生单点突变,位于编码LHR-D区第二个SCR结构域的外显子之间,导致该区域内产生一个多态性的HindIII酶切位点30。HindIII基因组片段分别为7.4和6.9 kDa,分别对应于红细胞上高(H等位基因)或低(L等位基因)CR1密度的等位基因。然而,在一些西非人群中,并未发现红细胞CR1密度与HindIII多态性之间的相关性31,32。将CR1密度调控与非编码区HindIII多态性相联系的机制仍不清楚。在多个多态性中,SCR16区的Q981H和SCR28区的P1786R已被报道与红细胞上CR1密度相关30,33。
根据国际命名法,Knops(KN)多态性是国际输血协会登记的第22个血型系统。该系统包含9种由红细胞CR1表达的抗原特异性,其中包括三对相对抗原:KN1/KN2、KN3/KN6和KN4/KN7,以及三种独立抗原:KN5、KN8和KN9。KN1、KN3、KN4和KN5抗原属于KN系统中的高频抗原(即在超过99%的普通人群中表达)。然而,该多态性在AD中的作用仍有待确定13。
本研究中描述的实验方案旨在确定与多种疾病(如阿尔茨海默病、系统性红斑狼疮和疟疾)易感性相关的CR1长度多态性基因型。我们用于确定CR1长度多态性的方法利用了构成CR1同工型的LHR-B数量以及LHR-B与LHR-C之间的序列差异(图2)。
方案
人类血液采集与处理方案已通过地区伦理委员会(CPP Est II)的审查和批准,方案编号为2011-A00594-37。
注意:以下方案描述了人血的处理方法。处置生物危害材料时,请遵循所在机构的相关指南。应穿戴实验室安全装备,例如实验服和手套。描述该方案的流程图见图3。
1. 血液与体液 DNA 提取
- 将 20 µL 蛋白酶 K(15 µg/µL)移液至 1.5 mL 离心管底部。
- 向该 1.5 mL 管中加入 200 µL 样品。可使用最多 200 µL 全血、血浆、血清、白细胞层或体液,或在 200 µL PBS 中最多 5 × 10⁶ 个淋巴细胞。
- 向样品中加入 200 µL 裂解缓冲液,脉冲式涡旋振荡 15 秒以混匀。
- 将样品在 56 °C 水浴中孵育 10 分钟。
- 短暂离心 1.5 mL 管,使管盖内壁的液滴沉至管底。
- 向样品中加入 200 µL 乙醇(96–100%),再次脉冲式涡旋振荡 15 秒混匀。混匀后,短暂离心 1.5 mL 管,去除管盖内壁的液滴。
- 小心将步骤 1.6 中的混合液转移至膜柱(置于 2 mL 收集管中)。避免润湿边缘,盖紧管盖后于 6,000 × g 离心 1 分钟。将膜柱转移至新的洁净 2 mL 收集管中,弃去含有滤液的收集管。
- 小心打开膜柱,加入 500 µL 洗涤缓冲液 1,避免润湿边缘。盖紧管盖后于 6,000 × g 离心 1 分钟。将膜柱转移至新的洁净 2 mL 收集管中,弃去含有滤液的收集管。
- 小心打开膜柱,加入 500 µL 洗涤缓冲液 2,避免润湿边缘。盖紧管盖后以最大转速(20,000 × g)离心 3 分钟。
- 将膜柱放入新的 2 mL 收集管中,弃去含有滤液的收集管,于 20,000 × g 离心 1 分钟。
- 将膜柱转移至洁净的 1.5 mL 管中,弃去含有滤液的收集管。
- 小心打开膜柱,加入 200 µL 去离子水。室温孵育 5 分钟,然后于 6,000 × g 离心 1 分钟。
- 继续进行 DNA 浓度测定步骤,或将 DNA 样品于 -20 °C 冻存。
2. DNA 浓度的测定
注意:参见图4。
- 在分光光度计上按 1 选择 DNA 模式。使用左右箭头选择 5 mm 的光程长度。使用左右箭头选择 1 的稀释倍数。
- 使用左右箭头选择单位(µg/mL)。使用左右箭头选择 50 的倍数。按 OK。
- 用移液器将 10 µL 去离子水加入比色皿中。将比色皿放入分光光度计中。按下 OA/100%T 按钮。
- 将 10 µL DNA 样品(用去离子水稀释 1/4)移入比色皿中。将比色皿放入分光光度计中。按下绿色按钮(读数/开始)。记录浓度。
- 将 DNA 样品在 -20 °C 冷冻保存。
3. HRM-PCR 实验方案
- 解冻DNA样品。在1.5 mL离心管中用水稀释DNA样品,使其浓度调整为10 ng/µL
注意:稀释后DNA的总体积应在2 µL至10 µL之间。 - 解冻引物溶液。在1.5 mL离心管中用水稀释引物溶液,使其浓度调整为6 µM。
注意:引物序列和反应条件见表1。
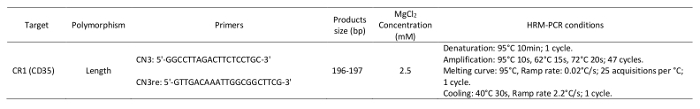
表1:高分辨率熔解分析中使用的引物与实验参数。
- 解冻HRM-PCR试剂盒溶液,通过涡旋振荡充分混匀,以确保所有组分完全恢复。将含有酶混合物与DNA结合染料、MgCl₂的三个小瓶短暂离心,使管壁残留液体沉至管底。2在打开前,先在微型离心机中短暂离心,并置于室温下保存。
- 在室温下的 1.5 mL 离心管中,配制一份 PCR 反应混合液 20 µL 通过按以下顺序添加组分来进行反应:
- 10 µL 含DNA结合染料的酶混合物;
- 2 µL 25 mM MgCl2;
- 1 µL 引物1的 6 µM (终浓度:300 nM);
- 1 µL 引物2的 6 µM (终浓度:300 nM);以及
- 5 µL 水。
注意:若需配制多于一个反应的PCR混合液,应将上述各组分体积乘以拟进行的反应数再加一个反应的数量。
- 轻轻混匀,使用涡旋振荡器。
- 移液 19 µL 将上述制备的PCR混合液加入白色多孔板的每个孔中。
- 添加 1 µL 经步骤3.1制备的浓度调整后的DNA模板
注意:进行对照反应时,务必为样品设置阴性对照。制备阴性对照时,用水替代模板DNA。 - 用封板膜密封白色多孔板。
- 将白色多孔板放入离心机中,并使用适当的配重进行平衡(即, 另一块多孔板)。在配备适用于多孔板及相应转接器的转子的标准摆动桶式离心机中,以1,500 × g离心1分钟。
- 将白色多孔板装入HRM-PCR仪器中。
- 启动HRM-PCR程序,PCR条件如下:
变性: 95 °C 10 分钟;1 个循环。
扩增: 95 °C 10秒, 62 °C 15秒,以及 72 °C 20秒;47个循环。
熔解曲线: 95 °C;升温速率: 0.02 °C/秒;每25次采集 °C;1个循环。
冷却: 40 °C 30 秒;升降温速率 2.2 °C/秒;1个循环。
4. HRM 分析以确定 CR1 长度多态性
注意:所描述的方法(图5)专用于我们的软件(参见材料表),尽管也可使用其他软件包。
- 打开基因扫描软件,进行CR1长度多态性扫描分析。
- 打开包含扩增程序和熔解曲线程序的实验。
- 点击 样本编辑器 在 模块 栏,然后选择 扫描 工作流程.
- 定义样品的特性(即, 名称;未知或阴性对照。
- 点击 分析 在 模块 巴
- 在 创建新分析 列表,选择 基因扫描
- 点击 归一化 切换至归一化熔解曲线。
- 点击 温度转换 单击以重置熔解曲线的温度轴(x 轴)。
注意:下方图表显示的是经过归一化和温度校正的熔解曲线。 - 点击 计算 单击按钮以分析结果并确定分组。
- 点击 差异图 图表区域中的标签以查看 归一化与位移熔解曲线 和 归一化与温度偏移差异图.
结果
图6A展示了通过WB对CR1长度多态性进行的分型结果。图6B和C展示了HRM-PCR分析过程中获得的曲线,可用于确定CR1长度多态性。在对具有不同CR1异构体的受试者基因组DNA进行PCR扩增后,通过高分辨率熔解分析获得熔解曲线,并利用软件分析这些融合曲线,从而根据受试者CR1同种型表达表型的差异实现区分。
图6B 展示了第一种呈现模式,称为“归一化并位移的熔解曲线”,而 图6C 展示了第二种呈现模式,称为“归一化并温度位移的差值图”。
曲线的分布模式根据代表 图6A 中表型的分组进行划分:(CR1*3, CR1*1);(CR1*1, CR1*2);CR1*1;CR1*2;以及 (CR1*2, CR1*4)。这使得能够利用该新型分子生物学方法对 CR1 长度多态性进行基因分型。
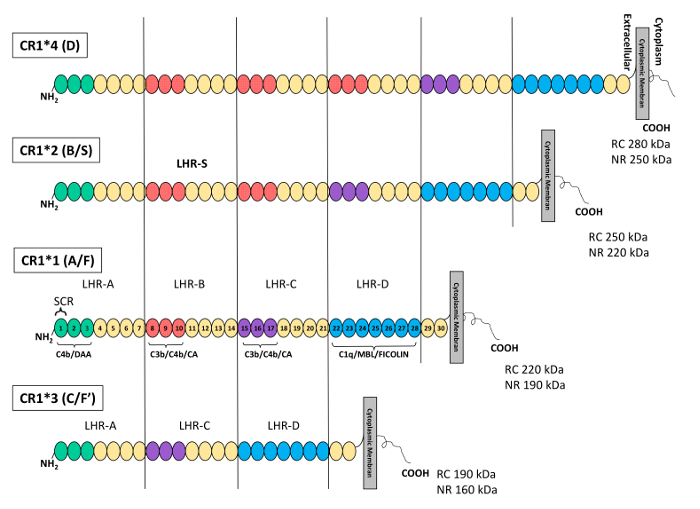
图1:补体受体1蛋白结构及其多态性的示意图。每个短共有序列重复区(SCR)或补体控制蛋白(CCP)以一个圆圈表示。SCR被归类为称为LHR的重复性高阶结构。从细胞外结构域到细胞膜,LHR依次为:LHR-A、-B、-C、-D 和 -S(辅助性或附加性LHR)。在最常见的CR1异构体(CR1*1)中,C4b/衰变加速活性(DAA)结合位点位于LHR-A(SCRs 1-3,绿色圆圈),C3b/C4b/辅因子活性(CA)结合位点位于LHR-B(SCRs 8-10,红色圆圈)和LHR-C(SCRs 15-17,紫色圆圈)的N端前3个SCR中,而C1q/甘露糖结合凝集素(MBL)和ficolin的结合位点则位于LHR-D(SCRs 22-28,蓝色圆圈)。同源结构以相同颜色标注。CR1*2(S)异构体具有一个额外的LHR(LHR-S),因此包含一个额外的C3b/C4b结合位点。KDa,千道尔顿。NRC,非还原条件。RC,还原条件。TM,跨膜结构域。本图经Nature Publishing Group许可改编自Brouwers et al.36。 请点击此处查看此图的放大版本。

图2:通过HRM-PCR获得的CR1异构体结构及其扩增子位置的示意图。每个方框代表一个短共识重复序列(SCR)。SCR被归类为长同源重复区(LHR):LHR-A、-B、-C和-D。同源结构以相同颜色标注。CR1*2和CR1*4异构体具有额外的LHR(LHR-B),因此包含一个额外的扩增子区域(红色所示的扩增子B)。CR1*3缺失LHR-B,扩增子区域较少(缺少扩增子B)。扩增子B(196 bp)与不变扩增子(197 bp)之间的核苷酸差异分别以红色和蓝色表示。各CR1异构体之间(红色扩增子B / 蓝色不变扩增子)的比值差异通过HRM-PCR测定,从而实现基因分型。CN3和CN3re引物序列已加下划线。TM,跨膜区;CYT,胞质尾区。请点击此处查看该图的放大版本。
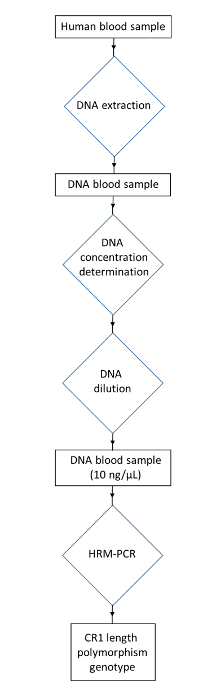
图3:从人血样本中对CR1长度多态性进行基因分型的实验流程图。采集人源DNA样本,提取DNA以获得血液DNA样品;测定DNA浓度,并稀释至10 ng/µL;采用HRM-PCR方法获得CR1长度多态性基因型。请点击此处查看该图的放大版本。
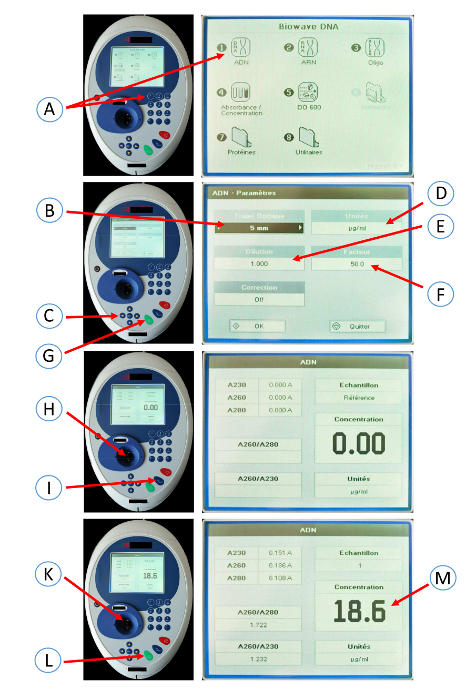
图4:用于测定DNA浓度的分光光度计操作界面截图。按数字键1(A)选择分光光度计上的DNA检测模式。使用左右箭头(C)选择光程长度为5 mm(B)。使用左右箭头(C)选择浓度单位(µg/mL)(D)。使用左右箭头(C)选择稀释倍数为1(E)。使用左右箭头选择换算系数为50(F)。按OK键(G)。用移液器向比色皿中加入10 µL去离子水。将比色皿放入分光光度计中(H)。按下OA/100%T按钮(I)。用移液器向比色皿中加入10 µL DNA样品(用去离子水稀释1/4)。将比色皿放入分光光度计中(K)。按下绿色按钮(读数/开始)(L)。记录测得的DNA浓度(M)。 请点击此处查看该图的放大版本。
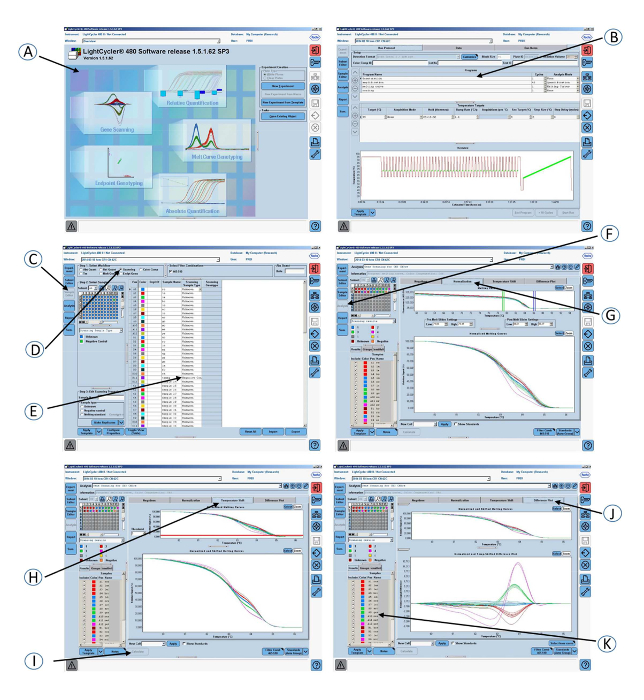
图5:方案第4步所用软件图形界面的截图。(A)打开基因扫描软件。(B)扩增程序和熔解曲线程序。(C)在Module工具栏中点击Sample editor。(D)选择Scanning。(E)定义样本属性。(F)在Module工具栏中点击Analysis。(G)点击Normalization标签页以对熔解曲线进行归一化处理。(H)点击Temperature shift标签页,显示经过归一化和温度校正的熔解曲线。(I)点击Calculate按钮以分析结果并确定分组。(J)点击Difference plot标签页,查看Normalized and Shifted Melting Curves以及Normalized and Temperature Shifted Difference Plot。(K)根据CR1长度基因型对样本进行彩色分组。请点击此处查看该图的放大版本。

图6:通过WB检测到的CR1长度多态性及其在HRM-PCR中获得的相应曲线图谱。(A)使用WB对CR1长度多态性进行表型分析。(B)和(C)采用HRM-PCR分析对CR1长度多态性进行基因分型。对来自表达不同CR1异构体个体的基因组DNA进行PCR扩增后,通过高分辨率熔解曲线(HRM)分析,鉴定出特定的曲线图谱:(CR1*3, CR1*1)(紫色);(CR1*1, CR1*2)(蓝色);CR1*1(绿色);CR1*2(红色);以及(CR1*2, CR1*4)(灰色)。这些图谱对应于CR1长度多态性的等位基因。如两种展示模式所示——“归一化并位移的熔解曲线”(B)和“归一化并温度位移的差异图”(C)——曲线图谱分别归属于(CR1*3, CR1*1)、(CR1*1, CR1*2)、CR1*1、CR1*2和(CR1*2, CR1*4)组。本图经Elsevier许可改编自Mahmoudi et al.38。请点击此处查看此图的放大版本。
讨论
在此,我们介绍一种广泛适用的方法,用于研究CR1长度多态性。由于CR1基因的重复结构,传统的分子生物学技术,如扩增或片段杂交,始终无法获得令人满意的结果,因而不能在所有个体中准确确定CR1长度多态性。即, CR1分子中高度重复的SCR区)。此处描述的分子生物学方法利用了CR1分子中LHR-B的定量分布特征。CR1分子包含n个LHR-B结构域,其中n为0至3之间的整数,且仅含有一个LHR-C结构域,如文中所述及图示所示。 图2定量检测B结构域能够精确区分多出或缺失一个B结构域的情况。
从提取的遗传物质中,使用一对特异性引物通过PCR扩增促黄体生成素受体B(LHR-B)的第一个DNA片段,代表一种称为"variant amplicon B"的特征性LHR-B变异片段。同时扩增第二个DNA片段,称为"invariant amplicon",属于LHR-C。该第二个DNA片段是LHR-C的一个片段,但也可使用LHR-A或LHR-D的其他不变片段。
两个DNA片段——变异扩增子B和不变扩增子——由相同的引物扩增,且在核苷酸序列上存在五个差异。这一特性使得在后续步骤中可以利用一种定量分子生物学工具HRM(为该目的而优化)来确定变异扩增子B和不变扩增子的数量。扩增子B与不变扩增子的数量比值(比值:扩增子B / 不变扩增子)随CR1分子长度的不同而变化。实际上,CR1*4表现为3个扩增子B对应1个不变扩增子,CR1*2表现为2个扩增子B对应1个不变扩增子,CR1*1表现为1个扩增子B对应1个不变扩增子,而CR1*3则表现为0个扩增子B对应1个不变扩增子(图2)。因此,该HRM-PCR方法可实现对CR1长度多态性的基因分型。
然而,在研究开始时,该技术需要使用已知CR1表型的参考受试者(即, 先前通过WB建立的)以能够根据HRM-PCR获得的参考曲线图谱建立CR1的基因分型。两种表示方式,即 "归一化与位移熔解曲线" 和 "归一化与温度偏移差分图" 可获得。它们根据WB测得的CR1长度多态性表型,显示出不同组别的曲线轮廓,且以不同颜色标示图6)。从 "归一化与位移熔解曲线" 这一步骤使得我们能够区分对应于CR1异构体的不同曲线组,这些曲线组按颜色分组。然而, "归一化且时间偏移校正的差异图," 这对应于一种不同的数学表达方式,有助于更直观地展示不同的曲线组。尽管本研究中常规使用的是制造商提供的软件,但也可采用其他软件(如uANALYSE)作为数据提取程序用于曲线分析。
迄今为止,WB 分析技术是能够在蛋白质水平上鉴定不同 CR1 长度多态性的原始技术。然而,该技术存在若干缺点。特别是,通过 WB 进行蛋白质分析必须在提取细胞膜之后才能进行,因此操作复杂且非常耗时。此外,该技术需要在实验开始时获取条件合适的 fresh blood 样本,才能获得有意义的结果。相比之下,基于 DNA 的 HRM-PCR 技术则可以使用干血斑或长期储存后的样本。HRM-PCR 需要专用的 DNA 熔解仪器,可以是专用设备,也可以是具备 HRM 功能并配备 HRM 软件的热循环仪。SNP 检测的准确性依赖于多个因素:i)包含在较长 PCR 片段中的 SNP 比相同 SNP 位于较短 PCR 片段中更难检测;ii)属于 III 类和 IV 类的 SNP 比 I 类和 II 类的 SNP 更难检测34;iii)若 SNP 两侧具有邻近碱基对称性(例如,5'-G(G/C)C-3'),则无论 HMR 平台的分辨率如何,都无法通过熔解曲线区分。使用 uMELT 软件35对包含目标 SNP 的预测 PCR 片段进行测试,可能有助于评估该检测方法的有效性。最后,HRM-PCR 是一种模拟方法,这意味着参考样本与待测模板之间的熔解曲线相似,并不一定表明模板序列与参考序列完全相同,因为模板序列可能不同于参考序列但在热力学上等效。然而,这些局限性并不适用于本文所述的方法,该方法基于五种核苷酸序列不同的扩增子混合物的熔解分析。
此外,本文所述基于高分辨率熔解曲线(HRM)分析的技术具有多种优势。首先,CR1长度多态性的检测速度更快,因为在完成遗传物质提取后,约2小时内即可获得结果。相比之下,基于WB蛋白分析的传统生化技术所需步骤较为耗时:需通过聚丙烯酰胺凝胶电泳分离细胞膜提取物,随后将蛋白质转移至硝酸纤维素膜或聚偏二氟乙烯(PVDF)膜,并通过免疫化学发光法鉴定CR1分子的不同异构体。其次,HRM-PCR技术还具有成本较低的优点,这对于可能需应用于大量个体的检测方法而言尤为重要。即, 大规模)以确定其对阿尔茨海默病、红斑狼疮或疟疾等疾病易感性。
近期,我们及其他研究者已证实,CR1*2 亚型因多出一个 C3b/C4b 结合位点,与阿尔茨海默病(AD)相关36,37,38。在我们先前发表的研究中,98.9% 受试者的基因和蛋白水平上的 CR1 长度多态性结果一致38。当比较 HRM-PCR 与 WB 检测所得的长度多态性时,出现不一致的结果:HRM(基因)检测确定为(CR1*1, CR1*2)基因型的个体,WB(蛋白)结果显示红细胞表面仅表达 CR1*1 亚型。在我们的研究中,CR1*2 亚型表达缺失(携带沉默等位基因的个体)在 WB 实验延长曝光时间后仍可重复观察到,这可能归因于文献中 Helgeson 所描述的沉默 CR1 等位基因(CR1*2)的存在39。然而,仍需在更大人群样本中开展进一步研究以支持这一假说。
需要注意的是,私有SNP(仅出现在小家族群体中甚至单一个体中的SNP)会导致不同的曲线图谱,应通过参考表型测定(WB)进行解读,但不可将其与经典图谱混淆,以免对CR1长度多态性基因型产生误判。
披露
作者是兰斯香槟-阿登大学(URCA)持有的一项专利的发明人(专利号 WO 2015166194)
致谢
我们感谢区域创新生物学平台的所有成员、免疫科以及内科和老年病科的工作人员,他们为优化和验证本方案作出了贡献。本工作由兰斯大学医院资助(项目编号:AOL11UF9156)。我们还感谢法国贝桑松大学医院(EA3920)的 Fiona Ecarnot 提供的编辑协助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 实验服 | 防护 | ||
| SensiCareIce 无粉腈检查手套 | Medline Industries, Inc, Mundelein, IL 60060, USA | 486802 | 样本防护 |
| Eppendorf Reference 2 移液器,0,5-10µL | Eppendorf France SAS, F-78360 Montesson, France | 4920000024 | 样本移液 |
| Eppendorf Reference 2 移液器,20-100µL | Eppendorf France SAS, F-78360 Montesson, France | 4920000059 | 样本移液 |
| Eppendorf Reference 2 移液器,100-1000µL | Eppendorf France SAS, F-78360 Montesson, France | 4920000083 | 样本移液 |
| TipOne 10µL 刻度滤芯吸头 | Starlab GmbH, D-22926 Ahrenburg, Germany | S1121-3810 | 样本移液 |
| TipOne 1-100µL 斜面滤芯吸头 | Starlab GmbH, D-22926 Ahrenburg, Germany | S1120-1840 | 样本移液 |
| ART 1000E 隔离吸头 | Thermo Fischer Scientific , F-67403 Illkirch, France | 2079E | 样本移液 |
| Eppendorf Safe-Lock 管,1.5 mL,Eppendorf 品质 | Eppendorf France SAS, F-78360 Montesson, France | 0030120086 | 混匀 |
| Vortex-Genie 2 涡旋振荡器 | Scientific Industries, Inc, Bohemia, NY 111716, USA | SI-0236 | 混匀 |
| QIAamp DNA Mini Kit (250) | Qiagen SA, F-91974 Courtaboeuf, France | 51306 | DNA 提取 |
| Buffer AL | Qiagen SA, F-91974 Courtaboeuf, France | 19075 | 裂解缓冲液 |
| QIAamp Mini Spin Column | Qiagen SA, F-91974 Courtaboeuf, France | 1011706 | DNA 结合 |
| Buffer AW1 | Qiagen SA, F-91974 Courtaboeuf, France | 19081 | 洗涤缓冲液 |
| Buffer AW2 | Qiagen SA, F-91974 Courtaboeuf, France | 19072 | 洗涤缓冲液 |
| Biowave DNA 分光光度计 | Biochrom Ltd, Cambridge CB4 OFJ, England | 80-3004-70 | DNA 浓度 |
| Mikro 200 离心机 | Hettich Zentrifugen, D-78532, Germany | 0002020-02-00 | 离心 |
| Multipette E3 | Eppendorf France SAS, F-78360 Montesson, France | 4987000010 | 分液 |
| Light Cycler 480 96 孔白色多孔板 | Roche Diagnostics GmbH, D-68305 Mannheim, Germany | 04729692001 | 反应场所 |
| Light Cycler 480 密封箔 | Roche Diagnostics GmbH, D-68305 Mannheim, Germany | 04429757001 | 覆盖 |
| Heraeus Megafuge 11R 离心机 | Thermo Fischer Scientific , F-67403 Illkirch, France | 75004412 | 离心 |
| LightCycler 480 Instrument II,96 孔 | Roche Diagnostics GmbH, D-68305 Mannheim, Germany | 05015278001 | 高分辨率熔解聚合酶链式反应 |
| LightCycler 480 高分辨率熔解 Master 混合液 | Roche Diagnostics GmbH, D-68305 Mannheim, Germany | 04909631001 | 反应试剂 |
| light cycler 480 SW 1.5.1 软件 | Roche Diagnostics GmbH, D-68305 Mannheim, Germany | 用于 HRM PCR CR1 多态性数据分析的软件 | |
| CN3 引物:5'ggccttagacttctcctgc 3' | Eurogentec Biologics Division, B- 4102 Seraing, Belgium | 反应试剂 | |
| CN3re 引物:5'gttgacaaattggcggcttcg 3' | Eurogentec Biologics Division, B- 4102 Seraing, Belgium | 反应试剂 |
参考文献
- Prince, M., et al. World Alzheimer Report 2015, The Global Impact of Dementia: An analysis of prevalence, incidence, cost and trends. Alzheimer's Disease International. , (2015).
- McKhann, G. M., et al. The diagnosis of dementia due to Alzheimer's disease: recommendations from the National Institute on Aging-Alzheimer's Association workgroups on diagnostic guidelines for Alzheimer's disease. Alzheimers Dement. 7 (3), 263-269 (2011).
- Serrano-Pozo, A., Frosch, M. P., Masliah, E., Hyman, B. T. Neuropathological alterations in Alzheimer disease. Cold Spring Harb Perspect Med. 1 (1), 006189(2011).
- Goate, A., et al. Segregation of a missense mutation in the amyloid precursor protein gene with familial Alzheimer's disease. Nature. 349 (6311), 704-706 (1991).
- Sherrington, R., et al. Cloning of a gene bearing missense mutations in early-onset familial Alzheimer's disease. Nature. 375 (6534), 754-760 (1995).
- Levy-Lahad, E., et al. A familial Alzheimer's disease locus on chromosome 1. Science. 269 (5226), 970-973 (1995).
- Mayeux, R., Stern, Y. Epidemiology of Alzheimer disease. Cold Spring Harb Perspect Med. 2 (8), (2012).
- Corder, E. H., et al. Gene dose of apolipoprotein E type 4 allele and the risk of Alzheimer's disease in late onset families. Science. 261 (5123), 921-923 (1993).
- Yu, J. T., Tan, L., Hardy, J. Apolipoprotein E in Alzheimer's disease: an update. Annu Rev Neurosci. 37, 79-100 (2014).
- Lambert, J. C., et al. Genome-wide association study identifies variants at CLU and CR1 associated with Alzheimer's disease. Nat Genet. 41 (10), 1094-1099 (2009).
- Liu, D., Niu, Z. X. The structure, genetic polymorphisms, expression and biological functions of complement receptor type 1 (CR1/CD35). Immunopharmacol Immunotoxicol. 31 (4), 524-535 (2009).
- Jacquet, M., et al. Deciphering complement receptor type 1 interactions with recognition proteins of the lectin complement pathway. J Immunol. 190 (7), 3721-3731 (2013).
- Pham, B. N., et al. Analysis of complement receptor type 1 expression on red blood cells in negative phenotypes of the Knops blood group system, according to CR1 gene allotype polymorphisms. Transfusion. 50 (7), 1435-1443 (2010).
- Cosio, F. G., Shen, X. P., Birmingham, D. J., Van Aman, M., Hebert, L. A. Evaluation of the mechanisms responsible for the reduction in erythrocyte complement receptors when immune complexes form in vivo in primates. J Immunol. 145 (12), 4198-4206 (1990).
- Krych-Goldberg, M., Moulds, J. M., Atkinson, J. P. Human complement receptor type 1 (CR1) binds to a major malarial adhesin. Trends Mol Med. 8 (11), 531-537 (2002).
- Cohen, J. H., Geffriaud, C., Caudwell, V., Kazatchkine, M. D. Genetic analysis of CR1 (the C3b complement receptor, CD35) expression on erythrocytes of HIV-infected individuals. Aids. 3 (6), 397-399 (1989).
- Rogers, J., et al. Complement activation by beta-amyloid in Alzheimer disease. Proc Natl Acad Sci USA. 89 (21), 10016-10020 (1992).
- Rogers, J., et al. Peripheral clearance of amyloid beta peptide by complement C3-dependent adherence to erythrocytes. Neurobiol Aging. 27 (12), 1733-1739 (2006).
- Krych-Goldberg, M., Atkinson, J. P. Structure-function relationships of complement receptor type 1. Immunol Rev. 180, 112-122 (2001).
- Klickstein, L. B., et al. Human C3b/C4b receptor (CR1). Demonstration of long homologous repeating domains that are composed of the short consensus repeats characteristics of C3/C4 binding proteins. J Exp Med. 165 (4), 1095-1112 (1987).
- Hourcade, D., Miesner, D. R., Atkinson, J. P., Holers, V. M. Identification of an alternative polyadenylation site in the human C3b/C4b receptor (complement receptor type 1) transcriptional unit and prediction of a secreted form of complement receptor type 1. J Exp Med. 168 (4), 1255-1270 (1988).
- Krych, M., Hourcade, D., Atkinson, J. P. Sites within the complement C3b/C4b receptor important for the specificity of ligand binding. Proc Natl Acad Sci USA. 88 (10), 4353-4357 (1991).
- Krych-Goldberg, M., et al. Decay accelerating activity of complement receptor type 1 (CD35). Two active sites are required for dissociating C5 convertases. J Biol Chem. 274 (44), 31160-31168 (1999).
- Klickstein, L. B., Barbashov, S. F., Liu, T., Jack, R. M., Nicholson-Weller, A. Complement receptor type 1 (CR1, CD35) is a receptor for C1q. Immunity. 7 (3), 345-355 (1997).
- Ghiran, I., et al. Complement receptor 1/CD35 is a receptor for mannan-binding lectin. J Exp Med. 192 (12), 1797-1808 (2000).
- Cornillet, P., Philbert, F., Kazatchkine, M. D., Cohen, J. H. Genomic determination of the CR1 (CD35) density polymorphism on erythrocytes using polymerase chain reaction amplification and HindIII restriction enzyme digestion. J Immunol Methods. 136 (2), 193-197 (1991).
- Moulds, J. M., Nickells, M. W., Moulds, J. J., Brown, M. C., Atkinson, J. P. The C3b/C4b receptor is recognized by the Knops, McCoy, Swain-langley, and York blood group antisera. J Exp Med. 173 (5), 1159-1163 (1991).
- Moulds, J. M., Moulds, J. J., Brown, M., Atkinson, J. P. Antiglobulin testing for CR1-related (Knops/McCoy/Swain-Langley/York) blood group antigens: negative and weak reactions are caused by variable expression of CR1. Vox Sang. 62 (4), 230-235 (1992).
- Wilson, J. G., et al. Identification of a restriction fragment length polymorphism by a CR1 cDNA that correlates with the number of CR1 on erythrocytes. J Exp Med. 164 (1), 50-59 (1986).
- Wong, W. W., et al. Structure of the human CR1 gene. Molecular basis of the structural and quantitative polymorphisms and identification of a new CR1-like allele. J Exp Med. 169 (3), 847-863 (1989).
- Herrera, A. H., Xiang, L., Martin, S. G., Lewis, J., Wilson, J. G. Analysis of complement receptor type 1 (CR1) expression on erythrocytes and of CR1 allelic markers in Caucasian and African American populations. Clin Immunol Immunopathol. 87 (2), 176-183 (1998).
- Rowe, J. A., et al. Erythrocyte CR1 expression level does not correlate with a HindIII restriction fragment length polymorphism in Africans; implications for studies on malaria susceptibility. Genes Immun. 3 (8), 497-500 (2002).
- Birmingham, D. J., et al. A polymorphism in the type one complement receptor (CR1) involves an additional cysteine within the C3b/C4b binding domain that inhibits ligand binding. Mol Immunol. 44 (14), 3510-3516 (2007).
- Venter, J. C., et al. The sequence of the human genome. Science. 291 (5507), 1304-1351 (2001).
- Dwight, Z., Palais, R., Wittwer, C. T. uMELT: prediction of high-resolution melting curves and dynamic melting profiles of PCR products in a rich web application. Bioinformatics. 27 (7), 1019-1020 (2011).
- Brouwers, N., et al. Alzheimer risk associated with a copy number variation in the complement receptor 1 increasing C3b/C4b binding sites. Mol Psychiatry. 17 (2), 223-233 (2012).
- Hazrati, L. N., et al. Genetic association of CR1 with Alzheimer's disease: a tentative disease mechanism. Neurobiol Aging. 33 (12), 2945-2949 (2012).
- Mahmoudi, R., et al. Alzheimer's disease is associated with low density of the long CR1 isoform. Neurobiol. Aging. 36, 1712-1765 (2015).
- Helgeson, M., Swanson, J., Polesky, H. F. Knops-Helgeson (Kna), a high-frequency erythrocyte antigen. Transfusion. 10 (3), 137-138 (1970).
重印与许可
