本文介绍了一种制备胰腺癌细胞与成纤维细胞三维(3D)球体共培养物的方法,随后利用细胞外通量分析仪测定其代谢功能。
本文内容
摘要
摘要
多种癌症类型(包括胰腺癌)均具有致密的纤维化间质,这种间质在肿瘤进展和侵袭过程中发挥着重要作用。活化的癌症相关成纤维细胞是肿瘤间质的关键组分,可与癌细胞相互作用并支持其生长与存活。能够模拟癌细胞与活化成纤维细胞相互作用的模型,是研究间质生物学特性以及抗肿瘤药物开发的重要工具。本文描述了一种快速生成稳定的三维(3D)胰腺癌细胞与活化胰腺成纤维细胞共培养类球体的方法,可用于后续的生物学研究。此外,还介绍了利用三维类球体结合细胞外通量分析仪和类球体微孔板,开展功能性代谢检测以探究细胞生物能量通路的方法。胰腺癌细胞(Patu8902)与活化的胰腺成纤维细胞(PS1)通过生物相容性纳米颗粒组装技术进行共培养并磁化。磁化后的细胞在生长培养基中,利用磁力驱动以96孔板格式快速进行生物打印,在5至7天内形成直径为400–600 µm的类球体。随后,采用细胞外通量技术对Patu8902-PS1类球体进行功能性代谢检测,以分析细胞能量代谢通路。本方法操作简便,可稳定生成癌细胞-成纤维细胞共培养类球体,且在优化现有方法后,有望适用于其他类型的癌细胞研究。
引言
在过去的十年中,大量 体外 已开发出三维模型以模拟并研究 体内 肿瘤生物学、肿瘤微环境及癌细胞生长条件1,2二维(2D)单层细胞培养系统中,细胞对生化因子和实验化合物的暴露是均匀的,无法模拟天然三维(3D)肿瘤-基质相互作用,后者暴露于化合物浓度梯度中,这些化合物通过细胞外基质蛋白(ECM)扩散形成梯度分布3,4因此,与二维组织培养模型相比,三维癌症模型在模拟肿瘤微环境方面展现出更优的潜力,并已成为深入理解肿瘤生物学的重要工具 体内 肿瘤特征,如缺氧、间质增生、休眠、药物渗透性、毒性和治疗耐药性5,6为此,三维模型有望通过模拟二维细胞培养与整体动物模型之间的复杂环境,弥合二者之间的差距 体内 肿瘤特征,同时成本相对较低,且优化了快速生成与一致性。这些优势正被用于加速多个领域的转化研究,包括癌症生物学、形态发生和组织工程7,8.
随着三维组织培养技术的快速发展,磁力悬浮技术近年来已被开发并用于多种细胞来源的球状体的培养、检测与成像9,10,11,12。磁性三维生物打印技术利用磁力,通过生物相容性纳米颗粒对细胞进行磁化,并将其以多孔板形式进行打印,从而实现组织工程。该方法可快速生成高度一致、近乎相同的三维球状体,适用于多种下游生化与生物物理研究应用10。本研究采用一种名为Nanoshuttle(NS)的生物相容性材料,其成分为氧化铁、聚-L-赖氨酸和金纳米颗粒,用于标记胰腺癌细胞和成纤维细胞。NS通过静电作用结合于细胞质膜,目前已知不与任何特异性受体结合,并在一周内从细胞表面释放。该方法仅需极低的磁力(30 pN),足以促使细胞聚集但不会损伤细胞,且不影响细胞活力、代谢或增殖,因此在三维培养中具有极高的生物相容性10,13,14,15。
本研究以胰腺癌为例和模型,描述了三维癌细胞-成纤维细胞球体的生成及其代谢检测方法。从二维培养容器中的细胞开始,我们阐述了利用磁性生物打印技术培养胰腺肿瘤-成纤维细胞共培养球体的条件及其生长过程。所培养的球体随后用于基于细胞外通量分析仪的功能性代谢检测,该技术已被证实可同时测量多种活细胞和组织中的两大主要能量生成途径——糖酵解和线粒体呼吸16,17,18,19,20。糖酵解通过细胞外酸化率(ECAR)的变化来测定,而线粒体呼吸或氧化磷酸化则通过氧气消耗率(OCR)来测定。我们提出,本研究为胰腺肿瘤球体所建立的方法可作为优化和推广三维肿瘤球体生成与检测技术至其他细胞/组织类型的框架基础。
方案
1. 使用磁性生物打印技术培养胰腺癌三维球体
- 采用标准的无菌组织培养技术,将目标细胞在适当的生长培养基中接种于T75培养瓶,培养至70–80%汇合度。
注意:通常从一个70–80%汇合度的T75培养瓶中收获5–7 × 10⁶个细胞。本研究使用了两种不同的细胞类型——Patu8902(胰腺肿瘤细胞)和PS1细胞(活化的胰腺星状细胞21)。两种细胞系均在添加10%(v/v)胎牛血清(FBS)和1×青霉素-链霉素(p/s)的Roswell Park Memorial Institute 1640培养基(RPMI-1640)中培养。 - 用5 mL杜氏磷酸盐缓冲液(DPBS)洗涤细胞一次。
- 在37 °C条件下,加入2 mL 0.05%胰蛋白酶-EDTA消化5–10分钟,使细胞从塑料表面脱落。在显微镜下观察细胞脱落情况。
- 向已脱落的细胞中加入8 mL生长培养基以终止胰蛋白酶消化。避免过度消化,以免影响细胞的健康状态和存活率。
- 反复吹打细胞以形成单细胞悬液,并使用自动细胞计数仪或血细胞计数板测定细胞密度。
- 同时,将一管NS纳米颗粒置于室温下平衡。
- 根据所需生成的类球体(孔数)数量计算所需细胞量,并将细胞分装至新的15 mL锥形离心管中。例如,若要在96孔板中每孔接种5,000个细胞,则至少分装5.5 × 10⁵个细胞。
- 在500 × g条件下离心3分钟收集细胞。小心吸除或倾倒上清液,并将细胞重悬于生长培养基中,浓度为1.0 × 10⁶ 个细胞/mL。使用宽口移液枪头轻柔吹打,避免剪切损伤。例如,将5.5 × 105个细胞重悬于550 µL生长培养基中。
- 使用已平衡至室温的NS对目标数量的细胞进行磁化(见步骤1.6)。
- 直接将NS加入含细胞的生长培养基悬液中,并轻柔混匀。为实现高效的磁性标记,每100 µL细胞悬液(浓度为1 × 10⁶ 个细胞/mL)使用10 µL NS。
注意:在典型实验中,将5.5×10⁵个Patu8902细胞(550 µL)与55 µL NS混合标记,同时将1.1×10⁶个PS1细胞(1100 µL)与110 µL NS分别标记。 - 轻轻颠倒离心管数次以确保细胞充分混悬。暂时将细胞-NS混合物转移至24孔板中的单个孔内。每种待磁化的细胞类型应分别处理。盖好板后,在室温下轻轻振荡孵育2小时,使NS结合至细胞表面。
注意:在独立实验中,已成功利用该方法分别从单独的Patu8902或PS1细胞起始培养类球体,也实现了将两种细胞预先混合后再通过磁力驱动打印生成共培养类球体。后续步骤将描述由Patu8902和PS2细胞生成共培养类球体的方法。
- 直接将NS加入含细胞的生长培养基悬液中,并轻柔混匀。为实现高效的磁性标记,每100 µL细胞悬液(浓度为1 × 10⁶ 个细胞/mL)使用10 µL NS。
- 轻柔吹打磁化后的细胞,使其均匀混合,并配制含有目标细胞数量的母液。接种类球体时,每孔使用总计15,000个细胞(5,000个Patu8902 + 10,000个PS1),调整总体积至每孔150 µL(96孔板)。
注意:无论使用的细胞数量如何,最终加入每孔的体积必须保持一致。 - 将防细胞黏附的96孔板置于96孔磁力类球体驱动装置上方,并向每孔加入150 µL细胞混合液。观察细胞在磁体上方缓慢聚集至孔中央。盖好板后,在37 °C、5% CO2培养箱中过夜孵育,磁力类球体驱动装置保持连接。随后移除磁力驱动装置,继续孵育培养最多7天。
注意:使用磁力类球体驱动装置进行类球体打印时,必须使用防细胞黏附的培养板。请确保使用配备较薄较小磁体的类球体驱动装置,而非固定用驱动装置。 - 每天监测类球体的生长情况。每三天更换一次新鲜生长培养基:将安装在磁力固定驱动装置上的培养板倾斜,使用多通道移液器吸出废弃培养基。
注意:Patu8902和PS1细胞以每孔15,000个细胞共接种后,可在5–7天内生长为直径400–600 µm的三维类球体。此时类球体可用于代谢表征、药物评价及其他下游应用。
2. 使用细胞外通量分析仪对三维胰腺肿瘤球体进行生物能量学通路的代谢分析
注意:本节描述了使用专为3D球状体设计的检测微孔板和细胞外通量分析仪来分析球状体代谢功能的方法。
- 类球体从培养板向类球体检测微孔板的洗涤与转移
注意:当类球体直径达到约500 µm时,可用于代谢测定。 µm.- 实验前一天,使用检测校准液(200 µL)润湿探针或传感器板条 µL/孔)加入提供的工具板中,并在加湿培养箱中孵育过夜(4–18 小时)(非 CO₂)2) 设置为 37 °C.
- 根据所需的代谢实验,通过在基础培养基(见材料表)中添加 2 mM L-谷氨酰胺用于糖酵解压力测试(GST)实验,或添加 1 mM 丙酮酸、2 mM L-谷氨酰胺和 10 mM 葡萄糖用于线粒体压力测试(MST)实验,来配制相应的实验培养基。
注意:细胞外通量分析仪可检测96孔板中活细胞的线粒体呼吸(OCR)和糖酵解(ECAR)。这些速率可提供所研究样本中细胞代谢功能的总体情况。详细操作步骤请参阅检测试剂盒中的说明书。 - 加入检测特异性添加剂后(参见步骤 2.1.1),将添加了成分的检测培养基在 37 °C 水浴并调节 pH 至 7.4 ± 0.1,用0.1 N NaOH调节。使用前保持培养基温暖。
- 将检测试剂盒试剂用校准的检测培养基重悬至推荐的储备浓度。
注意:这些是在 10 制备的× 孔中所需的最终浓度。葡萄糖、寡霉素和2-脱氧葡萄糖(2-DG)的储备浓度分别为100 mM、100 µM 和 500 mM,分别。 - 在光学显微镜下观察生长板中的球状体,检查其形态及整体均一性,包括球状体的形状和结构。
- 将培养板转移至磁力固定装置上,小心吸除约120 µL液体 µL 生长培养基。用约 120 µL µ加入预热并预先校准的 L 型培养基,吸除液体后重复洗涤两次。再次在显微镜下检查类球体,确保类球体未被洗脱。
- 通过向孔板中加入180 µL的基质液,准备用于球状体检测的微孔板 µ将预热的检测培养基加入各孔中。
- 将P20微量移液器调至10 µL,并安装一个宽孔吸头。如果无宽孔吸头,可用干净的剪刀或手术刀切掉普通移液器吸头的尖端以扩大孔径。
注意:在将类球体转移至检测板时,此操作应减少剪切力,同时保持类球体的整体形态。 - 使用预热的(37 °C) 用于转移类球体的表面。使用经白光灯加热的X射线胶片观察仪表面,以增强对比度,便于在转移过程中观察类球体。
- 使用配有宽孔吸头的P20微量移液器,小心地从细胞防粘培养板中吸取单个预先洗涤过的类球体,并轻柔地将其直接转移至类球体检测板每个孔的中心,以进行代谢检测。让每个类球体仅依靠重力自然沉降至各孔的中央微腔中,完成检测板的加样。
注意:每个球体通常需要5-8秒通过重力作用落入孔的中心。在球体未完全沉降到微孔底部前,请勿拔出移液枪。请勿将球体接种至检测板的四个角孔(A1、A12、H1、H12),因为这些孔将用作背景孔。 - 监测每个球体的形态和位置,确保每个球体位于各孔的中央。如有必要,使用宽孔径移液器吸头吸出球体,随后依靠重力将其重新沉积至孔的中央。
- 待所有类球体转移完毕后,将检测板放入37 °C 湿润空气培养箱(非 CO₂)2在检测前一小时。
- 使用化合物加载传感器微板并执行检测
- 准备 10× 在步骤2.1.2中所述的检测特异性培养基中配制浓缩的检测特异性试剂。例如,进行GST检测时,将葡萄糖、寡霉素和2-DG按照检测说明书推荐的体积进行重悬。GST和MST检测均使用Patu8902-PS1球状体进行。
- 将传感器微板正确放置,使标有 A-H 行的一侧位于左侧,然后将加样引导板置于传感器微板上方。通过调整加样引导板的方向,使待加样的孔所对应的字母位于左上角,以确保正确加载至目标孔。
- 使用多通道移液器,将试剂直接加入进样口。在整个操作过程中,用指尖固定加样导板的位置。
注意:每种试剂应按照检测说明书推荐的加样孔加入。避免产生气泡,但切勿敲击 cartridge 的任何部位以去除气泡。 - 取下加载导板,将其置于与墨盒齐平的视线高度,目视检查注射口是否均匀加载。
- 使用仪器控制器 Wave 软件(以下简称分析软件)创建实验检测设计/仪器操作程序,具体步骤如第 2.3 节所述。
- 使用分析软件进行检测设计与实施
- 为实验创建一个检测模板
- 打开分析软件并点击 "模板" 或从现有的检测模板中选择。双击 "空白模板".
- 定义实验分组与条件。
- 定义端口 A、B 和 C 的注射策略。端口 D 保持空置。
注意:对于 GST 检测,仅这些进样口将加入葡萄糖、寡霉素和 2-DG。对于 MST 检测,则加入寡霉素、FCCP 和鱼藤酮。 - 若类球体经一种或多种测试化合物处理并设有对照组,需明确说明预处理条件。应明确说明检测所用培养基的来源、添加物及其他相关信息。
- 定义一种或多种细胞类型(例如 Patu8902、PS1),查看其密度和传代次数信息。
- 定义端口 A、B 和 C 的注射策略。端口 D 保持空置。
- 点击 "生成分组".
- 点击 "孔板布局图" 点击标签,并根据实验设计为检测板分配分组。
- 选择四个角上的孔作为背景孔,确保这些孔内无类球体存在。
- 为实验创建一个检测模板
- 在分析仪上运行检测
- 单击“仪器操作方案”标签。通过勾选保留默认的操作方案命令 "校准", "平衡" 和 "基础测量循环".
- 点击 "注射" 并为每个加药孔定义化合物。将检测循环次数从默认的3次调整为6次,用于类球体检测。保持默认的3分钟混匀、0分钟等待和3分钟检测时间。
注:默认的混合-等待-检测时间分别为3分钟、0分钟、3分钟。通常在加入第一种检测化合物之前,需进行三次基础速率测量。根据实验设计,这些测量值可进行校准和重新调整。 - 审查方案与组别摘要
- 保存实验设计模板。
- 注射孔中加入检测底物后,即可进行检测前校准。将配套板与微孔板一同转移至细胞外通量分析仪中。
注意:此步骤通常在15-20分钟内完成,用于校准传感器以进行OCR和ECAR测量。 - 在完成进样器校准后,将工具板更换为含有预热3D球状体的检测板,并启动检测。待测量完成后,将数据导出至电子表格或绘图与统计分析软件中进行数据分析。
结果
磁性生物打印与三维球体细胞外通量分析的通用工作流程
图1 展示了本实验方案中所述整个流程的概览。将胰腺癌细胞(Patu8902)和活化的星状细胞(PS1)在含有适当生长培养基的组织培养瓶中培养至70-80%融合度。细胞从二维培养容器中脱离后进行洗涤,测定细胞密度,并最终以1×10⁶ 个细胞/mL的浓度重悬于生长培养基中。NS是一种由金、氧化铁和聚-L-赖氨酸组成的纳米颗粒组装体,用于对细胞进行磁化。分别磁化后的Patu8902和PS1细胞混合后,打印至安装在磁性球体驱动装置上的96孔抗细胞黏附培养板上。我们已优化确定单孔接种总细胞数为15,000个(其中5,000个Patu8902细胞与10,000个PS1细胞混合)以生成单个球体。在适当的组织培养条件下孵育5-7天后获得三维球体,并在此期间对球体的生长情况进行监测和记录。用检测培养基洗涤后,将球体物理转移至球体微孔板中,利用细胞外通量分析仪进行代谢检测,同时测定糖酵解和线粒体呼吸作用。
胰腺肿瘤-成纤维细胞球体的培养与生长
为了获得功能完整且结构稳定的球体,将上皮性癌细胞系 Patu8902 与活化的星状细胞 PS1 在添加胎牛血清的 RPMI-1640 培养基中进行培养。将使用 NS 磁化后的 Pat8902 和 PS1 细胞以 1:2 的比例混合,使每孔接种的总细胞数为 15,000 个,接种于生长板中。在将细胞打印至磁驱动装置后 24 小时内,细胞在每孔下方磁针正上方的位置聚焦于孔的中心。通过在接种细胞后的第 2、4、7 和 9 天进行成像,监测 Patu8902-PS1 球体的生长情况。图 2 显示了上述不同时间点代表性球体平均直径的定量结果。球体直径从打印后第 2 天的 414 µm 增加至第 7 天的 596 µm。第 7 天与第 9 天的生长情况之间无显著差异,因此后续所有实验均限定为球体培养 7 天。我们观察到,随着培养时间的延长,球体形态变得更加清晰,尤其是外缘区域,同时 NS 在球体内部的分布也逐渐更加均匀。我们还基于 10 个球体的长轴与短轴长度估算了其球形度。单独 Patu8902(肿瘤)球体的平均球形度为 0.92 ± 0.04,单独 PS1(间质)球体为 0.95 ± 0.04,共培养球体为 0.94 ± 0.02。
使用细胞外通量分析仪对胰腺三维球体进行功能性代谢检测
为了检测球体的功能性,我们采用代谢和生物能量学分析方法来探究球体中的能量代谢通路。我们对上述培养条件下的球体进行了糖酵解应激测试(glycolysis stress test, GST)。具体而言,分别由Patu8902细胞或PS1细胞单独培养生成的球体,以及两种细胞共培养所形成的球体均接受了该检测。有趣的是,这三种类型的球体,无论来源于单一细胞还是混合细胞,均在GST检测中表现出具有生物学功能的响应。在注入饱和浓度的葡萄糖后,所有检测的球体类型均显示出糖酵解通路的增强,表现为细胞外酸化率(ECAR)的升高(图3)。当使用寡霉素(oligomycin)抑制线粒体ATP生成时,能量生产转向糖酵解,促使细胞达到最大糖酵解能力,表现为ECAR进一步升高。随后使用2-脱氧-D-葡萄糖(2-DG)——一种可竞争性结合己糖激酶的葡萄糖类似物——抑制糖酵解,导致ECAR下降,证实此前ECAR的升高确实源于糖酵解活性。我们注意到,本研究中检测的所有球体均呈现上述反应模式,但仅由PS1细胞形成的球体(平均直径250 µm)信号相对较低,可能与其体积较小及糖酵解能力较Patu8902癌细胞(平均直径600 µm)低有关。总体而言,与体积较小的PS1成纤维细胞来源球体相比,肿瘤细胞来源的球体表现出更高的ECAR信号,这可能归因于癌细胞本身倾向于进行糖酵解的代谢特征22,23。尽管三种球体均通过接种相同数量的细胞获得,但我们观察到不同类型球体在尺寸上存在差异:仅含PS1细胞的球体最小,共培养球体次之,而仅含Patu8902细胞的球体最大。
为了检测三维球状体中的线粒体功能,我们对共培养的球状体进行了线粒体压力测试(MST)分析。MST通过直接测量细胞的耗氧率(OCR)来评估线粒体功能的关键参数(图4A 和 4B)。通过依次注射寡霉素(oligomycin)、FCCP以及鱼藤酮(rotenone)和抗霉素A(antimycin A)的混合物,可测定ATP生成、最大呼吸速率和非线粒体呼吸等关键线粒体参数。这些参数与基础呼吸速率进一步用于计算质子泄漏和备用呼吸能力(图4C)。加入ATP合酶(复合物V)抑制剂寡霉素后,OCR的下降程度反映了与细胞ATP生成相关的线粒体呼吸活性。为确保寡霉素充分渗透并产生有效反应,球状体被孵育较长时间。随后注射解偶联剂FCCP,可刺激细胞达到最大耗氧速率,表现为OCR显著升高。FCCP刺激后的OCR值用于计算备用呼吸能力,该指标反映细胞应对能量需求增加的能力。第三次注射为复合物I抑制剂鱼藤酮与复合物III抑制剂抗霉素A的混合物,可完全阻断线粒体呼吸,表现为OCR急剧下降(图4B)。
总体而言,我们的观察结果证实了使用细胞外通量分析仪检测培养类球体的代谢特征/活性是可行的,该方法可评估其糖酵解和线粒体潜能,具体如上所述。
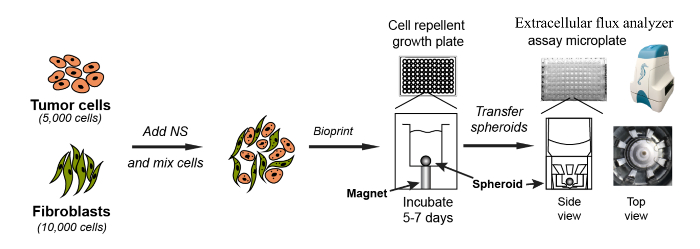
图1.胰腺癌细胞/成纤维细胞类球体培养与检测方法的示意图。 Patu8902 和 PS1 细胞经培养、胰酶消化、洗涤和计数后,用于制备类球体。在第1天,将 Patu8902(5,000 个细胞/孔)和 PS1 成纤维细胞(10,000 个细胞/孔)用纳米磁珠标记(NS),并在抗细胞黏附的培养板上进行磁性生物打印。接种后,将培养板置于磁性类球体驱动装置上(96 孔培养板每孔下方均有一个磁铁),并在培养 2–7 天后形成三维类球体。所得类球体经洗涤后转移至类球体检测微孔板,用于在细胞外通量分析仪上进行代谢检测。请点击此处查看该图的放大版本。
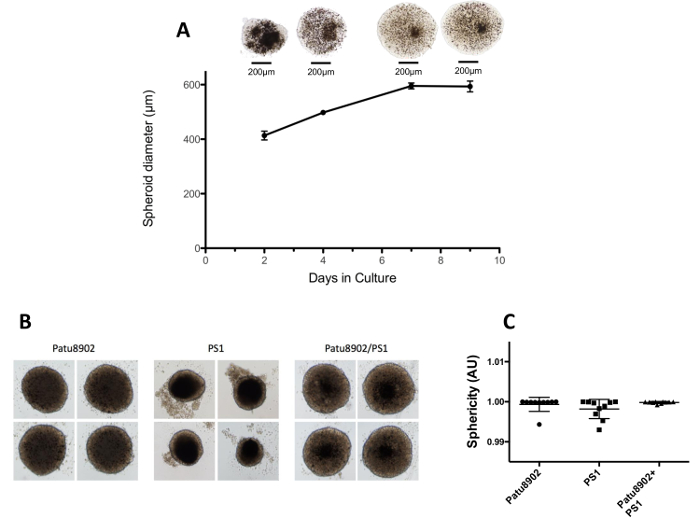
图 2.胰腺肿瘤-成纤维细胞类球体的生长情况。 (A)上方显示的是 Patu8902-PS1 共培养类球体在不同培养时间的代表性图像,下方为类球体直径(µm)的定量结果。从第 2 天到第 7 天,类球体尺寸逐渐增大,且 NS 颗粒(深色点状物)在类球体内部的扩散也愈加明显。类球体在此之后继续培养了额外 2 天,但直径未出现显著增加。(B)显示了来源于肿瘤细胞(Patu8902)、基质细胞(PS1)以及共培养细胞(Patu8902 + PS1)的类球体代表性图像。(C)展示了每组 10 个独立类球体的球形度数据。误差线表示标准差(SD)。请点击此处查看该图的放大版本。
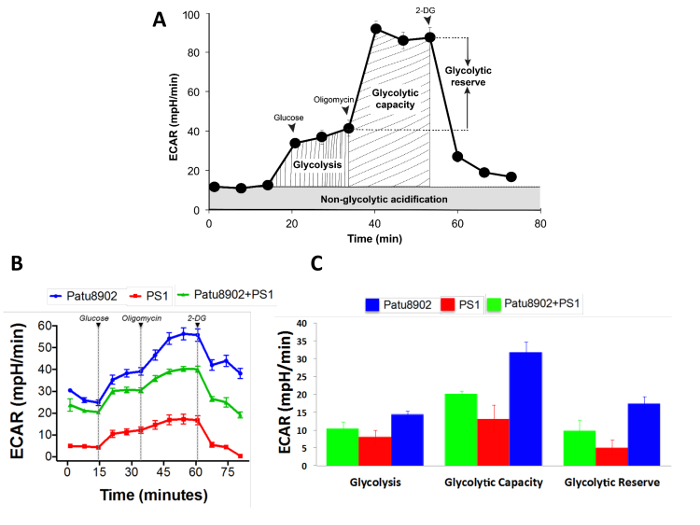
图3.使用胰腺类球体进行糖酵解应激测试(GST)。 (A)典型的糖酵解功能检测示意图,展示了各项检测参数。(B)采用前述培养方法获得的胰腺类球体所进行的GST测试示例。加入葡萄糖后,观察到ECAR升高,表明糖酵解增强;随后加入寡霉素以抑制线粒体呼吸,ECAR进一步上升。加入葡萄糖竞争性类似物2-DG后,由于糖酵解被阻断,ECAR下降。所有类球体均表现出对GST检测的功能性反应。(C)使用厂商提供的报告生成工具输出的GST检测结果,显示了该检测的三个主要参数。误差线表示均值的标准误(SEM)。请点击此处查看该图的放大版本。
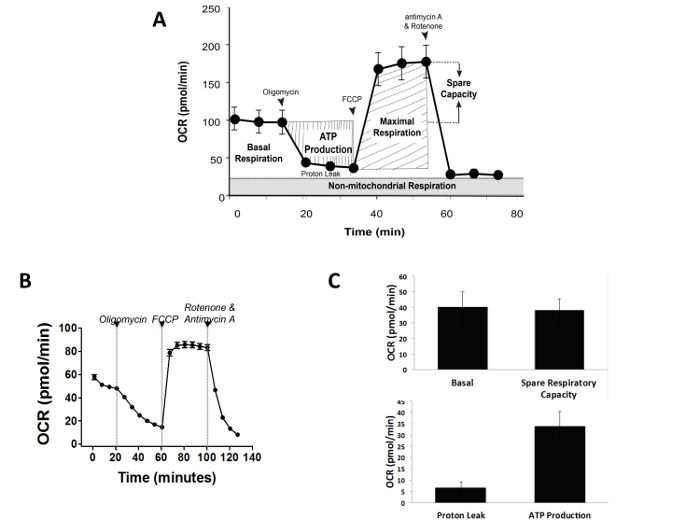
图4. Patu8902-PS1类球体的线粒体应激测试(MST)。 (A)典型的线粒体功能检测示意图,展示了各种检测参数。(B)胰腺肿瘤-成纤维细胞类球体的MST示例。(C)共培养的3D类球体对MST检测表现出功能性反应。如预期所示,在使用ATP合酶抑制剂寡霉素处理类球体后,以氧耗率(OCR)下降为指标的线粒体功能受到抑制。使用FCCP增强电子传递可导致OCR达到最大值,随后在使用线粒体复合物抑制剂混合物阻断线粒体呼吸后,OCR立即下降。误差条表示均值的标准误(SEM)。 请点击此处查看该图的放大版本。
讨论
利用胰腺癌,3rd 美国癌症相关死亡的主要原因24以胰腺癌细胞与活化的胰腺成纤维细胞共培养为例,建立了一种快速且稳定的方法,用于3D球状体的培养与检测。通过磁性生物打印技术,获得了直径为400–600 µm的球状体,并对其进行代谢活性检测,成功验证了所培养3D球状体的功能性。该方法操作简便、重复性好,且可轻松推广应用于其他细胞类型。
尽管该方法将加速并提升使用三维球状体进行检测的转化价值,但通过开发允许对球状体操作和处理进行多重化的新技术,仍有改进空间。这将进一步减少实施检测所需的总体时间、成本和劳动量。此外,已有文献报道可利用球状体体积对氧消耗率(OCR)信号进行归一化处理6。将球状体体积除以单个细胞的平均体积,可用于估算每个细胞的OCR值;但由于球状体的生长情况不尽相同,计算绝对的每细胞OCR值可能存在挑战。目前,该方法受限于缺乏一种高效工具,以实现将球状体从培养板向检测环境的多重化操作与转移。
所述方法经由磁性生物打印技术改进和优化,并进一步通过将培养的球状体应用于下游代谢分析,验证了其功能相关性。该方法提供了一种重要工具,可用于生成稳定、具有活力且功能完整的球状体,其中包含大多数肿瘤组织中的两种主要细胞类型——癌细胞和癌症相关成纤维细胞,这些球状体可被用于其他研究性分析,例如药物筛选。相较于其他方法(如悬滴法)2,26,NS方法在操作简便性和效率方面具有显著优势25。
通过此方法生成的稳定类球体可提供一个 体外 包含基质细胞的肿瘤模型,而基质细胞在许多三维培养研究中常常缺失。以这种方式构建的三维球状体模型具有广泛的应用前景。例如,此类模型可用于研究细胞间相互作用、生物能量学变化,以及检验不同治疗方案的遗传易感性和依赖性。能够模拟肿瘤微环境的三维球状体 体内 肿瘤微环境可作为药物筛选研究以及现有和新型治疗手段作用机制研究中高度相关且实用的工具。利用携带突变细胞的类球体培养物进行探查能量代谢通路的代谢检测,有助于在本研究所述的类球体这一相关的三维癌症模型中,进一步阐明这些基因及其相关通路在肿瘤病理生物学中的作用。
该方法的成功应用首先依赖于用于磁性打印的细胞的健康状态,因此应收获处于对数生长期的细胞并进行磁化。必须使用磁性球体驱动器来打印磁化细胞,而不能使用固定驱动器,后者仅应在所述方法的球体清洗和培养基补充步骤中使用。另一个对代谢检测成功读取结果至关重要的方面是在将球体从生长板转移至检测板的过程中保持其形态完整。
总体而言,本实验方案旨在生成包含癌细胞和基质细胞的三维球体,并利用细胞外通量分析仪对这些球体进行后续代谢检测。该方法的关键优势在于操作快速、易于调整、结果稳定,且具有高度的相关性并能有效模拟体内微环境 体内 肿瘤微环境,成本相对较低,可能成为研究肿瘤生物学和开发抗癌药物的新工具。
披露
作者 George W. Rogers 和 Andrew Neilson 是安捷伦科技(Agilent Technologies)的员工/股东,该公司生产本文所使用的试剂和仪器。其他所有作者声明不存在竞争性经济利益。
致谢
我们感谢 Samuel Zirbel 在优化培养条件和监测类球体生长方面提供的帮助。我们感谢安捷伦科技公司(Agilent Technologies)提供了 Seahorse XFe96 分析仪、检测试剂和技术支持。我们还感谢英国巴茨癌症研究所(Barts Cancer Institute)的 Hemant Kocher 博士提供了 PS1 细胞。本研究部分得到了西娜·马戈维茨胰腺癌研究基金会(Seena Magowitz Foundation for Pancreatic Cancer Research)以及“站出来抗击癌症”-英国癌症研究-拉斯提格滕基金会胰腺癌梦想团队研究基金(Stand Up To Cancer-Cancer Research UK-Lustgarten Foundation Pancreatic Cancer Dream Team Research Grant,基金编号:SU2C-AACR-DT-20-16)的支持。“站出来抗击癌症”(Stand Up To Cancer)是娱乐业基金会的一项项目。研究基金由美国癌症研究协会(American Association for Cancer Research)负责管理,该协会是 SU2C 的科学合作伙伴。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶 EDTA | Sigma | 25300-054 | |
| 96孔细胞防粘附板 | USA Scientific/ Greiner Bio-One | 655970 | 类球体生长板 |
| Cellometry 细胞计数板 | Nexcelom | CHT4-SD100-002 | |
| D-葡萄糖 | Sigma | D9434 | |
| DPBS | Gibco | 14190-144 | |
| 糖酵解应激测试试剂盒 | 安捷伦科技 | 103020-100 | |
| L-谷氨酰胺 | Sigma | 59202C | |
| 线粒体 应激测试试剂盒 | 安捷伦科技 | 103015-100 | |
| n3D 磁性球体驱动器 | Nano3D Bioscience | 655841 | 部分内容 类器官生物打印 试剂盒 |
| n3D 磁性球体固定驱动装置 | Nano3D Bioscience | 655841 | 部分内容 类器官生物打印 试剂盒 |
| n3D NanoShuttle-PL | Nano3D Bioscience | 655841 | 球形体生物打印的一部分 试剂盒: 4°C 保存 °C |
| Patu8902 细胞 | 实验室库存 | 胰管腺癌细胞 | |
| PS1细胞 | 实验室库存 | 活化的胰腺星状细胞 | |
| RPMI1640 | Gibco | 11875-093 | 细胞和类球体的培养基 |
| SeaHorse XFe96 孔细胞外通量分析仪 | 安捷伦科技 | 细胞外通量分析仪 | |
| 丙酮酸钠 | Sigma | S8636 | |
| XF 基础培养基 | 安捷伦科技 | 102365-100 | XF代谢测定用基础培养基e96 |
参考文献
- Nyga, A., Cheema, U., Loizidou, M. 3D tumour models: Novel in vitro approaches to cancer studies. J Cell Commun Signal. 5 (3), 239-248 (2011).
- Ware, M. J., et al. Generation of an in vitro 3D PDAC stroma rich spheroid model. Biomaterials. 108, 129-142 (2016).
- Zhang, S. Beyond the Petri dish. Nat Biotechnol. 22 (2), 151-152 (2004).
- Cukierman, E., Pankov, R., Stevens, D. R., Yamada, K. M. Taking cell-matrix adhesions to the third dimension. Science. 294, New York, N.Y. November 1708-1712 (2001).
- Imamura, Y., et al. Comparison of 2D- and 3D-culture models as drug-testing platforms in breast cancer. Oncol Rep. 33 (4), 1837-1843 (2015).
- Jiang, L., et al. Reductive carboxylation supports redox homeostasis during anchorage-independent growth. Nature. 532 (7598), 255-258 (2016).
- Yamada, K. M., Cukierman, E. Modeling Tissue Morphogenesis and Cancer in 3D. Cell. 130 (4), 601-610 (2007).
- Pampaloni, F., Reynaud, E. G., Stelzer, E. H. K. The third dimension bridges the gap between cell culture and live tissue. Nat Rev Mol Cell Biol. 8 (10), 839-845 (2007).
- Souza, G. R., et al. Three-dimensional tissue culture based on magnetic cell levitation. Nat Nanotech. 5 (4), 291-296 (2010).
- Haisler, W. L., Timm, D. M., Gage, J. A., Tseng, H., Killian, T. C., Souza, G. R. Three-dimensional cell culturing by magnetic levitation. Nat Protoc. 8 (10), 1940-1949 (2013).
- Tseng, H., et al. A spheroid toxicity assay using magnetic 3D bioprinting and real-time mobile device-based imaging. Sci Rep. 5, 13987(2015).
- Tseng, H., et al. Luminescent Viability Assays in Magnetically Bioprinted 3D Cultures. , Promega Corporation. Updated (Figure 1) 1-9 (2015).
- Tseng, H., et al. Assembly of a three-dimensional multitype bronchiole coculture model using magnetic levitation. Tissue Eng Part C Methods. 19 (9), 665-675 (2013).
- Daquinag, A. C., Souza, G. R., Kolonin, M. G. Adipose tissue engineering in three-dimensional levitation tissue culture system based on magnetic nanoparticles. Tissue Eng Part C, Methods. 19 (5), 336-344 (2013).
- Tseng, H., et al. A three-dimensional co-culture model of the aortic valve using magnetic levitation. Acta Biomat. 10, 173-182 (2013).
- Nicholls, D. G., Darley-Usmar, V. M., Wu, M., Jensen, P. B., Rogers, G. W., Ferrick, D. a Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. (46), e3-e7 (2010).
- Wang, R., et al. The Acute Extracellular Flux (XF) Assay to Assess Compound Effects on Mitochondrial Function. J Biomol Screening. 20 (3), 422-429 (2015).
- Gibert, Y., McGee, S. L., Ward, A. C. Metabolic profile analysis of zebrafish embryos. J Vis Exp. (71), e4300(2013).
- Mookerjee, S. A., Brand, M. D. Measurement and Analysis of Extracellular Acid Production to Determine Glycolytic Rate. J Vis Exp. (106), e53464(2015).
- Traba, J., Miozzo, P., Akkaya, B., Pierce, S. K., Akkaya, M. An Optimized Protocol to Analyze Glycolysis and Mitochondrial Respiration in Lymphocytes. J Vis Exp. (117), e54918(2016).
- Froeling, F. E. M., et al. Organotypic culture model of pancreatic cancer demonstrates that stromal cells modulate E-cadherin, beta-catenin, and Ezrin expression in tumor cells. Am J Pathol. 175 (2), 636-648 (2009).
- Kim, J. W., Dang, C. V. Cancer's molecular sweet tooth and the warburg effect. Cancer Res. 66 (18), 8927-8930 (2006).
- Holley, A. K., Dhar, S. K., St. Clair, D. K. Curbing cancer's sweet tooth: Is there a role for MnSOD in regulation of the Warburg effect. Mitochondrion. 13 (3), 170-188 (2013).
- Siegel, R. L., Miller, K. D., Jemal, A. Cancer statistics, 2017. CA: Cancer J Clinicians. 67 (1), 7-30 (2017).
- Lin, R. Z., Chang, H. Y. Recent advances in three-dimensional multicellular spheroid culture for biomedical research. Biotechnol J. 3 (9-10), 1172-1184 (2008).
- Kelm, J. M., Timmins, N. E., Brown, C. J., Fussenegger, M., Nielsen, L. K. Method for generation of homogeneous multicellular tumor spheroids applicable to a wide variety of cell types. Biotechnol Bioeng. 83 (2), 173-180 (2003).
重印与许可
