本文描述了如何利用远场衍射特征来区分不同种类的线虫。我们比较了139种野生型和108种 "滚轴" 秀丽隐杆线虫 通过使用连续波激光器对单个位置处与时间相关的夫琅禾费衍射特征频率进行平均。
本文内容
摘要
摘要
本文描述了如何利用时间远场衍射特征对线虫进行分类。将单个 C. elegans 悬浮于光学比色皿内的水柱中,使用前表面反射镜将波长为 632 nm 的连续波 HeNe 激光引导穿过比色皿。当光通过比色皿后传播至少 20–30 cm 的显著距离时,可获得有效的远场(夫琅禾费)衍射图样。随着线虫在激光束中游动,衍射图样实时发生变化。将光电二极管置于衍射图样的非中心位置,通过数字示波器实时观察并记录光电二极管输出的电压信号。该过程对 139 条野生型和 108 条"roller" C. elegans 重复进行。野生型线虫在溶液中表现出快速振荡的运动模式。"roller" 线虫的角质层关键组分存在突变,干扰其平滑运动。排除含有饱和和不活动状态的时间段。为比较相对强度,将每个信号取平均后除以其最大值是可行的。对每条线虫的信号进行傅里叶变换,从而揭示每条线虫的频率图谱。对每种类型线虫的信号进行平均处理。野生型与"roller" C. elegans 的平均傅里叶谱明显不同,表明可通过傅里叶分析区分两种不同品系线虫的动态形态。每种线虫品系的傅里叶谱与一个近似模型相符,该模型采用两种不同的二值化线虫形态,对应于运动过程中的特定时刻。实际线虫与模型线虫的平均频率分布包络线验证了模型与实验数据的一致性。该方法可作为多种微小物种进行傅里叶分析的基础,因为每种微生物都具有其独特的傅里叶谱。
引言
该方法比较了运动行为的实验与模拟频率谱 秀丽隐杆线虫 使用两种运动模式差异显著的品系。结果表明,当线虫在水柱中游动时,其频谱依赖于时间变化,因此分析过程无需清晰的显微图像。该方法可实现定量的实时分析,并为传统显微镜获取的图像/视频提供补充信息。夫琅禾费衍射(又称远场衍射)是获取实时衍射数据的基础1,2衍射图样中任意单一点的光强,是线虫轮廓上每一点所发出光叠加的结果。3因此,随时间收集的光强度包含了有关线虫运动的信息。通过分析随时间变化的衍射信号,可以识别相应突变体的特征性运动,因为对运动中涉及的所有频率进行分析能够补充传统的视频分析方法。在此情况下,不同线虫运动之间的特征差异 "滚轴" 和野生型 秀丽隐杆线虫 通过比较两种不同线虫品系的频率谱来确认。
一些先前的特征已通过衍射信号的频率分析得以确认,例如游泳频率2,4。更重要的是,该方法可作为传统显微镜技术的补充,用于在数据采集的同时,在计算机屏幕上实时观察生物体的运动行为。通过分析衍射信号的傅里叶变换信号,可以对具有不同运动模式的线虫进行频率谱的定量分析。
本研究中基于傅里叶变换的衍射技术具有多学科交叉性质,涉及生物学与物理学领域。欠采样引起的衍射长期以来被用于研究生物学5及其他领域的晶体结构。然而,在本实验中,过采样6,7可产生远场衍射图样,从而使生物体位于激光束中心。过采样通常与相位恢复算法结合,用于无透镜成像8,以重构原始物体的图像。当存在散射体(如线虫)时,相位恢复难以实现。时间上的衍射特征足以评估蠕虫运动的关键频率。该方法计算负担较小,提供了一种光学手段来量化运动行为。该技术可轻易适用于分析影响行为的突变或环境条件。
方案
1. C. elegans 的培养与维持
- 制备线虫培养皿。
- 用琼脂溶液填充培养皿,待其凝固后,接种 大肠杆菌 OP50菌株的培养9,10.
- 在每个培养皿中,通过将数条成虫用接种针转移至新鲜的含琼脂培养基的培养皿内,制备起始的成虫线虫群体。 E. coli 斑块。在20 °C的培养箱中维持线虫培养物。
注意:线虫品系可从以下机构获得 秀丽隐杆线虫 基因组中心。本研究使用了野生型N2品系以及表现出滚动表型的OH7547品系(otls199[cat-2::GFP + rgel-1(F25B3.3)::dsRed + rol-6(su1006)])。 - 扩增线虫以备后续培养使用。
- 移除含有培养皿 秀丽隐杆线虫 从温度控制的培养箱中取出一个未使用的生境培养皿,将其与解剖显微镜载物台上的其他样品一同放置。
- 点燃本生灯,将铂金线虫挑针的金属部分置于火焰中直至烧至红热,以进行灭菌。让挑针冷却至室温。在此期间,不得将挑针放置于任何表面或使其接触污染物。
- 轻轻将挑针的尖端接触细菌圈的边缘。这种物质具有黏性,有助于更轻松地挑取单个成年线虫。
- 将最多4条带有卵的线虫转移至含有线虫生长培养基(NGM)琼脂的培养皿中,在20 °C下培养。线虫将产卵,卵将在四天内发育成熟。
- 移动四条成年线虫后,将剩余的线虫放回培养箱。
2. 光学装置(图1)
- 将氦-氖激光器固定在光学工作台的后左角附近,并将其连接至电源。
注意:激光束必须满足过采样要求。C. elegans 的长度约为 1 mm,因此入射到线虫上的激光束直径应大于 2 mm,但不超过 5 mm,以避免衍射图样难以定位。 - 在氦-氖激光器与样品之间放置一个中性密度滤光片,使激光束在到达样品前先穿过该滤光片。
- 使用两个前表面铝制转向镜,构建一个潜望镜系统:将第一面镜子固定在中性密度滤光片之后;将第二面镜子固定在第一面镜子下方约 10 cm 处,以便为激光束的调节以及比色皿的插入留出空间。调整激光束与比色皿的位置,使激光束垂直穿过比色皿。
注意:为实现远场衍射,衍射生物体与光电二极管之间的距离必须远大于生物体本身的尺寸。本实验中,比色皿与光电二极管之间的距离为 20 cm。 - 将光电二极管固定在第二面镜子正对面,使其感光面朝向镜子。
注意:装有线虫的比色皿将使用化学夹具置于两面镜子之间。参见第 4 和第 5 节。 - 将装满水的比色皿放置在支架上。调节支架的高度,并调整镜面 1 和镜面 2 的高度与角度,使激光束穿过比色皿,指向接近但不直接对准光电二极管的位置。
- 使用水平仪确保支架形成一个水平的比色皿支撑面。如有必要,进一步调整镜子。
- 使用数字示波器附带的 USB 线缆将光电二极管连接至数字示波器。再将数字示波器连接至用于记录和保存数据的计算机。
3. 示波器设置
- 使用计算机上的示波器软件,将采样率设置为至少 8 Hz,以充分解析线虫的摆动周期。
注意:采样率应超过该物种预期摆动频率的两倍,以满足奈奎斯特采样定理11。
4. 准备线虫和比色皿以进行数据采集
- 使用一根细的扁平铂丝挑取器,将四条成年线虫转移至一个新制的、盛有NGM10琼脂的培养皿中(参见第1.3节)。
- 从包装中取出一个一次性塑料比色皿,注意仅触碰比色皿的带纹路的侧面。
- 使用微量移液器将蒸馏水加入比色皿,直至比色皿约80%充满蒸馏水。
注意:处理线虫时,必须仅使用蒸馏水或离子缓冲液(如M910或磷酸盐缓冲盐水(PBS)),因为自来水含有可杀死微生物的化合物。 - 将含有待用秀丽隐杆线虫(C. elegans)的培养皿置于解剖显微镜下。
- 使用铂丝挑取器从培养皿中取出一条成熟的秀丽隐杆线虫(C. elegans),并将挑取器浸入比色皿中,必要时可做圆周运动以使线虫脱离。
- 为防止比色皿中产生气泡,加水至液面略高于比色皿口部形成凸面;将比色皿盖完全充满水后,迅速盖紧比色皿。
- 使用光学清洁布擦去可能溢出的水滴,并用光学清洁纸清除任何残留的小水滴。
5. 衍射图样强度变化的实时数据采集
- 打开氦氖激光器,并调节频率/颜色设置,使其产生红色光束。打开传感器。
注意:使用632 nm的低能量光束,因为 C. elegans 会避开高频(蓝色)光12。 - 在比色皿中找到线虫。用手握住比色皿的带棱纹侧面,轻轻倾斜比色皿,使线虫大致位于比色皿中央区域。
注:剧烈摇晃或倾斜比色皿会导致线虫与比色皿壁发生碰撞,可能损伤线虫。- 将比色皿放置在光学系统的支架上,使线虫位于从镜面1反射至镜面2的激光光束中心。务必消除杂散光。
- 将线虫调整至激光光束中心。
- 将光电二极管置于衍射图样中,使光电二极管的位置与衍射图样的中央极大值不重合。
- 调节中性密度滤光片,防止光电二极管饱和。旋转中性密度滤光轮可调节光强。
- 旋转中性密度滤光片,使光电二极管的电压输出增加。
注:通过数字光电二极管的软件观察电压输出。若电压无变化,则表明光电二极管已饱和。此时应继续旋转中性密度滤光片,直至电压下降但未在最低读数处趋于平坦。确保电压信号在峰值读数处不出现平台,否则表明光电二极管饱和。若观察到饱和现象,应通过旋转中性密度滤光轮降低光强。
- 旋转中性密度滤光片,使光电二极管的电压输出增加。
- 当移动的衍射图样可见后,在监测线虫运动的同时,点击控制示波器的软件上的“开始”按钮,使用光电二极管采集数据。持续测量,直至线虫移出激光光束且衍射图样消失,此过程通常持续约20秒。
- 点击示波器软件上的“停止”按钮,结束数据采集过程。将每次试验的数据保存为.csv或.txt格式。
- 重复步骤5.2至5.3,直至每种表型至少收集50组数据。每次试验使用8至10只动物。
- 若比色皿有划痕,则丢弃比色皿和线虫,并重复步骤4。若在转移过程中线虫受损,则丢弃该线虫,并用蒸馏水冲洗比色皿,然后使用同一比色皿重复步骤4。
- 使用OH7547 "Roller"品系重复步骤5,并注意标注数据以标明所用线虫品系。
6. 数据的傅里叶谱
- 将获取的数据导入能够执行离散傅里叶变换的数据分析程序中3。
- 使用软件的快速傅里叶变换(FFT)功能对每个数据集执行傅里叶变换。
- 对N2野生型线虫每种振幅的FFT结果中的频率进行平均。
- 使用OH7547 "roller"线虫的FFT结果,重复步骤6.3。
7. 傅里叶谱的建模
- 编写线虫运动的二进制模型程序(参见补充材料中包含的程序)。
注意:该模型为粗略近似,最初仅展示蠕虫运动的主要特征。随着将模型结果与真实蠕虫进行比较,可进一步优化模型。蠕虫形态是基于显微镜图像的近似表示。13.- 创建二值模型至少经过两个蠕虫周期的连续帧图2a)。参见补充材料中的视频:C型蠕虫视频(CWorm.avi)和W型蠕虫视频(WWorm.avi)。
- 生成连续的衍射图样。参见补充材料中的视频:C型蠕虫衍射视频(CWormDiff.avi)和W型蠕虫视频(WWormDiff.avi)。
- 对蠕虫图像的每个二值帧进行傅里叶变换。围绕蠕虫的帧填充越大,衍射图像的分辨率越高。
注意:每个傅里叶变换帧的绝对值与相应的衍射图样成正比图2b). - 通过将衍射图样的强度映射到对数尺度来调节其对比度。
注意:相机和人眼通常以非线性尺度工作。对数尺度可模拟人眼通常感知衍射图样的方式。
- 对蠕虫图像的每个二值帧进行傅里叶变换。围绕蠕虫的帧填充越大,衍射图像的分辨率越高。
- 提取建模的衍射信号。
- 选择一个偏离中心的位置,该位置对应于衍射图样中光电二极管的位置。
- 将光电二极管位置周围的相邻矩阵元素相加,以模拟光电二极管的尺寸。光电二极管的尺寸通常为所建模衍射图样的0.1%。
- 记录并绘制衍射信号强度的序列图。检查信号是否符合物理规律(即在周期性剧烈运动的情况下,光电二极管的信号也应呈现周期性。
- 对7.3中获得的衍射信号进行傅里叶变换,并将结果与实验数据进行比较。
- 对不同线虫品系重复上述步骤并进行比较。
结果
所示光学实验装置 图1 可在非固定焦平面的条件下对微生物进行研究。光电二极管产生的抽动信号可在计算机屏幕上实时观察,数据采集过程中即可直接显示。异常模式将立即显现,无需对视频进行详细分析。
模拟的线虫连续运动及其对应的衍射图样示例如图2所示。模拟得到的衍射图样在定性上与实验图样1相似,初步表明该模拟成功地再现了线虫的行为。
本研究中两种 C. elegans 的典型时间衍射特征如图3所示。从定性角度来看,每种线虫摆动的频率和振幅均不相同。其中部分差异可通过曲线拟合进行量化,方法如先前发表的研究1所述。然而,离散傅里叶变换能够揭示有关嵌入频率的更多细节:
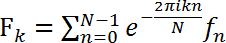 , (1)
其中 Fk 是数字傅里叶变换(FT)以及 fn 是具有离散时间变量的时间依赖原始衍射信号 n 以及离散频率变量 k. N 是数据点的总数。平均数字傅里叶变换可通过线虫衍射频率谱的振幅来实现其鉴定图4野生型的频谱以较低频率为主,而滚动运动的频谱则以较高频率为主。
一种用于近似模拟野生型与滚动型 C. elegans 运动模式的模型表明,野生型通常表现为波浪状(W形或S形)的摆动运动(图2a),而滚动型则倾向于偏向一侧,大致呈现为振荡的C形(图5)。这一差异可部分解释两者频谱的不同。滚动型主要形成单侧的C形运动,而W形振荡可被视为两个方向相反的C形运动。因此,W形运动更为复杂,表现出比C形运动更多的次级低频成分。该结果在计算模型中得到验证:W形的频率密度显著高于C形(图6)。快速傅里叶变换(FFT)分析结果(图4)也证实了这一点,滚动型的频率分布更为集中,但并非完全离散。由于滚动型个体可能暂时恢复为野生型运动模式,其统计特征呈现偏态分布。
C. elegans 滚动类型的平滑功率谱在约 1.5 Hz 处显示一个宽峰,而野生型 C. elegans 的游泳行为则表现出多峰谱型(包括约 1.0 Hz 和 1.75 Hz 处的峰值)。光电二极管(PD)具有有限尺寸,覆盖多个矩阵元素。由于相长和相消干涉的变化,衍射图样中的各个矩阵元素或点的强度各不相同;然而,所有矩阵元素的强度变化频率是相同的,如图 7所示。从时间导数公式(公式 1)可以看出,频率波动仅取决于原始物体的波动,而不依赖于相位矩阵:
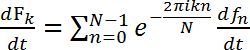 ,(2)
随着相位差在多个矩阵元素上扩散,峰值位置会平均为一致的频率分布。可预期存在一定变异,这些变异可提供关于线虫体向的线索。当线虫步态发生变化时,频率分布也会随之改变。当前模型为简化模型,仅允许分析峰值位置,而非相对峰值高度。不同的运动模式将平均为不同的峰值位置。
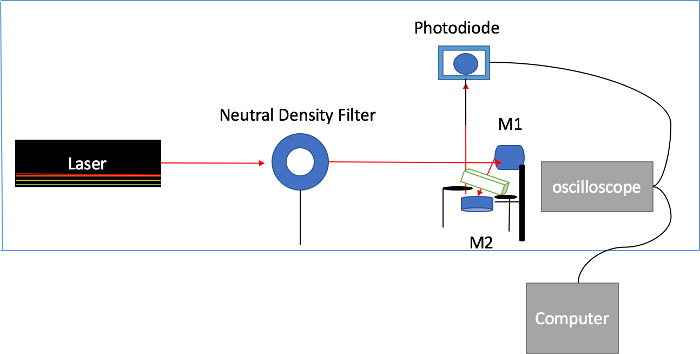
图1. 实验装置。 低功率激光束穿过中性密度滤光片,经由反射镜M1向下反射,穿过含有线虫的比色皿,再经反射镜M2反射后射向光电二极管。 请点击此处查看该图的放大版本。
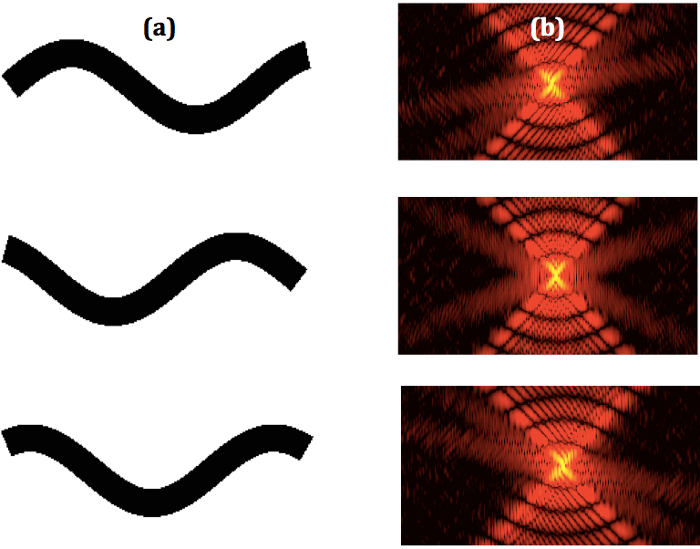
图 2. 连续的蠕虫形态及其对应的衍射图样。 (a)模拟的 W 形线虫的若干连续二值图像,以及(b)相应的连续衍射图样。请点击此处查看该图的高清版本。
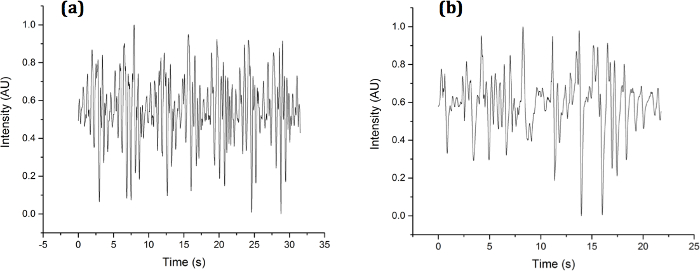
图3. 实验样品的衍射特征图谱 收集的衍射特征用于(a) OH7547“roller”和(bN2 野生型 C. elegans 在衍射图样中使用单个光电二极管. 请点击此处以查看此图的放大版本。
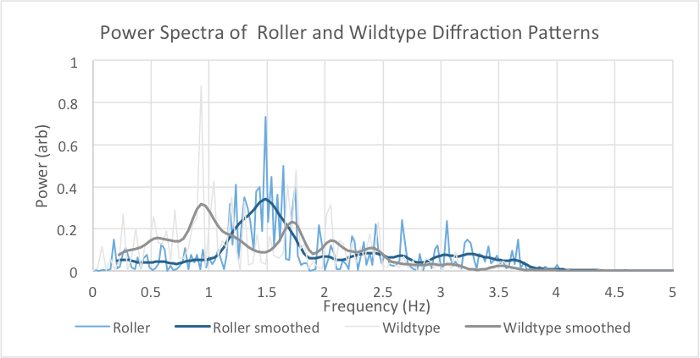
图4. 卷曲型与野生型夫琅禾费衍射序列的实验平均功率谱。 该谱图显示了使用光电二极管记录的时间序列经平均傅里叶变换后所包含的频率成分。采用标准差为0.075 Hz、在3个标准差处截断的高斯滤波器进行平滑处理。请注意,在平滑后的卷曲型谱图中,约1.5 Hz处出现一个宽泛的谱峰,而平滑后的野生型谱图则呈现多峰特征(包括约1.0 Hz和1.75 Hz处的峰)。 请点击此处查看该图的放大版本。
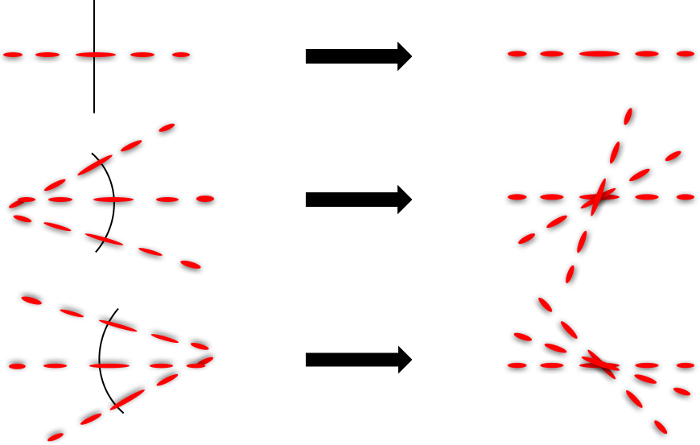
图5. 衍射形成示意图。 衍射图样可以通过将每条线段视为一条无穷小的直线来建模(左)。将这些线段叠加(右),可演示由C形线虫产生的远场衍射图样的形成过程。请点击此处查看该图的放大版本。
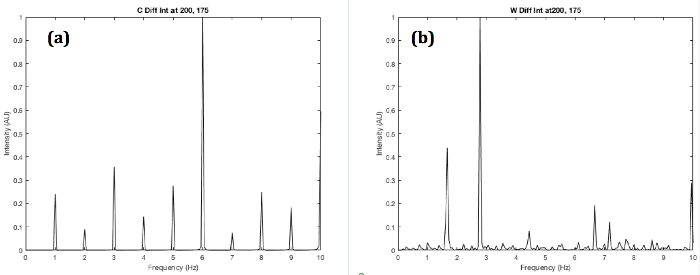
图 6. 滚动突变型与野生型夫琅禾费衍射序列的模拟功率谱。(a)C 形和(b)W 形线虫,光电二极管中心位于矩阵元素 200(垂直方向)和 175(水平方向)。W 形线虫由于运动方式更复杂,表现出更高的频率密度。请点击此处查看该图的放大版本。
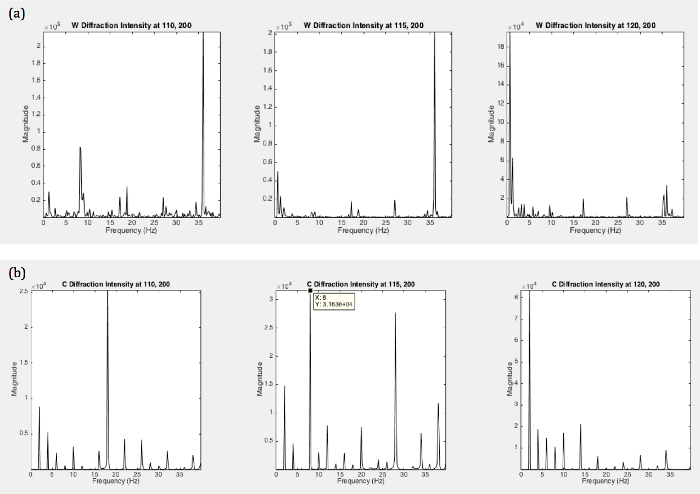
图 7. 在不同光电二极管位置下,滚行(Roller)与野生型(Wild Type)夫琅禾费衍射序列的模拟功率谱。 (a)W 形线虫与(b)C 形线虫在不同位置的单矩阵元素,模拟光电二极管在不同位置的情况。不同位置的峰值高度有所变化;然而,特定形状的峰值位置保持不变。请点击此处查看该图的放大版本。
讨论
包含无活动数据段会扭曲结果,因为人为的低频信号将被平均到结果中。光电二极管饱和可通过原始数据中出现的平坦峰或"截断"峰来识别。将每组原始数据除以峰强度有助于校正激光强度波动带来的影响。
峰值频率是整体扭动频率的指标;然而,复杂的运动会在衍射图样中产生拍频干扰,需要仔细检查。
该方法可用于研究其他线虫的运动行为。环境可更换为其他介质。波长也可进行调整。在电磁波谱的可见光范围内操作最为简便且安全。
未来,更精细的模型将能更真实地模拟衍射光谱。未来的模型可能包含能够改变方向的线虫,这不会影响峰的频率位置,但会影响相对峰高。更真实的模型应允许抽动频率呈概率性分布,从而使峰展宽,与实验数据中的情况一致。频率的分布可以解释抽动频率的个体间差异。
目前的线虫形态较为粗糙,尤其是在头部和尾部区域,这些区域应比当前模型更趋于尖细。对信号的时间序列进行详细分析可能会很有意义,因为这可以为不同突变体中运动复杂性提供线索。
值得考虑将该技术扩展应用于同时表征多种线虫的实用性。应将此方法视为对使用传统显微镜现有方法的一种补充。该方法的优势在于数据采集过程中无需使用显微镜,从而避免了线虫移出焦平面的问题。平均频率谱能够清晰反映线虫运动的差异,并可通过主导频率峰进行量化,这是一种量化线虫运动行为的新方法。对衍射特征的数据分析仍在进一步开发中,有望实现对多种突变体及个体的自动识别。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 Juan Vasquez 在本项目中提供的计算支持。感谢瓦萨学院本科生研究暑期研究所(URSI)、露西·梅纳德·萨蒙研究基金以及美国国家科学基金会资助号 No. 1058385 对本项目的资助与支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 可调谐氦氖激光器 | Research Electro-Optics | 30602 | 可在 543 nm 至 633 nm 之间选择四种波长。 |
| 2 个前表面铝镜 | Thorlabs | PF10-03-F01 | |
| 光电二极管:SI 放大探测器 | Thorlabs | PDA 100A | |
| 石英比色皿 | Starna Cells | 21/G/5 | 也可使用塑料比色皿。 |
| MatLab(软件) | MathWorks | R2016b (9.1.0.441655) | 使用 fft 命令模拟衍射 |
| Excel | Microsoft | 14.7.1 | 用于图 4 的数据分析 |
| Caenorhabditis elegans Roller | 明尼苏达大学秀丽隐杆线虫中心(CGC) | 品系:OH7547 基因型:otIs199。 | https://cbs.umn.edu/cgc/home |
| Caenorhabditis elegans 野生型 | 明尼苏达大学秀丽隐杆线虫中心(CGC) | 品系:N2 基因型:C. elegans 野生分离株 | https://cbs.umn.edu/cgc/home |
参考文献
- Magnes, J., et al. Analysis of Freely Swimming C. elegans Using Laser Diffraction. Open J. Biophys. 2, 101-107 (2012).
- Magnes, J., Raley-Susman, K. M., Eells, R. Quantitative Locomotion Study of Freely Swimming Micro-organisms Using Laser Diffraction. J. Vis. Exp. (68), (2012).
- James, J. F. A Student's Guide to Fourier Transforms with Applications in Physics and Engineering. , Cambridge University Press. Cambridge. (1995).
- Korta, J., Clark, D. A., Gabel, C. V., Mahadevan, L., Samuel, A. D. T. Mechanosensation and mechanical load modulate the locomotory gait of swimming C. elegans. J. Exp. Biol. 210, (2007).
- Martin-Garcia, J. M., Conrad, C. E., Coe, J., Roy-Chowdhury, S., Fromme, P. Serial femtosecond crystallography: A revolution in structural biology. Arch. Biochem. Biophys. 602, 32-47 (2016).
- Thibault, P., Rankenburg, I. C. Optical diffraction microscopy in a teaching laboratory. Amer. J. Phys. 75 (9), 827-832 (2007).
- Miao, J., Ishikawa, T., Anderson, E. H., Hodgson, K. O. Phase retrieval of diffraction patterns from non crystalline samples using the oversampling method. Phys. Rev. B. 67, 174104(2003).
- Zhang, Y. P., Zhang, J. Q., Xu, W. Method for eliminating zero-order diffraction in lensless Fourier transform digital holography. Optik - International Journal for Light and Electron Optics. 124 (21), 4873-4875 (2013).
- Brody, A. H., Chou, E., Gray, J. M., Pokrywka, N. J., Raley-Susman, K. M. Mancozeb-induced behavioral deficits precede structural neural degeneration. NeuroToxicology. 34, 74-81 (2013).
- Stiernagle, T. The C. elegans Research Community. Maintenance of C. elegans. WormBook. , (2006).
- Dasalukunte, D., Öwall, V., Rusek, F., Anderson, J. B. Faster than Nyquist Signaling. Algorithms to Silicon. , Springer International Publishing. Switzerland. (2014).
- Edwards, S. L., et al. A novel molecular solution for ultraviolet light detection in Caenorhabditis elegans. PLoS Biol. 6 (8), e198(2008).
- Bilbao, A., Wajnryb, E., Vanapalli, S. A., Blawzdziewicz, J. Nematode Locomotion in Confined and Unconfined Fluids. Phys. Fluids. 25, 081902(2013).
重印与许可
