在本方案中,使用荧光标记的 T. cruzi 被注入透明的斑马鱼幼鱼体内,并观察了寄生虫的运动性 体内 使用光片荧光显微镜。
方法文章
建立幼体斑马鱼作为研究动物模型 克氏锥虫 运动性 在体 内
* These authors contributed equally
本文内容
摘要
摘要
恰加斯病是一种由寄生虫感染引起的疾病 克氏锥虫,其运动性不仅对定植至关重要,还影响细胞的黏附与侵袭。目前用于研究的动物模型 T. cruzi 允许对寄生虫进行有限观察 体内 对理解寄生虫在人类感染初期阶段的行为构成了挑战。该原生动物在节肢动物媒介和哺乳动物宿主中均具有鞭毛阶段,但目前尚无研究描述其运动特性。 体内本项目旨在建立一种活体脊椎动物斑马鱼模型,用于评估 T. cruzi 血管系统中的运动性。将荧光标记的上鞭毛体注射到透明的斑马鱼幼鱼中,并利用光片荧光显微镜(LSFM)进行观察,该方法是一种可对活体生物进行高光学分辨率成像的非侵入性技术。由于该技术与共聚焦或落射荧光显微镜相比光损伤风险相对较低,因此可实现对寄生虫长时间的可视化观察。 T. cruzi 寄生虫被观察到在活体斑马鱼不同大小的血管及卵黄中移动。尽管存在心脏收缩带来的强大作用力,仍可观察到它们附着在卵黄囊壁及房室瓣上。LSFM的 T. cruzi接种后的斑马鱼幼鱼是一种有价值的方法,可用于在活体动物心血管系统的动态环境中观察循环寄生虫,并评估其趋向性、迁移模式和运动能力。
引言
恰加斯病由原虫寄生虫T. cruzi引起。全球约有600万至700万人感染T. cruzi。该疾病主要在拉丁美洲传播,但由于感染者迁移,美国、加拿大、许多欧洲国家以及部分西太平洋国家也已有病例报道1。恰加斯病主要通过媒介传播,人类因接触猎蝽亚科(Triatominae)吸血昆虫的粪便而感染,这类昆虫俗称"接吻虫"。然而,T. cruzi也可通过输血、母婴垂直传播或摄入被寄生虫污染的食物而传播2。感染的急性期通常无症状或表现为持续性症状,持续时间为6至8周;此后免疫系统被激活,可控制寄生虫负荷,但无法完全清除感染3。大多数感染者随后进入慢性无症状阶段;然而,近30%的患者会发展为有症状的慢性期,表现为心脏系统受累,较少情况下消化系统和神经系统也会受损4。目前尚无可用疫苗,且仅有两种有效药物可用于治疗恰加斯病:苯硝唑和硝呋莫司,这使得该病的治疗与防控面临挑战。两种药物均需长期服用,且可能产生严重不良反应2。
对行为的深入理解 T. cruzi 行为 体内 对于确定寄生虫在宿主内的迁移、细胞附着及侵入过程至关重要;缺乏 体内 模型的局限性制约了新型治疗策略的开发。 体外 研究 T. cruzi 感染研究表明,锥虫动质体的运动能力对其与宿主细胞膜的结合及随后的细胞侵入至关重要5在与易感细胞系共培养时,克氏锥虫无鞭毛体的能量耗竭已被证明可降低其细胞侵袭能力6有趣的是,在锥虫科生物中,鞭毛运动还被描述为一种逃避寄生虫特异性抗体的机制7.
鞭毛运动性已被广泛研究 体外 在 布氏锥虫,一种引起非洲锥虫病的近缘寄生虫8. 体外 对这些锥虫运动性的研究表明,模拟血液或体液的条件(包括黏度以及代表血细胞的障碍物)对于寄生虫的前向运动至关重要9目前尚无法观察寄生虫在血液中的运动情况 体内.
斑马鱼幼鱼是研究体内宿主-病原体相互作用的有力模型。与其他已建立的恰加斯病脊椎动物模型相比,它们体型小、成本低且相对易于饲养in vivo。斑马鱼具有与人类相似的先天性和适应性免疫系统,但其适应性免疫系统在受精后4天(dpf)才开始发育,并需再经过数周才能成熟10。在早期发育阶段,体内仅存在巨噬细胞,此时可提供较长时间窗口以研究寄生虫行为,而不受免疫系统的即时干扰10。然而,利用斑马鱼幼鱼作为研究病原体行为的脊椎动物模型的最大优势在于其光学透明性,使其适用于显微筛选和成像分析11。此外,还有多种工具可用于操控鱼类的遗传背景。例如,Casper品系是一种无色素的斑马鱼突变系,个体完全透明,便于观察单个器官以及对注射的细胞进行实时追踪12。
利用共聚焦或落射荧光显微镜对活体斑马鱼中快速移动的寄生虫进行纵向观察时,一个关键限制在于无法在保证图像质量良好且光损伤风险较低的同时,实现高速采集和大穿透深度的成像。光片荧光 micsroscopy(LSFM)是一种新兴的成像技术,能够克服这些限制,从而实现此类观察。该技术通过一个物镜检测荧光信号,同时使用另一个正交放置的照明物镜仅照射检测物镜的焦平面,因此可以获得与共聚焦显微镜相当的高分辨率光学切片,但光损伤显著降低,甚至优于落射荧光显微镜13。本文所采用的LSFM技术称为单平面照明显微镜(SPIM),其通过一束薄层光照射斑马鱼幼鱼内部的单一平面来实现成像。
本方法学的目标是建立幼年斑马鱼作为理解T. cruzi在体内(in vivo)运动性及相关行为的可行非感染性模型。为实现这一目标,我们将带有荧光标记的上鞭毛体(负责人类感染的细胞形态)注射入透明的斑马鱼幼体中,并利用光片显微镜(LSFM)鉴定T. cruzi在斑马鱼心血管循环中的运动情况。
方案
以下方案已获得洛斯安第斯大学机构动物护理与使用委员会(CICUAL)的批准。应严格遵守生物安全二级(BSL-2)指南,以防止病原体 T. cruzi 的污染。
注意:动物护理与维护: Casper zebrafish 是一种基因改造的斑马鱼品系 (Danio rerio),由于其在所有发育阶段均具有优异的光学透明性,本方案中采用该品系。鱼类在符合物种最佳护理条件的环境中操作14,光照周期为14小时光照-10小时黑暗,温度维持在28 ± 1 °C,饲养于pH值控制在7.0–7.4的多缸循环水系统中。动物每日投喂两次活体丰年虾(Artemia salina),并补充幼体饲料。所有实验方案均经安第斯大学CICUAL批准(C.FUA_14-017)。
1. 卵水的制备
- 在反渗透(RO)或去离子(DI)水中配制 0.6 g/L 的水族馆盐溶液,并向其中加入 0.01 mg/L 的亚甲蓝。
注意:溶液的电导率应为 400–500 µS/cm,pH 值应为 7.2–7.9。若需降低 pH,可将卵水曝气数小时。
2. 三卡因储备液的制备
- 通过将400 mg三卡因(MS-222)溶解于97.9 mL蒸馏水(ddH2O)中,配制0.4%三卡因储备液。待粉末完全溶解后,加入2.1 mL 1M Tris(pH 9.0)调节pH至7.0,并将溶液冷藏保存。
3. 1.0% 低熔点琼脂糖的制备
- 将低熔点琼脂糖粉末溶于蛋水中,终浓度为1.0%。使用微波炉或加热板持续搅拌加热,直至琼脂糖溶液呈现均匀状态。
- 将分装的溶液在4 °C保存,保存时间不超过一周。
4. 交配实验与胚胎收集
- 注射前3天,使用健康的雌雄鱼对在繁殖缸中设置交配。添加玻璃弹珠和人工植物可促进产卵。交配应在下午设置,并过夜保留。
- 次日上午,通过滤网将水排出并用胚胎水清洗卵,收集已产的卵。通过倒置滤网并将胚胎水经滤网倒入培养皿中,以完全收集卵。为保持胚胎健康,使用移液塑料吸管清除碎屑和死亡胚胎,定期清洁水质。
- 将胚胎转移至恒温28.5 °C的培养箱中,使其按照斑马鱼发育分期标准进行发育15。每天检查胚胎两次,并剔除不可存活的卵,以维持种群健康。
5. 胚胎去壳
注意:如果胚胎在注射时尚未孵化,则需要进行此操作。在此操作中,“幼鱼”指受精后48小时(hpf)及以后已从绒毛膜中孵出的动物。
- 实验当天,将含有健康胚胎的培养皿置于解剖立体显微镜下。
- 使用两把尖头镊子(Dumont #5)夹住卵膜相对的两端,轻轻撕开并拉开卵膜。每次注射约5-6条幼鱼,通常成像3-4条。
- 用移液管将卵膜从水中移除。
6. 准备注射材料
- 使用薄壁玻璃毛细管和微电极拉制仪,按照以下参数制备1.0 mm的注射针:2个轻砝码 + 1个重砝码,顶部拉制2 mm + 底部拉制5 mm,第一步温度75.9 °C + 第二步温度78.2 °C。将制备好的注射针存放于培养皿中的模型胶条上。理想的注射针应具有较细的尖端,因为T. cruzi的大小约为20 x 1-3 µm,可顺利通过针尖。尖端长度可有所变化:较长的尖端有助于到达更深的结构,而较短的尖端则更坚固,便于操作者进行注射。
注意:针尖尺寸取决于所用温度,第二步温度越高,所得针尖越长且越细。 - 在ddH2O中配制1.5%的琼脂糖溶液,并倒入10 cm的培养皿中,覆盖约1.0 cm的深度。
- 将预制的显微注射模具置于琼脂糖表面,待其凝固。
- 小心取出预制的显微注射模具,并加入胚胎用水,于4 °C保存。此举可防止琼脂糖干燥。
- 向三卡因储备液中加入胚胎用水,使其终浓度为150 mg/L。4 °C保存备用。
7. 寄生虫增殖的细胞培养
- 采用 Vargas-Zambrano 等16 所描述的方法,在人源星形胶质细胞瘤细胞系(CRL-1718)中维持寄生虫培养。
- 在 T25 培养瓶(表面积 = 25 cm2)中接种人源细胞,以 2 × 10⁵ 或 4 × 10⁵ 个细胞密度加入 4 mL RPMI-1640 培养基,培养基中含 10% 胎牛血清(FCS),并补充 2 mM L-谷氨酰胺、4.5 g/L 葡萄糖、10 mM HEPES、1 mM 丙酮酸钠和 1% 青霉素-链霉素(以下简称“完全培养基”)。将星形胶质细胞培养物置于 37 °C、5% CO2 环境中孵育。
- 待细胞形成融合单层后,加入 2 mL 0.25% 胰蛋白酶-EDTA 溶液,于 37 °C 孵育 3 分钟以消化细胞使其脱离。在显微镜下观察细胞脱落情况,随后在 15 mL 离心管中加入 3 mL 含 10% FCS 的 RPMI-1640 培养基以中和胰蛋白酶活性。
- 将细胞悬液在 1,350 × g 条件下离心 5 分钟。
- 将所得细胞沉淀在 15 mL 离心管中用 DMEM 培养基洗涤一次,并在 22 °C 下以 1,350 × g 离心 5 分钟。
- 使用血细胞计数板人工计数细胞,并在光学显微镜下以 40 倍物镜检查细胞活力。
- 将细胞沉淀轻柔重悬于 4 mL 完全培养基中,按每瓶 T25 培养瓶接种 2 × 10⁵ 个细胞的比例进行传代培养。
8. T. cruzi 培养与标记
- 寄生虫为最初从感染者体内分离获得的品系,并被鉴定为 T. cruzi DA株(MHOM/CO/01/DA),离散型分型单元(DTU)TcI16培养3至4天后,从人源星形细胞瘤细胞培养上清液中收集活动的寄生虫,于1,350 × g离心5分钟,弃去上清液。
注意:完全培养基中的寄生虫可用于与星形细胞瘤细胞以1:1比例在T25培养瓶中重新培养。 - 将沉淀物轻轻重悬于10 mL含0.1% FCS的无菌1×磷酸盐缓冲液(PBS)中,于1,350 × g离心5分钟。
- 弃去上清液,加入 1 mL PBS 重悬。取 10 µ使用血细胞计数板对自由游动的寄生虫进行计数。
- 取剩余的重悬寄生虫(990) µL)并加入1 µL 羧基荧光素二乙酸琥珀酰亚胺酯(CFSE),终浓度 5.0 µM. 室温孵育10分钟。
注意:5 mM 的 CFSE 储存液应分装后于 -20 ℃ 保存 °C. - 离心收集寄生虫(1,350 × g,5 分钟)。通过轻弹管壁重悬寄生虫沉淀,并用 10 mL 含 0.1% FCS 的 1× PBS 洗涤,随后再次离心(1,350 × g,5 分钟)。
- 弃去上清液,用适量体积的1×PBS轻柔重悬标记的寄生虫沉淀,以获得约10–20个寄生虫/nL的终浓度用于注射。
- 使用小体积(∼10 µL,约 1 × 10⁴ -2 × 10⁴ 通过观察前鞭毛体的活动能力与标记效果来评估其活力和标记情况。可使用倒置荧光显微镜直接观察寄生虫。在透射光模式下,检查寄生虫是否具有运动性;在荧光模式下,使用异硫氰酸荧光素(FITC)滤光片评估寄生虫的标记情况。
9. 注射斑马鱼幼虫
- 寄生虫装载
- 从重悬液(100 µL)中取 10 µL 寄生虫,使用 10 µL 微量移液器吸头将其装入密封的玻璃针中。
- 将玻璃针插入显微操作仪的针夹持器中,使用磁性支架固定,并置于体视显微镜旁。
- 在体视显微镜下使用精细镊子剪断针尖,形成钝端开口,测量液滴大小以获得 1 nL 的注射体积(在矿物油中测得的液滴直径相当于 0.12–0.13 mm17)。建议使用较长的针尖,以便针头能够到达鱼体内较深的结构而不损伤组织。本方案中使用钝针,但也可使用斜面针头。
- 固定与装载
- 用 150 mg/L 三卡因麻醉 48 小时后受精的幼鱼,检查其对触碰无反应,但需确保心脏仍在跳动。
- 将幼鱼以侧卧位放置于显微注射用琼脂糖模具中。
- 将针夹持器置于体视显微镜旁,调节显微操作仪,使针尖位于视野中央。移动在步骤 6.2 至 6.4 中准备好的培养皿,使幼鱼卵黄靠近针尖。检查幼鱼状态,确保心脏持续跳动。
- 设定显微注射仪参数如下:注射压力 9.6 磅/平方英寸(psi);维持压力:20 psi;门控范围 100 ms;周期值 1.9(对应 10.9 ms)。注射体积应在 1–3 nL 之间,每 nL 含约 10–20 个寄生虫。
10. 寄生虫的注射
- 在卵黄的前上部即库瓦耶管处注射鱼类。此步骤应预先练习,以确保注射后动物的存活。成功注射5-6条幼鱼大约需要10分钟。
- 作为对照,用相同体积的载体(1× PBS)注射1-2条幼鱼。
- 立即将幼鱼转移至新鲜的养鱼用水中。
11. 注射后幼鱼的LSFM装样
- 将注射了寄生虫的幼鱼转移至一个空的培养皿中,用塑料移液管和吸水纸小心去除周围的水。立即加入100 µL预热的1.0%低熔点琼脂糖(琼脂糖制备参见步骤3),以覆盖幼鱼。确保琼脂糖温度不超过40 °C。
- 将一根直金属丝插入1.0 mm玻璃毛细管内,作为活塞,将幼鱼以垂直方向吸入毛细管中。确保在幼鱼上方保留少量琼脂糖。等待琼脂糖凝固后再暴露幼鱼(此过程需要数分钟)。如有必要,将幼鱼下方多余的琼脂糖推出并切除。
- 将毛细管放入显微镜的样品 holder 中,并将含有幼鱼的一端推出,使其悬垂于毛细管外。样品腔内应充满三卡因溶液(150 mg/L),并将温度设定为28 °C。
- 使用XYZ微操作仪系统,将幼鱼置于检测物镜的瞳孔前方。如需绕垂直轴旋转,使用旋转台。幼鱼的定位应在透射光模式下进行,以便清晰识别幼鱼的结构。
12. 注射后寄生虫的LSFM成像
- 切换至荧光模式,并调整照明强度和曝光时间,以减少光损伤并优化时间分辨率。在本实验中,样品使用的光功率为 2.8–3.0 mW,采用像素尺寸为 6.45 µm、在检测波长处量子效率约为 70% 的相机,每帧曝光 200 ms。这些参数设置可实现约每秒 5 帧的充分曝光图像采集。请务必使用数值孔径尽可能高的物镜。
- 开始对感兴趣区域(ROI)进行视频采集。在本研究中,可观察到寄生虫附着于瓣膜以及在心脏区域自由移动。建议对单一焦平面进行随时间推移的视频记录,或在寄生虫移动过程中使用显微操作器或压电-检流计系统对不同焦平面进行聚焦。
注意:该方法适用于最长 2 小时的短期采集。对于长期采集,应采用其他方法固定幼鱼20。
13. 采集数据的图像处理与分析
注意:图像处理在一台配备 2.90 GHz 处理器、8.00 GB 内存和 1.00 GB 显存显卡的个人计算机上进行。
- 在所选的图像处理软件中打开已获取的数据集。建议使用开源软件 FiJi 进行 LSFM 数据的处理与分析21。
- 在图像分析软件中,调整亮度和对比度以增强图像效果。
注意:此步骤不使用固定的参数,但选择“自动”选项有助于获得初步的图像增强效果。 - 选择感兴趣区域(ROI)。
注意:为追踪单个寄生虫,FiJi 提供了手动和自动追踪插件。
14. 回收已成像的幼鱼
- 使用精细镊子和毛环工具小心地将幼鱼从琼脂糖中取出。将鱼转移回新鲜的卵水中,在15分钟后检查其恢复情况。将幼鱼放回28 ± 0.5 °C的培养箱中。
- 或者,可对成像后的幼鱼使用过量三卡因进行安乐死。随后将幼鱼放入次氯酸钠溶液(6.15% NaClO)中处理5分钟,以杀死寄生虫。按照机构的标准规程进行处置。
结果
注射的最佳条件:
在24、48、72、96和120小时(hpf)时,分别在不同解剖部位注射斑马鱼幼鱼,并在接下来的5天内每天观察其存活情况。注射后第5天,24 hpf时注射的胚胎存活率为6.25%(2/32),而48 hpf时注射的幼鱼存活率为95%(38/40)。作为对照,使用1×PBS缓冲液作为载体进行注射。载体注射组与寄生虫注射组之间的存活率无显著差异,表明寄生虫注射对鱼类存活率无依赖性影响(p = 0.08)。在72至120 hpf期间注射的幼鱼,在相同注射体积下,其存活率与48 hpf注射组相当。本研究所采用的所有实验操作均使用48 hpf的幼鱼,因其易于操作,器官已发育完全,皮肤易于穿刺,且注射后无明显损伤。
在48 hpf时注射的幼鱼,其注射部位包括心包腔、尾部肌肉、后脑室、耳囊、脊索以及卵黄囊中的库瓦氏管。在不同解剖部位注射的幼鱼之间,其存活率无显著差异。然而,最快速且最容易注射的区域是位于卵黄囊前部的库瓦氏管(图1,视频1)。在此部位注射可引入较大体积的液体,同时对重要结构造成损伤的风险较低。此外,在24–72 hpf期间,该区域是直接进入发育中血管系统和心脏的最佳部位11。
使用 LSFM 进行寄生虫可视化:
在将T. cruzi注入塞维氏管后8–10分钟内,由于CFSE荧光信号以及斑马鱼幼鱼的光学透明性,可通过光片显微镜(LSFM)在幼鱼体内检测到寄生虫。接种后,寄生虫被观察到附着于循环系统周围的管壁,或沿血流方向移动(图2,图3)。当寄生虫附着于心脏结构(如房室瓣)时,会随着心脏收缩而发生振荡,表明寄生虫黏附的分子机制在本研究的脊椎动物模型中可能有效(Movie 2、Movie 3、补充视频1)。T. cruzi还附着于幼鱼卵黄囊壁(图2,Movie 2),该结构随后将被重吸收并成为斑马鱼肠道的一部分22。这一现象可能类似于感染人类在慢性疾病阶段的情况,即寄生虫存在于心肌细胞以及消化神经系统中23,24。当未附着时,寄生虫随红细胞同向漂浮于血流中(图3,Movie 4)。可在鱼类不同大小的血管中观察到寄生虫,但在心包腔及邻近含有血流的卵黄区域更为丰富(图2,图3,补充视频2)。
注射后10分钟,由于寄生虫沿血管系统分布,且受光片层显微镜(LSFM)视野范围有限(40倍放大)的影响,难以快速筛查斑马鱼不同解剖部位,导致单个寄生虫形态更难被识别。注射后24小时(hpi),CFSE信号开始在发育中的肠道附近区域积累(补充图1)。
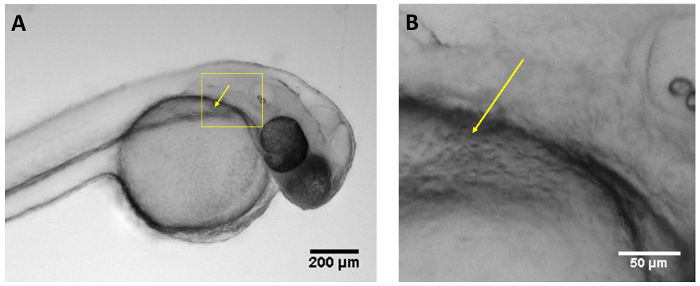
图1: 最佳注射位点。 (A)48小时幼鱼图像,显示在库瓦氏管(黄色箭头)处的最佳注射位点,使用普通体视显微镜观察。 (B)A图方框区域的放大视图,显示库瓦氏管(黄色箭头)。比例尺 = 200 µm(A),50 µm(B)。 请点击此处查看该图的放大版本。
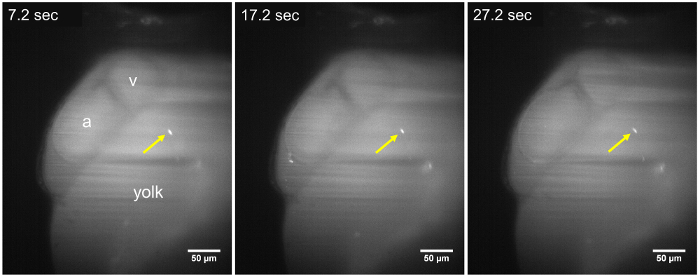
图2:48小时受精后幼鱼中静止寄生虫的LSFM图像。在整个时间推移序列(7.2秒、17.2秒和27.2秒)中,T. cruzi 寄生虫(黄色箭头)始终附着在卵黄囊壁上,此时约为寄生虫注射后约15分钟。在至少30秒的图像采集期间内,未观察到寄生虫位置发生变化。a,心房;v,心室。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
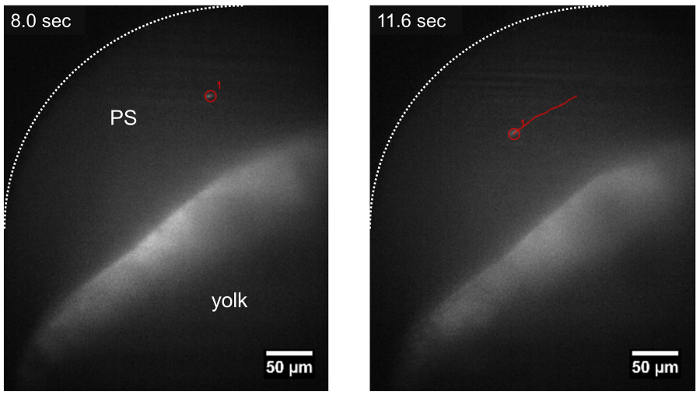
图3:利用LSFM观察寄生虫在心包腔内移动的轨迹。 注射寄生虫约15分钟后,可追踪到T. cruzi寄生虫随血流方向在心包腔(PS)中漂移的路径(红色轨迹所示)。比例尺 = 50 µm。请点击此处查看该图的放大版本。
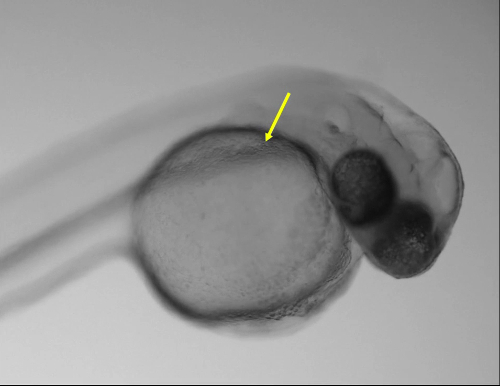
视频 1:48 小时幼虫卵黄中的血液循环谷(Cuvier 管)。 使用普通体视显微镜拍摄的 48 小时幼虫视频,显示卵黄中的血液循环谷或 Cuvier 管。视频过程中对不同区域进行聚焦,以展示红细胞在导管内的循环情况。黄色箭头指示最佳注射位点。该视频录制于寄生虫注射后约 10–15 分钟。请点击此处下载视频。
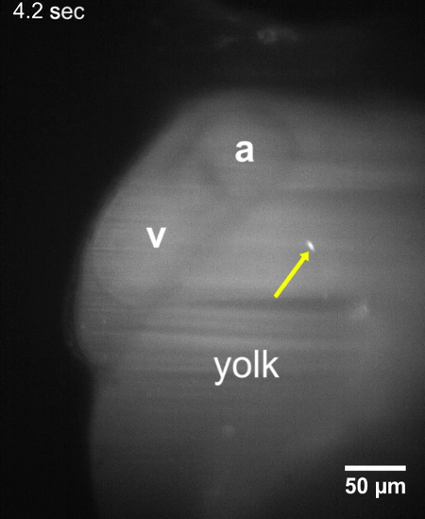
视频 2:T. cruzi 寄生虫附着在卵黄囊壁上。 48 小时受精后(hpf)幼虫的光片层显微镜(LSFM)视频显示,在注射寄生虫约 10–15 分钟后,T. cruzi 寄生虫仍附着在卵黄囊上。在至少 30 秒的图像采集期间,未观察到寄生虫位置发生变化。a,心房;v,心室。 请点击此处下载视频。
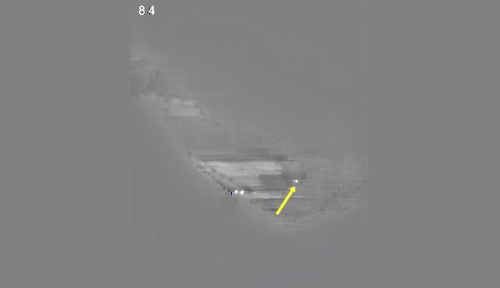
视频 3:T. cruzi 寄生虫附着于心脏壁。 该光片显微镜视频显示,在注射寄生虫约 10–15 分钟后,尽管心脏存在强烈收缩,T. cruzi 寄生虫仍附着在心血管壁上,观察时间为受精后 48 小时的幼鱼。红细胞可被观察为黑色的圆形阴影。请点击此处下载视频。
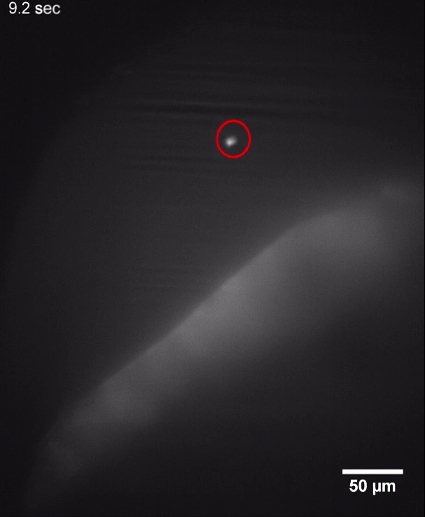
视频 4:寄生虫在心包腔内移动。 48 小时受精后(hpf)幼虫的光片层荧光显微镜(LSFM)视频,显示 T. cruzi 寄生虫在心包腔内漂移。可在不同时间点追踪到两个寄生虫(ID 1,红色圆圈标记;ID 2,黄色圆圈标记),二者运动轨迹相似。该视频录制于寄生虫注射后约 10–15 分钟。 请点击此处下载视频。
补充图1:卵黄中CFSE荧光信号的积累。 在48 hpf时于Cuvier管注射的野生型幼虫的体视显微镜图像。注射后两天(48 hpi),CFSE荧光信号逐渐在卵黄中积累。比例尺 = 500 µm。请点击此处下载该图。
补充视频 1:寄生虫附着于循环系统的管壁和瓣膜上。 对在 48 hpf 时注射的野生型幼鱼进行立体显微镜时间序列成像。图像以 0.2 秒间隔采集,显示 T. cruzi 寄生虫随房室瓣处心肌收缩同步运动。该视频录制于寄生虫注射后约 30 分钟。请点击此处下载视频。
补充视频2:脑室周围区域和卵黄中的游动及附着的寄生虫。 48小时幼虫的光片层显微镜视频,显示了T. cruzi寄生虫在心包腔或卵黄中漂移或附着的情况。前5秒为透射光图像,5.2至25.8秒为荧光图像。该视频录制于寄生虫注射后约10-15分钟。请点击此处下载视频。
讨论
本研究强调了斑马鱼作为研究病原体行为的动物模型的优势 体内特别是,本研究提出了一种可视化病原体的方法 T. cruzi 在其自然环境中:血液循环系统中。鱼类循环微环境与哺乳动物相似,而锥虫科原虫已进化出在该环境中移动、逃避免疫系统以及附着细胞以实现感染的机制25. 本方案提供了培养的优化操作步骤描述 T. cruzi 在人源细胞系中培养并分离出鞭毛体形式以进行荧光标记。随后展示将寄生虫成功注射到透明斑马鱼中的适当操作参数,以便后续通过光片显微镜(LSFM)进行固定与观察。最后,本方案提供了关于高效且有效 体内 使用光片显微镜成像寄生虫在循环系统中的位置与运动
锥虫的鞭毛从其后部区域伸出,从细胞体延伸而出,并在生物体的前部自由悬挂26。T. cruzi通过将鞭毛在身体前方摆动来推动自身前进,从而引起整个寄生虫体的波动。鞭毛运动不仅对寄生虫的运动至关重要(例如在非洲锥虫病病原体T. brucei中)27,还被用于细胞感染,这一点已在T. cruzi中得到证实5,28。尽管斑马鱼并非T. cruzi的天然宿主,但利用本文所述的实验方案,仍可在发育中的心血管循环系统中研究该寄生虫的运动能力。此外,存在一些可感染斑马鱼所属的鲤科鱼类的锥虫种类,例如T. carassii和T. borreli25。这些寄生虫种类可用于实时研究这些动基体科原虫的运动方式及附着机制,此类研究有助于深入了解哺乳动物细胞的感染过程。
在本研究中,观察到注射的活动性T. cruzi寄生虫在接种鱼类的心血管循环系统中移动,随不透明的红细胞流动,并黏附于心血管系统管壁的结构上。我们使用自行搭建的光片显微镜(LSFM),照明臂配备10倍消色差长工作距离空气物镜(工作距离17.6 mm,数值孔径0.25);检测臂则采用40倍复消色差水浸物镜(数值孔径0.8,工作距离3.5 mm)。检测物镜浸入样品室中,而照明物镜位于样品室外。样品室上设有端口,用盖玻片和光学胶密封,使照明光束可进入样品室,如Lorenzo et al.18所述。照明光源为50 mW的488 nm DPSS激光器,其功率通过声光可调滤波器进行调节。检测光路使用与绿色荧光蛋白(GFP)或FITC兼容的滤光片。配备毛细管样品 holder(理想情况下具备自动旋转功能)以及样品室温度控制功能的光片显微镜应适用于本实验应用。显微镜在采集前应根据制造商说明或实验室标准操作程序进行准直和校准(如需要)。在本方案中,我们使用SPIM软件19控制显微镜。
需要注意的是,在斑马鱼的循环系统中,幼虫寄生附着具有有效性。在前主静脉中,寄生虫可保持附着达数分钟之久;在心脏中,它们附着于瓣膜和心壁,并随着心脏收缩而振荡。仍需进一步研究以阐明是否 T. cruzi 与随血流方向漂移的流动红细胞相互作用。先前 体外 研究表明,固体结构的存在(即,血细胞)或增加液体黏度以模拟血液 体外,对寄生虫的运动能力和速度具有显著影响9.
关于感染过程存在许多问题 T. cruzi 在人类体内,无鞭毛体从吞噬细胞中逃逸后,最初被感染的细胞类型29例如,它们是如何到达靶器官的?趋向于特定器官(如心脏、消化系统和中枢神经系统)的机制是什么?有趣的是,在本研究中,最初在心脏中观察到寄生虫,因为此处寄生虫密度最高。然而,注射后7天,CFSE信号逐渐在发育中的肠道中积累。尽管鱼类与哺乳动物的解剖结构不同,本研究结果仍表明存在某种趋向性,即寄生虫表现出向已知偏好靶器官迁移的趋势,即使在不同生物体之间也如此。本研究的一个重要局限在于实验所采用的温度。斑马鱼幼虫应维持在约28℃ °在整个实验过程中保持该温度。尽管此温度与载体宿主(锥蝽亚科昆虫)的温度相似,但与作为终宿主的恒温哺乳动物(约37 °C)相比则明显不同。 T. cruzi 已知该生物在两种宿主中均存在具鞭毛的活动形态;然而,需要注意的是,这一因素可能会影响动物的行为。 体内.
尽管鱼类的适应性免疫系统直到受精后4周才发育成熟,但其先天性免疫系统在发育早期即已具有活性10。早在48或96小时(hpf)时,已观察到吞噬细胞吞噬了带有标记的锥虫(数据未显示),这限制了寄生虫可视化的时间窗口。然而,如果研究重点是评估鱼类的免疫反应,则建议在较晚的发育阶段进行注射。此外,将寄生虫注射到带有标记巨噬细胞或其他免疫细胞的转基因鱼系中,有助于研究寄生虫的附着及可能的内吞机制。需要注意的是,如果寄生虫使用CFSE标记,则转基因细胞的标记不应使用GFP,而应选择黄色或红色光谱范围内的荧光标记。
为了评估寄生虫运动的详细方向,可能需要在三维(3D)空间中追踪其运动轨迹。要实现该过程的三维可视化与重建,需要使用高速成像系统。然而,本实验方案所使用的设备仅能在一个平面上观察寄生虫。因此,本研究优先确保在寄生虫运动过程中焦平面的稳定性,并记录其在一个平面上的运动轨迹。
本文提出的方法为深入研究寄生虫在心血管循环中的行为提供了途径。简而言之,对斑马鱼幼鱼体内活体荧光寄生虫进行成像的关键步骤包括:(i)使用早期孵化的胚胎(24–48 hpf)或幼鱼,或选择72–96 hpf之间无色素沉着的个体,以确保其透明性并便于显微注射;(ii)注射后应尽快对幼鱼进行成像,以避免吞噬细胞清除寄生虫;(iii)将光片显微镜(LSFM)聚焦于目标区域例如,心包区域)并保持焦点。这一新方法使得在接近其自然感染微环境的条件下观察锥鞭毛体成为可能,首次提供了研究 T. cruzi 在活体生物中。
披露
作者无任何披露信息。
致谢
本工作得到了以下资助: 跨学院招募 从 安第斯大学研究副校长办公室以及美国国际开发署研究与创新奖学金项目。感谢Juan Rafael Buitrago和Yeferzon Ardila在鱼类饲养和实验协助方面的工作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.5-10 μL 微量移液器 | Fisherbrand | 21-377-815 | |
| 普通琼脂糖(Agarose RA) | Amresco | N605 | 常规型 |
| 低熔点琼脂糖(Agarose SFR) | Amresco | J234 | 低熔点 |
| 水族盐 | Instant ocean | SS15-10 | |
| 细胞计数板 | Boeco | Neubauer | |
| 细胞培养瓶 | Corning | 430639 | |
| 离心机 | Sorvall | Legend RT | |
| CFSE | ThermoFisher | C34554 | |
| 检测物镜 | Nikon 40x 0.8NA | 40x CFI APO NIR | |
| DMEM 培养基 | Sigma-Aldrich | D5648 | |
| Dumont #5 精细镊子 | World Precision Instruments | ||
| 氨基苯甲酸乙酯甲磺酸盐(Tricaine) | Sigma-Aldrich | A5040 | |
| 胎牛血清(FCS) | Eurobio | CVFSVF00-01 | |
| 滤光片 | Chroma | ET-525/50M | |
| 用于胚胎固定的玻璃毛细管 | Vitrez Medical | 160215 | |
| 用于拉制针头的玻璃毛细管 | World Precision Instruments | TW100-4 | |
| 葡萄糖 | Gibco | A2494001 | |
| HEPES | Gibco | 156300-80 | |
| 培养箱 | Thermo Corporation | Revco | |
| 幼体显微注射模具 | Adaptive Science Tools | I-34 | |
| 激光器 | Crystalaser | DL488-050 | |
| L-谷氨酰胺 | Gibco | 250300-81 | |
| 亚甲蓝 | Albor Químicos | 12223 | |
| 显微操作器 | Narishige | MN-153 | |
| 显微操作系统 | Sutter Instrument | MP-200 | 用于 LSFM |
| 微量移液器拉制仪 | Narishige | PC-10 | |
| 显微镜 | Olympus | CX31 | |
| 倒置显微镜 | Olympus | CKX41 | |
| 多功能显微镜 | Nikon | AZ100M | |
| Neubauer 计数板 | Boeco Germany | ||
| 青霉素-链霉素 | Gibco | 15140-163 | |
| 94×16 培养皿 | Greiner bio-one | 633181 | |
| 塑料巴斯德吸管 | Fisherbrand | 11577722 | |
| 旋转台 | Newport | CONEX-PR50CC | |
| RPMI-1640 培养基 | Sigma-Aldrich | R4130 | |
| 丙酮酸钠 | Gibco | 11360-070 | |
| 体视显微镜 | Nikon | C-LEDS | |
| Tricaine(MS-222) | Sigma-Aldrich | 886-86-2 | |
| TRIS | Amresco | M151 | |
| 胰蛋白酶-EDTA(0.25%) | Gibco | R-001-100 | |
| 15 ml 离心管 | Corning | 05-527-90 |
参考文献
- WHO. Chagas disease (American trypanosomiasis). , http://www.who.int/mediacentre/factsheets/fs340/en/ (2017).
- Bern, C. Chagas's Disease. New England Journal of Medicine. 373 (5), 456-466 (2015).
- Sosa Estani, S., Segura, E. L., Ruiz, A. M., Velazquez, E., Porcel, B. M., Yampotis, C. Efficacy of chemotherapy with benznidazole in children in the indeterminate phase of Chagas’ disease. The American Journal of Tropical Medicine and Hygiene. 59 (4), 526-529 (1998).
- Rosas, F., Roa, N., Cucunuba, Z. M., Cuellar, A., Gonzalez, J. M., Puerta, J. C. Chagasic Cardiomyopathy. Cardiomyopathies - From Basic Research to Clinical Management. , (2012).
- Finkelsztein, E. J., et al. Altering the motility of Trypanosoma cruzi with rabbit polyclonal anti-peptide antibodies reduces infection to susceptible mammalian cells. Experimental Parasitology. 150, 36-43 (2015).
- Martins, R. M., Covarrubias, C., Rojas, R. G., Silber, A. M., Yoshida, N. Use of L-Proline and ATP Production by Trypanosoma cruzi Metacyclic Forms as Requirements for Host Cell Invasion. Infection and Immunity. 77 (7), 3023-3032 (2009).
- Engstler, M., et al. Hydrodynamic Flow-Mediated Protein Sorting on the Cell Surface of Trypanosomes. Cell. 131 (3), 505-515 (2007).
- Uppaluri, S., et al. Impact of Microscopic Motility on the Swimming Behavior of Parasites: Straighter Trypanosomes are More Directional. PLoS Computational Biology. 7 (6), e1002058(2011).
- Heddergott, N., et al. Trypanosome Motion Represents an Adaptation to the Crowded Environment of the Vertebrate Bloodstream. PLoS Pathogens. 8 (11), e1003023(2012).
- Gratacap, R. L., Wheeler, R. T. Utilization of zebrafish for intravital study of eukaryotic pathogen–host interactions. Developmental & Comparative Immunology. 46 (1), 108-115 (2014).
- Meijer, A. H., Spaink, H. P. Host-Pathogen Interactions Made Transparent with the Zebrafish Model. Current Drug Targets. 12 (7), 1000-1017 (2011).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Huisken, J. Slicing embryos gently with laser light sheets. BioEssays. 34 (5), 406-411 (2012).
- Westerfield, M. The zebrafish book: A guide for the laboratory use of zebrafish (Danio rerio). , University of Oregon Press. Eugene. http://zfin.org/zf_info/zfbook/zfbk.html (2000).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Developmental Dynamics. 203 (3), 253-310 (1995).
- Vargas-Zambrano, J. C., Lasso, P., Cuellar, A., Puerta, C. J., González, J. M. A human astrocytoma cell line is highly susceptible to infection with Trypanosoma cruzi. Memórias do Instituto Oswaldo Cruz. 108 (2), 212-219 (2013).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of Zebrafish Embryos to Analyze Gene Function. JoVE (Journal of Visualized Experiments). (25), e1115-e1115 (2009).
- Lorenzo, C., et al. Live cell division dynamics monitoring in 3D large spheroid tumor models using light sheet microscopy. Cell Division. 6, 22(2011).
- Edelstein, A. D., Tsuchida, M. A., Amodaj, N., Pinkard, H., Vale, R. D., Stuurman, N. Advanced methods of microscope control using μManager software. Journal of Biological Methods. 1 (2), e10(2014).
- Weber, M., Mickoleit, M., Huisken, J. Multilayer Mounting for Long-term Light Sheet Microscopy of Zebrafish. Journal of Visualized Experiments. (84), (2014).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Ng, A. N. Y., et al. Formation of the digestive system in zebrafish: III. Intestinal epithelium morphogenesis. Developmental Biology. 286 (1), 114-135 (2005).
- Higuchi, M. D. L., et al. Correlation between Trypanosoma cruzi parasitism and myocardial inflammatory infiltrate in human chronic chagasic myocarditis: Light microscopy and immunohistochemical findings. Cardiovascular Pathology: The Official Journal of the Society for Cardiovascular Pathology. 2 (2), 101-106 (1993).
- Vago, A. R., Silva, D. M., Adad, S. J., Correa-Oliveira, R., d'Avila Reis, D. Chronic Chagas disease: presence of parasite DNA in the oesophagus of patients without megaoesophagus. Transactions of the Royal Society of Tropical Medicine and Hygiene. 97 (3), 308-309 (2003).
- Wiegertjes, G. F., Forlenza, M., Joerink, M., Scharsack, J. P. Parasite infections revisited. Developmental & Comparative Immunology. 29 (9), 749-758 (2005).
- De Souza, W. Basic cell biology of Trypanosoma cruzi. Current Pharmaceutical Design. 8 (4), 269-285 (2002).
- Langousis, G., Hill, K. L. Motility and more: the flagellum of Trypanosoma brucei. Nature Reviews. Microbiology. 12 (7), 505-518 (2014).
- Johnson, C. A., et al. Cellular response to Trypanosoma cruzi infection induces secretion of defensin α-1, which damages the flagellum, neutralizes trypanosome motility, and inhibits infection. Infection and Immunity. 81 (11), 4139-4148 (2013).
- Magalhães, L. M. D., Viana, A., Chiari, E., Galvão, L. M. C., Gollob, K. J., Dutra, W. O. Differential Activation of Human Monocytes and Lymphocytes by Distinct Strains of Trypanosoma cruzi. PLoS neglected tropical diseases. 9 (7), e0003816(2015).
重印与许可
