近期,我们绘制了活细胞中各种蛋白质在初级纤毛内转运的三维(3D)空间路径。本文详细描述了应用于活体初级纤毛的新型3D超分辨率荧光成像技术的实验装置、生物样本处理过程以及数据分析方法。
本文内容
摘要
摘要
初级纤毛是许多真核细胞表面的一种基于微管的突起结构,含有独特的蛋白质组合,在细胞运动和信号传导中发挥关键作用。由于纤毛自身无法合成蛋白质,因此几乎有200种独特的纤毛蛋白需要在细胞质与初级纤毛之间进行转运。然而,由于现有技术的局限性,目前仍难以在活体初级纤毛中精确绘制这些蛋白质三维(3D)转运路径的空间位置。为克服这一技术难题,我们近期开发并应用了一种高速虚拟三维超分辨率显微技术,称为单点边缘激发亚衍射(SPEED)显微技术,用于确定活细胞初级纤毛中细胞质蛋白和膜蛋白转运路径的三维空间位置。本文将详细介绍SPEED显微技术的系统搭建、表达荧光蛋白标记纤毛蛋白的细胞制备、活纤毛中单个蛋白质的实时单分子追踪,以及纤毛蛋白转运路径三维空间概率密度图的获取方法。
引言
自1873年Ernst Abbe提出以来,传统光学显微镜的分辨率一直被认为受限于光在物镜处的衍射,极限约为200 nm1,2。目前,超分辨率光学显微技术突破了这一限制,能够以亚衍射(< 200 nm)分辨率捕捉动态图像。这些技术通常分为两大类:一类是基于受激发射损耗(STED)显微镜的方法,其通过样品中荧光分子的非线性光学响应产生亚衍射的照明体积3;另一类是基于光激活定位显微镜(PALM)和随机光学重建显微镜(STORM)的超分辨率技术,其利用数学函数定位荧光分子的中心位置(即质心),再将这些质心重构为超分辨率图像4,5。目前,由于光学装置相对简单,PALM和STORM技术被广泛采用,其原理是在长时间记录生物样本视频的每一帧中仅激活一小部分荧光分子。这使得可通过二维高斯拟合更精确地定位每帧图像中荧光标记蛋白的荧光斑点,即点扩散函数(PSF)。随后,可将每个荧光标记分子的二维位置叠加至单一成像平面,从而生成生物样本的超分辨率图像1,2。尽管这类单分子定位超分辨率显微技术确实革新了生物样本的成像方式,但仍存在一些亟待解决的挑战。例如,STORM和PALM在生物样本固定后才能达到最佳空间分辨率,因此仅能提供荧光标记蛋白的静态图像,这与电子显微镜存在类似的局限性。此外,为了在活细胞中实现每个荧光标记蛋白的高空间分辨率,样本必须以极长的帧率进行成像,从而无法捕捉蛋白的动态行为。因此,有必要克服这些主要的技术障碍。
为了获得适用于在活细胞中检测快速移动的蛋白质或RNA的高时空分辨率,我们在实验室开发了超分辨率SPEED显微镜技术(图1)6,7,8。SPEED显微镜的几项关键技术进步使我们能够成功追踪小分子、蛋白质、mRNA和病毒通过天然核孔复合体(NPCs)的核质运输过程6,7,8。简而言之,SPEED显微镜具有以下特征,可用于在活细胞中追踪快速移动的大分子穿过亚微米尺度的旋转对称结构(如NPC和初级纤毛):(1)倾斜或垂直照明的点扩散函数(PSF)可在焦平面上一个小的衍射极限体积内激发单个分子(图1);(2)倾斜的PSF可显著避免离焦荧光,从而提高信噪比;(3)照明PSF中的光密度达到100–500 kW/cm2,使得从单个荧光团在快速检测速度(> 500 Hz)下可收集数千个光子;(4)快速检测速度还显著降低了单分子空间定位误差(< 10 nm),从而更准确地确定活细胞中运动荧光分子的空间轨迹,因为分子扩散是导致运动分子单分子定位不精确的主要因素之一;(5)成熟的二维到三维转换算法使我们能够提供分子在NPC或初级纤毛中运输路径的三维空间概率密度图。值得注意的是,我们在笛卡尔坐标系与柱面坐标系之间的转换过程用于生成三维空间概率密度图,而非三维单分子追踪(图2)。此前,电子显微镜数据表明,NPC9,10和初级纤毛11均具有旋转对称结构。理论上,随机扩散穿过NPC或初级纤毛的分子也应呈现旋转对称分布。如图2所示,圆柱体内大量随机扩散的分子在横截面视图中会产生类似于NPC的旋转对称分布,进一步导致相邻两个环之间的每个极小亚区域内的空间分布近似均匀(图2E)。这种均匀分布意味着在柱面坐标系中沿θ方向的空间分布是恒定的。因此,三维坐标(R, X, θ)可简化为二维坐标(R, X, 常数)。实际上,我们从笛卡尔坐标系到柱面坐标系的转换过程是从二维(X, Y)转换为二维(R, X, 常数)。该常数θ对应于图2E中的空间密度p,通过公式A 计算得出。
最终,单分子示踪技术在生物研究中具有广泛的应用,因此,开发多种技术以满足特定的生物学需求是自然而然的12,13,14。SPEED显微镜技术正是如此。此前,当结合三维变换算法时,该技术被用于解析穿行分子通过核孔复合体(NPCs)的三维运输路径,核孔复合体是一种亚衍射尺度且具有旋转对称性的生物结构6。本文表明,初级纤毛同样是极佳的模型细胞器。初级纤毛是圆柱形、天线状的细胞器(半径约125 nm),从大多数哺乳动物细胞表面突出15,16,17。它们负责接收外部信号,并传递通常与生长和代谢相关的细胞内响应15,16。因此,结构蛋白的流动、跨膜受体的回收以及细胞内信使的传递是初级纤毛的重要功能。在初级纤毛与细胞体的连接处存在一个关键的选择性屏障,称为过渡区(transition zone, TZ),所有蛋白质运输都必须通过该区域11,18,19,20。除了TZ的门控功能外,至少还有两种运输过程——鞭毛内运输(intraflagellar transport)和被动扩散——被认为负责蛋白质在此区域的移动16,21,22。从人类健康的角度来看,初级纤毛的缺失及其下游信号通路的失调是多种癌症的特征。此外,许多遗传性疾病,如Bardet-Biedl综合征和多囊肾病,也与蛋白质运输缺陷相关23。TZ处蛋白质选择性运输的亚衍射极限尺寸及其复杂过程,使初级纤毛成为该技术的理想研究对象。在本方法学论文中,我们将展示对一种纤毛跨膜蛋白——生长抑素受体3(somatostatin receptor 3, SSTR3)24(用Alexa Fluor 647体外标记)以及鞭毛内运输复合物组分IFT2025(用融合GFP分子标记)——的示踪过程。
方案
1. 从细胞库制备用于SPEED显微镜的NIH-3T3细胞
- 实验前约1.5周,从冻存株中复苏新鲜的NIH-3T3细胞:在37 °C下解冻,并将细胞转移至含3 mL添加了110 mg/mL丙酮酸钠、2 mM谷氨酰胺、10%胎牛血清和1%青霉素/链霉素的杜尔贝科改良伊格尔培养基(DMEM)的25 cm2细胞培养瓶中。
- 将细胞置于37 °C、5% CO2的培养箱中孵育。
- 当细胞融合度达到80%时(大约每两天一次),在实验前至少传代三次,以确保细胞周期的均一性。用0.25%胰蛋白酶在37 °C处理2分钟进行消化,吸除胰蛋白酶后加入2 mL培养基。反复吹打以分散细胞团块,取出所需数量的细胞,并将培养基总体积补至3 mL。
注:NIH-3T3细胞此前经基因工程改造,可表达定位于过渡区(TZ)26的NPHP-4蛋白,该蛋白在其C末端融合了mCherry。mCherry是一种荧光团,可通过561 nm激发光进行激发,用于定量定位TZ选择性屏障并确定初级纤毛的方向。 - 实验前两天,将细胞以60–70%融合度接种于35 mm玻璃底培养皿中,加入1.5 mL与步骤1.1相同的培养基,并将细胞放回培养箱中继续培养。
- 实验前一天,使用目标质粒对细胞进行化学转染。将500–1000 ng的目标质粒(见下文注)与转染试剂按1:2.5的比例混合于0.25 mL无抗生素的低血清培养基中,室温孵育30分钟。吸除35 mm玻璃底培养皿中的培养基,替换为0.25 mL质粒/转染试剂混合物及额外添加的1.25 mL无抗生素低血清培养基。低血清培养基有助于实现高效转染、诱导初级纤毛生长,并维持细胞存活足够长时间以完成后续实验。将细胞放回培养箱,次日进行实验。
注:在对IFT20进行单分子示踪时,使用一种在其C末端融合了GFP的基因改造IFT20质粒25;在对SSTR3进行单分子示踪时,使用一种在其N末端融合了受体肽(AP)结构域、C末端融合了GFP的基因改造SSTR3质粒22。除SSTR3构建体外,还需共表达含有生物素连接酶BirA的质粒,并在转染培养基中补充10 µM生物素。BirA随后会在内质网水平将生物素连接至新合成的AP-SSTR3-GFP分子的AP结构域上。成像前可在培养基中加入平均结合了三个(共四个)链霉亲和素生物素结合位点的Alexa647,从而对细胞外表面的AP-SSTR3-GFP分子进行荧光标记22,27。本方法中使用GFP和AlexaFluor647;然而,其他具有类似高光稳定性和量子产率的荧光探针也可替代使用。 - 若使用外部标记的SSTR3构建体,则在实验前1小时移除玻璃底培养皿中的培养基,用1 mL磷酸盐缓冲液(PBS)洗涤细胞5次,然后加入1 mL补充了1 µM Alexa647标记链霉亲和素的低血清培养基。
- 实验开始前不超过15分钟,移除玻璃底培养皿中的培养基,并用1 mL PBS对转染并标记的细胞洗涤5次。
- 向玻璃底培养皿中加入1 mL成像缓冲液(20 mM HEPES、110 mM KOAc、5 mM NaOAc、2 mM MgOAc、1 mM EGTA,pH 7.3)。
注:在成像缓冲液中,细胞活性维持时间不超过3小时,因此每个培养皿仅进行最多2小时的实验。
2. SPEED 显微镜技术
注意:SPEED 显微镜系统包括一台倒置荧光显微镜,配备数值孔径为 1.4 的 100× 油浸复消色差物镜、35 mW 的 633 nm 氦-氖激光器、50 mW 固体 488 nm 和 561 nm 激光器、片上乘法增益电荷耦合器件(CCD)相机,以及用于数据采集和处理的显微镜软件包(图 1)。在单通道成像中,GFP、mCherry 和 Alexa647 分别由 488 nm、561 nm 和 633 nm 激光器激发。在单分子追踪实验中,采用单点照明以追踪单个荧光标记分子。在落射荧光成像中,激光照明光路中放置一个凹透镜,以将光束扩展为均匀的照明场。荧光发射光由同一物镜收集,经二向色镜(405/488/561/635)和发射滤光片(405/488/561/635)过滤后,由上述 CCD 相机成像;在单分子追踪时相机工作频率为 500 Hz,落射荧光成像时为 2 Hz。
- 将玻璃底板固定在显微镜载物台上,找到一个正确表达目标构建体的细胞。找到合适的细胞后,将初级纤毛基部的NPHP4-mCherry荧光点与成像平面上对应激光单点照射的位置对齐。
- 使用落射荧光显微镜拍摄NPHP4-mCherry与IFT20-GFP或AP-SSTR3-GFP的荧光图像 "快照" 功能在 "相机" 的标签 "焦点调节控制" 如果使用数字显微软件包(参见 材料表).
注意:这些图像将作为后续单分子定位的参考。 - 获得参考图像后,局部降低标记单分子的浓度。用1 mW激光照射TZ区域20秒,或直至荧光强度接近背景荧光水平,以进行光漂白。
注意:当可精确控制浓度时,使用 0.1–1 nM 的标记单分子。 - 为进行单分子示踪实验,将激光照射功率降低至约 0.15 mW(用于标记 GFP 的单分子)或约 0.5 mW(用于标记 Alexa647 的分子)。
- 一旦设定好激光功率和成像参数(最大增益、最大放大倍数和 2 ms 帧率)用于单分子成像,开启相应的激发激光,通过点击开始记录非光漂白的、标记的单分子,这些分子在通过中心粒远端区(TZ)的光漂白区域时被运输。 "流" 按钮在 "相机" 标签的 "聚焦控制" 窗口。
注意:为将纤毛漂移的影响降至可忽略水平,视频采集时间不应超过2分钟。 - 单分子视频采集完成后,使用二维高斯拟合算法(如Gelles实验室开发的Glimpse软件)对视频进行处理,精确确定每个单分子激发点扩散函数(PSF)在感兴趣区域(AOI)内的质心位置。
- 以高精度选择所有单分子位置 <10 nm,并根据用二维高斯函数拟合的单分子定位分布来校正纤毛的中心。
注意:通过使用二维到三维转换算法,IFT20-GFP 和 AP-SSTR3 的三维运输路径分别在纤毛轴丝或纤毛膜上清晰显示。
3. 从二维到三维的转化
- 当收集到纤毛中穿行分子(信噪比 > 11)的数千个定位信号后,选择纤毛的长轴作为 X 维度。对位置数据在 Y 维度上生成直方图,并以 10 nm 为增量获取各区间的位置总和。
注意:二维到三维的转换可通过手工或任意软件或编程语言实现。作者已成功在 Matlab 和 Python 2.7 中实现了该转换。
结果
本节展示了利用SPEED显微镜在初级纤毛的过渡区(TZ)获取的数据,用于研究通过约15 nm外部连接子与Alexa647相连的SSTR3的运输路径图3A)。它具有双重作用:验证3D转换算法的准确性。Alexa647应仅标记初级纤毛的外表面,因此3D运输路径应在该位置显示出高密度的信号。必须将稳定表达TZ部位NPHP3-mCherry的NIH-3T3细胞转染AP-SSTR3-GFP,并按照上述方案与链霉亲和素偶联的Alexa647共同孵育。使用mCherry荧光的宽场成像用于定位过渡区(TZ),而GFP信号用于确认细胞已成功表达目标SSTR3构建体。此外,需使用633 nm激发光对Alexa647进行宽场成像,以确认细胞已正确表达BirA质粒并从培养基中吸收了足够的生物素。阳性结果表现为可清晰分辨出与背景荧光分离的纤毛结构。图3B。只有在这些条件下,才能实现链霉亲和素偶联的Alexa647对AP-SSTR3-GFP构建体的有效标记。一旦通过Alexa647获得初级纤毛选择性标记的阳性确认,使用633 nm激光对过渡区(TZ)进行光漂白和单点照射,即可实现单分子的可视化。在数据分析之前,将单分子成像视频叠加到宽场照明图像上是一个有用的验证步骤。图3C)。例如,如果激光未正确对准,则不会有任何单分子出现在基体附着区(TZ)上共定位。另一个在数据分析前用于验证信噪比是否足够的步骤,是检查单分子视频持续时间内基体附着区(TZ)的荧光强度。图3E)。此类分析可使用 ImageJ 中的“plot z axis profile”功能快速完成。图中的峰 图3F 对应于在转染区(TZ)出现单个分子且信噪比约为5.0的情况。该图还可用于确认已发生充分的光漂白,表现为单个分子的频率分布清晰分离。 图3G 表现出较低的信噪比 < 0.5. 一种可能的解释是激光未直接对准纤毛过渡区(TZ)。另一个原因可能是激光照射功率过低。这两种情况均会导致TZ处荧光团的激发效率低下,因而荧光发射信号较弱。完成上述检查后,对单个分子进行二维高斯拟合,即可获得其在纤毛过渡区(TZ)中的运动轨迹。图3H)。叠加多条轨迹将生成目标标记蛋白在纤毛转运区(TZ)中的运输路径图3I)。由于二维高斯拟合对应于探测器上的像素值,因此可将x、y单分子数据与TZ及初级纤毛的宽场图像合并,以进一步阐明目标蛋白的定位图3J).
IFT20 是 IFT 复合物的一个组分,该复合物可在初级纤毛内的微管上运输货物25。Arl13b-mCherry 是一种广泛使用的纤毛标记蛋白,用于标记初级纤毛19。首先采用宽场落射荧光显微镜对同时表达 Arl13b-mCherry 和 IFT20-GFP 的初级纤毛进行成像,随后切换至 SPEED 显微镜,在对 SPEED 显微镜照明区域内的 GFP 荧光预先漂白至单分子水平后,追踪初级纤毛中单个 IFT20-GFP 蛋白的运动(图 4A-4C)。
最终,可以从活细胞的初级纤毛中获得数百个单分子IFT20-GFP的位置信息,其系统性定位精度可达< 16 nm(图4D)。根据我们的模拟结果,沿初级纤毛半径方向、半径为95 nm范围内的250个单分子位置足以重建出可靠的三维运输路径(图5)。IFT20-GFP运输路径的最终确定是基于从十条纤毛中收集的数千个单分子IFT20-GFP位置数据(图4E)。由于初级纤毛具有旋转对称结构,因此将二维到三维的转换算法应用于二维投影数据。有趣的是,IFT20的三维空间概率密度图显示,在初级纤毛半径方向约95 nm处,仅存在一个宽度约为60 nm的高密度区域达到峰值(图4E)。该高密度区域很可能与轴丝微管共定位,这与已知的IFT运输路径位置一致(图4F)。
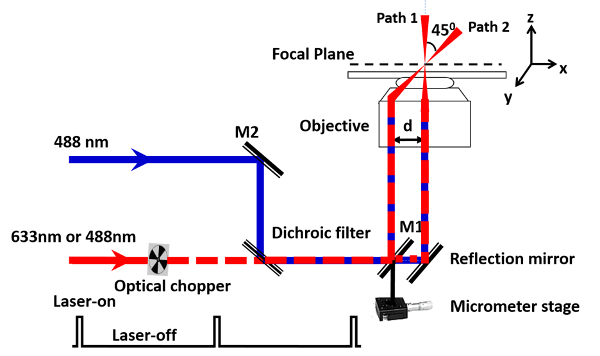
图 1.SPEED 显微镜的简化示意图。 使用垂直(路径 1)或倾斜(路径 2)的点扩散函数在焦平面上照射单个荧光分子。符号“d”表示垂直照明激光束(穿过物镜中心)与倾斜照明(通过将照明激光聚焦在物镜边缘实现)之间的距离。采用两个或多个由光学斩波器调控、以开关模式进行激发的激光器,用于追踪穿过核孔复合体(NPC)或初级纤毛的单个分子。关闭时间至少为靶向分子上荧光标记光漂白时间的十倍以上。请点击此处查看该图的放大版本。
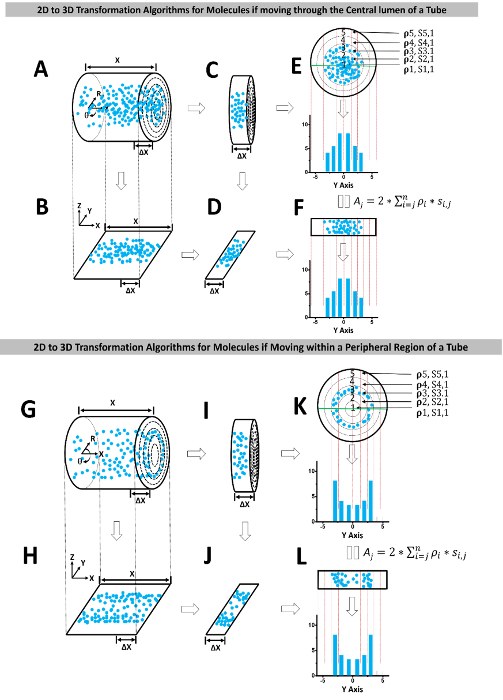
图 2.二维到三维转换过程的图示。 示意图展示了分子在管腔中心区域(A–F)或外周区域(G–L)扩散时,从二维到三维的转换算法。(A)管内随机扩散分子的理想三维空间位置可用柱坐标系(R, X, θ)表示。在 SPEED 方法中,最终仅根据二维空间位置计算三维密度图。然而,此为理想情况,用于说明无论已知的是二维还是三维空间位置,所得三维密度图是等效的。(B)A 中的三维分子位置通过显微成像投影到笛卡尔坐标系(X, Y, Z)的二维平面上。(C)沿 A 中圆柱体的 x 方向切割出一个极薄的切片(Δx)。(D)C 中切片内的三维空间位置可投影到一个狭窄的二维区域内。(E)C 中薄切片内所有位置的横截面视图。这些位置可被划分为同心环之间的子区域。由于圆柱体内分子数量众多且随机分布,同时切片极薄,因此相邻两环之间每个子区域(Si)内的空间位置密度(pi)具有旋转对称性和均匀性。这些位置可进一步沿 Y 维度投影为一维数据。若将 Y 维度上的位置以 j 个柱形进行聚类,则每个柱形内的总位置数(Aj)等于 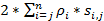 ,如(F)所示,该值可通过实验测量获得。(G–L)与上述类似,展示了分子在管状结构外周区域扩散时的转换过程。请点击此处查看该图的放大版本。
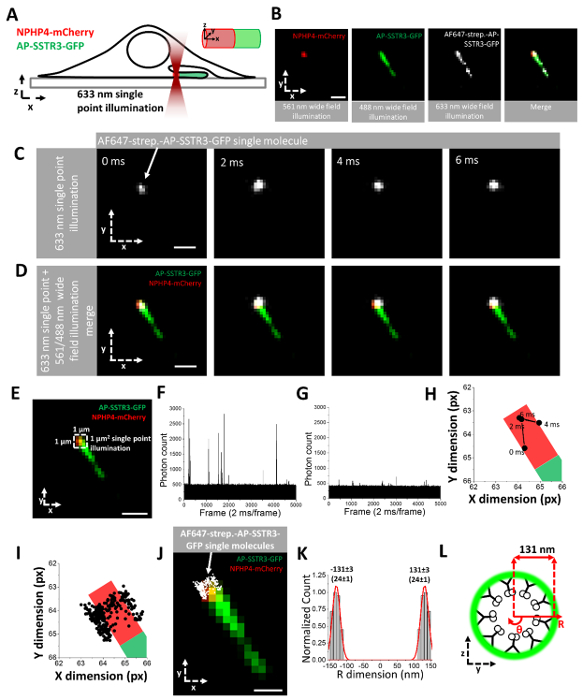
图3通过SPEED显微镜绘制活体初级纤毛中SSTR3转运通路的三维空间位置。 (A)SPEED显微技术用于追踪GFP标记的SSTR3蛋白通过由NPHP4-mCherry标记的纤毛转运区(TZ)的示意图。(B)NPHP4-mCherry(红色)、AP-SSTR3-GFP(绿色)、用于体外标记AP-SSTR3-GFP的Alexa647(白色)以及最终合并图像的落射荧光显微图像。比例尺: 2 µm(C) 单个Alexa 647标记的AP-SSTR3-GFP(白色)在点状照明区域中连续四帧(2 ms/帧)的运动轨迹。比例尺: 2 µm(D)来自(C)的单分子轨迹(白色)叠加在NPHP4-mCherry(红色)和AP-SSTR3-GFP(绿色)的落射荧光图像上。比例尺: 2 µm(E) 白色虚线方框标示以纤毛过渡区(TZ)为中心的单点照射区域。比例尺: 2 µm(F) 单个分子视频的光子计数与帧数关系图,该视频具有高信噪比,信噪比定义为单个分子的最大荧光强度除以背景荧光强度。(G) 单个分子视频的光子计数与帧数关系图,该视频具有低信噪比。(H) 来自(E)和(D)的轨迹,通过二维高斯拟合在每帧中定位,并叠加在中心粒远端附属结构(TZ)的精确图形表示上,TZ位置同样通过二维高斯拟合确定。二维高斯拟合过程将高斯函数拟合到包含单个分子点扩散函数(PSF)的感兴趣区域(AOI)的强度分布的X和Y维度上。(I) 从单个初级纤毛中采集的220个独立Alexa Fluor 647标记的AP-SSTR3-GFP分子位置的二维超分辨率空间分布图。(J) 将(I)中的超分辨率单分子位置叠加在NPHP4-mCherry(红色)和AP-SSTR3-GFP(绿色)的落射荧光图像上。比例尺: 2 µm(K) 通过二维到三维的转换算法,获得了Alexa Fluor 647标记的AP-SSTR3-GFP在初级纤毛上沿R维度的空间概率密度分布。基于高斯函数拟合,Alexa Fluor 647标记的AP-SSTR3-GFP主要定位于半径为131的纤毛膜上±3 纳米,半高宽(FWHM)为 24±1 nm。(L)初级纤毛上Alexa Fluor 647标记的AP-SSTR3-GFP的空间概率密度分布(绿色云状图)的横截面视图。 请点击此处以查看此图的放大版本。
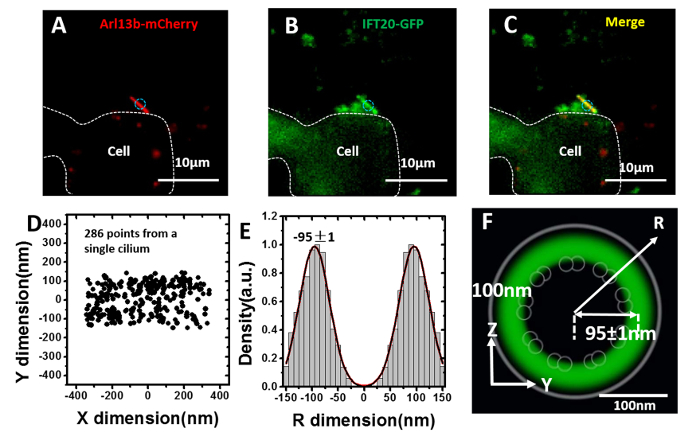
图4利用SPEED显微镜绘制活体初级纤毛内IFT20运输路径的三维空间定位。 (A-C) Arl13b-mCherry(A)与 IFT20-GFP(B)共表达于 NIH3T3 细胞中的代表性图像及合并图像(C)。圆圈(青色)表示 SPEED 显微镜对生长于细胞侧面的初级纤毛进行单点照射的位置(白色虚线),该细胞边界由细胞体内的 IFT20-GFP 荧光信号及明场照明(未显示)确定。比例尺: 10 µm(D)从单个初级纤毛中收集的286个IFT20-GFP单分子位置的二维超分辨率空间分布。(E)通过二维到三维转换算法,获得IFT20-GFP在初级纤毛内沿R维度的空间概率密度分布。基于高斯函数拟合,IFT20-GFP主要定位于半径为95的区域±1 纳米,半高宽(FWHM)为 56±5 nm。(F)初级纤毛中IFT20-GFP空间概率密度分布(绿色云状区域)的横截面视图,与H中的示意图叠加。比例尺:100 nm。 请点击此处以查看此图的放大版本。
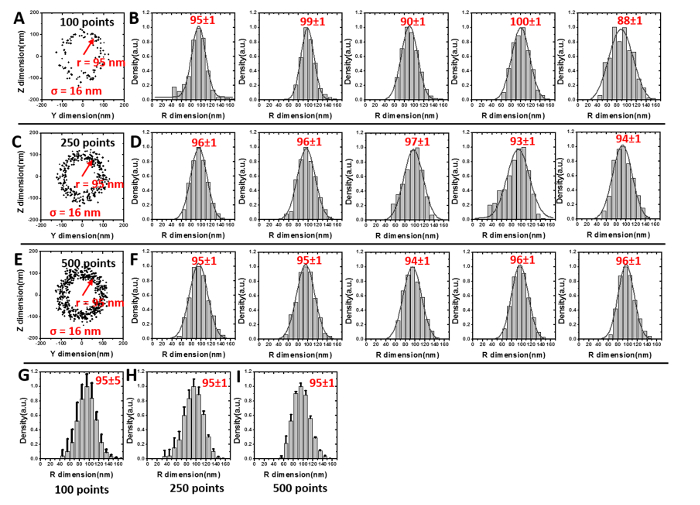
图5采用模拟方法估算生成可靠三维空间概率密度图所需的二维单分子定位事件的最小数量,以用于二维到三维的转换算法。 (A) 100 个通过计算机生成的单分子位置从以 95 nm 为中心的径向密度正态分布中随机采样(对应于本实验中确定的 IFT20 主要运输路径)。通过从标准差为 16 nm 的正态分布中采样,对每个单分子位置模拟出 16 nm 的定位精度 σ = 16 nm。如图所示 图2C,一片非常薄的切片(Δx)X 维度用于变换算法,因此在计算机生成的二维单分子位置图中不显示 X 维度。(B)Y 维度投影数据与三维 R 维密度之间的变换,生成五个不同模拟数据集(每个包含 100 个点)的三维 R 维密度直方图。上方数字为峰值位置 ± 拟合误差。(C-D)基于250个单分子定位的模拟结果。(E-F)基于500个单分子定位的模拟结果。(G-I)分别来自100、250和500个点模拟的平均三维密度直方图。误差棒表示直方图各区间高度的变异性,峰值上方的数值为平均峰值位置。 ± 标准差 请点击此处以查看此图的放大版本。
讨论
本方案描述了SPEED显微镜技术在初级纤毛中的应用,初级纤毛是一种高度依赖高效蛋白质运输的细胞信号传导细胞器。SPEED显微镜可在中心定位于过渡区(TZ)的单点照明条件下,提供荧光标记分子在通过时的高分辨率(< 10 nm)定位信息。此前,该技术已被用于研究核孔复合体(NPC)中的蛋白质运输6,7,8。然而,该方法也可拓展应用于研究任何亚衍射极限细胞腔隙中的物质运输过程。与其他高分辨率成像技术相比,该技术的优势在于能够在活细胞系统中以空间分辨率<10 nm和时间分辨率<2 ms的精度捕捉单个蛋白质运输的动力学过程。另一优势在于,只需对目标蛋白进行荧光标记,并通过转染(一种研究蛋白质定位的常用分子生物学方法)表达该构建体,即可开始进行SPEED显微镜观察。需要注意的是,高功率激光的单点照明是实现分子位置清晰分离和高分辨率定位的关键特征,但这也限制了照明区域,使该技术不适用于宽场定位成像。幸运的是,若需要宽场成像,研究者可从多种现有的宽场超分辨率技术中进行选择。另一个需要考虑的问题是,SPEED显微镜仅能捕捉运动中的单个分子的位置信息。因此,结合荧光漂白恢复技术(FRAP)——可用于确定可移动分子占总分子的比例——可能有助于进一步完善分析。
在笛卡尔坐标系与柱面坐标系之间的转换过程旨在生成一个虚拟的三维概率密度图,而非基于三维单分子追踪的三维视图。具体而言,电子显微镜数据显示,初级纤毛具有旋转对称结构,能够在特定半径上产生均匀的分子分布。这种均匀分布导致在柱面坐标系中沿 θ 方向的空间分布为常数。因此,三维坐标 (R, X, θ) 可简化为二维坐标 (R, X, 常数)。实际上,我们在笛卡尔坐标系与柱面坐标系之间的变换是从二维 (X, Y) 转换到二维 (R, X, 常数)。该常数 θ 对应的空间密度 p 可通过公式 A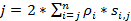 计算得到(图 2)。使用矩阵计算器计算向量
 ,其对应于横截面视图中相邻同心环之间的相对面积6,7 ,其中 Aj 为直接从实验中测得的位置 j 处的总相互作用位点数;因此,pi(即位于 ri 处的相互作用位点的空间概率密度)可通过求解矩阵方程 A 获得。
该实验方案中的一个关键步骤是在获取参考图像与单分子成像视频之间,尽量减少显微镜系统受到的任何扰动。如果发生位移,则无法准确地将单分子定位信息与通过落射荧光成像获得的初级纤毛超微结构相对应。另一个关键步骤是进行适度的光漂白,使照明区域内的荧光标记单分子局部浓度降低,但又不至于完全漂白。以SSTR3为例,其扩散系数相较于可溶性分子较慢,未被光漂白的SSTR3分子群体重新扩散进入光漂白区域所需的时间将超过两分钟,而超过该时间后,纤毛漂移的影响将不可忽略。如果难以达到理想的光漂白程度,且背景荧光仍然较高,可采用倾斜照明激光的方式,减少成像平面之上和之下的荧光标记单分子被激发的数量。这将降低背景信号,提高每个捕获单分子的信噪比。
总之,通过添加激光照明光源、相关反射镜和高速CCD相机,SPEED显微镜技术可轻松实现在常规显微镜系统上的搭建。相较于其他类似技术,其主要进步在于采用了倾斜激光,显著降低了背景荧光,以及采用了二维到三维的转换算法,能够从二维单分子位置重建出三维空间概率密度图。从生物学角度来看,除目标蛋白标记荧光染料外,无需额外标记。这些特性使得SPEED显微镜能够在亚微米级具有旋转对称结构的生物腔或生物通道中,以高时空分辨率(5–10 nm,0.4–2 ms)追踪单个分子的运动。结合三维概率密度转换算法,可确定标记蛋白在腔体或通道内的三维运输路径。该技术此前已被用于区分蛋白质和RNA在核孔复合体(NPC)中的三维运输路径;在此,我们展示了SSTR3(一种跨膜蛋白)和IFT20(一种胞质蛋白)在初级纤毛过渡区(TZ)中的三维运输亦可实现。其他超分辨率技术,例如3D-STORM,通过在光路中放置柱面透镜,根据单分子在焦平面之上或之下的位置产生不对称的点扩散函数(PSF)形变,从而获得单分子的x、y、z坐标28。另一种改进可能尝试采用虚拟针孔技术,以减小发射PSF的宽度,从而进一步提高分辨率。上述技术均可较为便捷地整合至SPEED显微镜系统中。总体而言,在特定条件下,SPEED显微镜为活细胞系统中细胞器间或细胞器内分子运输研究提供了一种独特的方法,可同时以超高时空分辨率测定单分子水平的运输动力学及运输路径的三维图谱。
披露
作者声明无利益冲突。
致谢
我们感谢密歇根大学安娜堡分校的 Kristen Verhey 博士和马萨诸塞大学医学院的 Gregory Pazour 博士提供部分质粒。本项目获得了美国国立卫生研究院(NIH GM097037、GM116204 和 GM122552 至 W.Y.)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 25 cm2 组织培养皿 | Corning | VV-01936-00 | |
| 青霉素/链霉素 | ThermoFisher | 15140122 | |
| 胎牛血清 | ThermoFisher | 10438018 | |
| DMEM | ThermoFisher | 10566-016 | |
| OPTIMEM | ThermoFisher | 31985062 | |
| 胰蛋白酶 | ThermoFisher | 25300054 | |
| 磷酸盐缓冲液 | Sigma-Aldrich | P3813-1PAK | |
| Transit LT1 | Mirus | MIR 2300 | |
| 35 mm 玻璃底培养皿 | MatTek | P35GCOL-0-14-C | |
| AlexaFluor 647 标记的链霉亲和素 | ThermoFisher | S21374 | |
| 生物素 | Sigma-Aldrich | B4501-100MG | |
| 633 nm 氦-氖激光器 | Melles Griot | 25-LHP-928-249 | |
| 561 nm 固态激光器 | Coherent | OBIS 561-50 LS | |
| 488 nm 固态激光器 | Coherent | 1185053 | |
| 倒置荧光显微镜 | Olympus | IX81 | |
| 1.4 数值孔径 100× 油浸复消色差物镜 | Olympus | UPLSAPO 100× | |
| 片上乘法增益电荷耦合器件相机 | Roper Scientific | Cascade 128+ | |
| 二向色镜滤光片 | Semrock | Di01- R405/488/561/635-25x36 | |
| 发射滤光片 | Semrock | NF01-405/488/561/635-25X5.0 | |
| Slidebook 6.0 | Intelligent Imaging Innovations | 数字显微成像软件 |
参考文献
- Huang, B., Bates, M., Zhuang, X. Super-resolution fluorescence microscopy. Annu Rev Biochem. 78, 993-1016 (2009).
- Leung, B. O., Chou, K. C. Review of super-resolution fluorescence microscopy for biology. Appl Spectrosc. 65, 967-980 (2011).
- Willig, K. I., Rizzoli, S. O., Westphal, V., Jahn, R., Hell, S. W. STED microscopy reveals that synaptotagmin remains clustered after synaptic vesicle exocytosis. Nature. 440, 935-939 (2006).
- Betzig, E., et al. Imaging intracellular fluorescent proteins at nanometer resolution. Science. 313, 1642-1645 (2006).
- Rust, M. J., Bates, M., Zhuang, X. Sub-diffraction-limit imaging by stochastic optical reconstruction microscopy (STORM). Nat Meth. 3, 793-796 (2006).
- Ma, J., Yang, W. Three-dimensional distribution of transient interactions in the nuclear pore complex obtained from single-molecule snapshots. Proc Natl Acad Sci USA. 107, 7305-7310 (2010).
- Ma, J., Goryaynov, A., Sarma, A., Yang, W. Self-regulated viscous channel in the nuclear pore complex. Proc Natl Acad Sci USA. 109, 7326-7331 (2012).
- Ma, J., et al. High-resolution three-dimensional mapping of mRNA export through the nuclear pore. Nat Comm. 4, (2013).
- Akey, C. W., Radermacher, M. Architecture of the Xenopus nuclear pore complex revealed by three-dimensional cryo-electron microscopy. J Cell Biol. 122, 1-19 (1993).
- Akey, C. W. Interactions and structure of the nuclear pore complex revealed by cryo-electron microscopy. J Cell Biol. 109, 955-970 (1989).
- Czarnecki, P. G., Shah, J. V. The ciliary transition zone: from morphology and molecules to medicine. Trends Cell Biol. 22, 201-210 (2012).
- Elf, J., Li, G. -W., Xie, X. S. Probing transcription factor dynamics at the single-molecule level in a living cell. Science. 316, 1191-1194 (2007).
- Anzalone, A., Annibale, P., Gratton, E. 3D orbital tracking in a modified two-photon microscope: an application to the tracking of intracellular vesicles. J Vis Exp. , (2014).
- Ritter, J. G., Veith, R., Veenendaal, A., Siebrasse, J. P., Kubitscheck, U. Light sheet microscopy for single molecule tracking in living tissue. PloS one. 5, 11639(2010).
- Marshall, W. F., Nonaka, S. Cilia: tuning in to the cell's antenna. Curr Biol. 16, 604-614 (2006).
- Scholey, J. M., Anderson, K. V. Intraflagellar transport and cilium-based signaling. Cell. 125, 439-442 (2006).
- Yang, T. T., et al. Superresolution pattern recognition reveals the architectural map of the ciliary transition zone. Sci Rep. 5, 14096(2015).
- Craige, B., et al. CEP290 tethers flagellar transition zone microtubules to the membrane and regulates flagellar protein content. J Cell Biol. 190, 927-940 (2010).
- Kee, H. L., et al. A size-exclusion permeability barrier and nucleoporins characterize a ciliary pore complex that regulates transport into cilia. Nat Cell Biol. 14, 431-437 (2012).
- Najafi, M., Maza, N. A., Calvert, P. D. Steric volume exclusion sets soluble protein concentrations in photoreceptor sensory cilia. Proc Natl Acad Sci USA. 109, 203-208 (2012).
- Nachury, M. V., Seeley, E. S., Jin, H. Trafficking to the ciliary membrane: how to get across the periciliary diffusion barrier. Annu Rev Cell Dev Biol. 26, 59-87 (2010).
- Ye, F., et al. Single molecule imaging reveals a major role for diffusion in the exploration of ciliary space by signaling receptors. Elife. 2, 00654(2013).
- Ross, A. J., et al. Disruption of Bardet-Biedl syndrome ciliary proteins perturbs planar cell polarity in vertebrates. Nat Genetics. 37, 1135-1140 (2005).
- Handel, M., et al. Selective targeting of somatostatin receptor 3 to neuronal cilia. Neuroscience. 89, 909-926 (1999).
- Follit, J. A., Tuft, R. A., Fogarty, K. E., Pazour, G. J. The intraflagellar transport protein IFT20 is associated with the Golgi complex and is required for cilia assembly. Mol Biol Cell. 17, 3781-3792 (2006).
- Awata, J., et al. NPHP4 controls ciliary trafficking of membrane proteins and large soluble proteins at the transition zone. J Cell Sci. 127, 4714-4727 (2014).
- Howarth, M., Ting, A. Y. Imaging proteins in live mammalian cells with biotin ligase and monovalent streptavidin. Nat Protoc. 3, 534-545 (2008).
- Huang, B., Wang, W., Bates, M., Zhuang, X. Three-dimensional super-resolution imaging by stochastic optical reconstruction microscopy. Science. 319, 810-813 (2008).
重印与许可
