我们描述了一种组织化学方法,该方法可揭示不同脑区中特征性的分层和分区锌染色模式。这种锌染色模式可与其他解剖学标记联合使用,以可靠地区分发育中和成年脑组织中的各层结构与脑区。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
准确识别未成熟和成年大脑中的不同神经回路与脑区,是刻画脑的解剖与功能组织及其发育过程的基础。本文介绍一种锌组织化学染色方法,可揭示不同脑层及脑区之间染色模式的差异。已有研究利用该方法不仅展示了脑内含锌神经元和神经回路的分布,还成功划定了多个物种在发育期和成年期脑组织中的区域及分层边界。本文以雪貂发育期和成年期脑组织的图像为例,说明该染色方法的应用。我们展示的锌染色模式可作为脑区与分层的解剖学标志物,并能可靠地区分发育期和成年期视觉皮层中的不同视觉区域。本实验方案的主要目标是提供一种组织化学方法,用于在其他方法难以实现的情况下,准确识别发育期和成年期脑组织中的分层与区域结构。其次,结合光密度图像分析,该方法还可用于评估突触锌的分布,揭示其在发育过程中可能发生的改变。本方案详细描述了对冷冻脑切片进行成功染色所需的试剂、工具和操作步骤。尽管本方案以雪貂脑组织为例进行说明,但该方法亦可轻松适用于啮齿类、猫、猴以及其他脑区的研究。
引言
组织学染色传统上用于揭示不同物种皮层区域在结构特征上的差异,从而辅助识别皮层分区。联合使用尼氏物质、细胞色素氧化酶(CO)活性或髓鞘的组织化学技术往往效果显著,因为这些方法在成年脑中可显示出相似的区域边界。然而,这些组织化学染色在未成熟脑中并不总能充分显示皮层区域和层次之间的清晰边界。
在中枢神经系统中,锌具有多种关键功能,包括稳定DNA结构、作为酶的辅助因子、参与多种调节功能,以及通过存在于突触小泡中发挥神经调质作用1。突触锌的独特之处在于可通过组织化学方法进行可视化观察,而与蛋白质结合的锌则无法被直接观察到2。这一特性已被用于揭示不同皮层区域中的突触锌分布模式,突触锌组织化学技术已在多项研究中得到应用。大脑皮层中的一部分谷氨酸能神经元在其轴突末梢的突触前小泡中含锌3,4。组织化学研究表明,突触锌在大脑皮层中的分布具有异质性5,6,7。不同皮层区域(例如,视觉皮层与躯体感觉皮层)或不同皮层层次(例如,初级视觉皮层的上粒层和下粒层中的锌水平显著高于丘脑皮层传入层IV,后者突触锌水平相对较低)中,组织化学可检测的锌在区域和层次上的分布存在差异5,8,9。皮层中观察到的突触锌染色异质性具有显著优势,有助于皮层区域和层次的识别与区分。
本文详细介绍了一种突触锌组织化学染色方法,该方法是对 Danscher 于 1982 年提出的方法10的改进版本。该方法通过腹腔注射(IP)将亚硒酸盐注入动物体内作为螯合剂。亚硒酸盐进入大脑后,与脑内部分谷氨酸能突触囊泡中存在的游离锌池发生反应。该反应生成的沉淀物可通过银显影进一步增强2,10,11。
该方法可揭示突触锌染色的层状和区域分布模式;通过密度测量分析,可对成年和未成熟脑组织中这些模式进行定性和定量评估,以研究其他干预措施(如感觉、环境、药物或遗传操作)的影响。此外,也可用于评估其他模型系统中皮层或皮层下结构突触锌分布可能存在的发育变化。该方法中密度测量分析所提供的定量信息,有利于追踪脑发育的动态变化。本方案可与其他免疫组织化学和组织化学标记物联合使用,以揭示脑组织的层状结构和区域边界。
访问受限。请登录或开始试用以查看此内容。
方案
以下方案遵循纽约市立学院机构动物照护与使用委员会(IACUC)制定的动物护理指南,该指南符合所有适用的州级和联邦级规定。麻醉适用于雪貂,应根据所研究的物种进行相应调整。
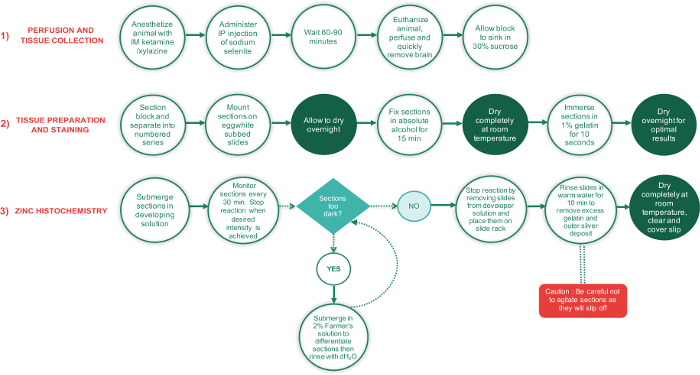
图1:本实验方案三个阶段主要步骤的流程图及各步骤所需时间。 需要切片完全干燥的阶段以绿色文字圆圈标示,其余所有步骤以白色文字圆圈标示。绿色菱形文字框为决策点,红色矩形框为关键步骤,需格外谨慎操作。请点击此处查看该图的放大版本。
1. 准备步骤(载玻片处理与溶液配制)
- 用热水中的洗涤剂清洗未涂覆的载玻片,并用温水冲洗数次,再用蒸馏水冲洗,以彻底去除任何污垢或碎屑。让载玻片在室温下干燥,或在37 °C的烘箱中干燥。
- 载玻片完全干燥后,用手指或画笔在每张载玻片上均匀涂上一层薄薄的蛋清。在60 °C的烘箱中干燥20–30分钟。为获得最佳效果并防止切片脱落,可再涂一层蛋清,并再次于60 °C烘箱中干燥。
- 将1克明胶溶于100 mL热水(60 °C)中,配制1%明胶溶液,并使其冷却至室温。
- 按以下方法配制200 mL显影液,用于第4节操作。
- 通过将40 g阿拉伯树胶分次缓慢加入120 mL热水中(此方法更易溶解)来配制阿拉伯树胶溶液。使用玻璃搅拌棒持续搅拌溶液。待溶液完全溶解后,从热源移开并冷却数分钟,然后通过漏斗中6–8层纱布过滤。
- 在20 mL dH2O中加入5.04 g柠檬酸和4.7 g柠檬酸钠,溶解后配制柠檬酸盐缓冲液。确保该溶液在25 °C时pH为4.0。如有必要,通过向溶液中添加氢氧化钠或盐酸调节pH。
- 加热30 mL dH2O并溶解1.7 g对苯二酚,以配制对苯二酚溶液。
注意:加热对苯二酚溶液至关重要,因为对苯二酚在室温下难溶于水,加热有助于其溶解。需注意将水温保持在60 °C以下,否则对苯二酚可能被氧化。若溶液变黄,应弃去并重新配制新鲜溶液。 - 将0.22 g乳酸银溶于30 mL dH2O中,配制乳酸银溶液。
- 在准备进行反应时(即切片、干燥和固定后)(图2),按上述顺序(1.4.1–1.4.4)混合各溶液。最后加入乳酸银溶液。请确保此步骤快速完成,并将显影液置于暗处保存,直至开始切片反应,因为乳酸银具有光敏性。
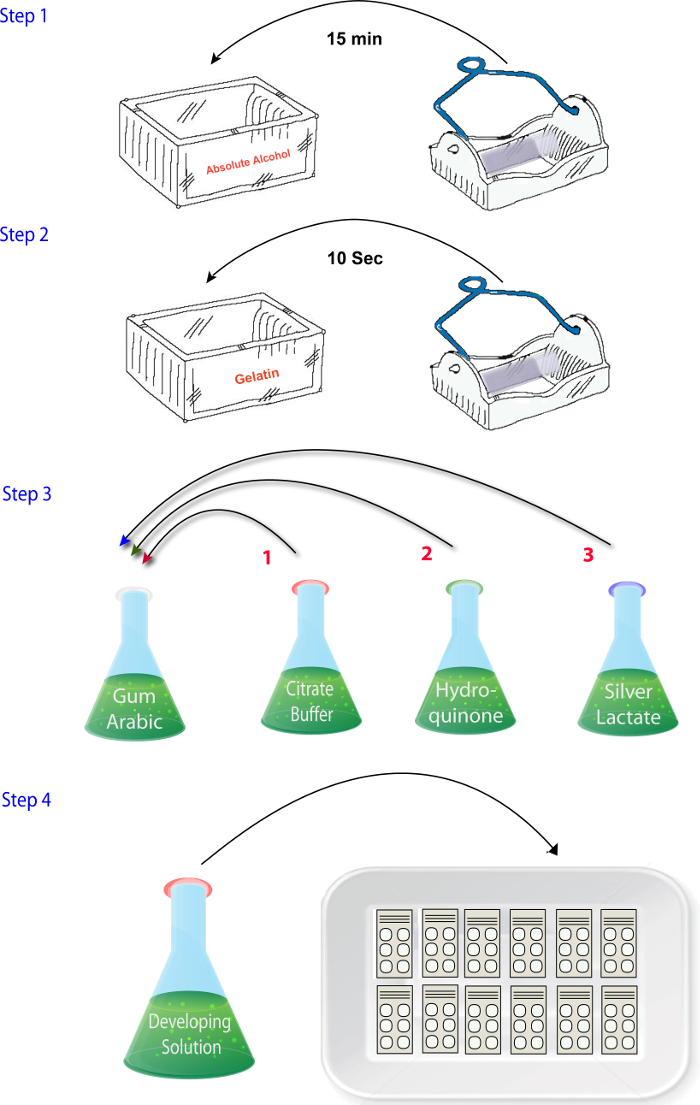
图 2:示意图,展示在锌组织化学实验步骤中混合试剂的操作顺序。 请点击此处查看此图的放大版本。
2. 动物处理与麻醉
- 在对动物进行镇静之前,通过将10 mg亚硒酸钠溶于1 mL去离子水(dH2O)中,配制1%的亚硒酸钠(Na2SeO3)溶液。
- 通过肌肉注射给予氯胺酮(25 mg/kg)和赛拉嗪(2 mg/kg)以麻醉动物。
注意:应通过足底反射反应确认已达到适当的麻醉深度。 - 腹腔注射(IP)锌螯合剂亚硒酸钠溶液(15 mg/kg)。
注意:亚硒酸钠在不同年龄阶段或其他物种中的毒性可能有所不同。 - 给予60至90分钟时间,使亚硒酸钠进入脑组织。在此期间,必须确保动物处于充分镇静且无反应状态,因此应每5分钟检查一次麻醉深度。
- 在亚硒酸钠作用期间,当动物处于麻醉状态时,应确保其眼睛闭合以防止干燥,或涂抹眼用软膏以保持湿润。
3. 组织制备与染色
- 通过腹腔注射过量戊巴比妥钠(100 mg/kg)处死动物。
- 先用生理盐水灌流1分钟,再用4%多聚甲醛灌流20分钟。最后使用含4%多聚甲醛和10%蔗糖的溶液进行灌流(总固定时间为1小时)。
- 使用大型剪刀切除头部。
- 用手术刀从鼻部至颈部做正中切口,暴露颅骨。
- 小心取出脑组织,并用刀片分离左右半球。
- 切取脑组织后部进行取材,并在0.1 M磷酸盐缓冲液(PB)中含4%多聚甲醛的溶液中后固定数小时。
- 将脑组织块放入含30%蔗糖的0.1 M PB溶液中,直至脑组织完全沉底。
注意:使用0.1 M PB中的30%蔗糖溶液替代含4%多聚甲醛和30%蔗糖的溶液进行沉底处理,可减少脑组织对多聚甲醛的暴露,从而避免影响组织染色质量。 - 待脑组织沉底后,在冷冻切片机或恒冷切片机上对视觉皮层或目标区域进行半切向连续切片,厚度为40 µm。操作时可将组织块内侧面朝下放置,并用玻片轻轻压平。
- 用画笔收集切片,并储存在含有磷酸盐缓冲液(PBS)的切片盒中。
- 将切片分装为若干编号系列。立即取其中一至两系列脑切片贴附于蛋清涂覆的载玻片上(见第1节),室温下过夜干燥,随后进行突触锌的组织化学染色处理。
注意:其余系列切片可根据需要采用改良方案进行其他标志物的染色对比,例如髓鞘12或细胞色素氧化酶13:在0.1 M PB中加入3%蔗糖、0.015%细胞色素C、0.015%过氧化氢酶和0.02%二氨基联苯胺,于40 °C孵育2–8小时。尼氏物质也可作为组织学标志物用于区分视觉皮层层区。这些其他组织学染色无需使用蛋清涂覆载玻片,可改用传统的明胶包被载玻片。
4. 突触锌组织化学染色
- 将载玻片上的切片在无水乙醇中固定15分钟,然后于室温下完全干燥1小时。
- 将切片在1%明胶溶液(第1节)中短暂浸泡10秒,室温下干燥过夜。
注意:为获得最佳效果,应让切片过夜干燥。过夜干燥切片可获得更佳的组织染色效果。 - 按照步骤1.8所述,将溶液混合,待切片准备好进行反应时立即使用。
- 将切片置于玻璃或塑料托盘中,使载玻片并排排列,倒入显色液。确保载玻片完全浸没于溶液中,随后将托盘放入暗处,或用避光盒覆盖。
注意:可使用一个长约12英寸、宽约8英寸的塑料托盘,恰好可容纳18张载玻片。总共200 mL显影液足以完全浸没这些载玻片,因此应确保所用液体体积与待反应的载玻片数量相匹配,并相应调整配方。建议使用塑料或玻璃托盘,而非金属托盘,因为显影液中的乳酸银与金属托盘中的铁或其他金属之间可能存在一定程度的交叉反应。
- 将切片置于玻璃或塑料托盘中,使载玻片并排排列,倒入显色液。确保载玻片完全浸没于溶液中,随后将托盘放入暗处,或用避光盒覆盖。
- 每隔30分钟通过肉眼观察切片以监测反应进程。切片通常需要120至180分钟完成完全显色。
- 如果切片染色过深(参见 图3a),在2% Farmer溶液(9份2%硫代硫酸钠溶于dH₂O)中分化2O 和 1 份 2% 铁氰化钾溶液(dH₂O)2O)持续 1 - 2 分钟。
注意:图中显示的是染色效果较差的样本区域 图3b. - 一旦达到所需强度,立即将载玻片上的切片从染色缸中取出并置于载玻片架上,以终止反应。
- 将载玻片架放入一个较大的玻璃染色缸中,用温水(40 - 50 °C用流动水冲洗10分钟,以去除明胶包被和外层银沉积物。
注意:操作时需小心避免晃动载玻片架,以防组织切片脱落。当观察到明显的层状结构变化,且切片染色足够深但未过度反应时,即达到理想的切片染色强度(参见 图 4a). - 将载玻片在室温下晾干,随后在100%乙醇中脱水(5分钟),二甲苯中透明(5分钟),并用封片介质加盖盖玻片。或者,将载玻片依次放入递增浓度的酒精系列中,然后进行脱水、透明和封片。
- 使用未经亚硒酸盐处理的动物组织切片作为阴性对照。这些切片经银放大后应无染色信号。
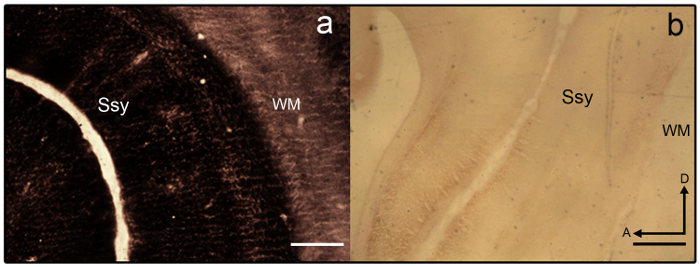
图 3:幼年雪貂脑中的突触锌染色。 幼年雪貂脑中半切向锌染色切片的显微照片,其中 a) 染色过深,b) 染色过浅。由于缺乏层状变化,难以分辨区域边界。白质也受到强烈染色。Ssy 超斯氏裂皮层,WM 白质,A 前部,D 背侧。比例尺 = 500 µm(a-b)。请点击此处查看此图的放大版本。
5. 区分区域边界与图像采集
- 利用不同脑区的结构特征进行分区和分层识别。
注意:例如,在发育中的大鼠压后皮层14中,研究人员发现了一种短暂的模块化结构,其特征是锌染色较深,这种结构在成年个体中并不存在,但可用于描述该物种发育过程中皮层的组织方式。在另一项研究中15,研究人员揭示了猕猴杏仁核中不同核团突触锌分布的特异性,有助于识别这些分区。雪貂发育期和成年期视觉皮层区域此前已有描述16,17,18,灰松鼠新皮层的结构分区也已有报道19。此外,锌组织化学染色此前已被用于区分成年猴视觉皮层8、发育期和成年猫视觉皮层5、发育期大鼠体感皮层9,20以及成年小鼠体感皮层6,21中的不同区域。若有条件,可比较髓鞘染色、细胞色素氧化酶(CO)染色和突触锌染色脑切片中的染色模式,以确认成年个体中的分区边界。在雪貂视觉皮层的半切向切片中,经突触锌染色后,不同视觉皮层区域之间存在显著差异,有助于分区识别。例如,成年雪貂的17区和18区显示,突触锌染色在I–III层和V层较强,VI层染色较弱,而IV层几乎无锌染色。17区和18区IV层明显缺乏锌染色,这与CO染色切片中IV层出现的深染条带形成鲜明对比。然而,在CO染色切片中,17区的IV层与III层和V层之间边界清晰,而18区的IV层则表现为染色强度轻微下降,其上边界位于III层,且较难分辨。 - 使用明场显微镜配合低倍物镜(2X 或 4X 放大倍数)观察切片,并拍摄感兴趣区域。
- 使用图像处理软件增强显微照片的对比度和亮度。用于光密度测量的图像不得以任何方式修改。
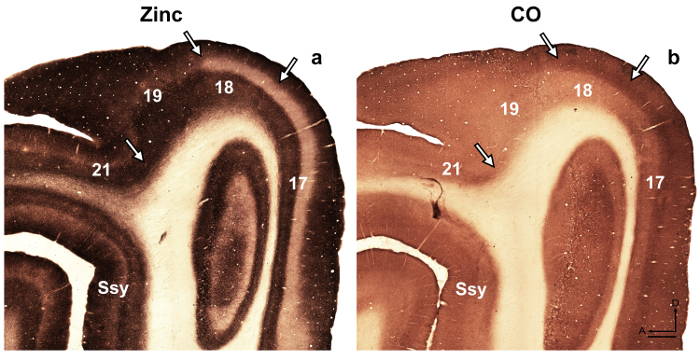
图4:成年雪貂脑内突触锌染色可区分不同的视觉皮层区域。 成年雪貂相邻半切向切片的显微照片,分别进行(a)突触锌染色或(b)细胞色素氧化酶(CO)染色。箭头标示区域边界。Ssy:大脑上沟皮层,A:前部,D:背侧。比例尺 = 500 µm。 请点击此处查看该图的放大版本。
6. 密度测定法(可选)
注意:可通过测量感兴趣区域中代表性锌染色切片的光密度,利用光密度分析评估脑内突触锌的分布情况。该方法还可用于追踪发育过程中突触锌水平的潜在变化。
- 使用选定的锌染色切片,从目标区域获取的显微照片中随机选择适当宽度的皮层柱(柱状显微图像)(可采用宽度为 450 µm 的柱)。皮层柱是指从软脑膜表面延伸至白质、贯穿所有皮层层次的区域。
- 从每个目标区域的多个不同脑切片中选取适当数量的样本柱。
- 将代表性柱的样本图像导入图像处理软件。
- 使用矩形选择工具框选整个皮层柱。
- 使用反相工具生成对比度反转的图像,使其类似于该柱的摄影负片。
注意:对图像进行对比度反相的目的是使突触锌含量高的区域呈现高光密度值,而突触锌含量低的区域呈现低光密度值。这种处理方式更直观,便于生成类似于图5所示的轮廓图。 - 利用轮廓分析工具,从这些图像生成沿一条线的像素强度二维图,以获得光密度分布曲线。
- 使用绘图选项将轮廓图转换为垂直分布图,然后再次点击轮廓分析功能。
注意:横轴表示沿直线的距离,纵轴表示像素强度。因此,每个轮廓值反映了在柱宽度范围内每一深度的平均灰度值。 - 将轮廓分析值作为文本文件导入电子表格软件,进行归一化处理并绘制成图表(见图5)。
注意:建议使用突触锌的相对密度来进行定量测量的比较,因为不同反应时间、组织染色能力及其他变量可能导致整体染色强度差异,从而干扰结果。 - 通过首先对轮廓值进行箱式平均(boxcar average)以平滑数据,计算相对锌密度。
注意:例如,可在深度方向上对连续的每20或30个像素(1像素 = 2.5 µm)取平均值,然后将每个样本归一化至其最大强度。因此,每个平均轮廓值代表该深度处的平均灰度值(灰度值范围为0至255)。也可采用另一种归一化方法:首先从包含目标区域下方白质的样本区域获取白质(WM)光密度值。理想情况下,选择若干染色最浅的区域以获得平均WM值。随后将各平均光密度值除以平均WM值得到白质归一化的数值。 - 在目标区域的特定皮层中确定平均光密度值,用于定量比较。
注意:例如,通过框选染色最浅区域并扩展±5像素,可确定雪貂视觉皮层第IV层的平均最小光密度值。 - 通过框选染色最深区域并扩展±5像素,计算雪貂视觉皮层颗粒上层和颗粒下层的平均光密度值,以确定平均最大值。
- 确保平均光密度值是从特定皮层内获取的。
注意:必须通过将反相对比图像与原始显微照片以及相邻的细胞色素氧化酶(CO)切片进行比较,来验证这些皮层边界的准确性。这可确保不会侵入邻近皮层。
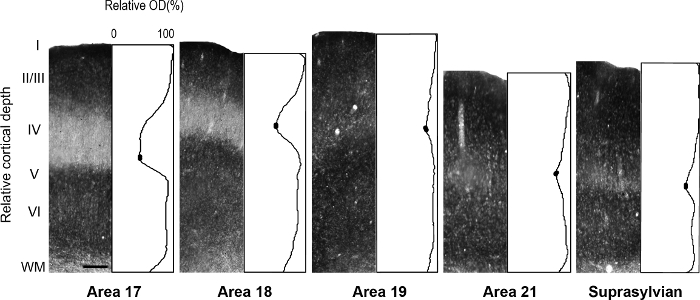
图 5:成年雪貂不同视觉皮层区域中突触锌的层状分布。 成年个体中贯穿所有皮层各层的代表性显微照片及其相应的归一化光密度分布图。成年17区和18区第IV层中较低的突触锌密度在分布曲线中表现为波谷。在每条分布曲线中,第IV层波谷处的实心椭圆表示用于确定平均最小像素强度值的数据点。比例尺 = 200 µm。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
本方案中用于突触锌染色脑切片的主要步骤以流程图形式展示于图1。该方案可分为三个阶段:1)灌注与组织采集,2)组织制备与染色,3)锌组织化学染色。简而言之,在第一阶段中,先对动物进行麻醉,并腹腔注射适当剂量的亚硒酸钠。经过足够时间(理想为60–90分钟)后,将动物实施安乐死,依次用0.9% NaCl溶液和4%多聚甲醛溶液进行灌注。随后将头部离体,迅速从颅骨中取出脑组织。将脑组织置于含4%多聚甲醛和30%蔗糖的溶液中沉底,以蔗糖作为冷冻保护剂。在第二阶段中,使用滑动式切片机将冷冻脑组织切成40 µm厚的切片,收集于磷酸盐缓冲液(PBS)中,并按编号分组。切片完成后应立即贴附于蛋清涂覆的载玻片上,并在室温下过夜干燥,以获得最佳效果。不推荐使用明胶涂覆的载玻片,因为涂片液中常用的铬钾硫酸盐会与乳酸银发生交叉反应,导致染色效果不理想。随后将切片在纯酒精中孵育15分钟,并在室温下完全干燥。接下来,将贴好切片的载玻片短暂浸入预先配制的1%明胶溶液中,再于室温下过夜干燥以获得最佳结果。在第三阶段(锌组织化学染色)中,根据方法部分...
访问受限。请登录或开始试用以查看此内容。
讨论
本研究采用一种基于Danscher(1982)方法改良的组织化学技术10,用于检测和可视化脑内突触锌的定位。该方法的基本原理是向动物注射锌螯合剂亚硒酸钠(Na2SeO3)(15 mg/kg)。注射后,亚硒酸根进入脑组织并与含锌神经元突触前囊泡中的游离锌结合。突触囊泡内与分子结合的锌离子发生沉淀,随后可通过物理显影技术进行可视化2,11。原始的Timm硫化银染色法旨在检测和显示生物组织中的多种重金属,如Au、Ag、Pt、Fe、Cd、Cu、Ni和Zn22。该方法使用的螯合剂为硫化钠。因此,使用Timm硫化法的一个主要问题是特异性差,因为任何能够转化为金属硫化物的金属都可能通过物理显影被银增强。然而,本研究中所采用的Danscher方法改良版对锌具有特异性,不与其他重金属发生反应。Danscher于1982年提出的方法与本研究描述的方法之间存在若干差异:Danscher使用未经固定的鲜脑组...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了以下机构资助:美国国立卫生研究院下属的国家研究资源中心(2G12RR03060-26A1);美国国立卫生研究院下属的少数族裔健康与健康差异研究所(8G12MD007603-27);纽约市立大学专业职员大会(PSC-CUNY);以及沙迦美国大学教员研究资助(FRG II)。我们感谢 Vidyasagar Sriramoju 向我们介绍这些方法。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 戊巴比妥钠安乐死溶液(Euthasol,安乐死溶液) | Henry Schein | 710101 | |
| 亚硒酸钠 | Sigma-Aldrich | 214485 | |
| 氯胺酮(Ketaved) | Henry Schein | 48858 | 100 mg/ml 注射剂 |
| 赛拉嗪(Xylazine,Anased) | Henry Schein | 33198 | 100 mg/ml 注射剂 |
| 多聚甲醛 | Sigma-Aldrich | F8775 | 稀释至 4% |
| 阿拉伯树胶 | Sigma-Aldrich | G9752-500G | |
| 柠檬酸 | Sigma-Aldrich | C1909 | |
| 柠檬酸钠 | Sigma-Aldrich | W302600 | |
| 对苯二酚 | Sigma-Aldrich | H9003 | |
| 乳酸银 | Sigma-Aldrich | 85210 | |
| 鱼明胶 | Sigma-Aldrich | G7765 | |
| 细胞色素 c | Sigma-Aldrich | C2506 | (III 型,来源于马心) |
| 过氧化氢酶 | Sigma-Aldrich | C10 | |
| 蔗糖 | Domino | ||
| 二甲苯 | Fisher Scientific | X5P-1GAL | |
| Permount 中性树胶 | Fisher Scientific | SP15-500 | |
| 100% 乙醇 | Fisher Scientific | A406-20 | 封片前用于脱水 |
| 盖玻片 | Brain Research Laboratories | #3660-1 | |
| 磨砂载玻片 | Brain Research Laboratories | #3875-FR | |
| 切片机 | American Optical Company | 860 | |
| 显微镜 | Olympus | BX-60 | |
| Adobe Photoshop | Adobe Systems, San Jose, CA | 用于图像拼接 | |
| ImageJ | 免费软件,可从 http://rsb.info.nih.gov/ij/ 下载 | 用于密度测量 | |
| 塑料托盘 | 任何标准塑料托盘均可使用 | 用于将载玻片浸入显影液中 | |
| 加热板 | 任何标准加热板均可使用 |
参考文献
- Nakashima, A., Dyck, R. H. Zinc and cortical plasticity. Brain Res. Rev. 59, 347-373 (2009).
- Frederickson, C. J. Neurobiology of zinc and zinc-containing neurons. Int Rev Neurobiol. 31, 145-238 (1989).
- Beaulieu, C., Dyck, R., Cynader, M. Enrichment of glutamate in zinc-containing terminals of the cat visual cortex. NeuroReport. 3 (10), 861-864 (1992).
- Martinez-Guijarro, F. J., Soriano, E., Del Rio, J. A., Lopez-Garcia, C. Zinc-positive boutons in the cerebral cortex of lizards show glutamate immunoreactivity. J Neurocytol. 20 (10), 834-843 (1991).
- Dyck, R., Beaulieu, C., Cynader, M. Histochemical localization of synaptic zinc in the developing cat visual cortex. J Comp Neurol. 329 (1), 53-67 (1993).
- Garrett, B., Geneser, F. A., Slomianka, L. Distribution of acetylcholinesterase and zinc in the visual cortex of the mouse. Anat Embryol. (Berl). 184 (5), 461-468 (1991).
- Garrett, B., Osterballe, R., Slomianka, L., Geneser, F. A. Cytoarchitecture and staining for acetylcholinesterase and zinc in the visual cortex of the Parma wallaby (Macropus parma). Brain Behav Evol. 43 (3), 162-172 (1994).
- Dyck, R., Cynader, M. An interdigitated columnar mosaic of cytochrome oxidase, zinc, and neurotransmitter-related molecules in cat and monkey visual cortex. Proc. Natl. Acad. Sci. (90), 9066-9069 (1993).
- Land, P. W., Akhtar, N. D. Experience-dependent alteration of synaptic zinc in rat somatosensory barrel cortex. Somatosens Mot Res. 16 (2), 139-150 (1999).
- Danscher, G. Exogenous selenium in the brain: a histochemical technique for light and electron microscopic localization of catalytic selenium bonds. Histochemistry. 76, 281-293 (1982).
- Danscher, G., Howell, G., Perez-Clausell, J., Hertel, N. The dithizone, Timm's sulphide silver and the selenium methods demonstrate a chelatable pool of zinc in CNS: a proton activation (PIXE) analysis of carbon tetrachloride extracts from rat brains and spinal cords intravitall treated with dithizone. Histochemistry. 83, 419-422 (1985).
- Gallyas, F. Silver staining of myelin by means of physical development. Neurol Res. 1 (2), 203-209 (1979).
- Wong-Riley, M. Changes in the visual system of monocularly sutured or enucleated cats demonstrable with cytochrome oxidase histochemistry. Brain Res. 171 (1), 11-28 (1979).
- Miró-Bernié, N., Ichinohe, N., Perez-Clausell, J., Rockland, K. S. Zinc-rich transient vertical modules in the rat retrosplenial cortex during postnatal development. J Neurosci. 138 (2), 523-535 (2006).
- Ichinohe, N., Rockland, K. S. Distribution of synaptic zinc in the macaque monkey amygdala. J Comp Neurol. 489 (2), 135-147 (2005).
- Innocenti, G. M., Manger, P. R., Masiello, I., Colin, I., Tettoni, L. Architecture and callosal connections of visual areas 17, 18, 19 and 21 in the ferret (Mustela putorius). Cereb Cortex. 12 (4), 411-422 (2002).
- Khalil, R., Levitt, J. B. Zinc histochemistry reveals circuit refinement and distinguishes visual areas in the developing ferret cerebral cortex. Brain Struct Funct. 218, 1293-1306 (2013).
- Manger, P. R., Masiello, I., Innocenti, G. M. Areal organization of the posterior parietal cortex of the ferret (Mustela putorius). Cereb Cortex. 12, 1280-1297 (2002).
- Wong, P., Kaas, J. H. Architectonic subdivisions of neocortex in the gray squirrel (Sciurus carolinensis.). The anatomical record. 291, 1301-1333 (2008).
- Land, P. W., Shamalla-Hannah, L. Experience-dependent plasticity of zinc-containing cortical circuits during a critical period of postnatal development. J Comp Neurol. 447 (1), 43-56 (2002).
- Czupryn, A., Skangiel-Kramska, J. Distribution of synaptic zinc in the developing mouse somatosensory barrel cortex. J Comp Neurol. 386, 652-660 (1997).
- Timm, F. Zur Histochemie der Schwermetalle. Das Sulfid-Silber-Verfahren. Dtsch Z ges gerichtl Med. 46, 706-711 (1958).
访问受限。请登录或开始试用以查看此内容。
重印与许可
