由于线粒体仅占植物细胞的一小部分,因此需要对其进行纯化以开展多种研究。可通过匀浆处理,随后进行差速离心和密度梯度离心,从多种植物器官中分离得到高度纯化的线粒体组分。
本文内容
摘要
摘要
线粒体是植物中参与多种代谢途径的重要细胞器,最显著的功能是通过氧化还原化合物(如烟酰胺腺嘌呤二核苷酸(NADH)和黄素腺嘌呤二核苷酸(FADH2))生成三磷酸腺苷(ATP)。拟南芥(Arabidopsis thaliana)基因组的完整注释使其成为应用最广泛的植物模式系统,因此有必要从多种器官(叶片、根或花)中纯化线粒体,以充分利用当前可用于研究拟南芥线粒体生物学的各种工具。线粒体的分离通常通过多种方法对组织进行匀浆,随后进行一系列差速离心步骤,获得粗线粒体沉淀,再通过连续胶体密度梯度离心进一步纯化。随后通过多次离心步骤去除胶体密度介质。从100 g新鲜叶片组织起始,通常可获得2 - 3 mg线粒体。对这些线粒体进行的呼吸实验显示,其典型呼吸速率为100 - 250 nmol O2 min-1 mg总线粒体蛋白-1(NADH依赖性速率),并能够利用多种底物和抑制剂来确定被氧化的底物种类以及替代氧化酶和细胞色素末端氧化酶的活性能力。本实验方案描述了利用连续胶体密度梯度从拟南芥(Arabidopsis thaliana)叶片中分离线粒体的方法,以及对纯化植物线粒体进行高效呼吸活性测定的技术。
引言
植物线粒体研究的历史可追溯到100多年前1早在20世纪50年代初,人们便通过差速离心法首次分离得到了完整的线粒体。20世纪80年代,胶体密度梯度技术的出现使得线粒体可在无需经历渗透压调节的情况下实现纯化。尽管梯度离心纯化的线粒体适用于大多数实验目的,但由于质谱技术具有高度敏感性,即便是相对微量的污染物也可能被检测到,并可能被错误地定位为线粒体组分。2游离流动电泳可用于去除质体和过氧化物酶体污染3,但自由流电泳是一种高度专业化的技术,绝大多数研究并不需要。此外,在确定蛋白质定位时,需要牢记蛋白质在细胞中可能存在双重或多重靶向现象。已有超过100种蛋白质被报道同时靶向叶绿体/质体和线粒体。4,且已知有多种蛋白质靶向线粒体和过氧化物酶体5此外,特定刺激下蛋白质的重新定位, 例如 氧化应激是细胞生物学中一个新兴的研究主题6因此,在研究相关生物学背景时,需要考虑蛋白质的定位,并采用多种方法来确定和验证其位置。2.
线粒体通常通过匀浆法从植物组织中分离,此过程需在打破细胞壁以释放线粒体与避免损伤线粒体之间取得平衡。传统上,使用马铃薯和花椰菜时,匀浆过程采用家用搅拌机或榨汁机在含有多种组分的缓冲液中制备液体提取物,以维持线粒体活性。 从豌豆叶片(常用于线粒体分离的材料,使用约10天龄的幼苗)中分离线粒体时,由于叶片组织较软,可利用搅拌机裂解细胞。随着拟南芥(Arabidopsis thaliana)T-DNA插入型基因敲除品系的广泛应用,为开展功能研究而纯化线粒体的需求促使了从叶片、根或花组织中分离线粒体方法的发展。总体而言,适用于其他植物的方法效果良好7,但前提是必须优化材料的研磨条件。对于拟南芥,可通过多种方式实现(见下文),且不同组织类型(根与地上部分)之间存在差异。连续梯度离心的条件也可进一步优化,因为来自不同器官或发育阶段的线粒体密度不同,其在梯度中的迁移行为也会有所差异。因此,为实现最佳分离效果,可调整梯度介质的密度以确保获得最优的分离结果。
线粒体纯化后可用于多种研究,包括蛋白质和tRNA摄取实验、酶活性测定、呼吸链功能检测以及蛋白质印迹分析。分离的线粒体还可用于蛋白质丰度的质谱分析。靶向多反应监测(MRM)分析可实现特定蛋白质的定量,但需要较大量的方法开发。相比之下,采用二甲基或其他同位素标记进行定量则更为简便。8提供了一种发现式方法,用于识别整个蛋白质组中的差异,从而揭示新的生物学见解。
方案
本方案用于从生长在土壤中的拟南芥(Arabidopsis thaliana)器官中分离完整线粒体,采用连续胶体密度梯度法。材料采集后的所有操作均在4 °C下进行。
1. 研磨介质、洗涤缓冲液和梯度溶液的制备
- 在分离前一日,按 表1 配制 300 mL 研磨缓冲液(不含抗坏血酸和半胱氨酸)以及 200 mL 2 倍洗涤缓冲液,并于 4 °C 冷藏保存。
注意:在分离当天早晨,向研磨缓冲液中加入抗坏血酸钠和 L-半胱氨酸(游离碱基),使其终浓度分别为 17.84 mM 和 20.36 mM。若线粒体将用于蛋白质印迹(Western blot)或蓝色天然聚丙烯酰胺凝胶电泳(BN-PAGE)分析,则配制不含牛血清白蛋白(BSA)的 2 倍洗涤缓冲液。 - 在分离线粒体当天早晨制备梯度液(图1 和 表1)。
- 在两个烧杯中分别配制高密度和低密度梯度溶液;每种溶液 35 mL 可满足两根梯度管的需要。
- 用去离子水清洗梯度混合器的内外室及聚氯乙烯(PVC)蠕动泵管路,确保所有管路出液均匀。
- 将 2 支离心管(50 mL)略微倾斜放置于冰上,并用胶带将 PVC 蠕动泵管出口固定在离心管内壁,以确保梯度液沿管壁缓慢流下。
- 关闭内外室之间的连接(黑色手柄向下)。将梯度混合器置于磁力搅拌器上,内室中放入一根小型搅拌子。
- 将 35 mL 高密度梯度溶液倒入内室(带管路出口的腔室)。将蠕动泵流速设为快速(300 mL/h),将高密度梯度溶液分装至两支置于冰上的离心管中,直至剩余一半溶液。
- 将 35 mL 低密度梯度溶液倒入外室(无管路出口的腔室)。打开内外室之间的连接(将黑色手柄向上推至半开位置),使两种溶液缓慢混合。使用磁力搅拌器轻轻搅拌促进混合。
- 将流速调至缓慢(60 mL/h),继续流出溶液,直至所有梯度混合液完全流出,形成两 根 0–4.4 %(w/v)聚乙烯吡咯烷酮(PVP)梯度管。梯度管制备完成后立即置于冰上,待步骤 2.12 使用。
注意:梯度液制备完成后,用预冷的去离子水将 2 倍洗涤缓冲液稀释为 1 倍,并于 4 °C 保存。
2. 匀浆与线粒体分离
- 用剪刀从生长在土壤中的4周龄拟南芥植株上切取完整的莲座叶组织,每制备一份样品至少需要80株植物。
注意:使用培养10至14天的水培植株,每组至少5个培养皿,或使用在MS培养基上生长的两周龄幼苗 & 可选用MS基本盐混合物(Skoog基本盐混合物)琼脂平板,至少4块。 - 将一半已切成小块的植物材料放入预冷至4 °C的大型研钵中,加入75 mL研磨介质(表1),并充分研磨数分钟,直至无大块组织残留。
- 用研磨液预润湿4层过滤材料(孔径22 - 25 µm),将匀浆液通过塑料漏斗经这4层过滤材料滤入500 mL锥形瓶中。
- 用另外75 mL研磨液研磨剩余的半份组织。
- 将匀浆液加入滤材中,并尽可能将匀浆液充分过滤通过。
- 用剩余的150 mL研磨液再次研磨过滤材料上残留的组织,再次过滤至500 mL锥形瓶中。
- 将过滤后的匀浆液分装至8个预冷的50 mL塑料离心管中,在4 °C条件下,使用固定角转子以2,500 × g离心5 min。
- 将上清液倒入干净的离心管(50 mL;避免扰动绿色沉淀),在固定角转子中于4 °C、17,500 x g离心20 min。
- 仅保留 <用移液管吸取(或小心倾倒,勿扰动沉淀)3 mL 上清液。使用小号细毛刷在残留的上清液中轻轻重悬沉淀。
- 向每管中加入 10 mL 1× 洗涤缓冲液,将 4 个管的样品合并至 1 个洁净的离心管中(即共得到 2 个管)。
- 用1×洗涤缓冲液将这些试管补至50 mL,并重复步骤2.7–2.9。
- 使用滴管将粗线粒体沉淀汇集至一个离心管中,并用细毛刷充分分散(可使用少量洗涤缓冲液,但最终体积需小于3 mL,以便置于梯度液上方)。用滴管将线粒体悬液轻柔地铺加到两份连续的0–4.4%(w/v)PVP梯度液上。
- 按重量平衡试管(使用1x) 洗涤缓冲液),在 4 °C 条件下以 40,000 × g 离心 40 分钟。确保刹车已关闭。线粒体将迁移至管底附近的条带处,或存在于管底的浓溶液中(表现为浑浊的淡黄色条带); 图2).
- 小心吸取线粒体条带上方5 cm的溶液并弃去。
- 将含有线粒体的剩余溶液分装至2个洁净离心管中,并用1×洗涤缓冲液补足体积。用塑料封口膜封住管口,反复倒置数次,使胶体密度梯度与线粒体均匀分布。在31,000 × g条件下离心15分钟 g 4 °C 下缓慢减速离心。
注意:离心前,确保线粒体和剩余的胶体密度梯度均匀分布,否则胶体密度梯度可能在管底浓缩,阻碍线粒体沉淀。 - 吸去上清液,向管中加入1×洗涤缓冲液至50 mL,倒置混匀。在4 °C、31,000 × g条件下离心15分钟,使用慢速刹车。
- 吸弃上清液,使用经改造的200 µL吸头(将吸头末端稍上方剪去一部分以增大开口)尽可能将线粒体沉淀收集到最小体积(约500 µL)中。将线粒体转移至1.5 mL离心管中,置于冰上立即使用,或于-80 °C保存。
注意:如果线粒体将用于十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)、BN-PAGE 或免疫印迹分析,请在最后洗涤步骤中使用不含 BSA 的 1× 洗涤缓冲液(即,步骤 2.15 和 2.16)。 - 使用Bradford法测定线粒体的蛋白质浓度。
注意:BN-PAGE 所用样品在 4 °C 下离心分装,沉淀物储存于 -80 °C 直至使用。进行耗氧量测定时,必须使用 freshly isolated mitochondria。
3. 耗氧量测定
注意:可使用克拉克型氧电极分析新分离的植物线粒体的耗氧量,从而测定线粒体的完整性、细胞色素 c 途径活性以及替代途径活性。
- 软件安装
- 将已授权的氧气监测软件安装到用于氧气消耗测量的计算机上。
- 呼吸介质、底物、化学储备液及克拉克型氧电极的制备
- 制备呼吸介质(300 mM 蔗糖,10 mM NaCl,5 mM KH2PO4,2 mM MgSO₄4,用于耗氧量测定的缓冲液(含0.1% (w/v) 牛血清白蛋白(BSA)、10 mM TES(pH 7.2))。
- 准备用于测量线粒体呼吸的底物、抑制剂和效应物表 2可预先制备,并于 -20 °C 保存。
注意:使用 NaOH 在使用前将有机酸等酸性溶液的 pH 中和至 7.0。 - 将呼吸介质预热至与检测室相同的温度(25 °C)。
- 按照制造商提供的说明书组装克拉克型氧电极。
- 将1 mL空气饱和水(空气饱和水的制备方法:将少量去离子水置于大锥形瓶中,剧烈振荡)加入测量室中。开启搅拌器,请点击 "搅拌速度" 按钮。单击 "开启" 按钮并将搅拌速度设置为 65 rpm。点击 "好的" 继续。在 25 °C 下持续搅拌水。
- 氧电极的校准
- 将用于校准的水加热至与检测室相同的温度(25 °C)。
- 等待电流稳定后,校准氧电极。
- 开始校准氧电极时,单击 "校准" 按钮,选择 "液相校准" 然后 "空气饱和水"
- 新窗口将打开(氧气校准(液相)- 第1步,共5步)。选择要校准的通道(电极控制盒所连接的通道)并输入变量(设置 "腔室温度" 至 25 °C 并 "大气压" 至 101.32 kPa)。点击 "好的 "继续。
- 在下一步(5步中的第2步)中,设置搅拌速度(65 rpm)并点击 "好的" 继续。
- 在5个步骤中的第3步,等待信号达到平台期。术语 "达到平稳状态,按“确定”继续" 将出现在框中。单击 "好的" 继续。
- 在5个步骤中的第4步,通过加入5 mg连二亚硫酸钠在腔室中建立无氧环境。点击 "好的" 继续。
注意:氧浓度下降应在曲线中可见,并应降至0。 - 在校准的最后一步(共5步中的第5步),等待信号达到平台期。该术语 "达到平稳状态,按“确定”继续" 将出现在框中。单击 "好的" 继续。
- 点击 "保存校准" 保存校准。新窗口将打开。单击 "好的" 确认保存氧气控制箱的新校准。
注意:成功校准后,标记 "氧气(nmol/mL)" 将显示在 y 轴上。 - 校准后,用水冲洗测量室至少5至10次,以彻底清洁。向测量室中加入1 mL呼吸介质,静置数分钟使膜达到平衡,直至耗氧曲线呈线性。
- 调整耗氧量曲线的刻度,以获得良好的斜率视图。点击 "缩放 XY" 并输入变量(设置 "氧气" 0 - 300 "时间轴" 0 - 45 分钟
- 线粒体完整性测定
- 打开活塞后,向反应室中加入970 µL空气饱和的呼吸介质。
- 使用剪去尖端的移液枪头,向反应室中加入30 µL分离的线粒体或150 µg总线粒体蛋白(根据线粒体分离后测定的蛋白量确定,后续计算中需包含总蛋白量)。
- 使用磁力搅拌器(65 转/分钟)在 25 °C 下持续搅拌线粒体悬液,使溶液与空气充分饱和。
- 将腔室与柱塞密封,点击 "开始录制" 记录氧气消耗量,并等待氧气消耗曲线稳定(1 - 2 分钟)。
- 加入10 mM抗坏血酸和25 µM细胞色素后,手动测定氧气消耗速率 c 5 分钟以获得 "在加入去垢剂之前" 速率
注意:若需在轨迹图中直接标注底物、抑制剂和效应物的添加,请单击 "添加事件标记" 按钮并输入相应的标签名称。点击 "好的" 继续。 - 加入0.05%(v/v)去垢剂后,人工测定3分钟内的氧气消耗速率 "去垢剂处理后" 速率。点击 "停止录制。"
- 点击 "变化率表格" 按钮。图形界面上将出现两条垂直线形式的游标。点击并拖动这一对速率游标至轨迹中所需位置,以定义速率区间。使用左侧速率游标沿轨迹移动整个速率区间,使用右侧速率游标设定速率区间范围本身。在沿轨迹移动速率区间游标时,氧气监测软件会自动在两条游标之间绘制最佳拟合直线。
- 在确定所需的时间间隔和位置后,用鼠标右键单击两个光标中的任意一个,并在表格中输入该速率,然后选择 "添加速率至表格。” 点击 "添加" 单击按钮以确认在主费率表中显示该费率。
- 通过将线粒体完整性数值相除来计算线粒体完整性 "在加入去垢剂之前" 速率由 "去垢剂处理后" 速率,以百分比表示,从100中减去该值。
- 线粒体呼吸的测定
- 打开活塞,向反应室中加入970 µL空气饱和的呼吸介质。使用切尖吸头的移液器,向反应室的呼吸介质中加入500 µM ATP以及30 µL分离的线粒体或150 µg总线粒体蛋白。
- 使用磁力搅拌子在25 °C下以65 rpm持续搅拌线粒体悬液。
- 关闭活塞,点击 "开始录制" 记录耗氧量,等待1-2分钟,直至耗氧速率稳定(此时耗氧量曲线呈线性)。加入5 mM琥珀酸。记录约2分钟的耗氧速率。
注意:若要在轨迹图中直接标记底物、抑制剂和效应物的添加,请单击 "添加事件标记" 按钮并输入相应的标签名称。点击 "好的" 继续。 - 加入1 mM二磷酸腺苷(ADP),继续记录2分钟的氧气消耗速率。
- 加入1 mM NADH,记录4至8分钟内的氧气消耗速率。该速率代表细胞色素氧化酶介导的呼吸能力。
- 加入1 mM氰化钾(KCN)(或2.5 µM粘菌素B/myxothiazol,或5 µM抗霉素A),以抑制细胞色素 c 通路,并继续记录约2分钟,以观察通过替代氧化酶的氧气消耗。
- 加入5 mM二硫苏糖醇(DTT)和10 mM丙酮酸以充分激活替代氧化酶。继续记录5–7分钟:此即替代氧化酶的活性容量。
- 加入 500 µM 没食子酸丙酯(nPG),记录 2 分钟。此步骤用于评估无法通过化学方法抑制的残余氧消耗速率。将该速率从其他记录的速率中扣除,因其很可能非线粒体来源。在细胞色素氧化酶抑制后仍持续发生的氧消耗 c 且AOX途径(由KCN和nPG抑制)很可能源于分离线粒体中作为污染物存在的过氧化物酶9.
- 点击 "停止录制。"
- 点击 "变化率表格" 按钮,然后通过右键点击两个光标中的任意一个,并选择将速率输入表格中 "添加速率至表格". 点击 "添加" 单击按钮以确认在主费率表中显示该费率。
注意:当添加溶解于有机溶剂中的效应物时(例如抗霉素A、nPG、粘霉素
结果
通过本方案,我们能够利用SDS-PAGE和免疫印迹法检测不同的线粒体蛋白。如图3A所示,从水培组织中分离的蛋白足以检测到微弱的条带(2 µg)。信号强度随上样量的增加而相应增强。对于从平板培养组织中分离的线粒体(图3B),可通过交替氧化酶抗体的免疫检测分析不同基因型对高光胁迫处理的响应。
线粒体的完整性、细胞色素c通路活性以及替代通路活性可通过新鲜分离的线粒体样品进行测定。在所述的分离过程中,线粒体完整性得以良好保持(图4A)。向分离的线粒体中添加不同的底物、抑制剂和效应物后,细胞色素c通路和替代氧化酶通路的氧气消耗会受到影响(图4B)。
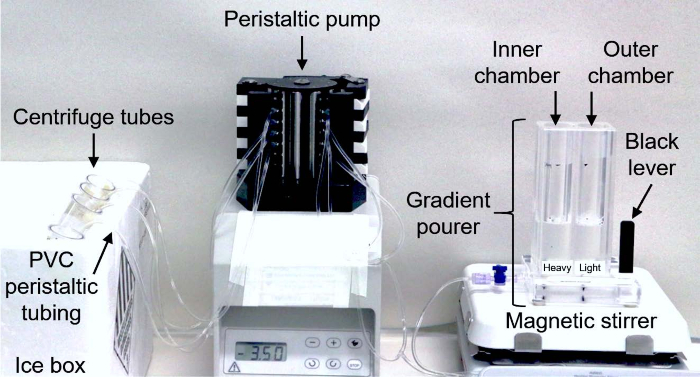
图1:梯度液制备装置示意图。 左侧:置于冰上、略微倾斜的离心管(50 mL),管内壁固定有PVC蠕动泵管出口;中间:蠕动泵;右侧:放置在磁力搅拌器上的梯度加样器,其内腔盛有高密度梯度液,外腔盛有低密度梯度液。 请点击此处查看该图的放大版本。
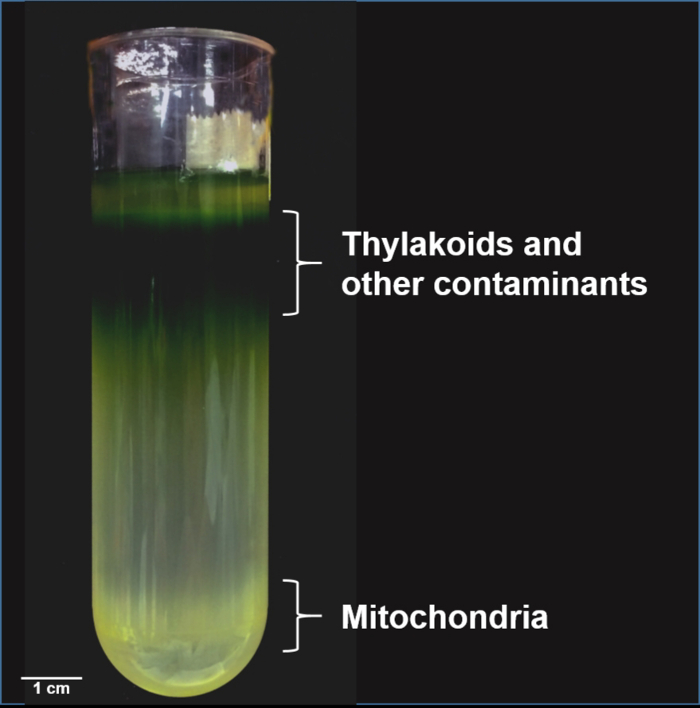
图 2:利用连续 0 - 4.4% (w/v) PVP/28% 胶体密度梯度从拟南芥地上部分纯化线粒体。 深绿色条带为类囊体及其他污染物,位于梯度溶液上层。线粒体组分呈现为靠近试管底部的浅黄绿色条带。请点击此处查看该图的放大版本。
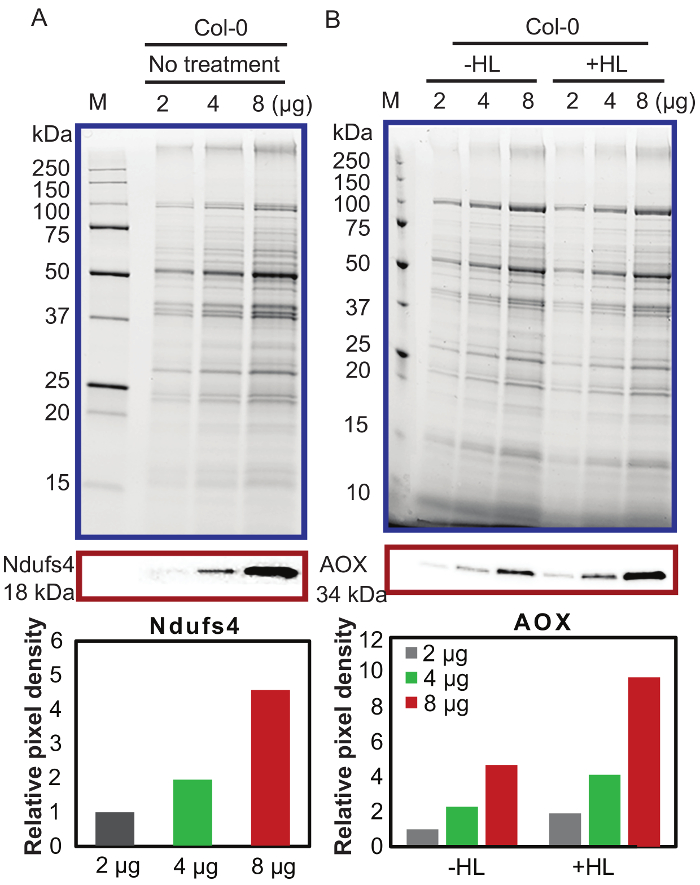
图3:通过SDS-PAGE分离线粒体蛋白并使用特异性抗体进行免疫检测 (A) 从两周龄水培植株中分离的线粒体 拟南芥 野生型(Columbia-0,Col-0)植物样品经SDS-PAGE分离后,使用抗NADH:泛醌氧化还原酶亚基S4(Ndufs4,At5g67590)的抗体进行免疫印迹检测。凝胶最外侧泳道上样了未染色的分子量标记物,并标示了十个代表性条带的大小(单位为千道尔顿,kDa)。检测到的Ndufs4蛋白的表观分子质量为18 kDa。蛋白质丰度以相对于该样本的数值表示 2 µg 总蛋白。B在含有3%(w/v)蔗糖和0.8%(w/v)琼脂的 Gamborg's B5 培养基上生长的两周龄幼苗被处理 750 µE m-2 s-1 高光(HL)处理6小时后收获样品。纯化线粒体,并通过SDS-PAGE分离线粒体蛋白,然后用针对替代氧化酶(AOX)的抗体进行免疫印迹检测。结果显示存在分子量约为34 kDa的可免疫检测AOX蛋白。蛋白丰度以对照组数值为基准进行相对定量。2 µg). 请点击此处以查看此图的放大版本。
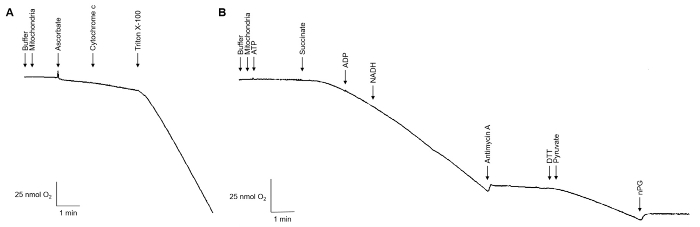
图4:O2 分离植物线粒体的消耗 (A) 从分离的线粒体 拟南芥 如上所述,对野生型植株(Col-0)在进行氧气消耗测定之前分析其外膜完整性。 30 µL 分离的线粒体(150 µg 总线粒体蛋白)被使用。线粒体完整性如上所述确定为90%。B) 使用以下方法进行氧气消耗量的测量 30 µL 分离线粒体的150 µg 总线粒体蛋白)从 拟南芥 野生型植株。测定总线粒体呼吸和交替氧化酶途径。根据这些数据,计算细胞色素途径的氧气消耗。 c 可以确定途径和AOX途径。 请点击此处以查看此图的放大版本。
| 研磨介质 | |
| 化学成分 | 浓度 |
| Sucrose | 0.3 M |
| 四钠焦磷酸盐 (Na4P2O7 · 10 H2O) | 25 mM |
| EDTA 二钠盐 | 2 mM |
| 磷酸二氢钾 (KH2PO4) | 10 mM |
| 聚乙烯吡咯烷酮 (PVP40) | 1% (w/v) |
| 牛血清白蛋白 (BSA) | 1% (w/v) |
| 去离子水 | |
| 用 HCl 调节 pH 至 7.5 | |
| 注意:在使用前,向 300 mL 研磨介质中加入 1.06 g 抗坏血酸钠(终浓度:17.84 mM)和 0.74 g 半胱氨酸(终浓度:20.36 mM)。加入后检测 pH,必要时用 1 M NaOH 调节至 7.5。 | |
| 2X 洗涤缓冲液 | |
| 化学成分 | 浓度 |
| Sucrose | 0.6 M |
| TES | 20 mM |
| 牛血清白蛋白 (BSA) | 0.2% (w/v) |
| 去离子水 | |
| 用 NaOH 调节 pH 至 7.5 | |
| 梯度溶液 | |
| 重梯度溶液(4.4% (w/v) PVP) | 2 根梯度管 |
| 2X 洗涤缓冲液 | 17.5 mL |
| 胶体密度梯度液 | 9.8 mL |
| PVP-40 (20% (w/v)) | 7.7 mL |
| 轻梯度溶液(0% (w/v) PVP) | 2 根梯度管 |
| 2X 洗涤缓冲液 | 17.5 mL |
| 胶体密度梯度液 | 9.8 mL |
| 去离子水 | 7.7 mL |
表1:用于线粒体分离的缓冲液与梯度液的组成。
| 缩写 | 储备液浓度 | 储存条件 | 终浓度 | 1 ml 反应体系中添加体积 | |
| 底物 | |||||
| 细胞色素 c | Cyt c | 2.5 mM (溶于 H2O) | -20 °C | 25 μM | 10 μl |
| NADH | NADH | 0.1 M (溶于 H2O) | -20 °C | 1 mM | 10 μl |
| 琥珀酸 | Succ | 500 mM (溶于 H2O) | -20 °C | 5 mM | 10 μl |
| 抑制剂 | |||||
| 抗霉素 A | AA | 1 mM (溶于 EtOH) | -20 °C | 5 μM | 5 μl |
| 氰化物 | KCN | 100 mM (溶于 H2O) | 4 °C | 1 mM | 10 μl |
| 黏噻唑菌素 | Myxo | 500 μM (溶于 EtOH) | -20 °C | 2.5 μM | 5 μl |
| n-丙基没食子酸酯 | nPG | 100 mM (溶于 EtOH) | -20 °C | 500 μM | 5 μl |
| 效应物 | |||||
| ADP | ADP | 100 mM (溶于 H2O) | -20 °C | 1 mM | 10 μl |
| 抗坏血酸 | Asc | 500 mM (溶于 H2O) | 当日新鲜配制 | 10 mM | 20 μl |
| ATP | ATP | 100 mM (溶于 H2O) | -20 °C | 500 μM | 5 μl |
| 二硫苏糖醇 | DTT | 1 M (溶于 H2O) | 当日新鲜配制 | 10 mM | 10 μl |
| 丙酮酸 | Pyr | 1 M (溶于 H2O) | -20 °C | 10 mM | 10 μl |
| 去垢剂 | 10% (v/v) (溶于 H2O) | 4 °C | 0.05% (v/v) | 5 μl | |
表2:用于耗氧量测量的底物、抑制剂和效应物列表。
讨论
通常,从拟南芥叶片中分离线粒体可从大约80至100株3至4周龄的植株中获得最多达3 mg的线粒体,尽管通过充分研磨通常可以获得超过5 mg的产量。产量随生长条件而变化,并随着叶片衰老而显著下降,尽管线粒体结构在衰老过程中似乎保持良好9。获得高产量最关键的步骤之一是研磨方法,用于裂解细胞以释放线粒体。虽然市面上有多种机械研磨设备可供选择,但对于拟南芥而言,使用研钵和研杵研磨在产量方面始终能获得良好效果,因其可在对细胞器损伤较小的情况下有效裂解细胞。机械研磨器虽然速度快,但需要优化,且所需研磨程度可能因组织类型而异。使用研钵和研杵时,研磨前先用刀片或剪刀将组织切碎,通常更为方便且高效。如前所述,所有操作步骤均需在4 °C下进行,从研磨结束到获得洗涤后的纯化线粒体沉淀,整个过程大约需要4小时。由于试管或梯度混合器上残留的微量去污剂或其他试剂会显著降低产量,因此这些实验中使用的所有组件均需避免使用去污剂清洗,且不得用于其他实验。最后,重要的是线粒体在梯度中需与其他组分充分分离,以便能够将其取出并进行洗涤。如果条带过于靠近管底,说明轻液与重液的混合方式需要调整,应使更多重液在混合前倾倒;相反,如果条带弥散且位置偏高,则混合应稍早进行。
本文所述方法可简便地用于从拟南芥花和根组织中分离线粒体11,12。对于根组织,建议采用水培方式培养,需使用100 g鲜重材料以获得约2 mg线粒体。在研磨前,应先将根组织切成小块,使用研钵和研杵进行研磨;通过再次研磨根组织(可使用研钵和研杵或搅拌机)可提高得率。对于线粒体功能通常较强的花组织13,使用研钵和研杵研磨效果良好,但由于材料量有限,需要种植大量植株才能收获足够组织。已有研究利用类似方法或稍作修改,从拟南芥多种器官中分离出线粒体14,15,并从水稻(Oryza sativa)中成功分离16。
上述方法的局限性包括:i)线粒体分离需要大量种子;ii)该分离方法仅适用于拟南芥和水稻的特定组织;iii)纯化后的线粒体中仍存在少量各类污染物(如过氧化物酶体蛋白)。采用上述方法获得的线粒体适用于多种研究,范围从氧气吸收研究到蛋白质丰度的定量质谱分析。梯度纯化的线粒体仍会含有少量各类污染物,例如过氧化物酶体蛋白3。只要非线粒体蛋白的污染程度较低(<10%),且比较的样品具有相似性,使得非线粒体蛋白的类型和污染程度相近,则可通过与已知细胞器蛋白列表进行比较,来确定线粒体蛋白的变化。通过SDS-PAGE或其他基于凝胶的方法进行蛋白质丰度分析时,仅需相对少量的线粒体(2 - 20 µg),并可使用不同量的线粒体样品来检测抗体信号的线性响应(图3)。尽管孔蛋白(电压依赖性阴离子通道(VDAC))常被用作定量时的上样对照,但根据我们的经验,该蛋白丰度较高,可能导致在凝胶中上样量较大时信号响应常偏离线性,因此使用此类上样对照时应始终验证抗体信号的线性范围。本线粒体分离方法的重要意义在于,与使用蔗糖作为介质形成密度梯度的方法不同,胶体密度梯度无需对纯化后的线粒体进行渗透压再调节,而蔗糖梯度则必须进行此步骤。这意味着纯化线粒体破裂的可能性更小,且在洗涤去除胶体密度介质后,可直接用于多种检测或应用。
组织印迹法通过检测完整叶片或组织提取物中的线粒体蛋白,是测定该组织中线粒体蛋白含量的一种有效方法。由于线粒体体积通常较其他细胞器小,因此在整体组织提取物中检测线粒体蛋白需谨慎解释结果,因为线粒体蛋白的含量可能低于检测限。为确保此类方法的可靠性,必须设置严谨的对照实验,将纯化的线粒体与组织提取物一同进行电泳,以验证迁移行为一致且检测信号呈线性关系。
借助克拉克型氧电极,可测量溶液中氧分压的变化。该电极实际由铂阴极和银阳极组成,二者通过氯化钾(KCl)盐桥连接,并覆盖有电解液浸润的滤纸(香烟纸)及一层透氧膜(聚四氟乙烯膜)。施加600–700 mV电压可导致氧气发生还原反应,从而在氧浓度与电压之间形成线性关系。氧电极可从不同公司 commercially 获得,各公司通常会提供关于电极组装与设置的特定说明。但一般而言,在组装前需使用电极清洁套装或擦除笔对电极片上的银阳极和铂阴极进行清洁。组装过程中需确保不产生气泡例如 在聚四氟乙烯隔膜与卷烟纸之间)。组装完成后,需将电极圆盘固定于反应室中,使铂阴极朝上,位于反应室底部。反应室周围设有水套,以实现温度控制。必须始终保持反应室内充满水,否则隔膜会因干燥而开裂。同样,在向反应室中添加化合物时,切勿用移液器或注射器触碰隔膜,以免造成撕裂。
在进行检测之前,呼吸介质应预热至与检测室相同的温度(大多数情况下为 25 °C),并让膜在呼吸缓冲液中平衡数分钟。在关闭氧消耗检测的活塞后,效应分子的添加应使用非一次性微量注射器(例如 微量注射器)或一次性凝胶上样枪头进行。若使用微量注射器,必须确保每次添加之间用 100% 乙醇和水彻底冲洗注射器,以避免污染储备溶液。此要求同样适用于每次检测之间对检测室的清洗。氧消耗检测中使用的大多数试剂均可溶于水,可在每次检测之间通过多次水洗(约五次)轻松去除。然而,某些检测所用的化学物质仅溶于有机溶剂,例如抗霉素 A(antimycin A)、黏噻唑(myxothiazol)和正丙基甘油(nPG)。因此,在不同检测之间,需先用有机溶剂(50% (v/v) 乙醇)冲洗检测室以去除这些分子的残留痕迹,然后再用水冲洗(约五次)以彻底清除残留物。
披露
作者声明无利益冲突。
致谢
本研究得到了澳大利亚研究理事会植物能源生物学卓越中心(CE140100008)、澳大利亚研究理事会未来奖学金(FT130100112,授予MWM)以及费奥多·林嫩研究奖学金(德国亚历山大·冯·洪堡基金会,授予JS)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| ADP | Sigma-Aldrich | A2754 | 化学试剂 |
| 抗霉素A | Sigma-Aldrich | A8674 | 化学试剂,溶于乙醇 |
| AOX抗体 | 来自Tom Elthon | Elthon等,1989 | |
| 抗坏血酸 | Sigma-Aldrich | A0157 | 来自葫芦属植物的抗坏血酸氧化酶 |
| ATP | Sigma-Aldrich | A26209 | 化学试剂 |
| 牛血清白蛋白(BSA) | Bovogen | BSAS 1.0 | 化学试剂 |
| Clarity Western ECL底物 | Bio-Rad Laboratories | 1705061 | 化学试剂 |
| Criterion Stain-Free预制胶(8-16%,18孔) | Bio-Rad Laboratories | 5678104 | 化学试剂 |
| 氰化物 | Sigma-Aldrich | 60178 | 化学试剂 |
| 细胞色素c | Sigma-Aldrich | C3131 | 化学试剂 |
| Difco琼脂,颗粒状 | BD Biosciences | 214530 | 化学试剂 |
| 二硫苏糖醇 | Sigma-Aldrich | D0632 | 化学试剂 |
| 乙二胺四乙酸二钠盐 | Sigma-Aldrich | E5134 | 化学试剂 |
| Gamborg B-5基础培养基 | Austratec | G398-100L | 化学试剂 |
| Gamborg维生素溶液(1000倍浓缩) | Austratec | G219-100ML | 化学试剂 |
| 山羊抗小鼠IgG(H+L)-HRP偶联物 | Bio-Rad Laboratories | 1706516-2ml | 化学试剂 |
| 山羊抗兔IgG(H+L)-HRP偶联物 | Bio-Rad Laboratories | 1706515-2ml | 化学试剂 |
| L-半胱氨酸 | Sigma | C7352-100G | 化学试剂 |
| 硫酸镁 | Sigma-Aldrich | 230391 | 化学试剂 |
| Murashige & Skoog基础盐混合物(MS) | Austratec | M524-100L | 化学试剂 |
| 粘杆菌素 | Sigma-Aldrich | T5580 | 化学试剂,溶于乙醇 |
| NADH | Sigma-Aldrich | N8129 | 化学试剂 |
| Ndufs4抗体 | 来自Etienne Meyer | Meyer等,2009 | |
| 正丙基没食子酸酯 | Sigma-Aldrich | P3130 | 化学试剂,溶于乙醇 |
| Percoll | GE Healthcare | 17-0891-01 | 化学试剂,胶体密度梯度介质 |
| 聚乙烯吡咯烷酮(PVP40) | Sigma-Aldrich | PVP40 | 化学试剂 |
| 氰化钾 | Sigma-Aldrich | 60178 | 化学试剂 |
| 磷酸二氢钾(KH2PO4) | Sigma-Aldrich | P5655 | 化学试剂 |
| 丙酮酸 | Sigma-Aldrich | P2256 | 化学试剂 |
| 氯化钠 | Chem-Supply | SA046 | 化学试剂 |
| 连二亚硫酸钠 | Sigma-Aldrich | 157953 | 化学试剂 |
| 钠-L-抗坏血酸 | Sigma | A4034-100G | 化学试剂 |
| 琥珀酸 | Sigma-Aldrich | S2378 | 化学试剂 |
| 蔗糖 | Chem-Supply | SA030 | 化学试剂 |
| TES | Sigma-Aldrich | T1375 | 化学试剂 |
| 焦磷酸四钠(Na4P2O7 · 10H2O) | Sigma-Aldrich | 221368 | 化学试剂 |
| Trans-Blot Turbo RTA Midi硝酸纤维素转移试剂盒 | Bio-Rad Laboratories | 1704271 | 化学试剂 |
| 吐温X-100 | Sigma-Aldrich | X100 | 化学试剂,去垢剂 |
| Western封闭试剂 | Sigma | 11921681001 | 化学试剂 |
| 天平 | Mettler Toledo | XS204 | 设备 |
| 烧杯 | Isolab | 50 mL | |
| 离心机 | Beckman Coulter | Avanti J-26XP | 设备 |
| 离心管 | Nalgene | 3117-9500 | 设备 |
| 循环水浴 | Julabo | 1124971 | 连接至氧电极室 |
| 锥形瓶 | Isolab | 500 mL | |
| 滴管 | 3 mL | ||
| 固定角转子 | Beckman Coulter | JA25.5 | 设备 |
| 漏斗 | Per Alimenti | 14 cm | 用于过滤 |
| 梯度制备器 | Bio-Rad | 165-4120 | 用于制备梯度 |
| 磁力搅拌器ATE | VELP Scientifica | F20300165 | 设备 |
| Miracloth | VWR | EM475855-1R | 过滤材料 |
| 研钵和研杵 | Jamie Oliver | 花岗岩,6英寸 | 设备 |
| O2view | Hansatech Instruments | 氧气监测软件 | |
| Oxygraph Plus系统 | Hansatech Instruments | 1187253 | 克拉克型氧电极 |
| 画笔 | Artist first choice | 1008R-12 | |
| Parafilm | Bemis | PM-996 | 塑料石蜡膜 |
| 蠕动泵 | Gilson | F155001 | 用于制备梯度 |
| PVC蠕动泵管 | Gilson | F117930 | 用于制备梯度 |
| 水浴锅 | VELP Scientifica | OCB | 设备 |
参考文献
- Day, D. A. Highlights in plant mitochondrial research. Methods in molecular biology. Plant mitochondria. 1305, v-xvi (2015).
- Millar, A. H., Carrie, C., Pogson, B., Whelan, J. Exploring the function-location nexus: Using multiple lines of evidence in defining the subcellular location of plant proteins. Plant Cell. 21 (6), 1625-1631 (2009).
- Eubel, H., et al. Free-flow electrophoresis for purification of plant mitochondria by surface charge. Plant J. 52 (3), 583-594 (2007).
- Murcha, M. W., et al. Protein import into plant mitochondria: Signals, machinery, processing, and regulation. J. Exp. Bot. 65 (22), 6301-6335 (2014).
- Carrie, C., et al. Approaches to defining dual-targeted proteins in Arabidopsis. Plant J. 57 (6), 1128-1139 (2009).
- Pinto, G., Radulovic, M., Godovac-Zimmermann, J. Spatial perspectives in the redox code - Mass spectrometric proteomics studies of moonlighting proteins. Mass Spectrom. Rev. , (2016).
- Day, D. A., Neuburger, M., Douce, R. Biochemical characterisation of chlorophyll-free mitochondria from pea leaves. Aust. J. Plant Physiol. 12 (3), 219-228 (1985).
- Boersema, P. J., Raijmakers, R., Lemeer, S., Mohammed, S., Heck, A. J. Multiplex peptide stable isotope dimethyl labeling for quantitative proteomics. Nat. Protoc. 4 (4), 484-494 (2009).
- Cheah, M. H., et al. Online oxygen kinetic isotope effects using membrane inlet mass spectrometry can differentiate between oxidases for mechanistic studies and calculation of their contributions to oxygen consumption in whole tissues. Anal Chem. 86 (10), 5171-5178 (2014).
- Chrobok, D., et al. Dissecting the metabolic role of mitochondria during developmental leaf senescence. Plant Physiol. 172 (4), 2132-2153 (2016).
- Lee, C. P., Eubel, H., O'Toole, N., Millar, A. H. Combining proteomics of root and shoot mitochondria and transcript analysis to define constitutive and variable components in plant mitochondria. Phytochemistry. 72 (10), 1092-1098 (2011).
- Lee, C. P., Eubel, H., Solheim, C., Millar, A. H. Mitochondrial proteome heterogeneity between tissues from the vegetative and reproductive stages of Arabidopsis thaliana development. J. Proteome Res. 11 (6), 3326-3343 (2012).
- Millar, A. H., Whelan, J., Soole, K. L., Day, D. A. Organization and regulation of mitochondrial respiration in plants. Annu. Rev. Plant Biol. 62, 79-104 (2011).
- Peters, K., et al. Complex I - complex II ratio strongly differs in various organs of Arabidopsis thaliana. Plant Mol. Biol. 79 (3), 273-284 (2012).
- Werhahn, W. H., et al. Purification and characterization of the preprotein translocase of the outer mitochondrial membrane from Arabidopsis thaliana: Identification of multiple forms of TOM20. Plant Physiol. 125 (2), 943-954 (2001).
- Heazlewood, J. L., Howell, K. A., Whelan, J., Millar, A. H. Towards an analysis of the rice mitochondrial proteome. Plant Physiol. 132 (1), 230-242 (2003).
重印与许可
