本文描述了双分子互补亲和纯化(BiCAP)的实验方案。该新方法能够特异性地分离任意两个相互作用的蛋白质,并对其进行后续蛋白质组学表征,同时排除未形成复合物的单个蛋白质以及与竞争性结合伴侣形成的复合物。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
蛋白质复合物的组装是调控多种细胞信号通路的核心机制。生物医学研究的一个重要方向是解析这些动态蛋白质复合物如何整合来自多个来源的信号,从而引导特定的生物学反应,以及这种调控在多种疾病状态下如何发生异常。尽管这一关键生化机制至关重要,但目前仍缺乏能够有效实现对这些多分子信号复合物进行特异且灵敏解析的实验技术。
本文通过将蛋白质互补检测与一种构象特异性纳米抗体相结合,解决了这一不足,我们将该方法命名为双分子互补亲和纯化(BiCAP)。这一新技术能够特异性地分离任何一对相互作用的蛋白质,并对其进行后续蛋白质组学表征,同时排除未形成复合物的单个蛋白质以及与竞争性结合伴侣形成的复合物。
BiCAP 技术可适用于多种下游实验分析,该技术提供的高特异性使得对蛋白质复合物组装机制的研究比目前使用标准亲和纯化技术所能实现的更为精细。
引言
蛋白质复合物的组装是维持许多信号通路时空特异性的关键过程1,2。尽管这一调控作用的重要性已被广泛认可,但目前可用于深入研究这些复合物的实验技术仍然匮乏。大多数相互作用组学研究集中于单个蛋白质之间的相互作用,或对复合物各个组分进行逐个富集。本文介绍一种可特异性分离特定蛋白质二聚体的技术,同时排除各组分蛋白的单体形式以及与竞争性结合伴侣形成的其他复合物3。我们将该技术命名为双分子互补亲和纯化技术(Bimolecular Complementation Affinity Purification, BiCAP),因为它结合了已有的蛋白质片段互补检测方法——双分子荧光互补(Bimolecular Fluorescence Complementation, BiFC)——以及一种针对绿色荧光蛋白(GFP)及其衍生物的构象特异性重组纳米抗体的创新应用(参见材料表)。
典型的蛋白质片段互补检测依赖于“诱饵”蛋白和“猎物”蛋白的表达,这些蛋白分别与报告分子(如荧光素酶4、β-半乳糖苷酶5或绿色荧光蛋白(GFP)6)的分裂片段融合(图1A)。当诱饵蛋白与猎物蛋白发生相互作用时,可促使分裂的报告分子结构域重新折叠形成具有功能的完整结构,从而实现对诱饵蛋白与猎物蛋白相互作用的可视化或定量检测。BiCAP 技术源自一种利用 GFP 变体 Venus 的片段进行检测的方法。荧光蛋白互补检测是活细胞中观察蛋白质-蛋白质相互作用的常用方法,但迄今为止仅局限于这一种功能7。BiCAP 在这方面实现了重要进展,该技术不仅可用于可视化检测,还可实现对所形成的蛋白质-蛋白质相互作用的分离与深入分析。
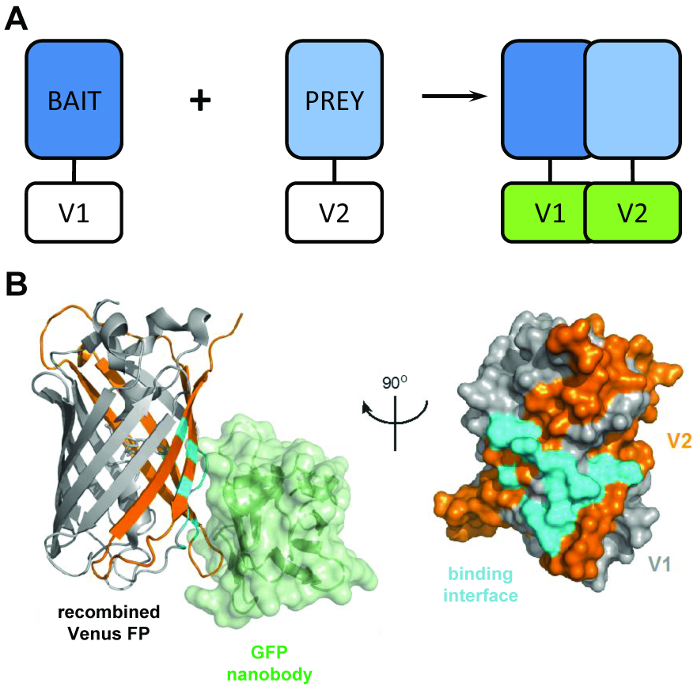
图1:BiCAP技术的结构原理。(A)双分子荧光互补技术原理的示意图,显示“诱饵”和“猎物”蛋白分别标记了全长Venus蛋白的N端V1片段或C端V2片段。(B)GFP纳米抗体(绿色)与重组Venus蛋白之间相互作用界面(青色)的结构分析,显示V1(灰色)和V2(橙色)片段的位置(PDB编号 3OGO)。该图重印自Croucher等3,经AAAS许可转载。请点击此处查看此图的放大版本。
BiCAP 技术利用 Venus 的两个非荧光片段(分别称为 V1 和 V2),这些片段在没有其融合伴侣发生相互作用的情况下亲和力较低。当融合蛋白之间发生相互作用时,这两个分裂的结构域会重新折叠,形成荧光蛋白的功能性 β-桶状结构(图 1B)6。BiCAP 的关键创新在于引入了重组的 GFP 纳米抗体,该抗体可识别 GFP(及其变体如 Venus)β-桶状结构上的一个三维表位,而该表位仅存在于正确重组并正确折叠的荧光蛋白中(图 1B)8。重要的是,GFP 纳米抗体不会结合任何一个单独的 Venus 片段。这使得只有在两种蛋白自发形成复合物后,才能特异性地富集蛋白二聚体,从而获得比使用化学诱导或强制相互作用方法更为真实可靠的结果9。
BiCAP 是一种强大的技术,专门用于研究多蛋白复合物,可与多种下游应用结合,以提高我们对这些复合物在信号转导中所起作用的理解精度。该技术还包含一个重要的特点,即能够在原位可视化蛋白质相互作用。in situ。迄今为止,BiCAP 已被证明是分析受体酪氨酸激酶(RTK)二聚体相互作用组的有效方法3,但由于该方法具有良好的适应性,因此几乎可应用于任何蛋白质相互作用的研究场景。
访问受限。请登录或开始试用以查看此内容。
方案
1. 质粒克隆
注意:为了构建在目的基因的N端或C端融合V1或V2标签的质粒载体,双分子荧光互补(BiFC)目的载体已存入Addgene [N端标签:pDEST-V1-ORF (#73635),pDEST-V2-ORF (#73636);C端标签:pDEST-ORF-V1 (#73637),pDEST-ORF-V2 (#73638)]。目的基因需要位于特定的可用于重组克隆的入门载体中即, pDONR223 或 pENTR221),不含终止密码子,以进行后续克隆。许多相容性克隆已存在于各类质粒文库中,包括哺乳动物基因组文库(https://genecollections.nci.nih.gov/MGC/)。
- 在相应的BiFC目的载体的attR位点之间插入目的基因,进行重组反应:
- 在0.2 mL离心管中,加入150 ng入门载体、150 ng BiFC目的载体以及 8 µL TE缓冲液(pH 8.0)
- 添加 2 µL 重组酶混合液(参见 材料表充分混匀后短暂离心。
- 在室温下孵育反应1小时,或在 16 °C 过夜。
- 通过添加终止反应 1 µL 蛋白酶K溶液并孵育于 37 °C 10 分钟
- 转化热激感受态细胞(参见 材料表)与LR反应产物:
注意:此时理论上可使用任何基础菌株,只要该菌株不含有 CcdB 抗毒素,否则将无法特异性筛选出含有插入片段的质粒。- 将感受态细胞在冰上解冻并转移 50 µL 将细胞加入14 mL圆底聚丙烯管中。
- 添加 1 µL 将反应产物加入细胞中,轻轻混匀。冰上孵育20分钟。
- 热激处理 42 °C 水浴 45 秒。立即放回冰上孵育 2 分钟。
- 加入1 mL LB培养基,振荡培养 37 °C 1小时。
- 将转化产物接种到含有氨苄青霉素的10 cm琼脂平板上100 µg/mL)并在指定条件下孵育 37 °C 过夜。
- 双分子荧光互补质粒的纯化
- 从单个菌落中纯化质粒时,向一个大锥形瓶中加入100 mL LB培养基,并加入氨苄青霉素(Ampicillin)100 µg/mL)。为了筛选多个菌落,向14 mL圆底聚丙烯管中加入5 mL LB培养基,并加入氨苄青霉素(Ampicillin)100 µg/mL).
- 使用无菌接种环从琼脂平板上挑取单个菌落。将接种环放入LB培养基中,短暂混匀。
- 用铝箔封住锥形瓶瓶口,于过夜培养 37 °C 振荡条件下。
- 使用标准的质粒DNA大提或中提纯化试剂盒制备转染级质粒DNA(参见 材料表)10通过吸光度光谱评估DNA的质量。
注意:DNA 的 A260/A280 比值应符合要求 >1.8 和 A260/A230 比值 >2.0. 此时建议筛选多个单克隆,以检测插入片段和标签的表达效率。
2. 细胞培养与转染
注意:转染BiFC载体时,实现高转染效率和相对均一的转染效果非常重要。这些载体可能与任何标准转染试剂兼容,但应相应优化转染条件。为进行质谱分析,我们通常在10 cm培养皿中培养细胞,但对于所需材料较少的实验,也可按比例缩小至更小的培养皿或培养板。
- 在10 cm培养皿中接种1.0 × 10⁶个HEK293T细胞,加入10 mL DMEM培养基,培养基中添加10% FBS和青霉素/链霉素(1:100)。
- 在1.5 mL微量离心管中,将每种BiFC载体各2.5 µg溶于500 µL转染缓冲液中(见材料表)。
- 加入10 µL转染试剂(见材料表)。
- 涡旋混合10秒,短暂离心,室温孵育10分钟。
- 将DNA转染混合物逐滴加入培养皿中。孵育足够时间,以使BiFC融合蛋白相互作用,并完成Venus蛋白的折叠及荧光团成熟,通常为~8 - 24小时。
注意:Venus的激发峰为515 nm,发射峰为528 nm,但使用设置为观察GFP荧光的标准荧光显微镜即可清晰观察。
3. 样品制备
- 裂解液的制备
- 在收集裂解液之前,配制细胞裂解缓冲液 [50 mM Tris-HCl (pH 7.4),150 mM NaCl,1 mM EDTA,1% (v/v) 非离子型去垢剂(参见 材料表)]。4 °C 保存。
- 在收获前立即向 10 mL 细胞裂解缓冲液中加入蛋白酶抑制剂和磷酸酶抑制剂(参见 材料表)。将添加了抑制剂的细胞裂解缓冲液置于冰上。
- 用预冷的 PBS 洗涤细胞两次。吸除 PBS 后,加入 1 mL 预冷的含抑制剂的细胞裂解缓冲液。将培养皿置于冰上,确保缓冲液覆盖整个培养表面。
- 冰上孵育约 5 分钟,然后使用细胞刮刀(参见 材料表)刮取细胞,并转移至预冷的 1.5 mL 微量离心管中。
- 将收集的裂解液在 4 °C 下以 18,000 × g 离心 5 分钟,去除细胞碎片,将澄清的上清液转移至新的微量离心管中。
注意:此时裂解液可立即使用,或储存于 -80 °C。建议保留一份粗裂解液,以便验证转染效率和亲和纯化效果。
- 亲和纯化
注意:BiCAP 分离步骤使用与琼脂糖微珠偶联的 GFP 纳米抗体进行(参见 材料表)。- 用 1 mL PBS 洗涤适量体积的琼脂糖微珠(每样本 20 µL + 10 µL 过量)。在 300 × g 下离心微珠,并弃去上清液。
- 向每个裂解液样本中加入 20 µL 微珠。
- 在 4 °C 下以端对端旋转方式孵育样本 2 小时。
注意:此时样本可用于 SDS-PAGE 和 Western 印迹分析,或质谱分析。
- 用于 Western 印迹分析的 BiCAP 洗脱液制备
- 在 300 × g 下离心微珠,并用细胞裂解缓冲液洗涤三次。
- 将洗涤后的微珠重悬于 50 µL 适当稀释的上样缓冲液中(参见 材料表),并在 95 °C 加热 2–3 分钟。
注意:以此方式制备的样本可在 -20 °C 下保存数月。 - 对 V1 标签和 V2 标签(参见 材料表)以及任何其他目标蛋白进行 SDS-PAGE 和 Western 印迹分析11。
- 用于质谱分析的 BiCAP 洗脱液制备
注意:为进行无标记定量(LFQ)质谱分析,建议至少设置四次重复样本,以确保足够的统计效力。- 在 300 × g 下离心微珠,并用不含去垢剂的细胞裂解缓冲液洗涤六次。此步骤旨在去除过量蛋白及可能干扰质谱分析的去垢剂。立即进行下一步操作,或将微珠储存于 -80 °C。
- 在 60 µL 缓冲液 1 [2 M 尿素,50 mM Tris-HCl (pH 7.5),5 µg/mL 胰蛋白酶] 中对微珠进行胰蛋白酶消化。在 27 °C 下以 800 RPM 振荡孵育 30 分钟。
- 短暂离心微珠,收集上清液并转移至微量离心管中(参见 材料表)。
- 用 25 µL 缓冲液 2 [2 M 尿素,50 mM Tris-HCl (pH 7.5),1 mM 二硫苏糖醇] 洗涤微珠,以还原结合的蛋白质。
- 将微珠与上清液合并至同一微量离心管中,在室温下过夜继续消化。
- 向每个样本中加入 20 µL 碘乙酰胺(5 mg/mL 溶于超纯水)进行烷基化,并在避光条件下孵育 30 分钟。
- 向每个样本中加入 1 µL 三氟乙酸(TFA)以终止消化反应。此步骤同时使样本酸化,为后续阶段柱尖处理做准备。
- 将 6 层 1 mm 固相萃取 C18(十八烷基)膜片(参见 材料表)堆叠至 200 µL 移液枪头中,制备 C18 阶段柱尖。每个样本准备一个独立的柱尖。
- 用甲醇润湿阶段柱尖,并用 50 µL 0.1% (v/v) 三氟乙酸(TFA)、80% (v/v) 乙腈平衡。
- 用 50 µL 0.1% (v/v) TFA 洗涤柱尖。
- 将酸化后的肽段上样至阶段柱尖,并分两步使用含 0.1% (v/v) TFA 和 80% (v/v) 乙腈的洗脱液进行洗脱。
- 使用真空浓缩仪蒸发样本。
- 如需长期保存,可将干燥的肽段储存于 -80 °C。
4. 质谱分析。
- 用15 µL含5%甲酸、2%乙腈(溶于超纯水)的溶液重悬样品。
- 小心地将6 µL样品加载至液相色谱板上,并放入纳米液相色谱(nanoLC)HPLC系统中(参见材料表)。
- 使用1.9 µm C18固定相颗粒填充一根长度为20 cm、内径为75 µm的色谱柱(参见材料表)。每根色谱柱上加载5 µL肽段样品。
- 以250 nL/min的流速,在140分钟内采用乙腈线性梯度洗脱肽段,并通过纳米电喷雾方式将样品引入与nanoLC HPLC系统联用的线性离子阱四极杆(LTQ)杂合质谱仪中。
- 在140分钟的时间梯度内,对每次扫描中丰度最高的前10个离子采集串联质谱数据。随机化数据采集顺序,并在每个样品之间交替插入牛血清白蛋白(BSA)运行,以最小化时间相关偏差。
5. 分析
- 使用 MaxQuant 软件版本 1.2.7.4 的默认设置处理原始质谱数据,并利用 R 软件环境中修改版的 Perseus 统计分析流程分析 MaxQuant 输出结果3。
注意:从本步骤开始的统计分析流程在 图 2 中进行了简要总结。简而言之,对 MaxQuant 鉴定出的蛋白质的 LFQ 强度值进行转换和过滤,随后进行归一化和缺失值填补。通过与 Venus 对照组比较,结合 Student's t 检验及 Benjamini-Hochberg 多重检验校正,识别二聚体配对中的相互作用蛋白,以排除非特异性背景结合蛋白。通过单个直方图比较、多元回归分析和层次聚类分析确认数据质量。
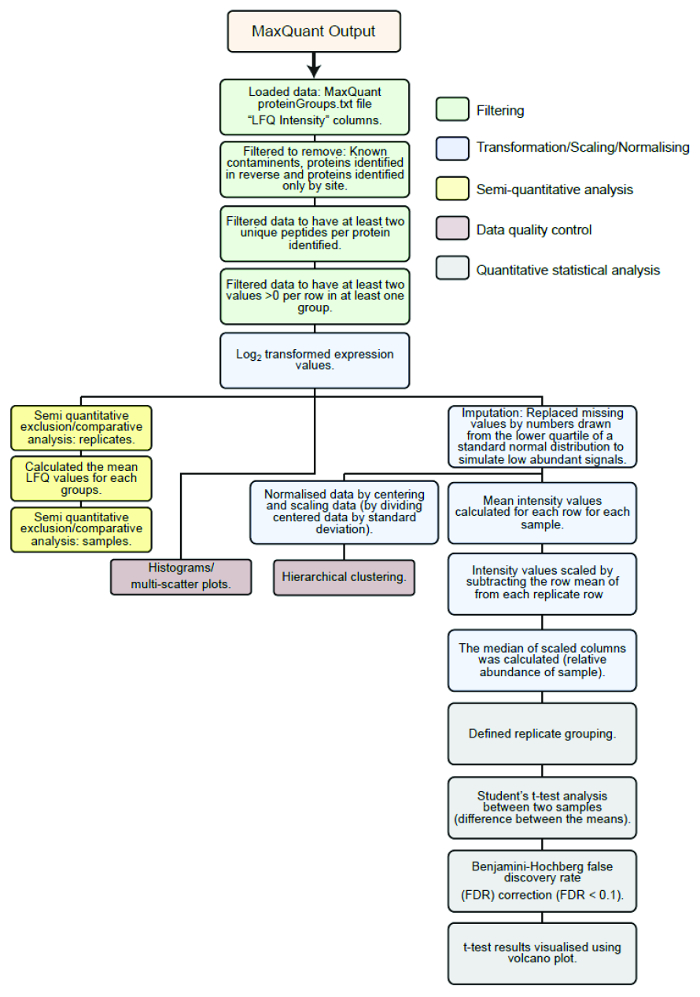
图 2:统计分析工作流程概览。 用于分析通过 MaxQuant 处理原始质谱数据所鉴定出的蛋白质的 LFQ 强度的统计分析流程图。绿色框:过滤;蓝色框:转换/标准化/缩放;棕色框:数据质量控制;黄色框:半定量排除/比较分析;灰色框:统计分析。该图重印自 Croucher et al.3 经 AAAS 授权转载。 请点击此处查看此图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
在利用重组克隆技术将目的基因的V1和V2标签与BiFC pDEST质粒构建完成后,共转染含有相互作用蛋白对的两种质粒,大约8-24小时后可观察到Venus荧光信号的产生。若未检测到阳性信号,可能的原因包括:蛋白相互作用未发生、细胞系选择不当、转染效率过低,或BiFC标签的方向不够理想。以下将针对上述各种情况进行故障排查说明。
我们此前观察到,在HEK-293T细胞共转染约16小时后,多种不同类型的蛋白质之间存在正向相互作用。这包括RTK ERBB2在质膜上的二聚化图 3A)3 以及泛素与主要位于细胞核内的E3连接酶UBR5的结合(图3A)12能够观察到这些蛋白质-蛋白质相互作用的特定亚细胞定位,而非全长Venus蛋白的全细胞荧光(
访问受限。请登录或开始试用以查看此内容。
讨论
BiCAP 是一种强大的方法,可用于分离特定的蛋白质二聚体,同时排除其单个组分及竞争性结合伴侣3。BiCAP 基于对一种称为 BiFC 的荧光蛋白互补检测技术的改进6。现有方法(包括 BiFC 和邻近连接检测)已被广泛用于在活细胞中可视化和定量蛋白质相互作用7,但无法有效分离并表征这些相互作用所形成的二聚体。
基于蛋白质互补的亲和纯化技术也在不断发展。Schopp 等人近期描述了一种利用 BioID14 进行蛋白质二聚体邻近标记的系统。通过将生物素连接酶 BirA 的分裂片段分别与两个相互作用的蛋白质融合,他们实现了对包含 Ago2、参与 miRNA 介导的基因沉默的蛋白质复合物的选择性富集。Split-BioID 与 BiCAP 互补:Split-BioID 可富集处于 BioID 邻近范围内的蛋白质,而 BiCAP 则富集直接的复合物相互作用蛋白。
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露
致谢
D.R.C 是新南威尔士州癌症研究所研究员,D.N.S 曾是新南威尔士州癌症研究所研究员。本手稿中报告的研究成果由新南威尔士州癌症研究所(13/FRL/1-02 和 09/CDF/2-39)、澳大利亚国家健康与医学研究委员会(NHMRC 项目资助 GNT1052963)、爱尔兰科学基金会(11/SIRG/B2157)、新南威尔士州科学与医学研究办公室、Guest 家族研究员项目以及 Mostyn 家族基金会资助。J.F.H. 和 R.S. 获得了澳大利亚研究生奖学金。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| LR Clonase II Plus 酶 | Thermo Fisher Scientific | 12538120 | Gateway 克隆(第一步)进入 pDEST BiFC 目的载体所需的重组酶 |
| 蛋白酶 K,重组,PCR 级 | Thermo Fisher Scientific | EO0491 | |
| 14 mL 圆底聚丙烯管 | Corning | 352059 | |
| 氨苄青霉素 | Roche Diagnostics Australia | 10835242001 | 用蒸馏水配制为 100 μg/mL 的储存液。 |
| 质粒小提试剂盒 | Promega Corporation | A1330 | |
| 质粒大提试剂盒 | Life Technologies Australia | K2100-07 | |
| DMEM | Gibco | 11995-073 | |
| FBS | Life Technologies Australia | 10099-141 | |
| 青霉素/链霉素 | Life Technologies Australia | 15070-063 | |
| jetPRIME 转染缓冲液 | Polyplus | 114-15 | |
| jetPRIME 转染试剂 | Polyplus | 114-15 | |
| PhosSTOP(磷酸酶抑制剂) | Sigma-Aldrich | 4906837001 | |
| cOmplete, Mini, 无 EDTA 蛋白酶抑制剂混合物 | Roche | 11873580001 | |
| 细胞刮刀 | Sarstedt | 83.1832 | |
| GFP-Trap_A | Chromotek Gmbh | gta-100 | 偶联于琼脂糖微珠的 GFP 纳米抗体 |
| N 端 GFP 单克隆抗体 | Covance | MMS-118P | 可检测 BiFC 载体中的 V1 标签 |
| C 端 GFP 单克隆抗体 | Roche | 11814460001 | 可检测 BiFC 载体中的 V2 标签 |
| 上样缓冲液 | Invitrogen | NP0008 | 添加 1 mL β-巯基乙醇。 |
| 测序级修饰胰蛋白酶 | Promega Corporation | V5117h | |
| LoBind 微量离心管 | Point of Care Diagnostics | 0030 108 116 | |
| 碘乙酰胺 | Sigma-Aldrich | I1149-5G | 用超纯水配制成 5 mg/mL 溶液 |
| 三氟乙酸 - 测序级 | Thermo Fisher | 10628494 | |
| 3M Empore 固相萃取 C18 圆盘(十八烷基)- 4.7 cm | Thermo Fisher | 14-386-2 | 用于制备 stage tips,使用合适尺寸的打孔器切割出 1 mm 圆盘。或者,也可直接购买预装好的 stage tips,见下文。 |
| C18 Stage Tips,10 µL 填料 | Thermo Fisher | 87782 | |
| 甲酸 OPTIMA LC/MS 级 50 mL | Thermo Fisher | FSBA117-50 | |
| 1.9 μm C18 ReproSil 颗粒 | Dr. Maisch GmbH | r119.aq. | 固定相颗粒 |
| 乙腈 OPTIMA LC/MS 级 | Thermo Fisher | FSBA955-4 | |
| Easy-nLC HPLC | Thermo Fisher | ||
| LTQ Orbitrap Velos Pro | Thermo Fisher | ||
| Triton X-100 | Sigma-Aldrich | T8787 | 非离子型去垢剂(100%) |
| DH5α 感受态细胞 | Thermo Fisher | 热激感受态细胞 |
参考文献
- Kolch, W., Pitt, A. Functional proteomics to dissect tyrosine kinase signalling pathways in cancer. Nat Rev Cancer. 10 (9), 618-629 (2010).
- Pawson, T., Kofler, M. Kinome signaling through regulated protein-protein interactions in normal and cancer cells. Curr Opin Cell Biol. 21 (2), 147-153 (2009).
- Croucher, D. R., et al. Bimolecular complementation affinity purification (BiCAP) reveals dimer-specific protein interactions for ERBB2 dimers. Sci Signal. 9 (436), ra69(2016).
- Cassonnet, P., et al. Benchmarking a luciferase complementation assay for detecting protein complexes. Nat Methods. 8 (12), 990-992 (2011).
- Rossi, F., Charlton, C. A., Blau, H. M. Monitoring protein-protein interactions in intact eukaryotic cells by beta-galactosidase complementation. Proc Natl Acad Sci U S A. 94 (16), 8405-8410 (1997).
- Magliery, T. J., et al. Detecting protein-protein interactions with a green fluorescent protein fragment reassembly trap: scope and mechanism. J Am Chem Soc. 127 (1), 146-157 (2005).
- Hu, C. D., Kerppola, T. K. Simultaneous visualization of multiple protein interactions in living cells using multicolor fluorescence complementation analysis. Nat Biotechnol. 21 (5), 539-545 (2003).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Fegan, A., White, B., Carlson, J. C., Wagner, C. R. Chemically controlled protein assembly: techniques and applications. Chem Rev. 110 (6), 3315-3336 (2010).
- JoVE Science Education Database. Basic methods in cellular and molecular biology. plasmid purification. J Vis Exp. , (2017).
- Eslami, A., Lujan, J. Western blotting: sample preparation to detection. J Vis Exp. (44), (2010).
- Shearer, R. F., et al. The E3 ubiquitin ligase UBR5 regulates centriolar satellite stability and primary cilia formation via ubiquitylation of CSPP-L. Mol Biol Cell. , (2018).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Schopp, I. M., et al. Split-BioID a conditional proteomics approach to monitor the composition of spatiotemporally defined protein complexes. Nat Commun. 8, 15690(2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
