该方法可用于从任意二倍体品系产生四倍体和三倍体Caenorhabditis线虫。通过该方法产生的多倍体品系已被用于研究减数分裂前期的染色体相互作用,且该方法适用于探究细胞生物学、发育生物学、进化生物学和癌症生物学中的重要基础问题。
本文内容
摘要
摘要
涉及全基因组多倍化的机制在发育和进化过程中发挥着重要作用;此外,异常产生的四倍体细胞与癌症进展及药物耐药性的形成密切相关。迄今为止,尚无简便方法可在不产生多数不育后代的情况下操控多细胞动物的倍性。本文介绍一种简单且快速的方案,可从任意二倍体品系中获得四倍体Caenorhabditis elegans动物。该方法通过在减数分裂过程中人为诱导染色体分离的偏向性,最终实现C. elegans倍性的提升。该策略依赖于瞬时降低rec-8基因的表达水平,以产生二倍体配子。rec-8突变体可生成二倍体配子,这些配子在受精后有可能形成四倍体个体。这一可操作的方案已被用于构建携带突变和染色体重排的四倍体品系,从而深入理解减数分裂过程中染色体配对与联会时的染色体动态行为及其相互作用。该方法无需遗传标记即可高效地生成稳定的四倍体品系,适用于任何二倍体品系,并可用于衍生三倍体C. elegans。这一简便的方法有助于研究与基因组不稳定性、基因剂量效应、生物尺度调控、细胞外信号传导、应激适应、药物耐药性发展以及物种形成机制相关的其他基本生物学问题。
引言
全基因组多倍化普遍存在于自然界中,通常是适应、物种形成、器官发生、伤口愈合和生物尺度调节的必要步骤;同时已知其可促进癌症发生以及药物耐药性1,2,3,4,5,6,7,8,9,10,11,12农业和渔业产业通过化学处理培育多倍体植物、鱼类和贝类例如,秋水仙素和除草宁)以获得更快的生长速度以及更大体型的作物和牲畜13,14,15小鼠和斑马鱼模型系统中存在实验性且效率低下的四倍体生产方法16,17然而,大多数或所有产生的多倍体多细胞动物在胚胎期即致死或不育,因此并不适合作为研究多倍体在多细胞生物中作用的理想实验模型。因此,目前对多细胞生物中全基因组多倍化的理解仅限于来自近期进化过程中发生过多倍化事件的近缘物种18,19,20研究多倍化生物学作用或其后果的一个途径是利用 秀丽隐杆线虫 模型系统。重要的是, 秀丽隐杆线虫 是一个易于操作的遗传系统,通常以二倍体形式存在,每个基因组仅包含五条常染色体(A)和一条性染色体(X),且具有透明特性,便于观察 体内 观察生物过程,且生命周期较短,为3-4天(从卵发育至性成熟的成虫)。 秀丽隐杆线虫 已发现其能够以四倍体形式进行繁殖,而四倍体是自然界中最常见的全基因组多倍体现象。通过四倍体与二倍体杂交可获得三倍体动物,但其倍性不稳定,品系在几代之内便会恢复为二倍体。
在过去几十年中,仅通过一种繁琐且只能产生有限类型品系的策略,在实验室中分离出少数几种具有活力且可育的 C. elegans 四倍体品系21,22,23。该策略通过对线虫进行热激处理,可能影响其配子中的染色体分离,随后利用遗传标记筛选潜在的多倍体个体,从而获得 C. elegans 四倍体。这些四倍体在线虫性别决定机制(即个体发育为雄性还是雌雄同体)的研究中发挥了重要作用。后续研究利用这些已有的品系,探讨了该线虫在减数分裂过程中与生长、基因剂量以及联会调控相关的机制21,24,25,26。然而,这些研究受限于难以构建新的四倍体品系,以及现有品系所携带的遗传背景标记。本文展示了一种简单且快速的构建稳定四倍体品系的实验方案,该方法已被用于构建研究减数分裂中联会调控机制所需的品系27。
与自然界中多倍体的形成类似,多倍体化可通过产生二倍体而非单倍体配子而发生。我们发现,减数分裂特异性黏连蛋白组分突变体rec-8可生成二倍体精子和卵细胞,这表明抑制rec-8基因将导致四倍体后代的产生(图1)27,28,29。只需通过RNA干扰(RNAi)连续两代抑制rec-8基因,即可简单地获得四倍体品系,从而在表型上模拟rec-8突变体产生的二倍体配子。假定的多倍体个体可通过其体长超过正常个体而被轻易识别。在建立稳定的品系后,通过计数每个细胞核中的染色体数目,可确认其为完全或部分四倍体。
本文所述策略能够从任意初始的二倍体遗传背景或核型出发,生成稳定的四倍体Caenorhabditis线虫品系,且无需使用遗传标记。由于该实验方案比先前方法更高效、通用且操作简便,将拓展研究多倍化在多细胞生物发育、基因组稳定性及进化等基本过程中作用所需的工具。该方案唯一可预见的局限性在于对RNAi具有抗性的遗传背景中可能不适用。
方案
1. 设置 rec-8 RNAi(第1–3天,见图2)
本方案修改自 Kamath 和 Ahringer30。
- 诱导 rec-8 dsRNA 表达在 大肠杆菌,制备线虫生长培养基(NGM)琼脂平板31 添加终浓度为 1 mM 的异丙基-β-D-硫代半乳糖苷(IPTG)和 100 µg/mL 氨苄青霉素。避光保存于 4 °C,可保存至多 4 周。
- 携带目标质粒的Streak HT115细菌 rec-8 (W02A2.6)克隆自Ahringer实验室文库30 rec-8 在添加了100 µg/mL氨苄青霉素和50 µg/mL四环素的LB(Luria Broth)平板上划线接种,于37 °C摇床中过夜培养。
- 第1天,从新鲜划线培养的HT115单菌落中接种单个菌落 E. coli 携带以下的细菌 rec-8 将RNAi克隆转入含有100 µg/mL氨苄青霉素和50 µg/mL四环素的4 mL LB培养基中。在37 °C条件下,于摇床或滚筒培养仪中过夜培养细菌。
- 第二天早上(第2天),诱导产生双链(ds)RNA rec-8 通过加入终浓度为1 mM的IPTG,并在37 °C下振荡培养40分钟,诱导HT115菌液中的W02A2.6。
- 诱导后,向 NGM/IPTG 平板中加入 100–200 µL HT115 菌种 rec-8 细菌,并将培养皿置于室温避光处过夜(第3天)。
- 次日早晨(第4天),将所需线虫品系加入诱导后的HT115中 rec-8 细菌平板,具体操作见下文步骤 2.1。
2. 四倍体的生成与分离(第4至16天,见图2)
- 在第4天,将3-4条所需二倍体品系的幼龄L4(四龄幼虫)期雌雄同体线虫放置于前一天已诱导的、接种了HT115 rec-8 菌株的NMG/IPTG平板上(见上述步骤1.5)。将线虫在15 °C避光条件下培养。
- 从步骤2.1开始后的第3天起,重复步骤1.3和1.4,此时距离该步骤产生的子一代(F1)线虫发育至L4期还有三天。此步骤的时间安排取决于线虫品系在15 °C下的生长速度。某些二倍体突变品系生长较慢,因此需要精细调整时间,以便分离出四倍体个体。
- 在第8天(经过4天的rec-8 RNAi饲喂处理后),将20条在HT115 rec-8 菌中生长的F1代(第一子代)L4期雌雄同体线虫(每皿2条)转移到新近诱导的HT115 rec-8 RNAi平板上,使其自体受精。
- 或者,将20条在HT115 rec-8 菌中生长的F1代L4期雌雄同体线虫与未经处理的同品系雄虫一起转移到新近诱导的HT115 rec-8 RNAi细菌平板上(每皿2条雌雄同体与4-6条雄虫)。
- 在第13天,开始筛选表型细长(Lon)或整体体型大于野生型的F2代(第二子代)后代;随后将单个Lon个体转移至常规的OP50或HB101 E. coli 菌平板上。继续对F3代(第三子代)后代进行筛选;但若多个F3代个体来自同一F2代母本并建立稳定品系,则这些品系不能视为独立品系,因其可能为同一已建立F2母本的兄弟姐妹。
注意:四倍体个体易于识别,因其体型明显长于二倍体。野生型雌雄同体的体长约为四倍体的三分之一。由于体长增加,四倍体在向前移动时会产生从头部到尾部的正弦形体波,身体会多弯曲一圈(图3A)。 - 让Lon线虫自体受精并持续传代,挑选Lon后代,直至在无rec-8 RNAi处理条件下仅产生Lon后代。此过程可能需要额外两到三代。Lon线虫常表现为不育,无法产生后代。
3. 验证四倍体菌株(视频 1 和图 3A、B)
注意:可通过计数未受精卵细胞中的染色体数目来验证四倍体品系。如果品系带有染色体荧光标记,可利用荧光显微镜在减数分裂前观察未受精二倍体卵细胞中染色体对的数量。若无染色体荧光标记,则可通过固定线虫并用DNA染料染色来筛选四倍体线虫;以下提供一种乙醇固定及整体动物4′,6-二脒基-2′-苯基吲哚二盐酸盐(DAPI)染色的实验方案。
- 整只动物DAPI染色
注意:可通过 DAPI 染色携带 12 对连接染色体的四倍体品系,并计数其未受精卵细胞中 DAPI 体的数量,以验证该品系。- 加入5至10 µL M9缓冲液31 在载玻片上放置一滴液体,然后将6至10条线虫转移至液滴中。
- 在解剖显微镜下,用无绒擦拭纸吸去大部分M9液体,注意不要移走线虫。随后立即在虫体上加入10 µL 90%乙醇液滴。让线虫完全干燥,但干燥时间不超过数秒。
- 一旦乙醇蒸发(可在解剖显微镜下观察到该现象),立即向线虫中加入额外的10 µL 90%乙醇。
- 重复步骤 3.1.3 三次。
- 乙醇完全蒸发后,加入6 µL DAPI或Hoechst染料,使其在所选封片剂中达到推荐的终浓度(例如,将2 ng/µL的DAPI储备液以1:1,000比例稀释于M9缓冲液中)。如需长期保存载玻片,可使用含0.5%对苯二胺(p-phenylenediamine)的抗荧光淬灭溶液替代单独的M9缓冲液,该溶液由20 mM Tris-HCl(pH 8.8)和90%甘油配制而成。
- 用盖玻片覆盖载玻片上的线虫,并用指甲油密封盖玻片边缘。加盖盖玻片后至少10分钟,使用荧光显微镜(步骤3.1.7)进行观察。未使用抗荧光淬灭剂的载玻片可在4 °C保存数天后再观察,但荧光信号质量会在数天后开始下降。
- 使用荧光显微镜在100倍放大倍数下,对最成熟的未受精卵母细胞中单个DAPI染色体团(推测为单对染色体)的数量进行计数,该卵母细胞紧邻受精囊,但尚未进入受精囊或子宫。
- 为对卵母细胞核内的单个DAPI信号体进行计数,应使用显微镜的细调焦旋钮,在计数时从卵母细胞核的顶部缓慢聚焦至底部。随后,在反向移动焦平面的过程中对同一细胞核重新计数。即,从细胞核底部到顶部)以确认计数的DAPI信号体数量。
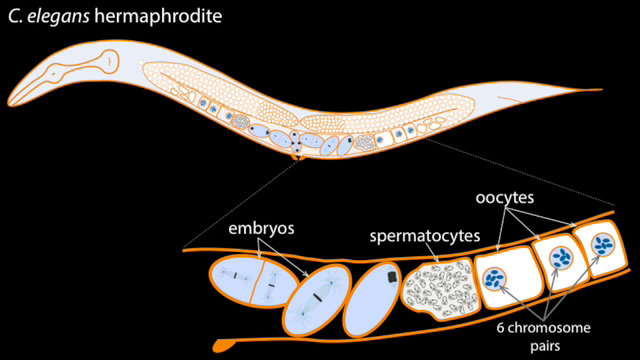
- 在每种稳定的 Lon 品系中,至少选取十只雌雄同体个体,对每条性腺中最成熟的未受精卵母细胞进行评分。野生型卵母细胞平均含有 6 个 DAPI 染色体团,对应 5 对常染色体和 1 对性染色体。若在稳定 Lon 品系的卵母细胞中观察到 12 个 DAPI 染色体团,表明该品系个体为部分(4 套常染色体,3 条 X 染色体)或完全(4 套常染色体,4 条 X 染色体)四倍体。
- 计算每种品系多个(至少10个)卵母细胞中观察到的DAPI信号体的平均数量。某些染色体对可能相互接触或重叠,因此卵母细胞中DAPI信号体的数量通常少于实际的染色体对数目。
- (可选)进一步验证平均 DAPI 体数目为 12 的稳定 Lon 菌株,通过针对染色体轴蛋白(如 HTP-3)的免疫荧光染色,检测其为完全四倍体(4A, 4X)或部分四倍体(4A, 3X)32该染色可使部分四倍体中的染色体对呈现出十字形模式,从而与未连接的单条染色体区分开来。
结果
减数分裂黏连蛋白组分 rec-8 功能受损导致产生二倍体配子:
黏连蛋白组分突变体减数分裂过程的成像 rec-8 精子和卵子揭示了产生四倍体动物的可能机制(图1)27,29,33. 从机制上讲,减数分裂缺陷的 rec-8 突变型精子与卵细胞存在差异;然而,雄性和雌性二倍体配子均由 rec-8 突变体
在野生型减数分裂中,同源染色体通过交换重组暂时相互连接,并以一个单位或二价体的形式进入第一次减数分裂(图1A)34。在第一次分裂期间,同源染色体(同源染色单体)彼此分离,而每条同源染色体中的姐妹染色单体则保持在一起,直到第二次分裂才分离。尽管雌雄配子中的染色体分离模式相同,但卵母细胞的分裂是不对称的,而精母细胞的分裂是对称的,并经历一种特殊的胞质分裂。在每次分裂中,卵母细胞将一半的分裂产物排出到一个很小的极体中。因此,每个卵母细胞前体最终产生一个单倍体卵母细胞和两个极体(图1B、C)35。相反,一个精母细胞前体通过两次对称分裂产生四个有功能的精子细胞。第二次分裂最终形成四个精子细胞从残余体上出芽脱落。这种胞质分裂的特殊之处在于,精子细胞的排列模式和数量由中心粒决定36。
在rec-8突变体配子的前体细胞中,同源染色体之间不发生交叉重组,因此在第一次减数分裂开始时同源染色体无法以二价体形式连接29,34。每条同源染色体的姐妹染色单体在第一次分裂时彼此分离,而不是像野生型配子那样一直保持在一起直至第二次分裂。有趣的是,rec-8突变体在第二次分裂期间的表型在雄性和雌性配子中有所不同:卵母细胞无法完成胞质分裂,而精母细胞则能进行相对正常的胞质分裂(图1B-F)27,28,29。由于在第二次分裂中既未发生染色体分离也未完成胞质分裂,因此产生二倍体卵母细胞,且不排出第二个极体(图1B、C)。rec-8生殖系中的精母细胞能够进行精子细胞出芽或胞质分裂,但常常将两套染色体都分配至其中一个精子细胞,从而产生一个二倍体精子细胞和一个无染色质的精子细胞(图1D-F)27。图1F展示了缺乏染色质的rec-8精子所占比例的定量结果。
rec-8 突变体中雌雄二倍体配子的形成表明,该突变表型可能可用于产生全基因组四倍体菌株。
四倍体的产生 秀丽隐杆线虫 菌株:
通过RNAi瞬时敲低rec-8,可避免在所有构建的四倍体菌株中出现rec-8基因突变29,37。该方法基于以下假设:RNAi对rec-8功能的抑制能够产生二倍体配子,进而可能发育为全基因组四倍体动物,正如rec-8突变体所表现出的表型29,37。本方案的关键在于,rec-8突变体不仅能产生二倍体配子,还能生育数量可观的后代;而其他减数分裂突变体通常产生非整倍体配子,且大多不育或导致胚胎/幼虫致死。
通过使用表达rec-8 dsRNA的细菌喂养C. elegans,采用以下两种策略之一(见实验方案、图2和表1)27,获得了多个四倍体品系。四倍体可通过在含有表达rec-8 dsRNA细菌的培养皿中,将雌雄同体自交两到三代而获得。采用该策略时,将单个雌雄同体置于新制备的rec-8 RNAi平板上,数天后将其后代转移至含有新诱导表达rec-8 RNAi细菌的新平板上(见实验方案)。此外,也可通过将喂食表达rec-8 dsRNA细菌的第一代雌雄同体与未经处理的同基因型雄虫在含有表达rec-8 dsRNA细菌的培养皿中杂交来产生四倍体(图2)。在此情况下,参与杂交的雄虫从L4期开始直至交配期间均暴露于rec-8 RNAi细菌中。这两种方案均可获得四倍体动物27。表1列出了使用本方案获得的四倍体品系。三倍体和四倍体C. elegans的体型大于二倍体,但三倍体品系不稳定,通常在一至两代内会回复为二倍体,而四倍体品系则相对稳定22,23。推测的四倍体品系表现为体型大于原始品系(Lon)的雌雄同体,且其后代均为Lon表型(图3A)。Lon个体易于识别:野生型二倍体个体的体长约为四倍体的三分之二,且其身体在向前呈正弦波运动时不会产生额外弯曲,这一特征可被观察到(图3A)。
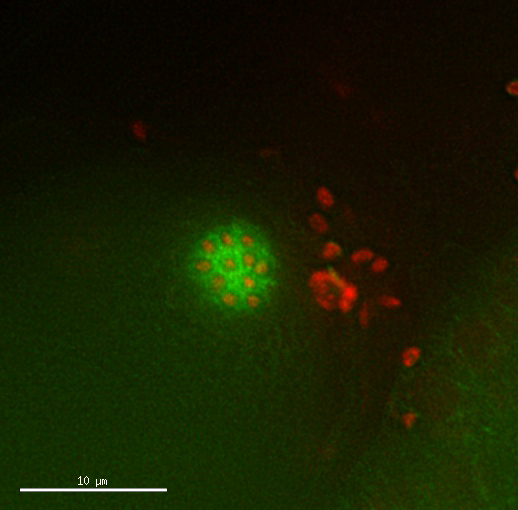
通过检测四倍体雌雄同体的卵母细胞中是否存在12对染色体(相较于二倍体雌雄同体卵母细胞中的6对染色体)来确认四倍体菌株(图3B、C和视频1)。
四倍体类别:
已鉴定出两种四倍体两性个体:一种产生雄性的频率与二倍体两性个体相似,另一种产生雄性的频率则显著更高(表1)。研究表明,这两类四倍体两性个体存在差异:产生雄性频率与二倍体相近的类别在其所有染色体上均为四倍体(4A, 4X);而产生高频率雄性的类别则是常染色体为四倍体、性染色体为三倍体的两性个体(4A, 3X)。后一类四倍体具有稳定性,可产生4A, 3X的两性个体和4A, 2X的雄性个体。
四倍体菌株的生长速度较慢,且与其来源的二倍体相比,子代数量减少,这一点在之前方法构建的菌株中已有观察。22,23. Madl 和 Herman22 有研究推测,四倍体品系中死亡胚胎比例的增加可能源于卵母细胞的非整倍性;然而,对四倍体品系的初步观察并未发现非整倍体卵母细胞数量显著升高,也未观察到卵母细胞或精母细胞分裂异常,足以解释子代数量减少的现象。视频 2,以及 图3C,D).
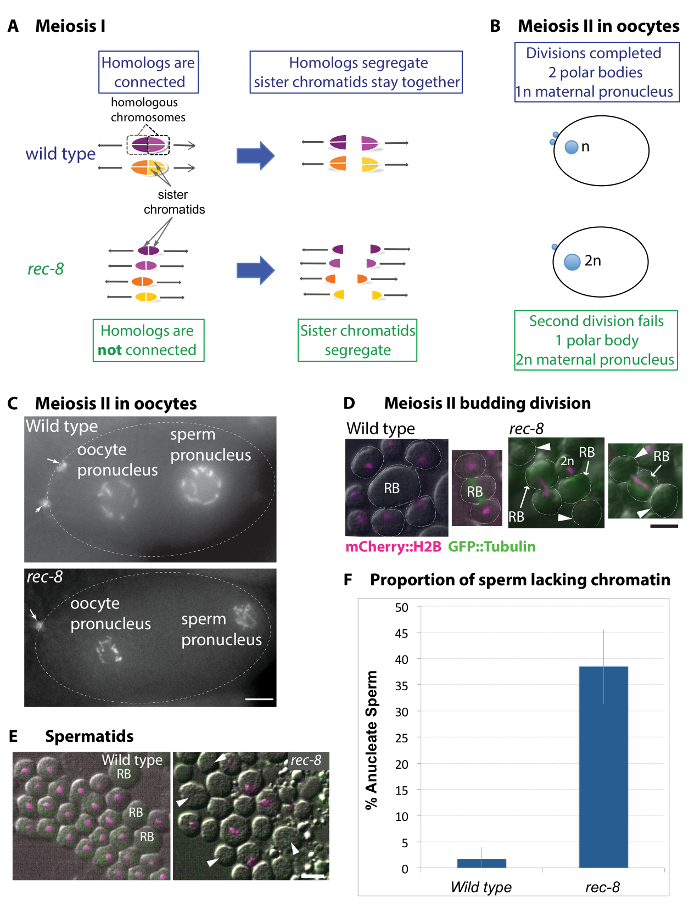
图1:rec-8 突变体中的配子发生过程提示了产生稳定多倍体品系的可能机制。(A)野生型与 rec-8 突变体减数分裂过程中染色体结构与分离模式的示意图。在野生型减数分裂中,同源染色体在第一次减数分裂时分离;每条同源染色体的姐妹染色单体朝向同一纺锤体极排列,并保持在一起直至第二次分裂。在 rec-8 突变体中,同源染色体无法形成交叉,因而彼此不连接;与野生型不同,rec-8 突变体的姐妹染色单体彼此反向排列,并在第一次减数分裂时即发生分离。(B)野生型与突变型卵母细胞示意图,显示雌性原核及排出的极体(未显示雄性原核)。在野生型卵母细胞中,两次不对称的减数分裂导致两个极体被排出;而在 rec-8 突变体中,第二次极体排出失败,从而形成二倍体卵母细胞。(C)表达 mCherry::组蛋白 H2B 的野生型与 rec-8 突变体卵母细胞图像。箭头指示野生型卵母细胞中的两个极体和 rec-8 突变体中的一个极体。比例尺为 5 µm。(D 和 E)表达 mCherry::组蛋白 H2B(品红色)的野生型与 rec-8 突变体动物的精子细胞活体图像。箭头指示无核精子细胞。比例尺为 2 µm。(D)野生型与 rec-8 突变体精母细胞正在进行第二次(出芽式)分裂。野生型精母细胞进行对称分裂,产生四个出芽的精子细胞,每个均含有单倍体染色体组。在 rec-8 突变体精母细胞中,第二次分裂时染色体分离受损;最常见的情况是,在第二次减数分裂中,大部分染色质保留在残余体(RB)或两个姐妹精子细胞之一中。这导致产生无核的 rec-8 突变体精子(由箭头指示)或二倍体精子。(E)利用微分干涉差(DIC)显微镜和荧光显微镜观察的野生型与 rec-8 突变体出芽后精子细胞的活体图像。野生型精子细胞的染色单体质量均相似;rec-8 突变体精子细胞则形成无核精子。(F)野生型与 rec-8 突变体无核精子的定量分析。rec-8 突变体产生的无核精子比例为 38.5%,而野生型低于 1.6%。Fisher 精确检验表明,与野生型相比,rec-8 突变体无核精子的发生率显著更高(p ≤0.0001)。误差线表示标准差。请点击此处查看该图的放大版本。
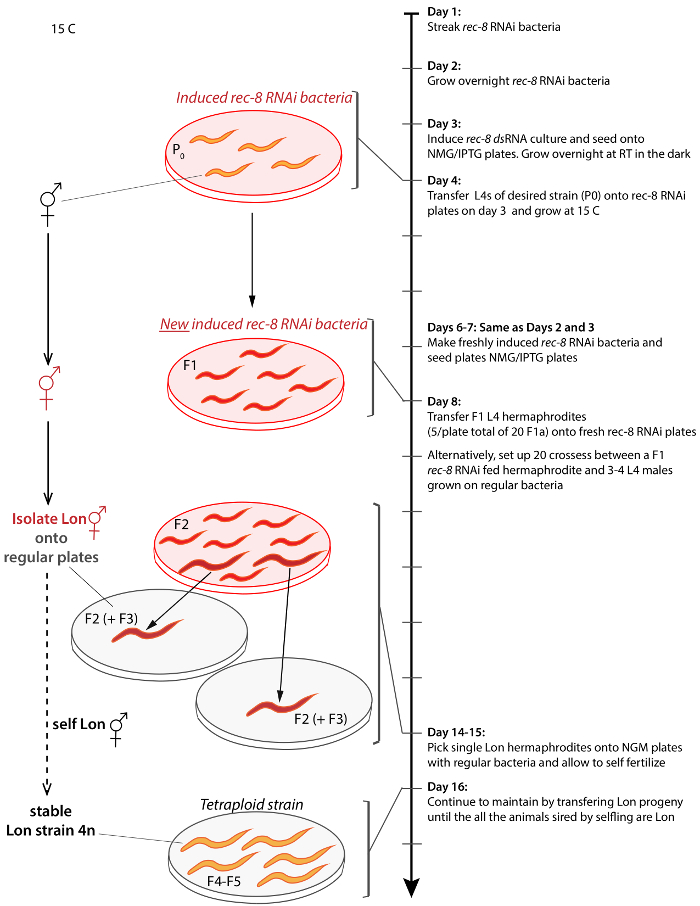
图2:从任意品系产生并分离四倍体 C. elegans 的实验方案示意图。右侧箭头表示实验流程的时间线,从第1天开始,持续至第17天。在第9天将雌雄同体与未经处理的雄虫杂交也可获得类似结果。方括号将各步骤的图示与时间线连接起来。未经处理的线虫以橙色表示,经处理的线虫为红色,Lon表型线虫体型较大,表达rec-8 dsRNA的细菌以透明红色背景的培养皿表示,而常规OP50细菌则以透明灰色背景的培养皿表示。除非另有说明,所有操作均在15 °C下进行。请点击此处查看该图的放大版本。

图3:四倍体示例。(A)四倍体(MSC2)个体及其来源的二倍体品系(AV740)的明场图像。四倍体C. elegans的整体体型比二倍体更大、更长(Lon表型)。这种体型差异导致运动中的四倍体身体出现额外的正弦波形弯曲,可作为筛选四倍体后代的判别标准。比例尺为0.1 mm。(B、C)二倍体(AV740)和四倍体(MSC1)在减数分裂前最成熟未受精卵母细胞核的荧光图像。通过观察已建立的Lon品系未受精卵母细胞中染色体对的数量进行二次筛选,如表达Mcherry::H2B和GFP::β-Tubulin的MSC1品系所示(见视频1)。比例尺为5 µm。(D)四倍体卵母细胞减数分裂过程的时间推移图像(视频2),显示总体正常的减数分裂过程。箭头指示极体,虚线标记位于受精囊内、被精子包围的卵母细胞皮层;t = 经过的时间(分钟)。比例尺为10 µm。 请点击此处查看该图的放大版本。
| 基因型 | 四倍体衍生株 (常染色体组数 : X染色体数目)* | 亲本品系 (二倍体) |
| meIs16 [pie-1p::mCherry::his-58 + unc-119(+)]; | MSC1 (4A:4X) | MSC0 |
| ruIs57 [pie-1p::GFP::b-tubulin + unc-119(+)] | MSC2 (4A:3X) | |
| MSC3 (4A:4X) | ||
| MSC5 (4A:3X) | ||
| MSC6 (4A:4X) | ||
| MSC8 (4A:4X) | ||
| unc-119(ed3) III; ddIs6; ddIs6[tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; pie-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3X) | TMR17 |
| MSC15 (4A:3X) | ||
| MSC16 (4A:4X) | ||
| spo-11(me44)/nT1 IV; +/nT1[ qIs51[myo-2::gfp Ppes-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [pie-1p::mCherry::his-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1[ dpy-10(e128) mIs14[myo-2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| bli-2(e768) unc-4(e120) II | ||
| ruIs32 [pie-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42[Cel-sid-2 + Cel-myo-2::DsRed] | AV824& | JU1018 |
表1:生成的四倍体菌株。 *通过计数减数分裂前卵母细胞中二价体(配对的同源染色体对)和单价体(单独的同源染色体)的数量,并结合所产生雄性后代的比例推断得出。
视频 1:筛选以确认稳定的 Lon 品系是完全四倍体还是部分四倍体。视频首先展示一幅野生型雌雄同体的示意图,标出成像区域(未受精卵母细胞),通过计数染色体对来鉴定四倍体。示意图之后,一系列Z轴层扫视频和投影图像展示了二倍体和四倍体动物的性腺,这些样本经过固定并用DAPI染色,或为表达Mcherry::H2B组蛋白的活体品系。筛选时通过计数未受精卵母细胞中相连的同源染色体对数来进行。MCherry或DAPI染色信号的计数均在最靠近储存精子的受精囊(即“-1卵母细胞”)的未受精卵母细胞中进行。该卵母细胞中的染色体最为浓缩且彼此分离,有利于更准确地计数同源配对。每种品系均筛选超过10只个体,以确保-1卵母细胞中染色体计数的准确性。Z轴层扫厚度为0.2 µm。请点击此处观看该视频。(右键可下载。)
视频 2:四倍体卵母细胞的分裂过程看似正常。 表达 Mcherry::H2B 组蛋白和 GFP::β-Tubulin 的四倍体品系卵母细胞分裂过程的时间延时图像。分裂的时间和模式均看似正常。每 2.5 分钟拍摄一次图像。请点击此处观看该视频。(右键可下载。)
讨论
单倍体(n)配子的产生对于在受精时形成二倍体(2n)合子至关重要。这种基因组数量的减半过程通过减数分裂实现,即在一次基因组复制之后连续进行两次细胞分裂。为了产生单倍体配子,与大多数其他多细胞动物一样,秀丽隐杆线虫(C. elegans)在第一次分裂中将来自母本和父本的同源染色体分开,而在第二次分裂中则将每条同源染色体的姐妹染色单体分开。自然界中全基因组多倍化的一种产生方式是:配子在减数分裂过程中未能将基因组大小减半,从而形成未减数的配子。
50 多年来已知四倍体 C. elegans 线虫具有活力且可育。Nigon23 以及后来的 Madl 和 Herman22 分别通过热激处理破坏减数分裂染色体分离,并结合遗传标记的方法,成功构建并鉴定出少量 C. elegans 四倍体品系。30 多年后,该方案被用于获得唯一一株 C. briggsae 四倍体品系24。这些四倍体品系曾被用于研究 C. elegans 如何决定发育为雄性或雌雄同体、倍性如何调控生长与体型,以及减数分裂中染色体配对与联会的过程25,26,38,39,40。然而,这些研究以及其他需要特定四倍体或三倍体品系的实验,均受限于该方法在构建四倍体品系时的操作难度。
本方案可从任意初始二倍体遗传背景或核型出发,无需使用遗传标记,即可获得稳定的全4A、4X及部分4A、3X四倍体Caenorhabditis线虫品系。
在 C. elegans 中,四倍体的形成可能通过多种机制发生:
Madl 和 Herman 提出,他们所获得的四倍体菌株可能来源于三倍体中间状态。这些菌株是通过多代筛选获得的,或是将推测的三倍体中间体与二倍体雄性杂交而得到的22。rec-8 突变体中染色体分配缺陷会导致二倍体卵细胞和精子的产生,这提示了在 rec-8 RNAi 方案中四倍体动物可能产生的另一种机制27。
rec-8 RNAi 处理的雌雄同体可产生二倍体卵母细胞和精母细胞,这些配子受精后将发育为四倍体个体。与此相符的是,部分克隆获得的 F2 代雌雄同体在下一代中产生了稳定的 Lon 品系,这表明这些被克隆的 Lon F2 雌雄同体本身已为四倍体。在杂交方案中,第一代经 rec-8 RNAi 处理的雌雄同体与未经处理的雄虫进行杂交。由于杂交是在表达 rec-8 双链 RNA 的细菌存在下进行的,雄虫在交配期间至少暴露于 rec-8 RNAi 环境中达 3 天,因此雄虫仍可能产生二倍体精母细胞。因此,在交叉受精方案中出现的 Lon 多倍体个体,也可能来源于二倍体卵母细胞与二倍体精子的受精。稳定的四倍体品系可能由二倍体配子之间的受精产生,也可能通过具有不同倍性卵母细胞的三倍体个体与产生单倍体精子的二倍体个体杂交而形成。
重要注意事项:
自交与异交方案:
通过自体受精的rec-8 RNAi处理F1雌雄同体个体的方案,以及将处理后的雌雄同体与未经处理的雄性进行杂交的方案,均可获得4A, 4X和4A, 3X的四倍体品系。尽管最初从自体受精方案中分离到更多的多倍体个体,但其中更多个体表现为不育,因此两种方案在产生稳定的四倍体品系方面效率相似。自体受精方案成功率较高但不育率也较高的原因尚不清楚。尽管两种方案效率相当,但自体受精方案操作更简便,因其无需分离雄性个体用于交配。此外,当目标品系交配效率低下或存在交配缺陷时,自体受精方案更具优势。杂交方案则可用于构建包含单条染色体多个拷贝的复杂四倍体品系。
修改与局限性:
目前,该实验方案通过喂食表达 rec-8 基因双链RNA的细菌来进行 rec-8 RNAi 处理。因此,该方案不适用于对喂食RNAi无反应的 Caenorhabditis 物种,或在RNAi的环境摄取及组织间系统性传播方面存在缺陷的突变体41,42,43。这一问题可能通过将目标双链RNA直接注射到生殖系中进行RNAi处理来解决。
三倍体动物必须通过四倍体与由其衍生的二倍体动物杂交来获得,因为该方案无法产生稳定的三倍体品系44,45。三倍体个体所产生的卵子中仅有15%能够孵化,其后代大多由于非整倍性而表现为不育。此外,少数存活且具有生育能力的后代在几代之内也往往恢复为完全或接近二倍体。这可能至少部分是由于卵母细胞在第一次减数分裂过程中通过将第三条染色体分配至极体而部分纠正了三体性。
该方案的一个无法克服的局限性在于,它不能用于构建影响RNAi机制组分的突变体的四倍体,因为这些突变体对RNAi处理具有抗性46。
故障排除:
rec-8 RNAi:
要使本实验方案成功,有几个关键因素需要考虑。首先,必须使用新鲜的IPTG以及新制备的含IPTG的NMG平板,用于诱导携带rec-8(W02A2.6)克隆的HT115细菌中rec-8双链RNA的产生。IPTG对光敏感,因此应尽量减少平板暴露于光照的条件。含IPTG的平板可在4 °C避光条件下保存最多一个月。其次,来自Ahringer文库(Kamath和Ahringer 2003)的rec-8(W02A2.6)RNAi细菌HT115菌株所产生的rec-8表型,强于其他可获得的rec-8 HT115克隆。
四倍体菌株的保藏:
四倍体菌株生长非常缓慢,每代最多产生50个子代47。所有已鉴定的四倍体菌株均相对稳定,但在受到胁迫时可能发生崩溃并转变为二倍体(Jonathan Hodgkin 个人交流及我们未发表的观察结果)。因此需要注意,当四倍体菌株在25 °C下培养、经历热激、饥饿或冻融处理时,可能会迅速回复为二倍体,因此在冻融这些菌株或使其暴露于可能导致回复的胁迫条件时,务必持续挑选Lon表型的个体。
可能的应用:
研究全基因组多倍化在多细胞生物的进化、细胞周期、基因表达和发育中的作用或效应,依赖于以下几方面的比较:同一生物体内具有不同倍性的细胞、近缘物种中具有不同倍性的相同细胞类型,或在进化上近期经历过多倍化事件且存在地理隔离的物种。3,5,6,7,8,11,18,19,20,48,49,50尽管四倍体可从小鼠和斑马鱼模型系统中获得,但其后代不育或在胚胎期致死。16,17此外,与这些模型系统相比,其生命周期较长 秀丽隐杆线虫, 目前可用的多倍体动物制备方法复杂且效率低下. 因此, 秀丽隐杆线虫 通过该方法获得的品系将有助于深入研究全基因组多倍化在多细胞生物中的效应与作用。
由于三倍体可通过四倍体与原始二倍体杂交获得,因此对仅在基因组拷贝数上存在差异的二倍体、三倍体和四倍体进行比较,为评估具有不同基因组大小(或基因剂量)的等效动物/器官/细胞提供了独特且前所未有的机会。本文所述方案具有灵活性和操作简便的优点,使我们能够从不同的遗传背景或核型的二倍体出发,成功构建数十种四倍体品系。其中一些品系已被用于研究减数分裂过程中同源染色体配对和联会的机制27。
携带荧光标记的野生型和突变型四倍体品系将为研究基因组大小与核/细胞质比例对细胞内/细胞/器官及整体动物尺度关系、全基因组多倍化对适应性、物种形成、基因剂量与表达以及组织和器官发育的影响提供新的研究途径。除了生物学尺度的研究外,四倍体品系的建立还将显著推进对细胞外信号传导、基因组不稳定性、内复制、全基因组复制、基因剂量、应激适应、药物抗性发展以及物种形成机制等基本生物学问题的探究。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢线虫遗传学中心(由美国国立卫生研究院(NIH)研究基础设施项目办公室资助,项目编号P40 OD010440)提供菌株。作者谨此感谢Baptiste Roelens和Eli Lessman为我们提供的建设性反馈意见,同时感谢纽约市立学院(CCNY)纽约城市大学(CUNY)的Mano实验室提供部分拍摄场地及协助。本研究得到了PSC-CUNY资助项目TRADB-46-113和美国国立卫生研究院(NIH)资助项目1SC2GM118275-01的支持。M.S. 部分受加拿大卫生研究院(CIHR)博士后奖学金资助,E.K. 受美国国立卫生研究院/普通医学科学研究所(NIH/NIGMS)RISE项目GM062981资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 体视显微镜 | Motic Microscopy | SMZ171 | |
| 名称 | 公司 | 货号 | 备注 |
| NGM 琼脂平板 | |||
| 60 mm × 15 mm 培养皿,无菌 | Tritech Research | T3305 | |
| 35 mm × 15 mm 培养皿,无菌 | Tritech Research | T3500 | |
| 细菌学琼脂,5 kg | VWR | 89140-850 | |
| 氯化钠,生物技术级 | VWR | 97061-278 | |
| 蛋白胨,BD Bacto | VWR | 90000-368 | |
| 三水合氨苄青霉素 | VWR | 97062-300 | |
| 无二噁烷 IPTG | Thermo Scientific | R0391 | |
| 名称 | 公司 | 货号 | 备注 |
| 生长培养基 | |||
| LB Lennox 肉汤 | IBI Scientific | 89126-176 | |
| 名称 | 公司 | 货号 | 备注 |
| LB 琼脂平板 | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| 名称 | 公司 | 货号 | 备注 |
| 抗生素 | |||
| 三水合氨苄青霉素 | VWR | 97062-300 | |
| 盐酸四环素 | Fisher Scientific | BP912-100 | |
| 名称 | 公司 | 货号 | 备注 |
| 染色 | |||
| Hoechst 33258,五水合物 | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| 名称 | 公司 | 货号 | 备注 |
| 乙醇固定 | |||
| 乙醇,纯品,190 proof(95%),USP | Koptec, VWR | 89125-166 | |
| 名称 | 公司 | 货号 | 备注 |
| M9 缓冲液 | |||
| 氯化钠,生物技术级 | VWR | 97061-278 | |
| 磷酸二氢钾,无水级 | VWR | 97062-346 | |
| 磷酸二氢钠,二水合物 | Fisher Scientific | AC271750025 | |
| 名称 | 公司 | 货号 | 备注 |
| RNAi 克隆 | |||
| 表达 rec-8 dsRNA 的 HT115 细菌 | Source Bioscience | W02A2.6 | |
| 表达 rec-8 dsRNA 的 HT115 细菌 | Dharmacon | RCE1182-202299820 |
参考文献
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
重印与许可
