体细胞干细胞的可获得性对于再生医学、疾病建模以及深入理解干细胞特性至关重要。本文介绍了重编程的实验策略, 体外 通过瞬时表达单一转录共激活因子YAP,将已分化的成体细胞重编程为相应的可扩增的组织特异性干细胞/祖细胞。
本文内容
摘要
摘要
本文介绍了一种通过瞬时表达转录因子YAP,将原代分化细胞分离并转化为同源谱系的干细胞/祖细胞(SCs)的实验方案。利用该方法,可将小鼠乳腺的腔内分化(LD)细胞转化为具有乳腺干细胞分子与功能特性的细胞。YAP同样能够将完全分化的胰腺外分泌细胞重编程为类似胰腺导管祖细胞的细胞。与内源性天然干细胞类似,YAP诱导产生的类干细胞("ySCs")最终可长期扩增形成类器官培养物。 体外 无需外源性YAP/TAZ,因为ySCs具有可遗传的、类似干细胞的自我更新状态。
此处介绍的重编程方法提供了生成并扩增 体外 来自已分化细胞的不同组织来源的前体细胞。体细胞的直接扩增 离体 对再生医学、肿瘤起始机制的理解,以及更广泛的细胞与发育生物学研究具有重要意义。
引言
组织特异性体细胞干细胞(SCs)对组织更新及损伤后的修复至关重要。轻松分离并无限扩增这些细胞的可能性 离体 体细胞干细胞(somatic SCs)对于潜在的再生治疗以及基础研究和疾病建模中的干细胞应用而言是一个关键问题。然而,由于难以捕获多种上皮器官中干细胞的状态,该方向的进展一直受到限制。 体外事实上,在多种成体组织中,常驻干细胞(SCs)可能并不存在,或难以获取,或其数量与再生潜能会因衰老或疾病状态而受损。2016年,我们开始填补这一空白,报道了将单一转录共激活因子YAP(YES相关蛋白)或其密切相关的蛋白TAZ(含PDZ结构域的转录激活因子)表达于终末分化细胞中,可高效地产生功能完整、可扩增、无致瘤性且自体来源的细胞群体,这些细胞在功能操作和分子特征上与其对应的组织特异性干细胞无法区分。1持续数天的YAP或TAZ活性脉冲足以诱导产生具有自我更新能力的体细胞干细胞。这是一种稳定的细胞状态,不再依赖于外源基因的持续表达,因为该状态可在无进一步异位YAP/TAZ表达的情况下通过细胞传代遗传下去。1本方案详细描述了用于生成的步骤 从头合成 乳腺和胰腺上皮干细胞/祖细胞,起源于这些组织的已分化细胞。该方案填补了当前重编程/转分化研究领域的一项空白。迄今为止,该领域的研究主要集中于将细胞转化为诱导性多能干细胞(iPSC)状态,再将这些胚胎样、多能性的干细胞转化为更特化的分化细胞。然而,iPSC在引入成体组织后具有致瘤性,因此亟需建立使其完全且高效分化的实验方案2然而,这一分化步骤即使能够实现,也会牺牲长期扩增能力、自我组织能力以及器官再殖潜力。这些正是器官再生所必需的关键特性,而这些特性实际上仅存在于内源性组织特异性干细胞以及本文所描述的YAP诱导干细胞(ySCs)中。类似地,通过使用多种转录因子组合将一种细胞类型直接转分化为另一种细胞类型,也会产生缺乏必要增殖能力和干性潜能的分化细胞。3.
本文所述方法还利用了近年来新出现的类器官技术,该技术可实现内源性干细胞(SCs)在体外的扩增与分化ex vivo4。即使在内源性干细胞不存在的实验、生物学或疾病条件下,YAP诱导的干细胞仍可能产生具有类器官形成能力的干细胞。需要指出的是,与其他重编程方法不同,YAP所赋予的细胞可塑性可能是活体组织中唯一一种向干细胞样状态逆转的形式。干细胞样特性的重新获得与组织修复或致癌激活相关5。尽管YAP和/或TAZ对于多种成体组织的稳态并非必需,但它们在组织再生、肿瘤生长以及体外体细胞干细胞的扩增过程中具有绝对关键的作用1,6,7,8,9,10,11,12
方案
所有动物实验均遵循本机构指南,并经OPBA及卫生部批准
1. YAP诱导的乳腺干细胞样细胞(yMaSCs)的生成
注意:第1节中所有培养基和溶液的组成均在表1中说明。
- 原代乳腺细胞群体的分离
- 在细胞培养罩内准备:一次性手术刀、透明质酸酶溶液、消化液、溶血溶液、分选溶液、I型胶原包被溶液、Ca2+ 螯合溶液,洗涤培养基#1,洗涤培养基#2,dispase溶液,乳腺二维培养基,冰冻HBSS/PS。
- 对于典型实验,通过颈椎脱位法处死10只8至12周龄的雌性小鼠(品系为CD-1或C57BL/6)。解剖前用大量70%乙醇溶液对腹部进行消毒。
- 沿腹部皮肤做Y形切口解剖乳腺组织,用杜蒙镊子轻轻牵拉,小心地将腺体从腹膜分离。将解剖好的腺体置于含10 mL冰上预冷的HBSS/PS溶液的非细胞黏附培养皿中(每皿20个腺体),注意避免带入皮肤碎片。
- 在组织培养罩内,用 10 mL 新鲜的 HBSS/PS 溶液将每份腺体清洗一次,然后将其置于无细胞黏附性的空培养皿中(每皿放置 20 个腺体)。请勿使用组织培养板,因为细胞容易黏附于其表面,导致样本大量损失。
- 用手术刀将乳腺组织精细切碎,直至形成均匀的1 mm混合物3 获得组织碎片后,用25 mL血清移液管将每皿切碎的组织以10 mL解离液回收,并转移至50 mL锥形管中,至少吹打5次以充分分散组织团块。
注意:为了实现高效的消化,步骤 1.1.5 中对组织进行充分剪碎至关重要。 - 在37 °C下孵育1小时,期间持续剧烈振荡。孵育1小时后,检查匀浆情况,若仍有团块存在,则延长孵育时间10分钟。将消化后的组织在室温下以400 × g离心5分钟,弃去上清液。将组织沉淀重悬于3 mL溶血溶液中,冰上孵育3分钟。
注意:溶血是一种较为剧烈的处理步骤,因此该步骤中的严格计时至关重要。 - 用10 mL洗涤液#1洗涤细胞,将消化后的组织在400 × g离心5分钟,弃去上清液。将组织沉淀重悬于10 mL洗涤液#2中,接种至10 cm组织培养皿中。将培养皿置于细胞培养箱中,37 °C孵育1小时。
注意:此步骤将去除大部分应贴壁于培养皿上的成纤维细胞。 - 从培养皿中回收细胞悬液,倒入50 mL锥形管中。以400 × g离心5 min,弃去上清液。用10 mL的Ca2+ 每次以400 × g离心5分钟,收集沉淀。将沉淀重悬于5 mL 0.25%胰蛋白酶/EDTA溶液中,于37 °C孵育5分钟。
- 在胰蛋白酶溶液上方加入5 mL分散酶溶液,并添加DNase I至终浓度1 μg/mL。使用1 mL枪头将溶液吹打至少5次,以解离DNA团块,于37 °C孵育10分钟,每3分钟摇动一次。
- 加入10 mL洗涤液#2,通过40 μm细胞滤网过滤至一个新的50 mL离心管中。在400 × g下离心5分钟,沉淀细胞悬液,弃去上清液,并确保彻底去除所有液体。
- 通过FACS纯化乳腺上皮细胞
- 将10 μL Lin(小鼠谱系抗体混合物)、12 μL抗-CD326(Ep-CAM)(终浓度为30 ng/mL)、10 μL抗-CD49f(终浓度为25 ng/mL)、10 μL抗-CD61(终浓度为10 ng/mL)以及2.5 μL抗-CD29(终浓度为2.5 ng/mL)加入抗体混合液中,混匀。
注意: 从本步骤至步骤1.3,始终在避光条件下操作,以避免荧光标记抗体发生漂白。每个沉淀物均按以下操作: - 在另一离心管中保留少量细胞(用100 μL枪头蘸取细胞沉淀),加入500 μL分选溶液重悬细胞,置于FACS管中,冰上保存,作为FACS实验的未标记对照样本。
- 将每个沉淀重悬于200 μL洗涤液#1中,加入44.5 μL抗体混合液,充分吹打混匀,置于冰上避光孵育30分钟。用10 mL洗涤液#1稀释细胞悬液,400 × g离心5分钟,弃上清。
- 将细胞沉淀重悬于2 mL分选溶液中,通过带滤帽的FACS管过滤,随后进行细胞群体的FACS分选(如 图1B在进行多色FACS实验之前,务必校正每种荧光染料可能渗漏到其他检测通道中的信号。为此,需将每种荧光标记的抗体分别与细胞悬液孵育,并通过单色对照测量所有荧光染料在各检测器中的光谱重叠值,以建立补偿矩阵。
注意:本实验使用配备85 μm喷嘴的分选仪。10只雌性小鼠的典型制备可获得约800,000个LD细胞。若在FACS过程中形成团块,则进行二次过滤。
- 将10 μL Lin(小鼠谱系抗体混合物)、12 μL抗-CD326(Ep-CAM)(终浓度为30 ng/mL)、10 μL抗-CD49f(终浓度为25 ng/mL)、10 μL抗-CD61(终浓度为10 ng/mL)以及2.5 μL抗-CD29(终浓度为2.5 ng/mL)加入抗体混合液中,混匀。
- 原代乳腺LD细胞接种
- 在FACS操作过程中,用I型胶原蛋白包被液包被多孔组织培养板。于37 °C、5% CO₂条件下孵育1小时。2 在细胞培养孵育箱中孵育。铺板前移除包被液,并用洗涤培养基#1洗涤。
- 用10 mL洗涤液#1洗涤从FACS步骤中回收的细胞,400 × g离心5分钟,弃去上清液。将细胞沉淀重悬于乳腺二维培养基中(每孔500 µL),接种至胶原处理的培养板。将细胞置于细胞培养孵育箱中静置48小时,以确保细胞充分贴壁和铺展。
注意:通常从10只雌性小鼠进行分选时,使用6–8个24孔板中的孔即可获得最佳细胞密度(每孔100 000个细胞)。
- yMaSCs(YAP诱导的乳腺干细胞)的诱导
注意:从本步骤开始,所有操作均应在生物安全二级(BSL-2)条件下进行。- 制备乳腺集落培养基。在接种细胞前,立即将基底膜基质新鲜加入培养基中。
- 为诱导YAP介导的乳腺干细胞(yMaSCs),通过慢病毒感染原代LD细胞,具体方法为:将一份体积的FUdeltaGW-rtTA病毒上清液、一份体积的FUW-tetO-YAP(或TAZ)上清液与两份体积的含双倍浓度补充物的无血清乳腺二维培养基混合,总体积为500 mL。将细胞与慢病毒上清液共同孵育48小时。典型的慢病毒制备方法请参考在线实验方案22.
- 感染后,洗涤贴壁细胞,并用添加了 2 µg/mL 多西环素的乳腺二维培养基处理,以诱导外源 YAP(或 TAZ)基因表达。使用感染空载体、EGFP 表达载体或 YAPS94A 表达载体的细胞,或使用感染可诱导 YAP(或 TAZ)表达载体但未添加多西环素的细胞作为阴性对照。
注意:可通过使用针对特定基因的引物进行qRT-PCR来验证感染是否成功 人YAP 转基因,如前所述1. - 用多西环素诱导7天后,加入0.05%胰蛋白酶/EDTA(每孔150 μL),在37 °C孵育10分钟,使贴壁细胞脱落;用洗涤培养基#2(每孔600 μL)按1:5稀释以终止消化反应,并对细胞进行计数。将细胞重悬于乳腺集落培养基中(每孔1 mL),添加2 μg/mL多西环素,按1,000个细胞/孔的克隆形成密度接种至24孔超低吸附培养板中。
注意:在添加基底膜基质时,务必确保乳腺细胞集落培养基处于冰上预冷状态。基底膜基质在收到后必须立即于 -20 °C 保存,并在 4 °C 缓慢过夜解冻;解冻后必须始终在冰上操作,具体步骤遵循生产商说明书。 - 一旦表达YAP的LD细胞开始增殖,并在悬浮培养中形成类似MaSC的克隆(yMaSC克隆)(接种后14天),计数并进行后续分析图1C).
注意:阴性对照细胞(如步骤1.4.3所述)将保持为单细胞状态。 - 每72小时更换一次新鲜的乳腺集落培养基,持续14天以支持yMaSC集落的生长;具体操作为:准备一份不含5%基底膜基质但添加了10倍浓度补充物的乳腺集落培养基,取该培养基总体积的1/10加入每孔中例如 100 μL 加入总体积为 1 mL 的培养基中,以避免基质悬液过度稀释。
- yMaSCs的传代培养
- 从乳腺集落培养基中回收原始集落,然后进行解离并重新接种。
注意:由YAP重编程的LD细胞衍生的yMaSC克隆获得了自我更新能力,可在不再添加强力霉素的情况下成功传代培养(即不依赖于外源性YAP/TAZ的表达)。 - 在细胞培养罩内,按照步骤1.4.1配制乳腺集落培养基和乳腺类器官培养基。
- 收集每个样本,加入过量体积(10:1)的预冷HBSS,冰上孵育1小时,以溶解基底膜基质。将细胞团块离心(180 × g,5分钟)并用预冷HBSS洗涤3次,随后重悬于预冷HBSS中。将细胞团块在37 °C下用0.05%胰蛋白酶/EDTA孵育10分钟,以获得单细胞悬液。使用P1000移液器枪头将细胞团块上下吹打10次,确保完全解离至单细胞水平。
- 在无多西环素的乳腺集落培养基中,以每孔1,000个细胞的克隆形成密度将细胞计数并重新接种至24孔超低吸附培养板中(每孔1 mL)。每10–14天重复一次该传代操作,以评估自我更新能力。
- 第三次传代前,在类器官培养条件下传代 yMaSC 克隆,以促进 yMaSC 扩增,并允许形成自我组织为双层上皮结构的微型腺体,其结构与天然组织高度相似 体内 乳腺组织学结构
- 按照步骤1.5.3至1.5.4的方法从乳腺集落培养基中回收集落。将集落重悬于100%生长因子减少型基底膜基质中,每24孔超低吸附培养板的每孔中加入150 µL基质,建议每孔重接种最多20–25个集落。
- 将培养板置于细胞培养箱中,在37 °C条件下孵育40分钟,使基底膜基质凝固,然后在凝胶上覆盖500 μL乳腺类器官培养基。
- 几天后检查菌落形成情况,以观察出芽状类器官的形成(图1E).
- 培养10至14天后,传代或处理类器官以进行后续分析。
- 传代类器官培养物时,收集各样本并加入过量(10:1)冰冻HBSS,冰上孵育1小时,以溶解基底膜基质。随后以180 × g离心5分钟,用冰冻HBSS洗涤类器官3次,重悬后备用。
- 在37 °C下用0.05%胰蛋白酶/EDTA孵育类器官10分钟,以获得单细胞悬液。使用p1000枪头将类器官上下吹打10次,确保完全解离至单细胞水平。
- 以单细胞悬液形式重悬于100%生长因子减少型基底膜基质中(每孔24孔超低吸附培养板加入150 μL)。将培养板置于细胞培养孵箱中,37 °C孵育40分钟,使基底膜基质形成凝胶,随后每孔覆盖500 μL乳腺类器官培养基。
注意:yMaSC 类器官可在不进行胰蛋白酶消化的情况下,按照步骤 1.5.13 从 100% 基底膜基质培养中回收后进行冻存。使用添加 10% DMSO 的乳腺类器官培养基进行储存。 - 将yMaSC类器官在-80 °C下快速冷冻,随后保存于液氮中。
- 从乳腺集落培养基中回收原始集落,然后进行解离并重新接种。
2. yDucts 的生成
注意:第2节中所有培养基和溶液的组成均在表2中列出。
- 分离原代胰腺腺泡
- 将解剖镊子和剪刀放入70%乙醇中,并在细胞培养超净台中准备以下试剂:每只小鼠所需的腺泡培养基15 mL、腺泡恢复培养基60 mL、含青霉素-链霉素的磷酸盐缓冲液(PBS/PS);胶原酶I储备液;胶原酶I溶液A,每只小鼠15 mL;中和的大鼠尾部I型胶原溶液。用0.1 N NaOH首先中和溶解胶原所用的乙酸,再用10 N HCl调节pH至7,使大鼠尾部I型胶原达到中性。用PBS/PS稀释至2.5 mg/mL。将大鼠尾部I型胶原及所有相关试剂置于冰上进行中和处理。处死6至9周龄、基因型正确的小鼠。
- 将每只小鼠仰卧放置,用70%乙醇溶液清洗腹部。沿腹壁做纵向切口。找到胰腺(以脾脏为解剖标志),分离后置于含10 mL冰冷PBS/PS的10 cm非细胞黏附培养皿中。立即将培养皿转移至细胞培养超净台内。自此步骤起,所有操作均须在细胞培养超净台中进行。
- 将每个胰腺转移至一个预先加入7 mL胶原酶I溶液A的新型非细胞黏附培养皿中。
- 用一对一次性手术刀迅速将每个胰腺切碎,以获得粒径约为1 mm的均匀组织悬液3 片段
注意:为确保细胞活性最佳,该操作过程应控制在2分钟以内。 - 在 37 °C、5% CO₂ 条件下孵育培养皿以进行胶原酶消化2 在细胞培养孵育箱中孵育10分钟,每3分钟摇动一次,以确保组织消化均匀。
- 将消化后的组织收集到一个50 mL锥形管中(每个胰腺对应一个),用10 mL腺泡细胞洗涤液冲洗培养皿,并将冲洗液加入同一50 mL锥形管中,用移液器轻轻吹打消化组织,吹打次数不超过3次。
- 在18 °C下以100 × g离心消化后的组织5分钟,弃去上清液。
注意:在此步骤中,于18 °C离心细胞,以降低胶原酶活性。 - 将组织沉淀重悬于7 mL胶原酶I溶液A中,并将该溶液转移至新的10 cm非细胞黏附培养皿中。
- 将培养皿在37 °C下再次孵育10分钟以进行第二轮胶原酶消化,操作同步骤2.1.5,每3分钟摇动一次,以确保组织消化均匀。同时,为每个胰腺准备一个洁净的50 mL锥形管,并在管口放置一个100 μm细胞筛网。
- 回收消化后的组织,用无菌10 mL注射器推杆将组织碾压通过100 μm细胞滤筛(注意轻柔下压组织,避免产生平行于滤筛表面的剪切力)。用10 mL腺泡洗涤液冲洗培养皿,并将此10 mL液体通过同一100 μm细胞滤筛。
- 在18 °C下以100 × g离心消化后的组织5分钟,弃去上清液。
- 用10 mL腺泡洗涤培养基重悬组织沉淀。将细胞悬液转移至已含有10 mL新鲜腺泡洗涤培养基的50 mL锥形管中,避免过度吹打以防止沉淀重新悬浮。
- 在18 °C下以100 × g离心消化后的组织5分钟,弃去上清液。
- 将消化后的组织在6 mL腺泡回收培养基中轻轻重悬,平均分装至6孔板中的2个孔,每孔3 mL。在体视显微镜下仔细评估腺泡分离的质量,理想的腺泡分离应呈现为均匀的腺泡簇悬浮液,仅含少量单细胞(参见 图2B);用移液器将溶液中可能存在的大块组织团块(通常肉眼可见)移除。
- 原代胰腺腺泡的接种
- 将消化后的腺泡簇置于细胞培养箱中,在37 °C下孵育2小时,以促进细胞恢复。
- 在细胞复苏过程中,用100 μL中和的鼠尾胶原蛋白I包被48孔多孔板,于37 °C细胞培养孵育箱中孵育1 h,以形成水凝胶缓冲层。
- 细胞复苏2小时后,将腺泡细胞悬液收集至锥形管中,在18 °C、100 x g条件下离心5分钟,弃去上清液。
- 将腺泡重悬于适量的腺泡培养基中(每孔48孔组织培养板加入150 μL)。将每个解离的胰腺接种至16个孔中,以获得最佳密度(每孔100–120个腺泡簇)。
- 将该腺泡悬液与等体积的中和大鼠尾胶原蛋白I溶液混合,保持离心管置于冰上。轻轻混匀后,迅速将细胞悬液接种至2.2.2步骤中所述的胶原蛋白垫上方(每孔48孔多孔组织培养板接种300 μL)。
- 在37 °C细胞培养箱中孵育1小时,使水凝胶形成。
- 胰腺类器官的诱导
- 在胰腺类器官的YAP依赖性诱导过程中,用500 μL含有2 μg/mL多西环素的腺泡细胞培养基覆盖胶原水凝胶 R26-rtTAM2;TetO-YAPS127A 小鼠;阴性对照由 野生型 相同条件下培养的细胞 R26-rtTAM2;TetO-YAPS127A 未添加多西环素培养的细胞
- 在含有 2 μg/mL 多西环素的腺泡细胞培养基中培养腺泡细胞,每 48 小时更换一次培养基(300 μL/孔),持续培养 5 至 7 天,并根据类器官形态变化观察其向形成囊状的导管样结构发育的过程图2C)。一旦类器官形成,可在胰腺类器官培养条件下传代,或收集用于进一步分析(例如RNA提取,免疫荧光
- 胰腺类器官的传代培养
- 为评估其自我更新能力,将克隆性传代的YAP诱导胰腺类器官(yDucts)在三维基底膜基质凝胶中进行培养(胰腺类器官培养条件),且不依赖外源性YAP/TAZ供给。即(与多西环素给药无关)。
- 配制0.05%胰蛋白酶/EDTA;100%生长因子减少型基底膜基质;胰腺类器官培养基和胶原酶I溶液B。
- 为每个待传代的孔准备一个15 mL锥形管,并加入4 mL Collagenase I溶液B。
- 弃去培养基,用轻柔抽吸法小心地从孔中取出水凝胶,并转移至锥形管中。
- 37 °C 下孵育试管 30 分钟,持续剧烈振荡以确保胶原基质完全消化(每 10 分钟检查一次,直至水凝胶完全溶解)。在 750 × g 离心 2 分钟以沉淀回收的细胞,并弃去上清液。
- 将回收的细胞在1 mL 0.05%胰蛋白酶/EDTA中于37 °C孵育10分钟,以获得单细胞悬液。用9 mL 1× PBS稀释胰蛋白酶,750 × g离心2分钟,弃上清。
- 将细胞沉淀重悬于预冷的生长因子减少型基底膜基质中,并接种至超低吸附培养板中(通常每24孔板一孔接种150 μL液滴)。
- 将培养板置于细胞培养箱中,在37 °C条件下孵育40分钟,使基底膜基质水凝胶固化,随后每孔覆盖500 μL胰腺类器官培养基。7–10天后,导管将生长为囊状类器官。图 2D).
- 类器官可进一步传代,将其置于预冷的1×PBS中冰上孵育30分钟,以脱离基底膜基质,随后以180 × g离心5分钟,洗涤3次,并用预冷的1×PBS重悬,以避免基质残留。接着用0.05%胰蛋白酶消化10分钟,获得单细胞悬液,将细胞重新接种于新鲜基底膜基质中,再覆盖胰腺类器官培养基(同2.4.7–2.4.8步骤)。
- yDuct类器官可通过以下步骤在液氮中冻存:自100%基底膜基质中回收,操作参照步骤2.4.9,避免使用胰蛋白酶消化,并将其保存于添加10% DMSO的胰腺类器官培养基中。
- yDuct类器官在-80 °C下快速冷冻,随后保存于液氮中。
结果
yMaSCs的生成
通过瞬时表达YAP对原代乳腺LD细胞进行重编程的实验策略概述如图所示。 图1A. 通过荧光激活细胞分选法纯化原代乳腺LD上皮细胞13. 图1B 代表一种典型的分选流程,以获得三种不同的亚群:基底细胞(EpCAM低CD49f高CD61-),腔内分泌祖细胞(LP细胞)(EpCAM高CD49f低CD61+)以及LD细胞(EpCAM高CD49f低CD61-)。仔细分选这三个亚群对于分离出纯度较高的LD细胞至关重要,这些细胞在接种于乳腺腺体集落形成条件下时已完全分化并完全停止增殖(参见 图1C,左侧面板)。相反,当诱导LD细胞表达外源性YAP时,在5%基底膜基质悬浮培养中,LD细胞开始增殖,形成易于识别的致密上皮样克隆(图1C)。重编程效率在典型实验中约为3%,可通过计数在基底膜基质悬浮培养物中最初接种的单细胞所产生的克隆集落数量来评估。图1D)。随后可将重编程的腔内细胞(yMaSCs)传代至100%基底膜基质类器官培养条件中(参见示意图 图1A),自我组织形成围绕多个腔隙的类器官样复杂结构,即使在无多西环素的情况下也表现出显著的自我更新能力(即 在无转基因 YAP 表达的情况下)(图1E)。从组织学上看,yMaSC来源的类器官呈现基底层(K14阳性),朝向重建的基底膜基质ECM,以及腔面层(K8阳性),朝向类器官内部类似管腔的空腔。图1F)。这种结构与由天然 MaSCs 形成的类器官结构无法区分图1F).
yDucts 的生成
通过瞬时表达 YAP 对原代胰腺腺泡进行重编程的实验策略概览见图2A。通过温和解离结合过滤法的尺寸排阻,将完整的腺泡簇从大量胰腺组织中分离出来。典型的制备结果见图2B。分离后的腺泡细胞簇应呈现为大小均一的外分泌腺泡单位悬浮液,无内分泌胰岛或胰腺导管树碎片污染,且极少解离为单个细胞。若存在内分泌胰岛或导管碎片污染,提示选择性过滤不充分(步骤 2.1.10),可能由于操作过于剧烈所致;腺泡簇过度解离为单细胞则可能由于胶原酶处理过度,或组织释放的蛋白水解酶活性未受缓冲,后者可通过追加 SBTI 处理加以抑制。
一个典型的腺泡细胞重编程实验展示如下 图2C;在含有强力霉素的三维I型胶原水凝胶中培养5-7天后,由胰腺腺泡衍生的 R26-rtTAM2/tetO-YAPS127A 小鼠细胞 readily 转化为导管样簇(我们将其命名为 y导管),由围绕不断扩大的中央腔隙增殖的单层薄上皮细胞构成。重编程效率在典型实验中约为70%,可通过统计类导管样集落数量占接种腺泡总数的比例来轻松测定(图2D)。阴性对照细胞,即 R26-rtTAM2/+ 细胞或 R26-rtTAM2/tetO-YAPS127A 在这些培养条件下,未添加强力霉素的细胞始终会保持为终末分化腺泡样细胞簇,正如先前报道的那样1,14,15重编程的yDucts随后可在单细胞水平传代至基于Matrigel的类器官培养体系中16 (参见示意图) 图2A),即使在无多西环素的情况下也表现出显著的自我更新能力即 在无转基因YAP表达的情况下)(图 2E).
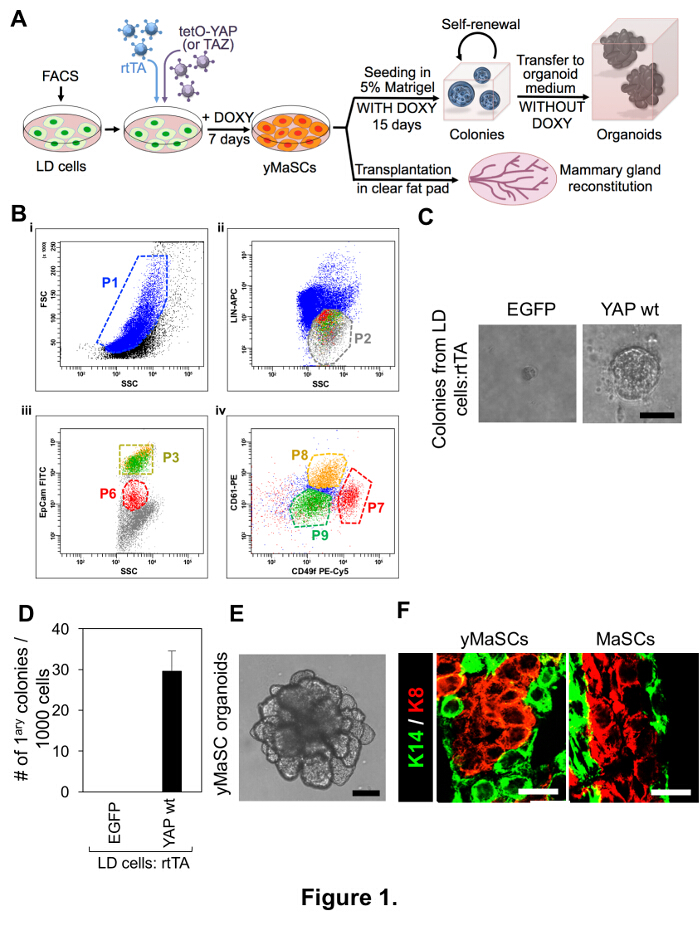
图 1: 初代乳腺 LD 细胞的分离及乳腺干细胞的诱导。(A) 重编程初代乳腺 LD 细胞所采用实验流程的示意图。(B) 典型的 FACS 图谱,展示 LD 细胞纯化的分选过程。i)根据前向散射和侧向散射对解离后的活细胞进行设门(P1;蓝色);ii)对 P1 群体进一步根据其谱系(Lin)表型设门:选择谱系阴性亚群(P2;灰色),排除谱系阳性的造血细胞;iii)P2 群体再根据 EpCAM 表达水平分为 EpCAMhigh(P3;黄色 + 绿色)和 EpCAMlow(P6;红色)两个亚群;iv)P3 和 P6 进一步根据 CD61/CD49f 表型分为三个亚群:EpCAMlowCD49fhighCD61- 基底层细胞(P7;红色)、EpCAMhighCD49flowCD61+ LP 细胞(P8;黄色)和 EpCAMhighCD49flowCD61- LD 细胞(P9;绿色)。(C) 图示为感染指定构建体的 LD 细胞在乳腺集落培养基中接种 15 天后形成乳腺集落的能力。仅表达 YAP 的细胞可转化为集落形成细胞,而阴性对照细胞(感染 EGFP)则保持为生长停滞的单细胞状态。比例尺 = 50 μm。(D) 对(C)中所示细胞的集落形成能力进行定量分析。数据以均值 ± 标准差表示,代表五次独立实验,每次实验设六个技术重复。(E) YAP 重编程后的类乳腺干细胞(yMaSCs)在无多西环素条件下,于新鲜三维 100% 基底膜基质水凝胶中培养 12 天后的代表性图像。比例尺 = 100 μm。(F) 指定细胞来源的类器官在类器官培养条件下培养 12 天后,针对基底细胞标志物 K14(绿色)和腔面细胞标志物 K8(红色)的代表性免疫荧光图像。比例尺 = 10 μm。本图引自 Panciera et al., 20161。 请点击此处查看该图的高清版本。
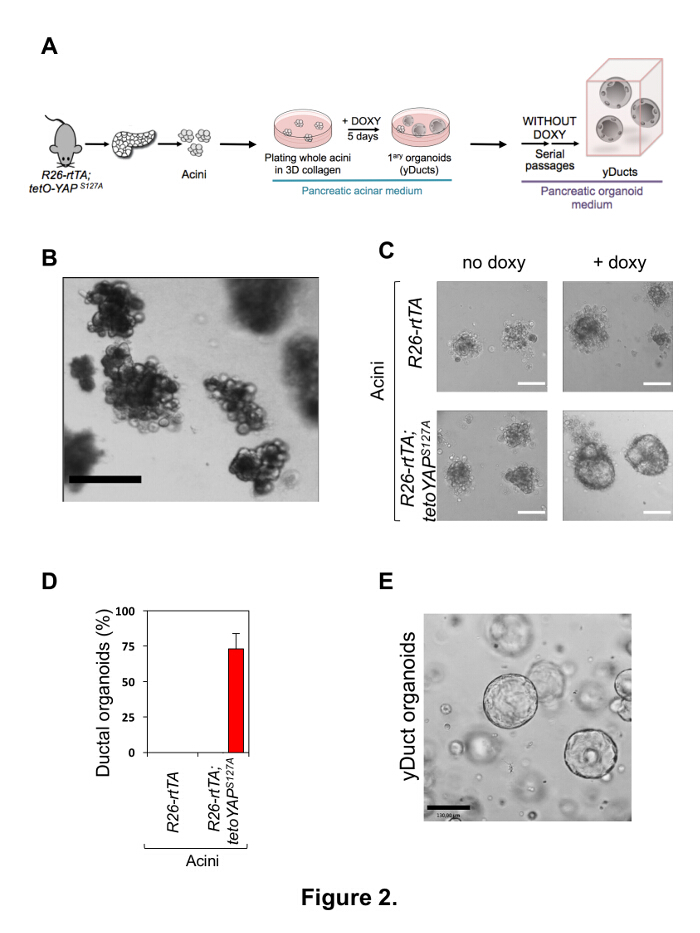
图 2:原代胰腺腺泡细胞的分离及胰腺前体细胞的诱导。(A) 重编程原代胰腺外分泌腺泡细胞所采用实验流程的示意图。(B) 分离操作后(步骤 2.1.14)原代胰腺腺泡的代表性图像。腺泡制备物应呈现为腺泡簇的均一悬浮液,单细胞极少。比例尺 = 400 μm。(C) 来自 R26-rtTAM2(上图)或 R26-rtTAM2; tetO-YAPS127A(下图)小鼠的原代胰腺腺泡在添加或不添加多西环素(doxy)条件下,于三维 I 型胶原基水凝胶中培养 5 天后的代表性图像。仅表达 YAP 的原代腺泡在添加多西环素后转化为呈囊状类器官生长的细胞。比例尺 = 70 μm。(D) 如(C)所示,在转基因 YAP 过表达条件下胰腺腺泡形成导管类器官能力的定量分析。数据以均值 ± 标准差表示,代表五次独立实验结果,每次实验设四个技术重复。(E) YAP 重编程的导管样细胞(yDucts)在无多西环素条件下,于新鲜三维 100% 基底膜基质水凝胶中连续传代三次后的代表性图像。比例尺 = 130 μm。 请点击此处查看该图的放大版本。
| 原代乳腺细胞的分离 | |
| Ca2+ 螯合溶液 | 4 °C 保存 |
| EDTA | 0.02% w/V |
| PBS | |
| Ⅰ型胶原包被溶液 | |
| 乙酸 0.02N,pH 3.23 | |
| 大鼠尾胶原(包被用) | 1:50 |
| Dispase 溶液 | 4 °C 保存 |
| Dispase | 5 mg/mL |
| PBS | |
| 解离培养基 | |
| DMEM:F12 | |
| 透明质酸酶储备液 | 400 U/mL |
| 青霉素/链霉素 | 1x |
| Ⅰ型胶原酶储备液 | 600 U/mL |
| 溶血溶液 | 4 °C 保存 |
| NH4Cl 溶液 | 1 份 |
| TrisBase 20.6 g/L | 9 份 |
| 调 pH 至 7.2 | |
| HBSS/PS | 4 °C 保存 |
| HBSS | |
| 青霉素/链霉素 | 2x |
| 透明质酸酶储备液 | 0.2 µm 滤膜过滤,4 °C 保存 |
| 牛睾丸来源透明质酸酶(粉末) | 2,000 U/mL |
| 磷酸钠缓冲液 1M,pH 7.3 | |
| NH4Cl 溶液 | 室温保存 |
| H2O | |
| NH4Cl | 7.1 g/L |
| 调 pH 至 7.65 | |
| 分选溶液 | 0.2 µm 滤膜过滤,4 °C 保存 |
| BSA | 0.1% |
| EDTA | 1 mM |
| HEPES,pH 7 | 25 mM |
| PBS | |
| 洗涤培养基 #1 | |
| DMEM/F12 | |
| 青霉素/链霉素 | 1x |
| 洗涤培养基 #2 | |
| DMEM/F12 | |
| FBS | 5% |
| 青霉素/链霉素 | 1x |
| 乳腺二维培养培养基 | |
| DMEM/F12 | |
| FBS | 2% |
| 肝素 | 4 mg/mL |
| L-谷氨酰胺 | 1x |
| 小鼠 bFGF | 10 ng/mL |
| 小鼠 EGF | 10 ng/mL |
| 青霉素/链霉素 | 1x |
| yMaSCs 的诱导与传代 | |
| 乳腺克隆形成培养基 | |
| DMEM:F12 | |
| FBS | 5% |
| 肝素 | 4 µg/mL |
| L-谷氨酰胺 | 1x |
| Matrigel(接种前立即加入) | 5% |
| 小鼠 bFGF | 20 ng/mL |
| 小鼠 EGF | 10 ng/mL |
| 青霉素/链霉素 | 1x |
| 乳腺类器官培养基 | |
| Advanced DMEM:F12 | |
| B27 | 1x |
| GlutaMax | 1x |
| 肝素 | 4 µg/mL |
| Hepes | 1x |
| 人 Noggin | 100 ng/mL |
| 小鼠 bEGF | 20 ng/mL |
| 小鼠 EGF | 50 ng/mL |
| R-Spondin 1 | 1 µg/mL |
表1:yMaSCs的生成。 分离原代乳腺LD细胞及诱导yMaSCs(第1节)所需的所有不同培养基和溶液的组成
| 原代胰腺腺泡的分离 | |
| 腺泡培养基 | |
| BPE | 50 µg/mL |
| BSA | 0.1% |
| Dexamethasone | 1 µg/mL |
| FBS | 0.1% |
| ITS-X | 1x |
| Pen/Strep | 1x |
| SBTI | 0.2 mg/mL |
| Waymouth’s Medium | |
| 腺泡洗涤液 | |
| BSA | 0.1% |
| Pen/Strep | 1x |
| RPMI Medium | |
| SBTI | 0.2 mg/mL |
| 腺泡回收液 | |
| 腺泡培养基 | |
| FBS | 30% |
| 胶原酶 I 溶液 A | |
| 腺泡洗涤液 | |
| 胶原酶 I 储存液 | 360 U/mL |
| PBS/PS | 4 °C 保存 |
| PBS (Phosphate-buffered saline) | |
| Pen/Strep | 1x |
| 胶原酶 I 储存液 | -20 °C 保存 |
| 胶原酶 I 型(粉末) | 6,000 U/mL |
| PBS | |
| 胰腺类器官传代 | |
| 胶原酶 I 溶液 B | |
| PBS 1x | |
| 胶原酶 I 储存液 | 240 U/mL |
| 胰腺类器官培养基 | |
| Advanced DMEM/F12 | |
| B27 | 1x |
| 胃泌素 | 10 nM |
| 人 FGF10 | 100 ng/mL |
| 人 Noggin | 100 ng/mL |
| 小鼠 EGF | 50 ng/ml |
| N-乙酰半胱氨酸 | 1.25 mM |
| 烟酰胺 | 10 mM |
| Pen/Strep | 1x |
| R-Spondin 1 | 1 mg/mL |
| SBTI | 0.2 mg/mL |
表2:yDucts的生成。 分离原代腺泡细胞以及诱导和传代yDucts(第2节)所需的所有不同培养基和溶液的组成
讨论
在此,我们介绍重编程的实验方案 离体 通过瞬时表达YAP,将不同组织的终末分化上皮细胞重编程为相应的组织特异性前体细胞(或ySCs),如先前报道所述1我们详细描述了两种实验流程:一种是通过慢病毒载体对经FACS纯化的细胞进行重编程,另一种则避免了病毒感染,利用转基因YAP表达实现重编程。每种方案均提供了一种高效的方法,用于分离和培养原代分化细胞,并通过在分化细胞中强制表达外源YAP基因,从而生成 从头合成 体细胞组织特异性可扩增干细胞(见示意图) 图1A 和 2A).
我们证明了此处展示的分离策略能够有效分离出纯的已分化细胞群体,这一点由阴性对照样本中从未检测到任何细胞生长所证实(图1C 和 图2C)。
本研究中用于重编程原代乳腺导管(LD)细胞的慢病毒载体具有多西环素诱导性,可实现对转基因表达的严格控制;这使得外源性YAP表达能够按需开启和关闭。应特别注意避免使用过高的病毒滴度,因为这可能对重编程效率产生不利影响。对于原代腺泡细胞,我们采用了一种完全转基因的方法,以最少的操作实现YAP依赖性的重编程。后一种策略也特别适用于原代胰腺腺泡,因为分离得到的腺泡簇极难被慢病毒感染且非常脆弱。所采用的转基因策略与多西环素诱导型慢病毒载体一样,具有严格调控基因表达的优势。此外,利用原代胰腺腺泡所实施的转基因策略相比病毒诱导的乳腺LD细胞重编程,还具有更高的重编程效率。除了来源于不同组织的细胞本身固有的可塑性差异外,胰腺细胞更高的重编程率可能源于所有外植细胞中YAP表达的均匀性和自主性所带来的更高表达效率。值得注意的是,我们已证明在ySCs(yMaSC克隆和yDucts)生成后,不再需要外源性YAP,且其自我更新能力不受影响。这是因为当外源性YAP关闭后,ySCs会重新激活内源性YAP/TAZ,并利用它们维持自我更新1。
我们通过遗传谱系示踪验证来控制重编程实验的细胞来源,证实了酵母干细胞(ySCs)确实起源于已分化细胞的观点1。
全面表征 ySCs 的结果表明,YAP 诱导的重编程可生成正常的体细胞干细胞1 在转录组水平上,ySCs 与天然 SCs 表现出广泛的重叠;ySCs 具有分化潜能,能够产生多谱系后代,但始终局限于其来源组织的身份特征;ySCs 在移植后未发生转化,且无致瘤性 体内.
本文还描述了在100%基底膜基质水凝胶中以类器官形式培养并扩增yMaSCs和yDucts的实验步骤。该培养条件可支持ySCs自组织形成三维类器官,长期维持其干性特征,从而可根据需要扩增这些干细胞群体,用于后续分析与应用。原因尚不明确,但我们在多西环素处理塑料培养皿中的LD细胞7天后,尝试将感染的细胞直接转入类器官培养条件时,未能成功获得yMaSC类器官;换言之,乳腺集落培养的中间扩增步骤至关重要。据我们经验,即便是原代MaSCs,在传代至类器官培养前也需经过乳腺集落培养阶段。此外,最高效的类器官出芽生长效果是在避免将原代集落消化为单细胞、而是直接将完整集落转移至类器官培养条件下实现的。
类器官培养条件的另一个优势在于,只要将类器官从基质中回收,即可在避免细胞解离的情况下,将其在液氮中冻存,从而实现精原干细胞(ySCs)的冷冻保存。
YAP重编程方法可将来源于不同成体组织的多种已分化细胞类型转化为相应的组织特异性干细胞(我们已利用乳腺细胞、胰腺细胞和神经元细胞进行了验证)1与诱导多能干细胞(iPSCs)或其他重编程方法不同,YAP/诱导型干细胞(induced SCs)能够保留其来源组织的记忆。值得注意的是,体细胞去分化为具有干细胞样特性的细胞,是体内唯一观察到的细胞命运可塑性和重编程形式,例如在组织损伤后支持伤口愈合过程中即可见到此类现象。5,17,18,19,20值得注意的是,YAP 和 TAZ 在正常稳态中大多是非必需的,但在多种组织的组织修复过程中至关重要。11,21与本文所述重编程步骤的生理功能一致,最近研究发现,在模拟溃疡性结肠炎患者的鼠类模型中,YAP/TAZ 对肠道再生至关重要,其作用是促使成年肠细胞转化为具有胎儿肠道特征的修复性上皮组织19因此,YAP重编程通过提供一种生成体细胞干细胞的方法,拓展了现有的诱导细胞可塑性策略,而这种状态迄今为止一直难以捕获。 体外这一方法若推广至人源细胞,可能在再生医学应用、体细胞干性状态研究以及体细胞干细胞扩增等方面具有广泛意义 体外.
披露
作者声明不存在竞争性财务利益。
致谢
我们感谢 F. Camargo 惠赠 tetO-YAPS127A 小鼠;R26-rtTAM2 小鼠(品系编号 #006965)购自杰克逊实验室(The Jackson Laboratory)。我们感谢 Chiara Frasson 和 Giuseppe Basso 在 FACS 实验操作方面的帮助。本工作由意大利癌症研究协会(AIRC)“分子临床肿瘤学‘5 per mille’”特别项目和授予 S.P. 的 AIRC 项目负责人资助(PI-Grant),以及由意大利国家研究委员会(CNR)与意大利教育大学与研究部(Miur)资助的表观遗传学旗舰项目(Epigenetics Flagship project CNR-Miur)共同支持。本项目还获得了欧洲研究理事会(ERC)在欧盟“地平线2020”研究与创新计划(European Union's Horizon 2020 research and innovation programme)下的资助(资助协议 DENOVOSTEM No. 670126)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 无菌注射器 | Rays | 10LC | |
| 100 mm 细胞筛 | Corning | 352360 | |
| 15 mL 无菌锥形离心管 | Corning | 430052 | |
| 24 孔超低吸附培养板 | Costar | 3473 | |
| 40 mm 细胞筛 | Corning | 352340 | |
| 48 孔多孔培养板 | Corning | 353078 | |
| 50 mL 无菌锥形离心管 | Corning | 430290 | |
| 6 孔多孔培养板 | Corning | 353046 | |
| Advanced DMEM/F12 | Gibco | 12634028 | |
| B27 添加剂(50 倍浓缩) | Gibco | 17504001 | |
| BPE | Gibco | 13028014 | |
| BSA | Sigma | A9418 | |
| 胶原酶 I 型 | Sigma | 17018029 | |
| 地塞米松 | Sigma | D4902 | |
| Dispase | Gibco | 1705-041 | |
| 一次性手术刀片 | Swann-Morton | 0503 | |
| DMEM/F12 | Gibco | 11320033 | |
| DMSO | Sigma | D2650 | |
| DnaseI | Roche | 11284932001 | |
| 盐酸多西环素 | Sigma | D9891 | |
| EDTA | Sigma | E5134 | |
| 100% 乙醇 | Sigma | 51976 | |
| FACS 管(带滤帽) | Falcon | 352235 | |
| FBS | Gibco | 10270106 | |
| FITC 抗小鼠 CD326(Ep-CAM) | BioLegend | 118208 | |
| FUdeltaGW-rtTA | Addgene | #19780 | |
| FUW-tetO-EGFP | Addgene | #84041 | 用作阴性对照 |
| FUW-tetO-MCS | Addgene | #84008 | 用作阴性对照 |
| FUW-tetO-wtYAP | Addgene | #84009 | |
| FUW-tetO-YAPS94A | Addgene | #84010 | 用作阴性对照(转录失活的 YAP 突变体) |
| GlutaMax | Gibco | 35050061 | |
| HBSS | Gibco | 24020117 | |
| HCl | Sigma | 30721 | |
| 肝素钠盐 | Sigma | H3149 | |
| HEPES 缓冲液(1 M) | Gibco | 15630-056 | |
| 人 R-Spondin1(His 标签) | Sino Biological | 11083-H08H-5 | |
| 牛睾丸透明质酸酶 | Sigma | H3506 | |
| ITS-X | Gibco | 51500056 | |
| K-14 抗体 | Life Technologies | Ab7800 | |
| K-8 抗体 | Life Technologies | Ab14053 | |
| L-谷氨酰胺 | Gibco | 25030081 | |
| Lin(别藻蓝蛋白 [APC] 小鼠谱系抗体混合物) | BD Biosciences | 51-9003632 | |
| Matrigel® 生长因子减少型基底膜基质,无酚红 | Corning | 356231 | |
| N-乙酰半胱氨酸 | Sigma | A9165 | |
| NaOH | J.T.Baker | 0402 | |
| NH4Cl | Sigma | A9434 | |
| 烟酰胺 | Sigma | 72340 | |
| 非细胞黏附 10 cm 培养皿(无菌聚苯乙烯培养皿 ø 94) | ROLL | 18248 | |
| PBS 10 倍浓缩液 | Euroclone | ECM4004XL | |
| PE 仓鼠抗小鼠 CD61 | BD Biosciences | 553347 | |
| PE-Cy5 大鼠抗人 CD49f | BD Biosciences | 551129 | |
| PE/Cy7 抗小鼠/大鼠 CD29 抗体 | BioLegend | 102222 | |
| 青霉素-链霉素(10,000 U/mL) | Gibco | 15140122 | |
| 大鼠尾胶原 I 型(包被用) | Sigma | 122-20 | |
| 用于三维培养的大鼠尾胶原 I 型 | Cultrex | 3447-020-01 | |
| 重组人 FGF10 | Peprotech | 100-26 | |
| 重组人 Noggin | Peprotech | 120-10C | |
| 重组小鼠 EGF | Peprotech | 315-09 | |
| 重组小鼠碱性成纤维细胞生长因子(bFGF) | Peprotech | 450-33 | |
| RPMI 1640 培养基 | Gibco | 31870025 | |
| SBTI(大豆胰蛋白酶抑制剂) | Sigma | T6522 | |
| Tris BASE | Roche | 11814273001 | |
| 0.05% 胰蛋白酶-EDTA | Gibco | 25300054 | |
| Waymouth 培养基 | Gibco | 31220023 |
参考文献
- Panciera, T. Induction of Expandable Tissue-Specific Stem/Progenitor Cells through Transient Expression of YAP/TAZ. Cell Stem Cell. 19 (6), 725-737 (2016).
- Bar-Nur, O. Lineage conversion induced by pluripotency factors involves transient passage through an iPSC stage. Nat Biotechnol. 33 (7), 761-768 (2015).
- Xu, J., Du, Y., Deng, H. Direct lineage reprogramming: strategies, mechanisms, and applications. Cell Stem Cell. 16 (2), 119-134 (2015).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Blanpain, C., Fuchs, E. Stem cell plasticity. Plasticity of epithelial stem cells in tissue regeneration. Science. 344 (6189), 1242281(2014).
- Bai, H. Yes-associated protein regulates the hepatic response after bile duct ligation. Hepatology. 56 (3), 1097-1107 (2012).
- Cai, J. The Hippo signaling pathway restricts the oncogenic potential of an intestinal regeneration program. Genes Dev. 24 (21), 2383-2388 (2010).
- Elbediwy, A. Integrin signalling regulates YAP and TAZ to control skin homeostasis. Development. 143 (10), 1674-1687 (2016).
- Taniguchi, K. A gp130-Src-YAP module links inflammation to epithelial regeneration. Nature. 519 (7541), 57-62 (2015).
- Zhang, W. Downstream of mutant KRAS, the transcription regulator YAP is essential for neoplastic progression to pancreatic ductal adenocarcinoma. Sci Signal. 7 (324), ra42(2014).
- Zanconato, F., Cordenonsi, M., Piccolo, S. YAP/TAZ at the Roots of Cancer. Cancer Cell. 29 (6), 783-803 (2016).
- Azzolin, L. YAP/TAZ incorporation in the beta-catenin destruction complex orchestrates the Wnt response. Cell. 158 (1), 157-170 (2014).
- Stingl, J. Purification and unique properties of mammary epithelial stem cells. Nature. 439 (7079), 993-997 (2006).
- Means, A. L. Pancreatic epithelial plasticity mediated by acinar cell transdifferentiation and generation of nestin-positive intermediates. Development. 132 (16), 3767-3776 (2005).
- Shi, G. Maintenance of acinar cell organization is critical to preventing Kras-induced acinar-ductal metaplasia. Oncogene. 32 (15), 1950-1958 (2013).
- Huch, M. Unlimited in vitro expansion of adult bi-potent pancreas progenitors through the Lgr5/R-spondin axis. EMBO J. 32, 2708-2721 (2013).
- Fernandez Vallone, V. Trop2 marks transient gastric fetal epithelium and adult regenerating cells after epithelial damage. Development. 143 (9), 1452-1463 (2016).
- Yanger, K. Robust cellular reprogramming occurs spontaneously during liver regeneration. Genes Dev. 27 (7), 719-724 (2013).
- Yui, S. YAP/TAZ-Dependent Reprogramming of Colonic Epithelium Links ECM Remodeling to Tissue Regeneration. Cell Stem Cell. , (2017).
- Pan, F. C. Spatiotemporal patterns of multipotentiality in Ptf1a-expressing cells during pancreas organogenesis and injury-induced facultative restoration. Development. 140 (4), 751-764 (2013).
- Panciera, T., Azzolin, L., Cordenonsi, M., Piccolo, S. Mechanobiology of YAP and TAZ in physiology and disease. Nat Rev Mol Cell Biol. 18 (12), 758-770 (2017).
- Lentiviral production and infection. , http://www.bio.unipd.it/piccolo/protocols/YAP_reprogramming_protocols.pdf (2016).
重印与许可
