本文介绍了一种制备家蝇羧酸酯酶蛋白的实验方案 体外 利用杆状病毒介导的昆虫细胞表达系统表达相关基因,并通过基于细胞的 MTT 实验对这些基因在代谢氯菊酯中的功能作用进行表征,从而阐明其介导拟除虫菊酯抗性的机制 体外 代谢研究
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
羧酸酯酶介导的代谢被认为在多种昆虫的杀虫剂抗性中发挥重要作用。在抗性家蝇品系中,多个羧酸酯酶基因被发现上调表达,但其在赋予杀虫剂抗性中的具体作用仍有待探究。本文设计了一套用于羧酸酯酶功能表征的实验方案,展示了三个示例实验:(1)通过杆状病毒介导的昆虫细胞系统表达并分离羧酸酯酶蛋白;(2)利用荧光底物测定法分析羧酸酯酶的酶活性;(3)通过RNA干扰技术在活体中抑制目标羧酸酯酶基因的表达,进而评估其对杀虫剂敏感性的影响。该综合方法有助于阐明特定羧酸酯酶在杀虫剂代谢与抗性机制中的功能角色。 羧酸酯酶,杀虫剂抗性,杆状病毒表达系统,酶活性测定,RNA干扰,家蝇 草地贪夜蛾 (Sf9)细胞表达系统;(2)基于细胞的MTT(3-[4,5-二甲基噻唑-2-基]-2,5-二苯基四氮唑溴化物)细胞毒性检测法,用于评估昆虫细胞对不同氯菊酯处理的耐受性;以及(3) 体外 代谢研究旨在探索羧酸酯酶对氯氰菊酯的代谢能力。从抗性家蝇品系ALHF中克隆了羧酸酯酶基因MdαE7,并用于构建重组杆状病毒以感染Sf9细胞。采用MTT法检测不同氯氰菊酯处理下细胞的存活率。实验组(感染MdαE7重组杆状病毒的细胞)相较于对照组(感染CAT重组杆状病毒的细胞和感染GFP重组杆状病毒的细胞)在氯氰菊酯处理下表现出更强的细胞耐受性,表明MdαE7具有代谢杀虫剂的能力,从而保护细胞免受化学损伤。此外,还在昆虫Sf9细胞中表达并分离羧酸酯酶蛋白,以开展进一步的实验 体外 代谢研究。我们的结果表明具有显著性 体外 MdαE7对氯菊酯的代谢效率,直接表明羧酸酯酶参与了杀虫剂的代谢,从而赋予家蝇对杀虫剂的抗性。
引言
杀虫剂抗性目前是全球家蝇防控面临的主要问题之一1,2。阐明杀虫剂抗性机制的研究有助于更深入理解这一问题,从而提出新的策略,有效预防或最大限度地减缓抗性扩散3。羧酸酯酶作为主要的解毒酶之一,因其在多种昆虫中对杀虫剂的结合与代谢作用而受到广泛关注4,5,6。我们先前的研究已在家蝇中鉴定出多种羧酸酯酶,其表达水平不仅在抗性品系ALHF中组成型上调,还可因氯菊酯处理而进一步诱导升高7。然而,这些羧酸酯酶基因在杀虫剂代谢中的功能特性仍有待深入研究。
自20世纪80年代初首次报道以来8由于其高效的蛋白质表达能力和真核生物蛋白质加工特性,杆状病毒介导的外源基因表达系统已被广泛应用9该二元系统由两个关键组分构成:一是携带外源基因并将其导入宿主细胞的重组杆状病毒,二是被重组杆状病毒感染的细胞对目标蛋白进行的大规模表达。在过去数十年中,杆状病毒介导的细胞表达系统已被广泛用于在昆虫细胞和哺乳动物细胞中表达数千种重组蛋白,涵盖从胞质酶到膜结合蛋白等多种类型。10我们之前的研究已利用该系统在昆虫Sf9细胞中成功表达了多种CYP450酶11在本研究中,我们构建了羧酸酯酶重组杆状病毒以感染昆虫Sf9细胞,探究了细胞对不同氯氰菊酯处理的耐受性,并实现了羧酸酯酶蛋白的大规模表达 体外 用于功能探索。不同于以往研究中采用昆虫匀浆中多种羧酸酯酶同工酶混合物的方法12,13该杆状病毒介导的昆虫细胞表达系统可实现目标蛋白的特异性表达与分离,从而更深入地表征其生物化学与结构特性。
基于四唑盐的比色法(MTT法)是一种为检测细胞活力而开发并优化的高通量比色方法。该方法的原理是只有活细胞才能将黄色的MTT试剂代谢为深紫色的甲臜沉淀物,后者经有机溶剂溶解后可通过比色法进行分析14,15。近年来,已开发出若干更为精确但耗时较长的方法,如台盼蓝排斥法和胸苷掺入法16,17。然而,基于细胞的MTT法目前仍被公认为是快速检测细胞活力最快且操作最简便的方法。本文中,我们采用MTT法来探究细胞对杀虫剂处理的耐受性。当细胞感染表达羧酸酯酶的重组杆状病毒后,其耐受性显著增强,这有力地支持了羧酸酯酶在杀虫剂代谢中的作用,也进一步提示其参与了杀虫剂抗性的形成。
此外,一个 体外 本研究还进行了代谢活性检测。与使用α-萘乙酸酯(α-NA)和β-萘乙酸酯(β-NA)等常见底物来反映羧酸酯酶水解活性的一般羧酸酯酶检测方法相比,该方法 体外 代谢研究被认为是直接测定羧酸酯酶对杀虫剂活性的准确方法18该方法已成功应用于多种昆虫,用于鉴定与杀虫剂抗性相关的多种细胞色素P45011,19,20然而,该方法尚未应用于羧酸酯酶的研究。随着杆状病毒表达系统生产的羧酸酯酶蛋白的获得,我们可以开展一项 体外 羧酸酯酶对氯氰菊酯的代谢研究,可为进一步阐明羧酸酯酶在家蝇拟除虫菊酯抗性中的作用提供有力证据。
访问受限。请登录或开始试用以查看此内容。
方案
1. 利用杆状病毒介导的昆虫细胞表达系统表达与分离目标蛋白
- 从家蝇中扩增目标蛋白的平末端PCR产物并进行定向克隆。
- 根据绿色荧光蛋白(GFP)和家蝇 MdαE7 基因的序列以及所选载体的特殊要求,设计 PCR 引物表1).
- 使用耐热的、具有校对功能的DNA聚合酶以及步骤1.1.1中的引物进行扩增 150 µL PCR 反应(30 µL 反应缓冲液 3 µL 10 mM dNTPs, 1.5 µL DNA聚合酶 6 µL 家蝇模板DNA 7.5 µL 上游引物 7.5 µL 反向引物,加水至终体积 150 µL)。将PCR反应加热至 98 °C 30秒,随后进行35个循环的 98 °C 10秒, 53 °C 30 秒,以及 72 °C 60 秒,随后进行最终延伸扩增 72 °C 2 分钟。
- 使用1%琼脂糖凝胶电泳 150 µL PCR产物
- 用锋利且洁净的手术刀从琼脂糖凝胶中切下目标DNA片段:MdαE7为1317 bp,GFP为858 bp。使用 commercially available gel extraction kit 按照制造商说明书纯化DNA材料清单)。将纯化的 DNA 溶解于 15 µL 蒸馏水。
- 使用1%琼脂糖凝胶电泳 1 µL 使用纯化的 DNA 检查其完整性。另取一份 1 µL 使用分光光度计测定纯化DNA的浓度。
- 构建目标蛋白的入门质粒
- 设置克隆反应。混合步骤 1.1.3 中新近纯化的 DNA 产物与市售的含有入门载体的组分 attL-位点(材料表) 按 1:1 的摩尔比(0.5-2 µL 新鲜PCR产物,每份70-200 ngµL 浓度: 0.5 µL 载体)。然后加入 1 µL 市售盐溶液(1.2 M NaCl)2 和 0.06 M MgCl2)并加水至终体积 6 µL轻柔混匀,室温孵育1小时。
- 转移 4 µL 将步骤1.2.1中的克隆反应产物插入 50 µL 化学感受态的 E. coli 细胞。冰上孵育30 min。将细胞在42°C水浴中热激30 s。 42 °C 水浴,不振荡。
- 将试管放回冰上再冷却 2 分钟。加入 250 µL 室温下的S.O.C.培养基(2% 胰蛋白胨;0.5% 酵母提取物;10 mM NaCl;2.5 mM KCl;10 mM MgCl₂)2;10 mM MgSO₄4;20 mM 葡萄糖)。在 37 °C 轻轻振荡孵育1小时。
- 铺板 50-200 µL 步骤1.2.3中细菌培养物在选择性LB平板(1 g胰蛋白胨;1 g NaCl;0.5 g酵母提取物;1.5 g琼脂溶于100 mL蒸馏水中,高压灭菌后加入终浓度0.1%的50 mg/mL卡那霉素)上的培养,于37 °C孵育16小时 37 °C 用于菌落生长。
- 挑取5-10个菌落,分别重悬于 5 µL 蒸馏水。
- 进行PCR,通过添加 5 µL 反应缓冲液 0.5 µL 10 mM dNTPs 0.25 µL DNA聚合酶 1 µL 悬浮的菌落 1.25 µL 的 10 µM M13 正向引物, 1.25 µL 的 10 µM 目的基因的反向引物,以及加水至终体积 25 µL. 将PCR反应加热至 98 °C 30秒,随后进行35个循环的 98° C 10秒, 53 °C 30秒,以及 72 °C 60 秒,然后进行最终延伸 72 °C 2 分钟(表1).
- 重新培养 3 µL 来自步骤1.2.5的悬浮集落,置于TB培养基中(含0.17 M KH₂PO₄的磷酸盐缓冲液100 mL)2PO4 和 0.72 M K2HPO4 加入450 mL基础肉汤培养基(含6 g胰蛋白胨、12 g酵母提取物和2 mL甘油),灭菌后加入终浓度为0.1%的50 mg/mL卡那霉素,培养16小时。按照试剂盒说明书提取高纯度质粒DNA。
- 使用 200 ng/µL 步骤1.2.7中获得的超纯质粒用于商业Sanger测序,引物为M13正向和反向引物。根据制造商提供的序列图谱验证目的基因在载体中的正确插入。
- 将经序列验证的超纯质粒DNA样品 MdαE7 和 GFP 储存于 -20 °C.
注:这些是 MdαE7 和 GFP 的入门质粒 DNA。
- 通过进行λ重组(LR)反应构建重组杆状病毒。
- 分别混合 1 µL 300 ng/µL 第1.2.7步获得的GFP、MdαE7入门质粒DNA,或细胞转染试剂盒提供的氯霉素乙酰转移酶基因(CAT)入门质粒DNA 5 µL 市售的(包含 attL 位点)C 端线性 DNA(含有 attR 位点)在 250 µL PCR管。加入TE缓冲液,使总体积达到 8 µL.
注:以GFP和CAT的反应作为对照组。 - 添加 2 µL 市售的Lambda重组(LR)酶混合物材料清单) 加入步骤 1.3.1 的每种混合物中,以催化 LR 反应。轻轻混匀,并在 25 °C 过夜(约16小时)。
注意:LR 反应可促进一个入门载体中的 DNA 片段与一个目标载体之间的重组 att含 L 的入门质粒 DNA 与一个 att含R的C端线性DNA,以生成一个 att含B蛋白的表达病毒。此步骤用于制备每种目标蛋白的重组杆状病毒。 - 稀释 1 µL 步骤1.3.2中LR反应产物的20倍量。使用多角体蛋白正向引物和V5反向引物进行PCR扩增(表1)。使用 5 µL PCR产物进行1%琼脂糖凝胶电泳以检测其质量。 图1 展示了来自 MdαE7 基因的 LR 反应产物示例。
- 分别混合 1 µL 300 ng/µL 第1.2.7步获得的GFP、MdαE7入门质粒DNA,或细胞转染试剂盒提供的氯霉素乙酰转移酶基因(CAT)入门质粒DNA 5 µL 市售的(包含 attL 位点)C 端线性 DNA(含有 attR 位点)在 250 µL PCR管。加入TE缓冲液,使总体积达到 8 µL.
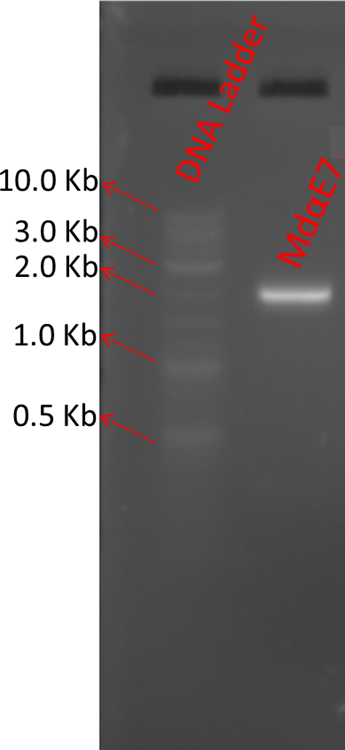
图 1:通过 PCR 分析检测 MdαE7 LR 反应的示例结果。将 2 µL LR 反应产物稀释 200 倍,取 2 µL 稀释液,加入多角体蛋白正向引物和 V5 反向引物,进行 25 µL 的 PCR 扩增。取 5 µL PCR 产物在 1% 琼脂糖凝胶上电泳,以检测 LR 反应的质量。a
- 转染昆虫 Sf9 细胞
- 在 T25 培养瓶中加入 5 mL 完全细胞培养基(无血清培养基含 10% 胎牛血清(FBS)),于 27 °C 培养昆虫 Sf9 细胞。
- 吸除上清液,用 3 mL 新鲜完全细胞培养基冲洗贴壁细胞,取 0.5 mL 重悬细胞转移至新的 T25 培养瓶中,再加入 4.5 mL 完全生长培养基。于 27 °C 培养 3–4 天,直至下一次传代。
- 将 2 mL 对数生长期的昆虫 Sf9 细胞培养液(约 3.0–5.0×10⁶ 个细胞)均匀接种于细胞培养孔中。在超净台内室温孵育至少 3 小时,使细胞贴壁。
- 在倒置相差显微镜下以 250 倍观察细胞贴壁情况。吸除细胞培养基,更换为 2 mL Grace’s 昆虫培养基。
- 分别在 1.5 mL 离心管中配制转染混合液 A(8 µL 商业化细胞感染试剂(材料表)与 100 µL Grace’s 昆虫培养基)和转染混合液 B(9 µL 步骤 1.3 的 LR 反应产物与 100 µL 未添加补充物的 Grace’s 昆虫培养基)。
- 轻轻敲击离心管使混合液 A 与 B 充分混匀。室温下在超净台内孵育 35 分钟。
- 将步骤 1.4.6 所得混合液逐滴均匀加入步骤 1.4.4 接种的细胞中。用封口膜密封各孔,于 27 °C 过夜孵育。
- 将每孔中的 2 mL Grace’s 昆虫培养基更换为 2 mL 完全生长培养基。向每孔中加入 100 µM 更昔洛韦,以负筛选非重组杆状病毒。密封各孔,于 27 °C 培养 72 小时。
- 收集各孔感染后 72 小时的细胞培养上清液,转移至 1.5 mL 离心管中。在 4 °C 下以 1,500 × g 离心 5 分钟,去除细胞或大颗粒碎片。
- 将上清液转移至新的 1.5 mL 离心管中。置于 4 °C 避光保存。
注:这些即为各目标基因的 P1 病毒原液。 - 将低滴度 P1 病毒原液(1×10⁵–1×10⁶ pfu/mL)扩增至高滴度 P2 病毒原液(5×10⁷–1×10⁸ pfu/mL)。
- 将 2 mL 对数生长期的昆虫 Sf9 细胞培养液(约 3.0–5.0×10⁶ 个细胞)均匀接种于细胞培养孔中。在超净台内室温孵育至少 3 小时,使细胞贴壁。
- 分别向步骤 1.4.12 接种细胞的孔中加入 5 µL 步骤 1.4.10 所得 P1 病毒原液。随后向每孔中加入 100 µM 更昔洛韦。密封各孔,于 27 °C 培养 72 小时。
- 收集感染后 72 小时的 P2 病毒原液。置于 4 °C 避光保存。
注:这些即为各目标基因的 P2 病毒原液。 - (可选)使用 5 µL P2 病毒原液重复步骤 1.4.12–1.4.14,以收集 P3 病毒原液。
注:这些即为各目标基因的 P3 病毒原液。 - 将构建的所有杆状病毒置于 4 °C 避光保存。
注:GFP 和 CAT 基因作为对照组。图 2 显示了 GFP 重组杆状病毒感染细胞在不同扩增阶段的细胞表型变化。

图 2:Sf9 细胞在不同杆状病毒扩增阶段感染迹象的示例。 该图显示了在自然光和荧光下表达 GFP 重组杆状病毒的细胞。在 P1 感染阶段,感染率较低;在 P2 感染阶段,感染率显著提高;在 P3 感染阶段,几乎所有细胞均表现出从细胞培养板脱离、细胞直径增大以及细胞生长停止等症状。请点击此处查看该图的高清版本。
- 在昆虫Sf9细胞中大规模表达目标蛋白
- 在T25未处理培养瓶中,用完全培养基培养10 mL处于对数生长期的昆虫Sf9细胞。
- 向步骤1.5.1中的细胞培养物中加入200 µL P2病毒储备液(来自步骤1.4.14),感染72小时。
- 收集感染后72小时的细胞培养上清液,在4 °C下以1,500 × g离心5分钟。
- 弃去上清液,用1 mL 0.1 M PBS缓冲液(pH 7.5)将细胞沉淀洗涤两次。
- 用1 mL昆虫细胞蛋白提取与裂解缓冲液(材料表)充分溶解细胞沉淀,在细胞裂解液中加入10%甘油,立即置于-80 °C保存。
- 使用CAT蛋白的P2病毒储备液重复步骤1.5.1–1.5.5,作为对照组。
注意:不同蛋白制备实验中,需将步骤1.5重复三次。
2. 基于细胞的 MTT 细胞毒性检测
- 培养5 mL对数生长期细胞(1.5-2.5×10⁶ 细胞/mL)昆虫Sf9细胞,加入完全培养基,置于T25未处理培养瓶中。
- 添加 25 µL 将P1病毒储备液(步骤1.4.14中获得)用于步骤2.1中感染细胞培养物,27 ˚C下轻柔振荡孵育48 h。
- 配制100 mM的氯菊酯标准储备液于乙腈中。使用乙腈稀释至50 mM、25 mM、12.5 mM和6.25 mM 500 µL, 250 µL, 125 µL 和 62.5 µL 氯菊酯储备液,总体积为 1,000 µL分别。
- 均匀接种 200 µL 来自步骤2.2的补充感染细胞培养物 300 µL 将完全生长培养基加入24孔板,接种密度为2×10⁵5 cells/mL
- 添加 4 µL 将氯菊酯标准溶液(6.25 mM、12.5 mM、25 mM 和 50 mM)加入各孔,使终浓度为 50 µM, 100 µM, 200 µM 和 400 µM分别。仅添加 4 µL 用于细胞活力计算的乙腈加入孔中(图3).
- 用封板膜封板,并在 27 °C 避光孵育48小时。
- 制备 5 mg/mL MTT(噻唑蓝四氮唑溴化物)试剂,溶于缓冲液(2.0 g NaCl、0.05 g KCl、0.36 g NaH₂PO₄·H₂O、0.1 g 葡萄糖、0.2 g NaHCO₃、0.005 g 酚红溶于 200 mL 去离子水)中2PO4∙2H2O,0.28 g NaH2PO4,0.05 g KH2PO4 溶解于 200 mL 蒸馏水中,pH 7.5。
- 移除第2.6步中培养48小时后的细胞培养基,注意不要触碰底部贴壁的细胞层。添加 200 µL 在第2.7步中,向每个孔中加入MTT试剂。在37°C下孵育 37 °C 孵育4小时,直至每个孔中形成深紫色的甲臜沉淀(图3).
- 孵育于 37 °C 孵育4小时,直至每个孔中形成深紫色的甲臜沉淀。加入 500 µL DMSO以充分溶解沉淀物(图3).

图3:MTT检测结果示例。 用CAT重组杆状病毒P1病毒原液感染后48小时,将表达CAT基因的细胞以500 µL均匀接种于24孔细胞培养板中。分别向每行加入4 µL不同剂量的氯菊酯(6.25 mM、12.5 mM、25 mM和50 mM),使终浓度分别为50 µM、100 µM、200 µM和400 µM。对照组行仅加入乙腈,标记为CK。 (A) 在27 °C孵育48小时后,弃去上层细胞培养基,每孔加入200 µL黄色MTT试剂,随后在37 °C继续孵育48小时。各孔中形成深紫色还原沉淀,表明存活细胞能够将黄色MTT试剂代谢转化为深紫色沉淀物。 (B) 向每孔加入500 µL DMSO溶剂以溶解所形成的沉淀。使用分光光度计在540 nm处检测各孔的吸光度值。随着氯菊酯浓度的增加,颜色由深红色逐渐变为浅红色,表明细胞活力逐渐下降。 请点击此处查看该图的放大版本。
- 将200 µL溶解液转移至96孔板中。使用酶标仪(材料表)在540 nm处测定吸光度值。
- 通过比较氯菊酯处理细胞与仅用乙腈处理细胞的吸光度值,计算细胞存活率。
- 对于对照组,使用步骤1.4中获得的氯霉素乙酰转移酶(CAT)重组杆状病毒P2病毒原液重复所有操作。
- 对不同病毒制备物重复4次。
3. 体外 代谢检测
- 用乙腈配制100 mM的氯菊酯标准储备液。再用乙腈稀释成50 mM、25 mM、12.5 mM和6.25 mM。采用高效液相色谱法(HPLC)检测各浓度下的相应峰面积。根据不同氯菊酯浓度下的峰面积绘制并计算氯菊酯的标准曲线。
- 采用Bradford法测定步骤1.5中获得的蛋白浓度21。
- 在0.2 M Tris-HCl缓冲液(pH 7.4)中,加入40 µM氯菊酯标准品和步骤1.5中获得的1 mg蛋白,配制总体积为700 µL的代谢反应体系。30 °C下轻柔振荡孵育2小时,避光操作。
- 加入700 µL预冷的乙腈终止反应。继续在30 °C下轻柔振荡孵育30分钟,避光。
- 将反应混合物在室温下以16,000 ×g离心2分钟。收集上清液,并通过0.45 µm滤膜过滤。将滤液转移至超净棕色玻璃小瓶中,用于HPLC分析。
- 在最佳色谱条件下运行HPLC(流动相A:90%乙腈和10%水;流动相B:5%乙腈,用85%磷酸调节至pH 2.3)。采用1 mL/min的流速进行梯度洗脱,在232 nm波长下进行检测。
- 通过与未添加蛋白样品的反应对照比较,计算氯菊酯的消耗百分比。
- 使用步骤1.5.6中获得的CAT蛋白作为对照。
- 在步骤1.5.7中使用不同蛋白制备物重复上述所有步骤。
访问受限。请登录或开始试用以查看此内容。
结果
不同氯氰菊酯处理下的细胞活力(MTT 法)
在MdαE7重组杆状病毒感染的Sf9细胞(实验组)以及CAT重组杆状病毒(由杆状病毒感染试剂盒提供)感染的细胞(对照组)中检测了氯氰菊酯的细胞毒性。MdαE7表达细胞对氯氰菊酯耐受性的增强有力地支持了该羧酸酯酶在代谢杀虫剂中的作用,从而保护细胞免受化学损伤。在本研究中,将不同浓度氯氰菊酯(50、100、200和400 µM)处理下的细胞活力与仅用乙腈处理的细胞进行比较。结果显示,当暴露于不同浓度的氯氰菊酯时,MdαE7表达细胞的活力显著高于对照细胞(分别为86.00%至101.92%(图4B)和67.59%至81.43%(图4A)),表明MdαE7在昆虫细胞中代谢氯氰菊酯方面具有重要作用。
访问受限。请登录或开始试用以查看此内容。
讨论
近几十年来,异源表达系统已被广泛用于表达和分离大量蛋白质,从而实现对酶的生化特性及功能的测定与表征 体外迄今为止,已有多种不同的模型系统,包括 大肠杆菌, Pichia pastoris, Sacccharomyces cerevisiae,以及 草地贪夜蛾 已适用于重组蛋白表达,且表达系统的选择取决于 体外 该系统对于大规模生产目标蛋白至关重要22,23,24,25在本研究中,我们选用杆状病毒介导的昆虫细胞表达系统来表达家蝇羧酸酯酶,因为该系统可提供与昆虫细胞相似的细胞内环境,并保留某些重要的真核生物蛋白加工能力9尽管杆状病毒介导的表达系统具有诸多优势,但其局限性也应予以关注。杆状病毒介导的昆虫细胞表达系统只有在昆虫细胞被构建好...
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Q5 高保真 DNA 聚合酶 | New England Biolabs 公司 | M0491L | |
| QIAquick 琼脂糖凝胶回收试剂盒 | QIAGEN | 28704 | |
| pENTR/D-TOPO 克隆试剂盒,含 One Shot TOP10 化学感受态 E. coli | Invitrogen(隶属于 Life Technologies) | K240020 | 本试剂盒包含S.O.C.培养基和通用M13序列引物。 |
| PureLink HiPure 质粒小提试剂盒 | Invitrogen(隶属于 Life Technologies) | K210002 | |
| Gateway LR Clonase II 酶混合物用于 BaculoDirectTM 试剂盒 | Invitrogen(原life technology) | 11791-023 | |
| BaculoDirect C端线性DNA转染试剂盒 | Invitrogen(隶属于 Life Technologies) | 12562-019 | 本试剂盒包含Cellfectin转染试剂和更昔洛韦 |
| pENTR-CAT 质粒 | Invitrogen(隶属于 Life Technologies) | BaculoDirect C-末端线性DNA转染试剂盒内含物,浓度:0.5 ug/uL | |
| 经热灭活的认证胎牛血清 | Gibco(Life Technologies 公司旗下品牌) | 10082-139 | |
| Sf-900 III 无血清培养基中的 Sf9 细胞 | Gibco(生命技术公司) | 12659017 | |
| 昆虫细胞-PE LB昆虫细胞蛋白提取 &和裂解缓冲液 | G Biosciences,隶属于Geno Technology, Inc. | 786-411 | |
| Sf-900 III SFM (1×无血清完全培养基 | Gibco(生命技术公司旗下品牌) | 12658-019 | |
| Grace's 昆虫细胞培养基,未添加补充物 | Gibco(隶属于 Life Technologies) | 11595030 | |
| 氯菊酯(异构体)分析标准品 | SUPELCO,隶属于Solutions WithinTM | 442748 | |
| 甲醇(分析纯) | Sigma-Aldrich | 67-56-1 | |
| 乙腈(分析纯) | Sigma-Aldrich | 75-05-8 | |
| GHP Acrodisc 25 mm 注射器滤器,孔径 0.45 μm GHP 膜(HPLC 认证) | Pall Life Sciences | 21890388 | |
| Alliance Waters 2695 高效液相色谱系统 | 沃特斯 | ||
| T100 热循环仪 | 伯乐生命科学公司 | 1861096 | |
| Nanodrop 2000/2000c 分光光度计 | 赛默飞世尔科技 | ND2000CLAPTOP | |
| Cytation 5 细胞成像多功能酶标仪 | BioTek |
参考文献
- Scott, J. G., et al. Insecticide resistance in house flies from the United States: Resistance levels and frequency of pyrethroid resistance alleles. Pesticide Biochemistry and Physiology. 107 (3), 377-384 (2013).
- Li, M., et al. A whole transcriptomal linkage analysis of gene co-regulation in insecticide resistant house flies, Musca domestica. BMC Genomics. 14, 803(2013).
- Liu, N. Insecticide resistance in mosquitoes: impact, mechanisms, and research directions. Annual Review of Entomology. 60, 537-559 (2015).
- Grigoraki, L., et al. Transcriptome profiling and genetic study reveal amplified carboxylesterase genes implicated in temephos resistance, in the Asian tiger mosquito Aedes albopictus. e0003771. 9, e0003771(2015).
- Grigoraki, L., et al. Carboxylesterase gene amplifications associated with insecticide resistance in Aedes albopictus: Geographical distribution and evolutionary origin. PLOS Neglected Tropical Diseases. 11, e0005533(2017).
- Wheelock, C., Shan, G., Ottea, J. Overview of carboxylesterases and their role in the metabolism of insecticides. Journal of Pesticide Science. 30, 75-83 (2005).
- Feng, X., Li, M., Liu, N. Carboxylesterase genes in pyrethroid resistant house flies, Musca domestica. Insect Biochemistry and Molecular Biology. 92, 30-39 (2018).
- Mosmann, T. Rapid colorimetric assay for cellular growth and survival: application to proliferation and cytotoxicity assays. J Immunol Methods. 65 (1-2), 55-63 (1983).
- Jarvis, D. L. Baculovirus-insect cell expression systems. Methods in Enzymology. 463, 191-222 (2009).
- Berger, I., Fitzgerald, D. J., Richmond, T. J. Baculovirus expression system for heterologous multiprotein complexes. Nature Biotechnology. 22 (12), 1583(2004).
- Gong, Y., Li, T., Feng, Y., Liu, N. The function of two P450s, CYP9M10 and CYP6AA7, in the permethrin resistance of Culex quinquefasciatus. Scientific Reports. 7 (1), 587(2017).
- Cao, C. W., Zhang, J., Gao, X. W., Liang, P., Guo, H. L. Overexpression of carboxylesterase gene associated with organophosphorous insecticide resistance in cotton aphids, Aphis gossypii (Glover). Pesticide Biochemistry and Physiology. 90 (3), 175-180 (2008).
- Zhang, L., Gao, X., Liang, P. Beta-cypermethrin resistance associated with high carboxylesterase activities in a strain of house fly, Musca domestica (Diptera: Muscidae). Pesticide Biochemistry and Physiology. 89, 65-72 (2007).
- Van Meerloo, J., Kaspers, G. J., Cloos, J. Cell sensitivity assays: the MTT assay. Cancer cell culture. , Humana Press. 237-245 (2011).
- Stockert, J. C., Blázquez-Castro, A., Cañete, M., Horobin, R. W., Villanueva, Á MTT assay for cell viability: Intracellular localization of the formazan product is in lipid droplets. Acta Histochemica. 114 (8), 785-796 (2012).
- Strober, W. Trypan blue exclusion test of cell viability. Current Protocols in Immunology. , A3-B (2001).
- Riss, T. L., Moravec, R. A., Niles, A. L., Duellman, S., Benink, H. A., Worzella, T. J., Minor, L. Cell viability assays. Assay Guidance Manual. , (2013).
- Wheelock, C. E., Shan, G., Ottea, J. Overview of carboxylesterases and their role in the metabolism of insecticides. Journal of Pesticide Science. 30 (2), 75-83 (2005).
- Li, X., Schuler, M. A., Berenbaum, M. R. Molecular mechanisms of metabolic resistance to synthetic and natural xenobiotics. Annual Review of Entomology. 52, 231-253 (2007).
- Nakamura, Y., et al. The in vitro metabolism of a pyrethroid insecticide, permethrin, and its hydrolysis products in rats. Toxicology. 235 (3), 176-184 (2007).
- Kruger, N. J. The Bradford method for protein quantitation. The protein protocols handbook. , Humana Press. 15-21 (2002).
- Macauley-Patrick, S., Fazenda, M. L., McNeil, B., Harvey, L. M. Heterologous protein production using the Pichia pastoris expression system. Yeast. 22 (4), 249-270 (2005).
- Berger, I., Fitzgerald, D. J., Richmond, T. J. Baculovirus expression system for heterologous multiprotein complexes. Nature Biotechnology. 22 (12), 1583(2004).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Applied Microbiology and Biotechnology. 72 (2), 211(2006).
- Bulter, T., et al. Functional expression of a fungal laccase in Saccharomyces cerevisiae by directed evolution. Applied Microbiology and Biotechnology. 69 (2), 987-995 (2003).
- Stepanenko, A. A., Dmitrenko, V. V. Pitfalls of the MTT assay: Direct and off-target effects of inhibitors can result in over/underestimation of cell viability. Gene. 574 (2), 193-203 (2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
