本文介绍了一种利用自然病原体Mycobacterium marinum在成年斑马鱼中建立人类结核病模型的实验方案。通过提取感染斑马鱼内脏器官中的DNA和RNA,可利用qPCR检测鱼类体内总的分枝杆菌载量以及宿主的免疫应答反应。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
Mycobacterium tuberculosis 目前是导致人类死亡人数最多的病原体,每年造成约 170 万人死亡和 1040 万例感染。人类暴露于该细菌后,可引发从无菌性感染到进行性致命疾病等一系列广泛的疾病谱。最常见的形式是潜伏性结核病,其无临床症状,但具有发展为暴发性疾病的潜在可能。成年斑马鱼及其天然病原体 Mycobacterium marinum 近年来已被证实是研究结核病广泛疾病谱的适用模型。重要的是,该模型可用于研究分枝杆菌感染背景下的自然潜伏、再激活过程以及适应性免疫应答。本文描述了成年斑马鱼实验性感染的方法,以及采集内脏器官以提取核酸,进而通过定量 PCR 检测分枝杆菌载量和宿主免疫应答的技术流程。本实验室自主研发的针对 M. marinum 的 qPCR 检测方法比传统的平板培养法更敏感,因其还能检测到来自非分裂、休眠或近期死亡的分枝杆菌的 DNA。由于 DNA 和 RNA 均来自同一个体,因此可同时研究疾病状态与宿主及病原体基因表达之间的关系。综上所述,成年斑马鱼结核病模型是一种高度适用的非哺乳类 in vivo 系统,可用于研究宿主-病原体相互作用。
引言
斑马鱼(斑马鱼斑马鱼是生物医学研究中广泛使用的动物模型,也是研究常见脊椎动物生物学的公认模型。斑马鱼已被应用于多个研究领域,用于模拟人类疾病和疾患,涵盖癌症等范围1 和心脏疾病2 用于多种细菌的感染与免疫学研究 3 以及病毒感染4,5此外, 子宫外 斑马鱼胚胎的发育使其成为发育生物学中广泛使用的模式生物6 毒理学7,8.
在包括感染生物学在内的许多研究领域中,光学透明的斑马鱼幼鱼被广泛使用。最初的免疫细胞在受精后24小时(hpf)出现,此时可检测到原始巨噬细胞9。中性粒细胞是继而出现的免疫细胞,大约在33 hpf时出现10。因此,斑马鱼幼鱼适用于研究感染的早期阶段以及在缺乏适应性免疫细胞的情况下先天免疫的作用11。然而,具有完全功能性适应性免疫系统的成年斑马鱼为感染实验提供了更复杂的层次。T细胞大约在受精后3天可被检测到12,而B细胞在受精后4周能够产生功能性抗体13。成年斑马鱼具备哺乳动物先天性和适应性免疫系统的所有主要对应成分。鱼类与人类免疫系统之间的主要差异体现在抗体同种型以及淋巴组织的解剖结构上。斑马鱼仅有三类抗体14,而人类有五类15。由于缺乏骨髓和淋巴结,鱼类的初级淋巴器官为肾脏和胸腺16,脾脏、肾脏和肠道则作为次级淋巴器官17。尽管存在这些差异,成年斑马鱼凭借其完整的先天性和适应性免疫细胞 arsenal,成为研究宿主-病原体相互作用的一种高度适用、易于操作的非哺乳动物模型。
斑马鱼最近已被确立为研究结核病的可行模型18,19,20,21,22。结核病是一种由结核分枝杆菌(Mycobacterium tuberculosis)引起的空气传播疾病。根据世界卫生组织的数据,结核病在2016年导致了170万人死亡,是全球单一病原体致死的首要原因23。小鼠24,25、兔子26和非人灵长类动物27是结核病研究中最广为人知的动物模型,但每种模型都有其局限性。非人灵长类动物的M. tuberculosis感染模型与人类疾病最为相似,但由于严重的伦理问题,该模型的应用受到限制。其他动物模型则受限于M. tuberculosis的宿主特异性,这会影响疾病的病理过程。结核病建模中最可能的重大挑战在于人类疾病中感染和疾病结局的广泛谱系:结核病是一种高度异质性的疾病,其表现范围从完全清除病原体的免疫反应到潜伏性、活动性以及复发性感染28,这些在实验上难以复制和建模。
Mycobacterium marinum 是 M. tuberculosis 的近缘种,两者具有约 3,000 个直系同源蛋白,氨基酸序列同一性达 85%29。M. marinum 可自然感染斑马鱼,并在其内脏器官中形成结核病的典型特征——肉芽肿19,30。与其他用于结核病研究的动物模型相比,斑马鱼繁殖力强、所需空间有限,更重要的是,它是目前神经生理发育程度最低的脊椎动物结核病模型。此外,M. marinum 感染可在成年斑马鱼中引起潜伏感染、活动性病变,甚至可导致分枝杆菌感染的自愈,从而高度模拟人类结核病的多种疾病转归谱19,31,32。本文中,我们描述了通过向成年斑马鱼腹腔注射 M. marinum 建立实验性结核病模型的方法,并利用定量 PCR 检测斑马鱼组织样本中的分枝杆菌载量及免疫应答水平。
访问受限。请登录或开始试用以查看此内容。
方案
所有斑马鱼实验均已获得芬兰动物实验委员会(ESAVI/8245/04.10.07/2015)的批准。实验方法遵循芬兰关于用于科学或教育目的动物保护的法案(497/2013)及政府法令(564/2013)。
1. 海分枝杆菌(Mycobacterium marinum)的培养
注意:由于海分枝杆菌是一种可导致人类浅表感染的病原体,在开始操作该细菌前,请了解当地关于个人安全防护和生物危害废物处理的相关规定。
- 培养 M. marinum 在添加了10% OADC(油酸、白蛋白、葡萄糖、过氧化氢酶)增补剂和0.5% v/v 甘油的7H10平板上 29 °C 至少5天。维持 M. marinum 每隔两周从冰箱中取出新鲜的细菌进行培养,并每隔一周将其转接至新的培养皿上。
注意: M. marinum 是一种感染水生生物的天然鱼类病原体,因此必须采取预防措施,避免该细菌污染斑马鱼种群。受感染的斑马鱼及被细菌污染的物品必须与繁殖设施隔离存放。 - 使用无菌的1-µL 接种环无菌转移一环 M. marinum 将细菌菌体转入含有10 mL 7H9培养基的细胞培养瓶中,培养基中添加10% ADC(白蛋白、葡萄糖、过氧化氢酶)增补剂、0.2% v/v 吐温-80和0.2% v/v 甘油。培养3–4天至OD值达到约600 0.7 的光密度(optical density) 29 °C 在避光条件下静置,不要振荡。瓶盖应保持松开状态,或使用滤膜盖,以确保充分的气体交换。
注意:在培养基中添加聚山梨酯80以防止细菌聚集。此外,光照会导致细菌菌落发生表型变化例如,颜色会从白色变为黄色)。为避免此现象,应将培养物置于避光环境中。 - 测量OD600使用分光光度计测定其值。将液体培养物稀释至OD600 0.07–0.09,继续培养2天 29 °C 在黑暗中静置,不要摇动。瓶盖保持松开。
注意:在这两天期间,菌液悬浊液将达到一个OD600约0.5,对应于对数生长期初期。
2. 制备用于感染成年斑马鱼的细菌溶液
- 将细菌悬液转移至一个大的无菌比色皿或15 mL离心管中,室温避光静置15分钟,使最大的团块沉降。
- 取上层5–7 mL悬液转移至洁净的离心管或比色皿中,测定OD600。使用该上清相悬液进行感染实验。
- 取1 mL M. marinum 培养物至新的离心管中,以10,000 × g 离心3分钟。弃去上清液,将沉淀重悬于1 mL无菌1×PBS中。
- 使用含0.3 mg/mL酚红作为示踪剂的无菌1×PBS稀释至所需细菌浓度。将稀释后的悬液分为三份等量样品。
注意:利用预先确定的OD600与CFU(菌落形成单位)/µL的标准曲线,估算在5 µL注射体积中达到目标细菌数量所需的稀释倍数34。在正式开展感染实验前,必须验证OD600与细菌悬液浓度之间的相关性。建议预留两周时间收集该验证数据。 - 使用1 mL注射器,将悬液缓慢通过27 G针头抽吸3次。每份等量样品均应在使用前立即进行此操作。
注意:同一份细菌溶液使用时间不得超过2小时。
3. 通过腹腔注射进行实验性M. marinum感染
- 将稀释后的细菌溶液用移液器吸取5 µL滴加到一片石蜡膜上,并用30 G胰岛素针头吸取液滴。
- 实验使用5–8月龄的野生型斑马鱼和rag1−/−hu1999突变型斑马鱼。用含0.02% 3-氨基苯甲酸乙酯(pH 7.0)的养殖水对成年斑马鱼进行麻醉。将鱼腹面朝上置于湿润的泡沫塑料切口中。
注意:Rag-/- 突变型斑马鱼无法进行体细胞重排,不能产生功能性T细胞和B细胞。 - 将针头插入腹鳍之间的区域,角度约为45°。保持针头开口朝上,确保整个开口进入腹腔内。缓慢注射细菌悬液,然后小心拔出针头。
注意:若注射时红色示踪剂从鱼体泄漏,应将该鱼排除在实验之外。 - 注射后立即把鱼转移到含有新鲜养殖水的恢复缸中。
- 在实验过程中,每隔15分钟取用中的细菌悬液样品接种至7H10平板,于29 °C培养5天,通过计数平板上的菌落来确认感染剂量。
- 定期检查鱼的健康状况,对出现感染症状的鱼使用浓度超过0.02%的3-氨基苯甲酸乙酯(pH 7.0)实施安乐死。
注意:大约7%接种了34 ± 15 CFU细菌的成年斑马鱼,以及30%接种了2029 ± 709 CFU细菌的斑马鱼,在8周内会出现症状19。症状可能包括异常游动、对触碰无反应、喘息、水肿或明显的消瘦。 - 按照通用标准饲养和维护斑马鱼35。
4. 内脏器官的采集
- 使用过量的3-氨基苯甲酸乙酯(浓度超过0.02%,pH 7.0)溶于养殖水中,处死斑马鱼。
- 将一根针插入鳃盖骨后方,另一根针穿过尾部,将鱼固定在平台上。
- 用手术刀切开整个腹腔,使用小勺和尖头镊子收集内脏器官。从心脏开始,沿脊柱向尾部方向操作,将所有内脏以完整组织块的形式剥离。
注意:务必用勺子沿脊柱刮取,确保收集全部肾组织。 - 最后,用镊子在泄殖腔附近分离肠道,将器官转移至含有六颗2.8 mm陶瓷珠的1.5 mL匀浆管中。立即置于干冰上冷冻样品。样品可在-80 °C保存,直至进行匀浆处理。
- 在处理不同个体之间,用70%乙醇冲洗器械。
5. 组织块的匀浆及RNA提取。
注意:该方法修改自斯坦福大学方案36。
- 在样本上方加入用于核酸提取的硫氰酸胍-苯酚溶液(材料表),使总体积达到 1,500 µL。确保样本体积不超过总体积的 10%。
注意:采集组织的预期体积为 100 µL。硫氰酸胍-苯酚溶液含有有毒和刺激性化合物,操作时需穿戴防护服、丁腈手套,并在通风橱中进行。切勿与漂白剂混合,否则会产生有毒气体。使用前请阅读材料安全数据表(MSDS)。 - 使用珠磨均质仪对样本进行均质化处理,每次 40 秒,共 3 次,转速为 3,200 rpm。每次循环之间在冰上冷却 30 秒。将均质后的样本在水浴中超声处理 9 分钟。
- 在 4 °C 条件下以 12,000 x g 离心 10 分钟,将 1,000 µL 上清液转移至新的微量离心管中。
- 加入 200 µL 氯仿,立即涡旋混合 15 秒,并在室温下孵育 2 分钟。
注意:氯仿为有毒且具刺激性的化合物,若吸入、吞咽或接触皮肤及眼睛可造成伤害。操作时需佩戴必要的个人防护装备,并在通风橱中进行。使用前请阅读材料安全数据表(MSDS)。 - 在 4 °C 条件下以 12,000 x g 离心 15 分钟,以分离水相和有机相。
- 小心转移上层相 500 µL 至新管中,避免 RNA 污染。移除并弃去剩余的水相(约 100 µL),将中间相和有机相在 4 °C 保存,用于后续 DNA 提取。
注:上层相含有 RNA。 - 加入 500 µL 异丙醇,立即涡旋混合 15 秒。室温孵育 10 分钟以沉淀 RNA。
- 在 4 °C 条件下以 12,000 x g 离心 10 分钟,使 RNA 沉淀。用移液器吸除上清液。
- 加入 1 mL 75% 乙醇,涡旋 10 秒。
注:本步骤可暂停,样本可在 4 °C 保存过夜。 - 在 4 °C 条件下以 7,500 x g 离心 5 分钟。用移液器吸除上清液。
- 重复步骤 5.9–5.10 的洗涤过程。小心吸除上清液,将沉淀在通风橱中空气干燥。
- 将 RNA 沉淀溶解于 500 µL 无核酸酶水中,样本置于冰上保存。使用微量分光光度计或等效设备测定浓度。将 RNA 储存于 -80 °C。
6. 斑马鱼和分枝杆菌共提取DNA的纯化
- 通过将118.2 g硫氰酸胍(终浓度4 M)、3.68 g柠檬酸钠(终浓度50 mM)和30.29 g Tris碱(终浓度1 M)溶解于120 mL无核酸酶水中制备反萃取缓冲液(BEB)(可能需要搅拌过夜)。用无核酸酶水定容至终体积250 mL,并过滤除菌。
注意:该缓冲液可在室温下保存长达6个月。切勿将BEB与漂白剂混合,否则会反应生成氯化氢和氰化氢等有毒气体。 - 利用样品的中间相和有机相提取分枝杆菌DNA。向每个试管中加入500 μL BEB。室温下颠倒混匀10分钟。
- 在室温下以12,000 × g 离心30分钟,小心转移含有DNA的上层水相500 µL至新试管中。
- 加入400 μL异丙醇。通过颠倒混匀,并在室温下孵育10分钟。
- 在4 °C下以12,000 × g 离心15分钟,此时应可见含有DNA的沉淀。小心用移液器移除上清液。
- 加入800 μL 70%乙醇。通过颠倒洗涤沉淀。此时切勿涡旋振荡样品,因为基因组DNA容易断裂。
- 在4°C下以12,000 × g 离心15分钟,并用移液器移除上清液。重复乙醇洗涤步骤(步骤6.6和6.7)。
- 小心用移液器去除乙醇。让样品在空气中干燥5–10分钟。将沉淀溶解于200 μL无核酸酶水中。
- 使用微量分光光度计或同等设备测定DNA浓度。DNA可短期保存于4 °C,或长期保存于-20 °C。
7. 用于测定分枝杆菌载量的定量 PCR
- 根据制造商说明,使用 MMITS1 引物(表 1)配制不含 ROX(羧基-X-罗丹明)的针对 M. marinum 16S-23S 间隔区(ITS)的内部转录间隔区(ITS)的 qPCR 反应体系。将反应体系和样品稀释液以复孔形式加入适用于 qPCR 的 96 孔板中。每次运行均需包含已知细菌数量的 DNA 标准品稀释系列。
注意:在感染 4 周时,每条鱼体内 M. marinum 的载量预计范围为 0 CFU 至 1,000,000 CFU。qPCR 检测也可使用其他 qPCR 试剂盒进行,但需重新优化引物的退火温度。 - 用光学透明封膜密封反应板,并在 4 °C 条件下以 2,000 × g 离心 2 分钟。
- 运行 表 2 中所示的 qPCR 程序。
- 利用标准曲线计算整个鱼样品中的细菌数量。
8. RNA 样本的 DNase 处理
- 为去除RNA中可能残留的基因组DNA痕迹,进行DNase I处理。将RNA样品置于冰上解冻。
注意:务必使用无RNase的仪器和溶液,并在开始实验前用去除RNase的去污试剂擦拭工作台面和移液器(材料表)。穿戴长袖实验服和手套以保护样品。 - 根据制造商说明书,在冰上配制10 μL DNase I反应体系。将1 μL DNase I、1 μL 10x DNase缓冲液和最多含1 μg RNA的8 μL RNA样品混合。
- 轻轻混匀反应体系(勿涡旋),在37 °C孵育30分钟。
- 热失活前,向每个10 µL反应体系中加入1 µL 50 mM EDTA。若未添加EDTA,RNA在加热时会发生化学降解。
- 在65 °C孵育10分钟以热失活DNase I。随后可直接进行cDNA合成,或将经DNase处理的RNA于-80 °C保存。
9. cDNA 合成
- 将所有试剂和样品置于冰上,并根据制造商说明书配制反应体系。对于5 μL的反应体系,包含1 μL反转录主混合液、3 μL无核酸酶水和1 μL经DNase处理的RNA。
- 轻轻混匀反转录反应液,必要时短暂离心管子。
- 将样品放入PCR仪中,并使用表3所示的程序进行反应。
- 必要时,用无核酸酶水将cDNA稀释至qPCR所需的最高浓度为2.5 ng/μL。cDNA可保存在-20 °C。
10. 通过定量 PCR 检测斑马鱼基因表达
- 根据制造商说明书在冰上配制 qPCR 预混液,并避光保存。使用 表 1 中列出的引物。
注意:为计算每个基因的诱导倍数,还需检测来自 6 条健康斑马鱼的混合基线样本中的基因表达水平。 - 为每个样本设置重复,将反应混合液移入 qPCR 板中。用光学透明封膜密封反应板,并在运行程序前于 4 °C 以 2,000 × g 离心 2 分钟。
- 按照 表 4 所示程序运行 qPCR,退火温度根据所用引物对而定(参见 表 1)。
- 采用 ΔCt 法分析目标基因相对于看家基因(loopern437)的表达比值,计算公式如下:
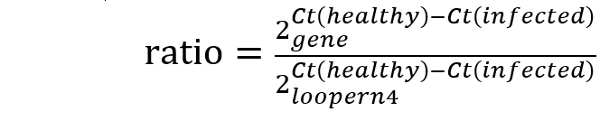
访问受限。请登录或开始试用以查看此内容。
结果
自然鱼类病原体Mycobacterium marinum可感染斑马鱼的内脏器官,并引起系统性感染,形成在组织学上可见的肉芽肿19。通过腹腔注射的方式使成年斑马鱼感染M. marinum。提取DNA和RNA,并以DNA为模板,通过定量聚合酶链式反应(qPCR)检测分枝杆菌负荷量。该方法的流程如图1所示。
用于感染鱼类的分枝杆菌初始数量是决定感染结果的关键因素。高剂量感染(约 2,000 CFU)的 M. marinum 会导致进行性疾病,分枝杆菌载量持续上升,直至平均细菌数量达到约五百万(图 2A),最终导致鱼类死亡。低剂量(约 20–90 CFU)的 M. marinum 感染则会引发类似于人类结核病的疾病谱(
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍一种基于qPCR的方法,用于检测从实验感染的成年斑马鱼组织中提取的DNA所含的分枝杆菌载量。该方法基于针对16S-23S rRNA内转录间隔区序列设计的引物40。通过使用已知数量培养的分枝杆菌提取的DNA制备标准曲线,并假设在任何给定时刻每个细菌含有一个基因组拷贝,来估算鱼样本中的总分枝杆菌载量。M. marinum-qPCR的检测下限约为100个菌落形成单位18。与传统的平板培养法相比,该方法的一个明显优势在于能够检测到活跃状态和非分裂的休眠状态的细菌。此外,该方法避免了斑马鱼组织在培养板上生长时常见的污染问题。然而,由于以DNA作为模板,所检测到的部分信号可能来源于近期死亡细菌的DNA。基于核酸的检测方案具有显著优势:由于可从同一个体中同时提取DNA和RNA(以及蛋白质,本文未描述),因此可将个体的分枝杆菌载量数据与宿主及细菌的基因表达数据相结合进行分析。
M. marinum 的接种剂量是决定感染结果的关键因素。低剂量 M. ma...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了芬兰文化基金会(H.L.)、坦佩雷结核病基金会(H.L.、L.-M.V.、M.M.H.、M.P.)、芬兰抗结核病协会基金会(Suomen Tuberkuloosin Vastustamisyhdistyksen Säätiö)(H.L.、M.M.H.、M.P.)、西格丽德·朱塞利乌斯基金会(M.P.)、埃米尔·阿尔托宁基金会(M.M.H.)、简和阿托斯·埃尔科基金会(M.P.)以及芬兰科学院(M.P.)的支持。感谢Leena Mäkinen、Hanna-Leena Piippo和Jenna Ilomäki提供的技术协助。 作者感谢坦佩雷斑马鱼实验室提供的服务。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Mycobacterium marinum | 美国典型培养物保藏中心 | ATCC 927 | |
| Middlebrook 7H10 琼脂 | BD,赛默飞世尔科技 | 11799042 | |
| Middlebrook OADC 增菌液 | BD,赛默飞世尔科技 | 11718173 | |
| Middlebrook 7H9 培养基 | BD,赛默飞世尔科技 | 11753473 | |
| Middlebrook ADC 增菌液 | BD,赛默飞世尔科技 | 11718173 | |
| 吐温 80 | Sigma-Aldrich | P1754 | |
| 甘油 | Sigma-Aldrich | G5516-500ML | |
| GENESYS20 分光光度计 | 赛默飞世尔科技 | ||
| 磷酸盐缓冲液片剂(PBS) | Sigma-Aldrich | P4417-50TAB | |
| 酚红 | Sigma-Aldrich | P3532 | |
| 27 G 针头 | Henke Sass Wolf | 4710004020 | |
| 1 mL 注射器 | Henke Sass Wolf | 4010.200V0 | |
| Omnican 100 30 G 胰岛素针头 | Braun | 9151133 | |
| 3-氨基苯甲酸乙酯(pH 7.0) | Sigma-Aldrich | A5040 | |
| 1.5 mL 匀浆管 | Qiagen | 13119-1000 | |
| 2.8 mm 陶瓷珠 | Qiagen | 13114-325 | |
| 乙醇,ETAX Aa | Altia | ||
| 2-丙醇 | Sigma-Aldrich | 278475 | |
| 氯仿 | VWR | 22711.290 | |
| 硫氰酸胍 | Sigma-Aldrich | G9277 | 分子量 118.2 g/mol |
| 柠檬酸钠 | Sigma-Aldrich | 1613859 | 分子量 294.1 g/mol |
| Tris(游离碱) | Sigma-Aldrich | TRIS-RO | 分子量 121.14 g/mol |
| TRI 试剂 | 分子研究中心 | TR118 | 硫氰酸胍-苯酚溶液 |
| PowerLyzer24 匀浆仪 | Qiagen | ||
| 超声破碎仪 m08 | Finnsonic | ||
| Nanodrop 2000 | 赛默飞世尔科技 | ||
| SENSIFAST No-ROX SYBR Green 主混合液 | Bioline | BIO-98005 | |
| qPCR 96 孔板 | BioRad | HSP9601 | |
| 光学透明封膜 | BioRad | MSB1001 | |
| 配备 CFX96 实时系统的 C1000 热循环仪 | BioRad | ||
| RNase AWAY | 赛默飞世尔科技 | 10666421 | 去除 RNase 的去污染试剂 |
| DNase I | 赛默飞世尔科技 | EN0525 | |
| 逆转录主混合液 | Fluidigm | 100-6298 | |
| SsoFast Eva Green 主混合液 | BioRad | 172-5211 |
参考文献
- Zhao, S., Huang, J., Ye, J. A fresh look at zebrafish from the perspective of cancer research. Journal of Experimental & Clinical Cancer Research. 34, 80(2015).
- Bournele, D., Beis, D. Zebrafish models of cardiovascular disease. Heart failure reviews. 21 (6), 803-813 (2016).
- Torraca, V., Mostowy, S. Zebrafish Infection: From Pathogenesis to Cell Biology. Trends in cell biology. 28 (2), 143-156 (2018).
- Varela, M., Figueras, A., Novoa, B. Modelling viral infections using zebrafish: Innate immune response and antiviral research. Antiviral Research. 139, 59-68 (2017).
- Goody, M. F., Sullivan, C., Kim, C. H. Studying the immune response to human viral infections using zebrafish. Developmental and comparative immunology. 46 (1), 84-95 (2014).
- Thisse, C., Zon, L. I. Organogenesis--heart and blood formation from the zebrafish point of view. Science. 295 (5554), 457-462 (2002).
- Eimon, P. M., Rubinstein, A. L. The use of in vivo zebrafish assays in drug toxicity screening. Expert Opinion on Drug Metabolism & Toxicology. 5 (4), 393-401 (2009).
- Sukardi, H., Chng, H. T., Chan, E. C. Y., Gong, Z., Lam, S. H. Zebrafish for drug toxicity screening: bridging the in vitro cell-based models and in vivo mammalian models. Expert Opinion on Drug Metabolism & Toxicology. 7 (5), 579-589 (2011).
- Wittamer, V., Bertrand, J. Y., Gutschow, P. W., Traver, D. Characterization of the mononuclear phagocyte system in zebrafish. Blood. 117 (26), 7126-7135 (2011).
- Harvie, E. A., Huttenlocher, A. Neutrophils in host defense: new insights from zebrafish. Journal of leukocyte biology. 98 (4), 523-537 (2015).
- Yoshida, N., Frickel, E., Mostowy, S. Macrophage-Microbe interactions: Lessons from the Zebrafish Model. Frontiers in Immunology. 8, 1703(2017).
- Langenau, D. M., et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proceedings of the National Academy of Sciences of the United States of America. 101 (19), 7369-7374 (2004).
- Lewis, K. L., Del Cid, N., Traver, D. Perspectives on antigen presenting cells in zebrafish. Developmental and comparative immunology. 46 (1), 63-73 (2014).
- Hu, Y., Xiang, L., Shao, J. Identification and characterization of a novel immunoglobulin Z isotype in zebrafish: Implications for a distinct B cell receptor in lower vertebrates. Molecular immunology. 47 (4), 738-746 (2010).
- Danilova, N., Bussmann, J., Jekosch, K., Steiner, L. A. The immunoglobulin heavy-chain locus in zebrafish: identification and expression of a previously unknown isotype, immunoglobulin Z. Nature immunology. 6 (3), 295-302 (2005).
- Zapata, A., Diez, B., Cejalvo, T., Frias, C. G., Cortes, A. Ontogeny of the immune system of fish. Fish & shellfish. 20 (2), 126-136 (2006).
- Traver, D., Paw, B. H., Poss, K. D., Penberthy, W. T., Lin, S., Zon, L. I. Transplantation and in vivo imaging of multilineage engraftment in zebrafish bloodless mutants. Nature immunology. 4 (12), 1238-1246 (2003).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Parikka, M., et al. Mycobacterium marinum Causes a Latent Infection that Can Be Reactivated by Gamma Irradiation in Adult Zebrafish. PLoS Pathog. 8 (9), 1-14 (2012).
- Tobin, D. M., et al. Host Genotype-Specific Therapies Can Optimize the Inflammatory Response to Mycobacterial Infections. Cell. 148 (3), 434-446 (2012).
- Lesley, R., Ramakrishnan, L. Insights into early mycobacterial pathogenesis from the zebrafish. Current opinion in microbiology. 11 (3), 277-283 (2008).
- Berg, R. D., Ramakrishnan, L. Insights into tuberculosis from the zebrafish model. Trends in molecular medicine. 18 (12), 689-690 (2012).
- World Health Organization. WHO Global tuberculosis report 2017. , Available from: http://www.who.int/tb/publications/global_report/en/ (2017).
- Ordonez, A. A., et al. Mouse model of pulmonary cavitary tuberculosis and expression of matrix metalloproteinase-9. Disease Models & Mechanisms. 9 (7), 779-788 (2016).
- Kramnik, I., Beamer, G. Mouse models of human TB pathology: roles in the analysis of necrosis and the development of host-directed therapies. Seminars in Immunopathology. 38 (2), 221-237 (2016).
- Manabe, Y. C., et al. The aerosol rabbit model of TB latency, reactivation and immune reconstitution inflammatory syndrome. Tuberculosis. 88 (3), 187-196 (2008).
- Pena, J. C., Ho, W. Monkey Models of Tuberculosis: Lessons Learned. Infection and immunity. 83 (3), 852-862 (2015).
- Cadena, A. M., Fortune, S. M., Flynn, J. L. Heterogeneity in tuberculosis. Nature Reviews Immunology. 17 (11), 691-702 (2017).
- Stinear, T. P., et al. Insights from the complete genome sequence of Mycobacterium marinum on the evolution of Mycobacterium tuberculosis. Genome research. 18 (5), 729-741 (2008).
- Swaim, L. E., Connolly, L. E., Volkman, H. E., Humbert, O., Born, D. E., Ramakrishnan, L. Mycobacterium marinum infection of adult zebrafish causes caseating granulomatous tuberculosis and is moderated by adaptive immunity. Infection and immunity. 74 (11), 6108-6117 (2006).
- Myllymaki, H., Bauerlein, C. A., Ramet, M. The Zebrafish Breathes new Life into the Study of Tuberculosis. Frontiers in Immunology. 7, 196(2016).
- Luukinen, H., et al. Priming of Innate Antimycobacterial Immunity by Heat-killed Listeria monocytogenes Induces Sterilizing Response in Adult Zebrafish Tuberculosis Model. Disease Models and Mechanisms. 11, (2018).
- Sar, A. M., Abdallah, A. M., Sparrius, M., Reinders, E., Vandenbroucke-Grauls, C., Bitter, W. Mycobacterium marinum strains can be divided into two distinct types based on genetic diversity and virulence. Infection and immunity. 72 (11), 6306-6312 (2004).
- Madigan, M., Martinko, J. Brock Biology of Microorganisms. , (2016).
- Nüsslein-Volhard, C., Dahm, R. Zebrafish:a practical approach. , Oxford University Press. Oxford. (2002).
- Anonymous Stanford University Protocols. , Available from: http://med.stanford.edu/labs/vanderijn-west/Protocols.html (2018).
- Vanhauwaert, S., et al. Expressed Repeat Elements Improve RT-qPCR Normalization across a Wide Range of Zebrafish Gene Expression Studies. Plos One. 9 (10), e109091(2014).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Oksanen, K. E., et al. An adult zebrafish model for preclinical tuberculosis vaccine development. Vaccine. 31 (45), 5202-5209 (2013).
- Roth, A., Fischer, M., Hamid, M. E., Michalke, S., Ludwig, W., Mauch, H. Differentiation of phylogenetically related slowly growing mycobacteria based on 16S-23S rRNA gene internal transcribed spacer sequences. Journal of clinical microbiology. 36 (1), 139-147 (1998).
- Rajararna, M. V. S., Ni, B., Dodd, C. E., Schlesinger, L. S. Macrophage immunoregulatory pathways in tuberculosis. Seminars in immunology. 26 (6), 471-485 (2014).
- Vynnycky, E., Fine, P. The natural history of tuberculosis: the implications of age-dependent risks of disease and the role of reinfection. Epidemiology and infection. 119 (2), 183-201 (1997).
- Cobat, A., et al. Two loci control tuberculin skin test reactivity in an area hyperendemic for tuberculosis. Journal of Experimental Medicine. 206 (12), 2583-2591 (2009).
- Delogu, G., Goletti, D. The Spectrum of Tuberculosis Infection: New Perspectives in the Era of Biologics. Journal of Rheumatology. 41, 11-16 (2014).
- Abel, L., et al. Genetics of human susceptibility to active and latent tuberculosis: present knowledge and future perspectives. Lancet Infectious Diseases. 18 (3), E75(2018).
- Guryev, V., et al. Genetic variation in the zebrafish. Genome research. 16 (4), 491-497 (2006).
- Brown, K. H., et al. Extensive genetic diversity and substructuring among zebrafish strains revealed through copy number variant analysis. Proceedings of the National Academy of Sciences of the United States of America. 109 (2), 529-534 (2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
